Er wordt een gedetailleerde methode beschreven voor het evalueren van mutante fenotypes van genen van belang en het bepalen van hun rollen bij de fusie van myoblasten met behulp van Drosophila-embryo's. Deze aanpak maakt een systematische karakterisering van genfuncties tijdens de embryonale spierontwikkeling mogelijk.
Methodenartikel
Genetische, fenotypische en kwantitatieve analyse van myoblastfusie in Drosophila-embryo's
In dit artikel
Samenvatting
Samenvatting
De fusie van mononucleaire myoblasten tot multinucleaire syncytia is een fundamenteel proces bij de ontwikkeling van skeletspieren. Drosophila melanogaster is een krachtig, genetisch hanteerbaar model voor het snel en efficiënt beoordelen van de functie van kandidaatgenen die betrokken zijn bij dit proces. Hier beschrijven we een uitgebreid protocol met stapsgewijze instructies voor het analyseren van het myoblastfusie-fenotype in Drosophila embryo's. Deze methode omvat de selectie van mutantlijnen voor het kandidaatgen, embryo-collectie en fixatie, whole-mount immunokleuring, bepaling van het ontwikkelingsstadium, confocale beeldvorming en fenotypische analyse. Kleuring van de myosin heavy chain (MHC) wordt gebruikt om de algemene spiermorfologie te visualiseren en niet-gefuseerde mononucleaire myoblasten te identificeren. Parallel daaraan labelt Even-skipped (Eve)-kleuring de kernen binnen een specifieke spiervezel, wat een kwantitatieve analyse van de mate van fusie mogelijk maakt door de kernen te tellen die in die vezel zijn opgenomen. Samen stelt dit protocol de lezers in staat om de mutante fenotypes van eventuele genen van belang te beoordelen en hun rollen bij myoblastfusie te evalueren. Deze benadering biedt een robuust kader voor het identificeren en karakteriseren van nieuwe regulatoren van myoblastfusie.
Inleiding
Skeletspieren vormen het meest voorkomende weefsel in het menselijk lichaam en maken meer dan 30% van het totale lichaamsgewicht uit. Tijdens de embryonale ontwikkeling worden skeletspiervezels gegenereerd door de fusie van mononucleaire spiercellen, bekend als myoblasten, tot multinucleaire syncytiale myofibrillen1,2. Dit proces is essentieel voor een juiste spierformatie, groei en functie, en verstoring hiervan is geassocieerd met veel spieraandoeningen3,4. Vergelijkbaar met skeletspieren van vertebraten worden de multinucleaire myofibrillen die de musculatuur van de embryonale en larvale lichaamswand bij Drosophila melanogaster vormen, eveneens gevormd door de fusie van mononucleaire myoblasten5,6,7,8. Bij Drosophila vindt fusie plaats tussen twee typen spiercellen, spierstichtercellen (muscle founder cells) en fusie-competente myoblasten (FCM's), bij de asymmetrische fusogene synaps9,10,11,12,13. Belangrijk is dat de cellulaire gebeurtenissen en moleculaire mechanismen die de myoblastfusie reguleren, sterk geconserveerd zijn tussen Drosophila en vertebraten14,15,16, waardoor Drosophila een krachtig modelorganisme is voor het onderzoeken van de genetische en cellulaire basis van myoblastfusie.
Het Drosophila-model biedt daarnaast verschillende experimentele voordelen. Ten eerste maakt de korte levenscyclus van Drosophila (~10 dagen bij 25 °C) snelle genetische kruisingen en een efficiënte generatie van mutantlijnen mogelijk. Ten tweede zijn Drosophila-embryo's klein en na fixatie gemakkelijk doorlaatbaar voor antilichamen, wat whole-mount immunokleuring en imaging met hoge resolutie van de spierontwikkeling mogelijk maakt zonder dat dissectie van het weefsel nodig is. Ten derde volgt de embryonale spierontwikkeling van Drosophila een zeer stereotiep patroon, waarbij 30 spiervezels aanwezig zijn in de meeste abdominale hemisegmenten. Elke spiervezel wordt gespecificeerd door één enkele founder-cel die fuseert met een gedefinieerd aantal FCM's (variërend van 3 tot 30)17, wat een reproduceerbare en kwantitatieve analyse van myoblastfusie mogelijk maakt. Ten slotte maken publiek toegankelijke collecties van genmutanten en deficiëntielijnen met chromosomale deleties snelle loss-of-function-analyses van bijna alle genen mogelijk, zonder dat tijdrovende de novo generatie van mutanten vereist is.
Er wordt een gedetailleerd protocol gepresenteerd voor het beoordelen van myoblastfusie-fenotypen in Drosophila-embryo's (Figuur 1). Het protocol bevat strategieën voor het selecteren van geschikte mutante allelen, het verzamelen en fixeren van embryo's, whole-mount immunokleuring, beeldvorming van embryo's en kwantitatieve analyse van fusie-fenotypen. Samen bieden deze procedures een snelle en efficiënte workflow voor de genetische analyse van kandidaatgenen die betrokken zijn bij myoblastfusie.
Protocol
1. Selecteer mutantstammen voor genetische analyse van myoblastfusie
- Zoek in FlyBase naar mutantlijnen van het gen van belang. Open de bijbehorende genrapportpagina en bekijk de mutante allelen die worden vermeld onder “Alleles, Insertions, Constructs, and Aberrations.”
- Selecteer null-allelen of allelen met een sterk verlies van functie door de gerapporteerde moleculaire letsels voor elk allel te bestuderen. Geef prioriteit aan allelen die nonsensmutaties, frameshiftmutaties, deleties of inserties bevatten die de genfunctie verstoren.
- Plaats het geselecteerde mutante allel over een balancerchromosoom met een fluorescente marker om homozygote mutante embryo's te onderscheiden van broeders en zusters die de balancer dragen. Kies een geschikte fluorescente balancer op basis van het chromosoom waarop het mutante allel zich bevindt (Tabel 1).
2. Drosophila-embryo's verzamelen en fixeren
- Bereid bekers voor de embryo-collectie voor door met een 25 G naald meerdere ventilatiegaatjes in de zijkanten en bodems van plastic bekerglazen van 100 mL te maken (Figuur 1).
- Bereid druivensapagar voor door 15 g agar te mengen met 400 mL gedestilleerd water (dH₂O) en dit 21 min lang te autoclaveren bij 121 °C. Laat de gesmolten agar afkoelen tot deze handwarm is.
- Verwarm 100 mL van 100% druivensap tot het handwarm is en meng dit grondig met de gesmolten agar. Verdeel ongeveer 10 mL over elke 60 mm petrischaal, laat de platen op kamertemperatuur stollen en bewaar ze bij 4 °C.
- Bereid verse gistpasta voor door 10 g droge gist in 15 ml dH₂O te mengen tot deze glad en smeerbaar is. Breng de pasta aan in het midden van een druivensapagarplaat en verwarm de plaat voor tot 25 °C (Figuur 1).
OPMERKING: Bewaar bereide gistpasta tot 2 weken bij 4 °C. - Breng 3−7 dagen oude volwassen vliegen, heterozygoot voor het mutante allel en een passende fluorescerende balancer, over naar de collectiebekers.
OPMERKING: Gebruik wild-type vliegen, zoals w1118, als controles. Ongeveer 50−80 vrouwtjes en 40−50 mannetjes zijn voldoende voor één collectiebeker. - Plaats een voorverwarmde druivensapagarplaat op de collectiebeker en zet deze vast met elastiekjes (Figuur 1). Incubeer de collectiebeker 12 u bij 25 °C.
- Tik voorzichtig tegen de collectiebeker om de vliegen los te maken en vervang de plaat door een verse, voorverwarmde plaat. Herhaal de vervanging van de plaat elke 12 u gedurende 2 dagen om de vliegen te acclimatiseren.
OPMERKING: Verwarm elke plaat voor tot 25 °C vóór gebruik, omdat de eiafzetting op koude platen verminderd is. - Vervang de plaat door een verse, voorverwarmde plaat na de acclimatisatieperiode van 2 dagen. Laat de vliegen gedurende de nacht 14−15 u eieren leggen.
- Vul een microcentrifugebuisje van 1,5 mL met 0,1% (v/v) Triton X-100 in gedestilleerd water. Collecteer de embryo's van de plaat met een penseel dat is voorgebracht in 0,1% Triton X-100 en breng ze vervolgens over naar het buisje.
- Schud het buisje krachtig om de embryo's opnieuw te suspenderen en resterende gistpasta te verwijderen. Laat de embryo's bezinken en was ze vervolgens minstens 3 keer met 0,1% Triton X-100, of totdat de oplossing helder is (Figuur 1).
- Voeg 1,5 mL van ~50% huishoudbleekmiddel toe om een uiteindelijke natriumhypochlorietconcentratie van 2,85% te verkrijgen. Nutate 3 min om de embryo's te dechorioneren.
OPMERKING: Vermijd langdurige blootstelling aan bleekmiddel, aangezien overmatige dechorionering de embryo's kan beschadigen en daaropvolgende immunokleuringen kan compromitteren. - Laat de embryo's bezinken, verwijder het bleekmiddel en was 3x met 0,1% Triton X-100.
- Verwijder de resterende wasoplossing en voeg 700 µL van 3,7% formaldehyde in fosfaatgebufferde zoutoplossing (PBS) en 700 µL heptaan toe.
WAARSCHUWING: Werk met formaldehyde en heptaan in een zuurkast en voer ze af volgens de geldende chemische veiligheidsprocedures. - Sluit het buisje stevig af en schud 30 s krachtig. Nutate de embryo's 30 min om de fixatie te voltooien.
- Laat de embryo's zich ophopen op de interface tussen de bovenste heptaanfase en de onderste waterige fase (Figuur 1). Verwijder voorzichtig de waterige fase zonder de embryo's te verstoren.
- Voeg ongeveer 700 µL methanol toe en schud 30 s krachtig om de embryo's te devitelliniseren.
OPMERKING: Succesvol devitelliniseerde embryo's zinken naar de bodem van het buisje, terwijl losgekomen vitelline membranen op de interface blijven (Figuur 1).
WAARSCHUWING: Werk met methanol in een zuurkast en voer dit af in overeenstemming met de geldende chemische veiligheidsprocedures. - Verwijder het heptaan en de methanol terwijl de embryo's bedekt blijven met een klein volume methanol. Was de embryo's twee keer met methanol.
- Rehydrateer de embryo's door ze drie keer 5 min per wasbeurt te wassen met PBST (0,1% Triton X-100 in PBS) op een nutator. Bescherm de embryo's tegen licht tijdens deze en alle volgende stappen.
OPMERKING: Houd de embryo's na devitellinisatie bedekt met oplossing om dehydratatie te voorkomen en de morfologie van de embryo's te behouden. Minimaliseer blootstelling aan omgevingslicht om fluorescerende eiwitten en fluorofoor-geconjugeerde antilichamen te behouden.
3. Voer whole-mount immunokleuring uit
- Verwijder PBST en incubeer de embryo's in 1,5 mL PBSBT (0,5% BSA (w/v) en 5 mM NaN3 in PBST) gedurende ten minste 1 u bij kamertemperatuur op een nutator.
- Snijd het uiteinde van een pipetpunt af om een bredere opening te creëren en mechanische schade tijdens de overdracht van de embryo's te minimaliseren.
- Breng de geblokkeerde embryo's over naar een microcentrifugebuisje van 0,5 mL en verwijder de blokkeeroplossing. Voeg 200−300 µL verse PBSBT toe die anti-MHC-antilichaam (1:500)18 en/of anti-Eve-antilichaam (0,5 µg/mL) bevat.
- Incubeer de embryo's met de primaire antilichamen gedurende de nacht bij 4 °C op een nutator.
OPMERKING: Voer de anti-Eve co-kleuring voor kwantitatieve analyse uit nadat een myoblastfusie-fenotype is geïdentificeerd. Zowel konijnen- als ratten-anti-MHC-antilichamen kunnen worden gebruikt om de embryonale musculatuur van Drosophila te visualiseren. - Verwijder de primaire antilichaamoplossing en was de embryo's drie keer met PBST gedurende 10 min per wasbeurt op een nutator.
OPMERKING: Bewaar de primaire antilichaamoplossing bij 4 °C voor hergebruik indien toepasbaar. De oplossing kan doorgaans tot drie keer worden hergebruikt binnen 1 maand. - Incubeer de embryo's in 300 µL PBSBT met de geschikte fluorescente secundaire antilichamen in een verdunning van 1:500 gedurende 2 u bij kamertemperatuur op een nutator.
- Verwijder de secundaire antilichaamoplossing en was de embryo's drie keer met PBST gedurende 10 min per wasbeurt.
- Verwijder de laatste PBST-wasstap en voeg ongeveer 80 µL monteermedium toe. Breng de embryo's over naar een objectglas, plaats voorzichtig een dekglas over het monster en verzegel de randen (Figuur 1).
OPMERKING: Bewaar de geprepareerde preparaten bij 4 °C, beschermd tegen licht, en beeld ze zo snel mogelijk af voor een optimaal fluorescentiesignaal.
4. Embryo's stadieren en imagen
- Identificeer embryo's in de late fase 15 aan de kenmerkende hartvormige morfologie van de middendarm19 onder helderveldverlichting.
OPMERKING: MHC-proteïne-expressie is niet detecteerbaar in embryo's in fase 14 of eerder. In embryo's in fase 16 ondergaat de hartvormige middendarm een vernauwing en wordt deze onderverdeeld in vier kamers19. - Identificeer homozygote mutante embryo's aan de afwezigheid van de fluorescerende marker.
OPMERKING: Homozygote mutante embryo's dragen de fluorescent gemarkeerde balancer niet; daarom brengen zij het fluorescerende proteïne niet tot expressie. Sla deze stap over voor wild-type controle-embryo's. - Selecteer zijwaarts georiënteerde embryo's om de gehele somatische musculatuur te visualiseren die is gelabeld met anti-MHC-antilichamen.
OPMERKING: Dorsaal of ventraal georiënteerde embryo's onthullen voornamelijk het betreffende deel van de musculatuur. Gebruik zijwaarts georiënteerde embryo's om defecten in de myoblastfusie volledig te beoordelen. - Stel de lasersterkte en de detector gain in om een heldere MHC-fluorescentie te verkrijgen zonder signaalverzadiging, en behoud deze instellingen voor alle monsters binnen elk experiment. Definieer de boven- en ondergrenzen van de z-stack om de volledige diepte van de somatische musculatuur te omvatten.
- Stel de beeldresolutie in op 1024 × 1024 pixels, de pinhole op 1 Airy unit, de line/frame average op 1 en de zoomfactor op 1, en behoud deze instellingen voor alle monsters binnen elk experiment. Neem confocale z-stack beelden op met intervallen van 1,0 µm met behulp van een 40× olie-immersieobjectief.
- Beeld ongeveer 6−10 embryo's per genotype om de reproduceerbaarheid van het fenotype te beoordelen.
OPMERKING: Neem het fluorescerende balancer-marker-kanaal gelijktijdig met het MHC-kanaal op wanneer bevestiging van het homozygote mutante genotype vereist is.
5. Beeldvorming van de DA1-spier voor fusiekwantificering
- Voer MHC- en Eve-co-kleuring uit nadat een defect in de myoblastfusie is geïdentificeerd in lateraal georiënteerde embryo's.
- Selecteer dorsaal georiënteerde mutant- en controle-embryo's in stadium 15 voor beeldvorming.
OPMERKING: Even-skipped (Eve) komt specifiek tot expressie in de kernen van de dorsale acute spier 1 (DA1)20. Kwantificeer de myoblastfusie door het aantal Eve-positieve kernen te bepalen dat is opgenomen in de DA1-spier. - Pas de beeldvormingsparameters aan om heldere MHC- en Eve-fluorescentie te verkrijgen zonder signaalverzadiging. Definieer een z-stack die de volledige diepte van de DA1-spier omvat op basis van het Eve-signaal.
- Verwerf confocale z-stack beelden met de hierboven beschreven beeldvormingsparameters. Beeldvorm ongeveer 6−10 embryo's per genotype voor de kwantificatie van de fusie.
6. Kwantificeer kernen en voer statistische analyse uit
- Identificeer de abdominale hemisegmenten A1−A7 aan de hand van hun stereotype en repetitieve spierpatronen.
- Identificeer Eve-positieve kernen binnen de MHC-gelabelde DA1-spier. Bekijk de volledige z-stack en tel alle Eve-positieve kernen die zich op verschillende brandpuntsvlakken binnen elke DA1-spier bevinden.
OPMERKING: Elk abdominaal hemisegment bevat één enkele DA1-spier. Daarom worden alle Eve-positieve kernen binnen een bepaald hemisegment toegerekend aan de corresponderende DA1-spier. - Kwantificeer de DA1-kernen in dezelfde set abdominale hemisegmenten, zoals A2−A5, voor elk embryo.
OPMERKING: Hoewel DA1-spieren uit de abdominale hemisegmenten A1−A7 geschikt zijn voor kwantificering, is het analyseren van alle zeven hemisegmenten niet noodzakelijk. Kwantificeer in plaats daarvan verschillende hemisegmenten per embryo, zoals A2−A5, en analyseer dezelfde set hemisegmenten in alle embryo's om de consistentie te waarborgen. - Bereken het gemiddelde aantal kernen per DA1-spier voor elk embryo en gebruik deze gemiddelde waarde als één onafhankelijk datapunt. Voer de individuele datapunten per embryo in statistische analysesoftware voor analyse en plotting.
- Gebruik een tweezijdig Student's t-test om twee condities te vergelijken. Gebruik eenrichtings-ANOVA gevolgd door de Dunnett-test om drie of meer condities te vergelijken, en beschouw p < 0,05 als statistisch significant.
Resultaten
De FlyBase-genrapportpagina voor spook (spo) wordt als voorbeeld gepresenteerd om de selectie van een geschikt mutant allel te illustreren. spo is een van de "Halloween"-genen die enzymen coderen die betrokken zijn bij de biosynthese van steroïdhormonen21,22 en waarvan is aangetoond dat ze myoblastfusie bevorderen23. In de sectie "Alleles" van de FlyBase-genrapportpagina voor spo staan 12 spo mutant allelen vermeld in de literatuur, waarvan er vier zijn gedeponeerd bij BDSC (Figuur 2A) en gemakkelijk beschikbaar zijn. Als een gewenst allel niet beschikbaar is via BDSC, kan dit rechtstreeks worden aangevraagd bij de onderzoeksgroep die de mutantlijn oorspronkelijk heeft gerapporteerd.
Van de vier beschikbare mutante allelen van BDSC draagt spo1 een missense-mutatie (G481E), terwijl spoMI06810 een MiMIC-insertie bevat binnen de coderende sequentie die resulteert in een frameshift bij aminozuur Y341 (Figuur 2B,C). Omdat het Spo-eiwit uit 543 aminozuren bestaat, wordt voorspeld dat spoMI06810 (Y341fs) een getrunceerd eiwit produceert dat ongeveer 40% van zijn totale lengte mist en daarom waarschijnlijk een sterk loss-of-function-allel vertegenwoordigt. Daarom geniet spoMI06810 de voorkeur boven spo1 voor de fenotypische analyse van myoblastfusie.
Myoblastfusie begint tijdens embryonaal stadium 12 (7,3−9,3 u na het leggen van de eitjes [AEL]) en is grotendeels voltooid aan het einde van stadium 15 (11,3−13,3 u AEL)24. Fusie-fenotypen worden daarom doorgaans beoordeeld in embryo's in het late stadium 15, wanneer het patroon van de somatische spieren is gevormd en de meeste fusiegebeurtenissen zijn voltooid.
Embryo's in stadium 15 kunnen worden geïdentificeerd aan de hand van twee prominente morfologische kenmerken: de voltooiing van de dorsale sluiting en het verkrijgen van de kenmerkende hartvormige morfologie van de middendarm (Figuur 3A–C)19. Embryo's in stadium 14 kunnen worden onderscheiden door de voortdurende involutie van de kop (Figuur 3A), terwijl embryo's in stadium 15 de kenmerkende hartvormige middendarm vertonen (Figuur 3B). Embryo's in stadium 16 kunnen worden geïdentificeerd aan de hand van de vernauwing van de middendarm en de vorming van vier kamers (gastrische caeca; Figuur 3C)19. Daarnaast is de expressie van het MHC-eiwit ondetecteerbaar in eerdere stadia, inclusief stadium 14, maar wordt deze robuust in stadium 15 en latere stadia (Figuur 3A–C).
In het late embryonale stadium 15 is de musculatuur van de lichaamswand volledig gevormd in wild-type (w1118) embryo's, en de meeste abdominale hemisegmenten vertonen een identiek, stereotiep spierpatroon in het laterale aanzicht (Figuur 3B). Dit stereotype spierpatroon kan worden gevisualiseerd met behulp van konijn- of rat anti-MHC-antilichamen (Figuur 3B,D). In contrast hiermee zijn er minder spiervezels zichtbaar wanneer embryo's in dorsale of ventrale oriëntatie worden afgebeeld (Figuur 3E,F). Daarom maakt het afbeelden van embryo's in de laterale oriëntatie de visualisatie van de gehele musculatuur van de lichaamswand mogelijk en vergemakkelijkt het de beoordeling van defecten in de myoblastfusie.
Om defecten in de myoblastenfusie te onderzoeken, wordt de musculatuur van de lichaamswand van homozygote mutante embryo's in laterale oriëntatie afgebeeld. Homozygote mutanten worden geïdentificeerd door de afwezigheid van een fluorescente balancer-marker, zoals GFP of YFP. Bijvoorbeeld, homozygote spo mutante embryo's afkomstig van spoMI06810/TM3, twi>UAS-GFP ouders zijn GFP-negatief, terwijl broeder-embryo's die de balancer dragen GFP tot expressie brengen in het mesoderm (Figuur 4B,C). In vergelijking met wild-type en GFP-positieve broeder-embryo's vertonen spo mutante embryo's een defect in de myoblastenfusie, gekenmerkt door de aanwezigheid van talrijke niet-gefuseerde fusie-competente myoblasten (FCM's; Figuur 4A–C).
Opmerkelijk is dat er meer niet-gefuseerde FCM's worden waargenomen in diepere optische secties (Z3 en Z4) dan in de oppervlakkige sectie (Z1) van spo-mutante embryo's (Figuur 4B). Deze distributie weerspiegelt de ruimtelijke organisatie van founder-cellen en FCM's tijdens de embryonale myoblastfusie. Founder-cellen en groeiende myotubes bevinden zich primair in de oppervlakkige laag van het mesoderm, terwijl FCM's in diepere lagen verblijven voordat ze migreren naar en fuseren met groeiende myotubes25. Bijgevolg zijn niet-gefuseerde myoblasten talrijker in diepere confocale secties, met name in embryo's met partiële fusiedefecten. De acquisitie van z-stacks die de volledige diepte van de musculatuur van de lichaamswand beslaan, is daarom noodzakelijk om te voorkomen dat de ernst van het fusiefenotype wordt onderschat.
Hoewel visualisatie van de algehele musculatuur van de lichaamswand in laterale oriëntatie een fenotypische beoordeling van defecten in de myoblastfusie mogelijk maakt, kan een kwantitatieve analyse worden uitgevoerd door de DA1-spier in dorsale oriëntatie te visualiseren. In wildtype-embryo's is de DA1-spier volledig gevormd en bevat deze 13,03 ± 0,60 Eve-positieve kernen (Figuur 5A,C). In spo-mutante embryo's is het aantal Eve-positieve kernen in de DA1-spier gereduceerd tot 8,16 ± 0,54 (Figuur 5B,C), wat duidt op een fusiedefect waarbij minder FCM's fuseren met de DA1-stichtingscel. Voor een consistente en reproduceerbare kwantificering worden de Eve-positieve kernen in de DA1-spieren van dezelfde abdominale hemisegmenten (A2−A5) geteld en per embryo gemiddeld, waarbij het gemiddelde van elk embryo als één datapunt voor de statistische analyse wordt gebruikt (Figuur 5C).
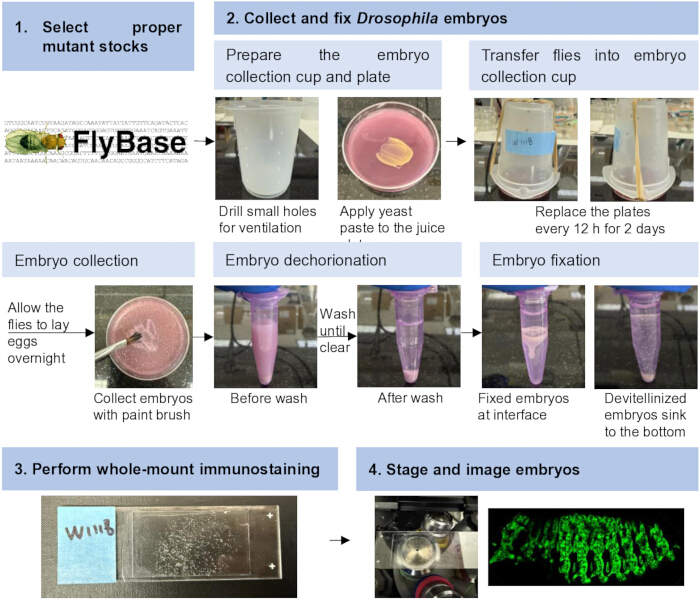
Figuur 1: Workflow voor genetische, fenotypische en kwantitatieve analyse van myoblastfusie in Drosophila-embryo's. De workflow omvat de selectie van geschikte mutantstammen, embryocollectie en fixatie, whole-mount immunokleuring en montage, en het stadiëren en beelden van de embryo's. Klik hier om een grotere versie van deze figuur te bekijken.
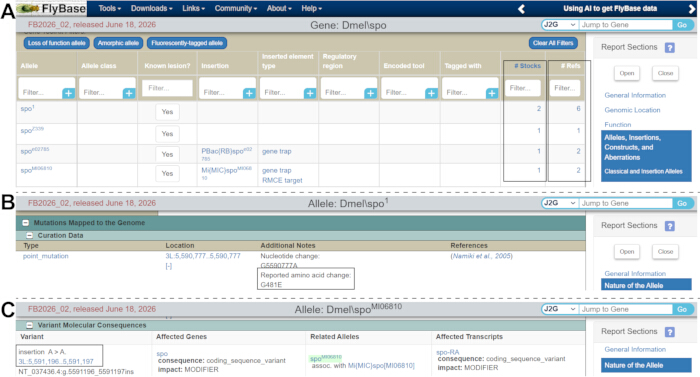
Figuur 2: Selectie van mutante allelen met behulp van FlyBase. (A) Screenshot van de gene report-pagina van FlyBase voor spo. Mutante allelen staan vermeld in de sectie “Alleles”. De kolom Stocks (omkaderd) geeft het aantal beschikbare stammen aan, terwijl de kolom Refs (omkaderd) het aantal bijbehorende referenties aangeeft. (B,C) Moleculaire laesies van twee representatieve spo mutante allelen, spo1 (B) en spoMI06810 (C). Klik hier om een grotere versie van deze figuur te bekijken.
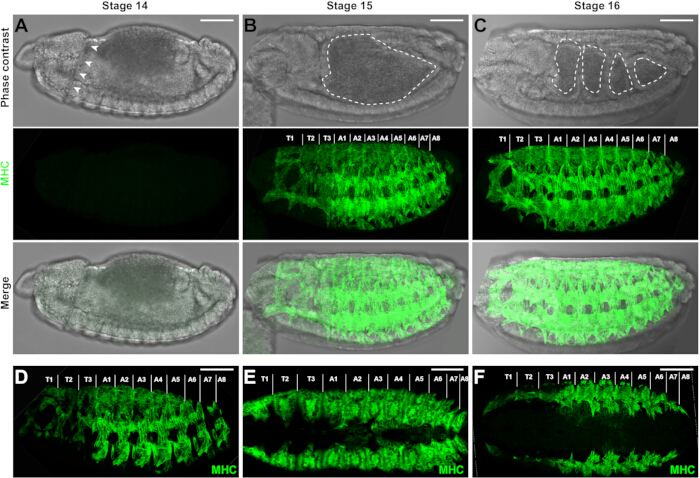
Figuur 3: Embryonale musculatuur van Drosophila. (A–C) Fasecontrastbeelden, MHC-gekleurde z-projectie confocale beelden en samengevoegde beelden van wild-type (WT) embryo's in de stadia 14, 15, 16. De involutie van de kop is duidelijk zichtbaar (pijlpuntjes) in het embryo in stadium 14 (A). Een karakteristieke hartvormige middendarm (stippellijn) is waargenomen in het embryo in stadium 15 (B), terwijl de middendarm is onderverdeeld in vier verschillende kamers (stippellijnen) in het embryo in stadium 16 (C). De expressie van het MHC-eiwit is ondetecteerbaar in stadium 14 (A), maar wordt robuust in de stadia 15 (B) en 16 (C). Embryo's worden getoond in lateraal aanzicht, met anterieur links, posterieur rechts, de dorsale zijde boven en de ventrale zijde onder. Thoracale (T1–T3) en abdominale (A1–A8) hemisegmenten zijn aangegeven. (D) Confocale afbeelding van het lateraal aanzicht van de musculatuur in een WT-embryo in stadium 15, gevisualiseerd met een rat anti-MHC antilichaam. Een konijn anti-MHC antilichaam werd gebruikt voor de beelden in de overige panelen. (E,F) Z-projectie confocale beelden van het dorsale (E) en ventrale (F) aanzicht van de musculatuur in WT-embryo's in stadium 15. Er zijn minder spiervezels zichtbaar in de dorsale en ventrale oriëntaties dan in de laterale oriëntatie. Schaalbalk = 50 µm. Klik hier om een grotere versie van deze figuur te bekijken.
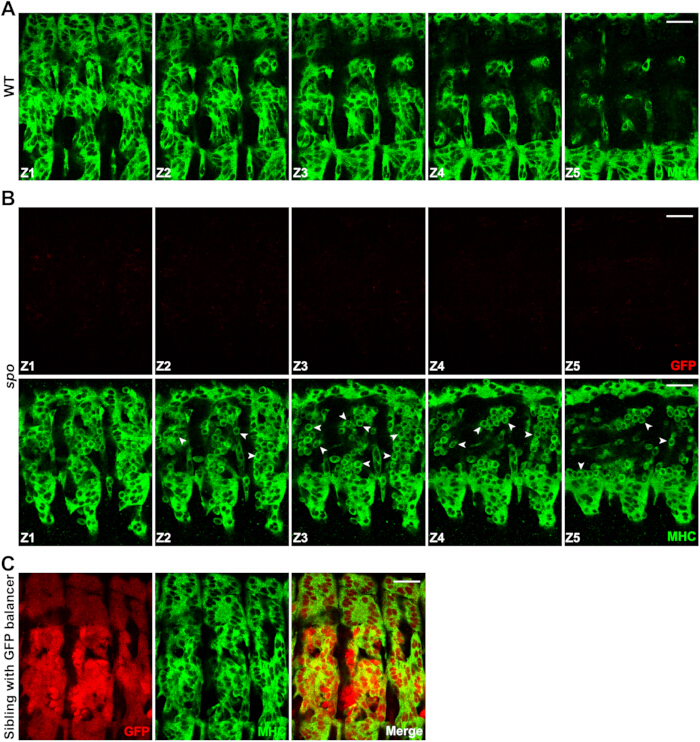
Figuur 4: Vergelijking van de musculatuur tussen wild-type en spo mutant-embryo's. (A) Representatieve confocale z-stack beelden van de musculatuur van de lichaamswand in het zijaanzicht van een laat stadium 15 WT-embryo. De fusie van myoblasten is voltooid en er worden geen ongefuseerde myoblasten waargenomen. MHC is in het groen weergegeven. (B) Representatieve confocale z-stack beelden van de musculatuur van de lichaamswand in het zijaanzicht van een GFP-negatief spo mutant-embryo, verkregen van spoMI06810/TM3, twi>UAS-GFP ouders. De afwezigheid van GFP-fluorescentie (rood) geeft aan dat het embryo homozygoot is voor spoMI06810. Pijlpuntjes geven representatieve ongefuseerde myoblasten aan. In de diepere optische secties (Z3 en Z4) worden meer ongefuseerde myoblasten waargenomen dan nabij het embryo-oppervlak (Z1). MHC is in het groen weergegeven. (C) Confocale beelden van het zijaanzicht van een GFP-positief sibling-embryo, verkregen van dezelfde spoMI06810/TM3, twi>UAS-GFP ouders. Mesodermale GFP-expressie (rood), aangestuurd door het twi>UAS-GFP transgen op de TM3 balancer, onderscheidt GFP-positieve sibling-embryo's van GFP-negatieve homozygote spo mutant-embryo's. MHC is in het groen weergegeven. Schaalbalk = 20 µm. Klik hier om een grotere versie van deze figuur te bekijken.
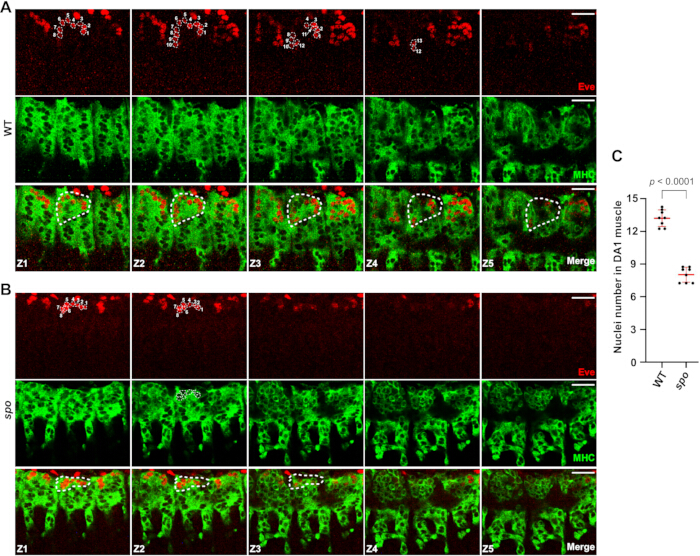
Figuur 5: Representatieve confocale z-stack beelden en kwantificatie van DA1-spieren. (A,B) Confocale z-stack beelden van de dorsale weergave van late stadium 15 WT (A) en spo-mutante (B) embryo's gelabeld met anti-MHC (groen) en anti-Eve (rood). Confocale z-stacks zijn verkregen over de gehele diepte van de Eve-positieve DA1-spier om alle kernen binnen de spier vast te leggen. Eve-positieve kernen verschijnen als niet-gekleurde regio's binnen het MHC-signaal. Een representatieve DA1-spier is omlijnd met een stippellijn, en de Eve-positieve kernen binnen de DA1-spier zijn genummerd. (C) Kwantificatie van Eve-positieve kernen in de DA1-spieren van WT- en spo-mutante embryo's. Acht embryo's werden gekwantificeerd voor elk genotype. Elk datapunt vertegenwoordigt het gemiddelde aantal kernen in de DA1-spieren van hemisegmenten A2–A5 van één embryo. Gegevens worden weergegeven als gemiddelde ± SD (rode balken). Statistische significantie werd bepaald met behulp van een tweezijdige Student's t-test; p < 0,0001. Schaalbalk = 20 µm. Klik hier om een grotere versie van deze figuur te bekijken.
| BDSC-voorraadnummer | Genotype | Doel |
| 6873 | N1/FM7c, twi>UAS-GFP | Mesodermale GFP-expressie maakt de identificatie van GFP-negatieve, homozygote mutante embryo's mogelijk. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | Dr.Mio/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | Kop-specifieke YFP-expressie maakt identificatie van YFP-negatieve, homozygote mutante embryo's mogelijk. |
| 23230 | SNASco/ CyO, Dfd-YFP | |
| 23232 | Dr.1/TM6B, Dfd-YFP |
Tabel 1: Drosophila-stammen met een fluorescent markergen op balancer-chromosomen.
Discussie
Het hier beschreven protocol biedt een uitgebreide workflow voor de genetische, fenotypische en kwantitatieve analyse van myoblastfusie in Drosophila-embryo's. Belangrijk is dat de waarneming van een fusiedefect in een mutante lijn aanvullende genetische analyses vereist om te valideren dat het betreffende gen verantwoordelijk is voor het waargenomen fenotype. Spontane achtergrondmutaties kunnen zich ophopen tijdens het onderhoud van de stam en bijdragen aan mutante fenotypes26. Eén benadering is om trans-heterozygote embryo's te onderzoeken, gegenereerd door het mutante allel te kruisen met een chromosomale deficiëntie die het betreffende gen verwijdert. De waarneming van hetzelfde fusiedefect in deze embryo's zou de conclusie ondersteunen dat het fenotype voortkomt uit de disruptie van het kandidaatgen en niet uit ongerelateerde achtergrondmutaties. Genetische rescue-experimenten, zoals die met het GAL4/UAS-systeem27, kunnen verdere validatie bieden door te bepalen of expressie van het betreffende gen de normale myoblastfusie in mutante embryo's herstelt.
Hoewel het Drosophila Gene Disruption Project een publiek toegankelijke collectie mutante lijnen heeft gegenereerd die ongeveer 75% van de Drosophila-genen beslaat28, zijn geschikte mutante allelen, en met name sterke loss-of-function allelen, mogelijk niet beschikbaar voor elk gen van belang. In dergelijke gevallen kunnen chromosomale deficiëntielijnen dienen als een alternatieve bron om te beoordelen of een kandidaatgen betrokken is bij de fusie van myoblasten. Momenteel beschikbare collecties van deficiëntielijnen dekken meer dan 98% van het euchromatische Drosophila-genoom29, waardoor loss-of-function analyse van bijna alle genen mogelijk is. Chromosomale deficiënties kunnen worden geïdentificeerd onder de sectie “Aberrations” van het FlyBase-genrapport. Omdat elke deficiëntielijn echter meerdere genen verwijdert, kan een defect in de myoblastenfusie dat wordt waargenomen in homozygote deficiënte embryo's niet worden toegeschreven aan een specifiek gen binnen de verwijderde chromosomale regio zonder verdere validatie. Daarom moet er, wanneer er met behulp van een deficiëntielijn een fusiedefect wordt vastgesteld, een single-gene knockout mutant worden gegenereerd en geanalyseerd om de specifieke rol van het kandidaatgen bij de myoblastenfusie te bepalen.
Hoewel dit protocol zich richt op de fenotypische analyse van mutanten voor individuele genen van belang, kan de workflow ook worden toegepast op grootschalige deficiëntiescreenings voor nieuwe regulatoren van myoblastfusie met behulp van beschikbare deficiëntiecollecties29. Bovendien maakt het vervangen van het MHC-antilichaam door antilichamen tegen specifieke regulatoren van myoblastfusie het mogelijk om de algemene workflow, inclusief embryonale collectie, fixatie en immunokleuring, aan te passen voor het onderzoeken van de eiwitlokalisatie ten opzichte van de fusogene synaps. Ten slotte kunnen de hier beschreven methoden worden aangepast voor fenotypische analyse van andere embryonale ontwikkelingsprocessen buiten de myoblastfusie, waardoor de bruikbaarheid van het protocol wordt uitgebreid naar een breder scala aan ontwikkelingsstudies.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende belangen hebben. ChatGPT 5 (OpenAI) is uitsluitend gebruikt voor grammaticale en taalkundige redactie. Het is niet gebruikt voor het genereren van wetenschappelijke inhoud, gegevens, analyses of figuren.
Dankbetuigingen
Wij danken het Bloomington stock center voor de vliegenstammen. Dit werk werd ondersteund door NIH-beurzen R01AR085116 en R35GM136316 aan E.H.C.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agar | Fisher | BP1423-500 | Agarpoeder; gebruikt voor het bereiden van vast kweekmedium. |
| Bovien serumalbumine (BSA) | Sigma | A7906 | Bovien serumalbumine; gebruikt voor de bereiding van blokkeringsoplossingen tijdens immunostaining. |
| Confocale microscoop | Leica | SP8 | Laser-scanning confocale microscoop gebruikt voor fluorescentie-imaging van gekleurde preparaten. |
| Confocale microscoop | Nikon | A1R | Laser-scanning confocale microscoop gebruikt voor fluorescentie-imaging van gekleurde preparaten. |
| Dekglas | Fisher | 12-545-CP | Glazen dekglas, 40 mm × 22 mm; gebruikt voor het monteren van preparaten voor microscopie. |
| Kweekschaal | Corning | 430166 | Kweekschaal van 60 mm; gebruikt voor het hanteren, kweken of verwerken van biologische preparaten. |
| Droge gist | Sigma | YSC2 | Droge gist gebruikt als voedingsbron voor organismekweken. |
| Formaldehyde, 37% | Fisher | BP531-500 | Geconcentreerde formaldehyde-oplossing gebruikt voor de bereiding van fixeermiddel. WAARSCHUWING: Toxisch en vluchtig; hanteer met geschikte persoonlijke beschermingsmiddelen en in een chemische zuurkast. |
| Geit anti-muis IgG 647 | ThermoFisher | A-21236 | Fluorofoor-geconjugeerd geit anti-muis IgG secundair antilichaam voor fluorescentiedetectie van muis primaire antilichamen. |
| Geit anti-konijn IgG 568 | ThermoFisher | A-11036 | Fluorofoor-geconjugeerd geit anti-konijn IgG secundair antilichaam voor fluorescentiedetectie van konijn primaire antilichamen. |
| Heptaan | Fisher | H350 | Organisch oplosmiddel gebruikt tijdens fixatie en permeabilisatie van preparaten. WAARSCHUWING: Ontvlambaar en schadelijk; hanteer in een chemische zuurkast met geschikte persoonlijke beschermingsmiddelen. |
| Incubator | Percival | I36LL | Temperatuurgecontroleerde incubator gebruikt voor het in stand houden van culturen of experimentele organismen onder gedefinieerde omgevingsomstandigheden. |
| Methanol | Pharmco | 339000ACSBK01 | Methanol gebruikt tijdens fixatie, dehydratatie of permeabilisatie van preparaten. WAARSCHUWING: Ontvlambaar en toxisch; hanteer in een chemische zuurkast met geschikte persoonlijke beschermingsmiddelen. |
| Microscoopglaasjes | Fisher | 12-550-15 | Glazen microscoopglaasjes gebruikt voor het monteren van preparaten voor imaging. |
| Montagemedium | ThermoFisher | P36980 | Antifade montagemedium gebruikt om fluorescentie te behouden en gekleurde preparaten te monteren voor microscopie. |
| Muis anti-Even skipped (Eve) | DSHB | 2B8 | Muis monoklonaal primair antilichaam dat het Even skipped-eiwit herkent; gebruikt voor immunofluorescentiekleuring. |
| Nutator | Corning | 6720 | Nutatieve mengmachine voor op het laboratoriumblad, gebruikt voor zachte en continue agitatie van monsters tijdens was-, blokkerings- of antilichaam-incubatiestappen. |
| Plastic bekerglas | Sigma | Z245380 | Het plastic bekerglas van 100 mL wordt gebruikt om een vliegverzamelbeker te maken. |
| Konijn anti-Myosine zware keten (MHC) | — | — | Konijn primair antilichaam dat de Drosophila myosine zware keten herkent; bron van het antilichaam beschreven door Kiehart and Feghali (1986), Journal of Cell Biology 103, 1517–1525. |
| Rat anti-Myosine zware keten (MHC) | DSHB | BB7/21.14 | Rat monoklonaal primair antilichaam dat de myosine zware keten herkent; gebruikt voor immunofluorescentiekleuring. |
| Natriumazide (NaN3) | Sigma | S8032 | Natriumazide gebruikt als conserveermiddel in antilichaam- of bufferoplossingen. WAARSCHUWING: Zeer toxisch; vermijd inname, inademing, huidcontact en contact met metalen. |
| Triton X-100 | Fisher | AAA16046AP | Niet-ionisch detergent gebruikt voor membraanpermeabilisatie en de bereiding van was- of blokkeringsbuffers. |
| 10× fosfaatgebufferde zoutoplossing (PBS) | Fisher | BP3994 | Geconcentreerde fosfaatgebufferde zoutoplossing gebruikt om 1× PBS te bereiden voor wassen, verdunning en bufferbereiding. |
Referenties
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar