Elektroacupunctuur vermindert chronisch hartfalen en pathologische cardiale remodellering door de neuronale activiteit in de nucleus tractus solitarius te herstellen. Deze therapeutische centrale neuromodulatie is geassocieerd met de upregulatie van de kandidaat-biologische doelwit-transcriptiefactor YY1.
Onderzoeksartikel
Centrale mechanismen van elektroacupunctuur bij chronisch hartfalen: inzichten uit kwantitatieve proteomica van de nucleus tractus solitarius
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Chronisch hartfalen (CHF) is een belangrijke wereldwijde oorzaak van cardiovasculaire mortaliteit, gedreven door autonome dysregulatie en sympathische overactivatie. Hoewel elektroacupunctuur (EA) cardioprotectieve effecten uitoefent via centrale neuromodulatie, blijven de specifieke moleculaire doelwitten binnen de nucleus tractus solitarius (NTS), een belangrijk centrum voor autonome integratie, onduidelijk. Om dit te onderzoeken, werd een CHF-ratmodel tot stand gebracht via ligatie van de linker anterior descending kransslagader. De ratten ontvingen zeven opeenvolgende dagen EA op bilaterale HT7-acupunctuurpunten. De hartfunctie en myocardiale schade werden geëvalueerd met echocardiografie, enzyme-linked immunosorbent assays en histologische kleuring. De neurale activiteit in de NTS werd beoordeeld via c-Fos-immunofluorescentie en in vivo elektrofysiologie. Moleculaire mechanismen werden onderzocht met behulp van kwantitatieve proteomics en bio-informatica, waarbij kern-doelwitten werden geverifieerd via kwantitatieve PCR en Western blotting. EA verbeterde de ejectiefractie van de linker ventrikel, verminderde myocardiale fibrose en verlaagde serummarkers voor hartfalen. Tegelijkertijd herstelde EA de spontane neuronale vuursnelheden, lokale veldpotentiaalenergie en c-Fos-expressie binnen de NTS. Proteomische profilering identificeerde 85 kern-differentieel tot expressie gebrachte eiwitten die door EA werden gemoduleerd. Functionele stratificatie van de 58 downgereguleerde en 27 upgereguleerde eiwitten onthulde hun respectievelijke participatie in de organisatie van de extracellulaire matrix en ATP-afhankelijk chromatineremodellering. De stapsgewijze screeningsaanpak, waarin topologische netwerkmapping, pathway-verrijking en weefselexpressie-profilering werden geïntegreerd, identificeerde de transcriptiefactor YY1 als een zeer responsief kandidaat-doelwit. In vivo validatie bevestigde dat EA de expressie van YY1 upreguleerde. Over het algemeen verzachtte EA pathologische cardiale remodellering en herstelde het de neuronale activiteit in de NTS. YY1 werd geïdentificeerd als een kandidaat-doelwit geassocieerd met deze centrale neuromodulatie, wat moleculaire inzichten biedt in de mechanismen die ten grond liggen aan de effecten van EA bij CHF.
Inleiding
Chronisch hartfalen (CHF) wordt algemeen erkend als het eindstadium van diverse cardiovasculaire pathologieën en blijft wereldwijd een leidende oorzaak van cardiovasculaire mortaliteit, wat een enorme belasting vormt voor de wereldwijde gezondheidszorgsystemen1. De pathofysiologische progressie van CHF wordt primair gedreven door dysregulatie van het autonome zenuwstelsel, gekenmerkt door aanhoudende sympathische overactivatie en parasympathische terugtrekking2. Het herstellen van de autonome homeostase wordt daarom beschouwd als een cruciale therapeutische strategie voor het verminderen van pathologische cardiale remodellering en het verbeteren van de globale hartfunctie3.
Elektroacupunctuur (EA) vormt een moderne ontwikkeling van traditionele acupunctuur en heeft brede erkenning gekregen voor de klinische werkzaamheid bij de behandeling van cardiovasculaire aandoeningen4. Uit uitgebreid onderzoek, waaronder onze eerdere studies, is gebleken dat deze therapie aanzienlijke cardioprotectieve effecten uitoefent, primair door het moduleren van het centrale autonome zenuwstelsel. Specifiek hebben we aangetoond dat EA op het Shenmen (HT7) acupunt de overmatige sympathische outflow effectief kan onderdrukken en de sympathovagale balans kan herstellen via gerichte centrale neurale mechanismen, waardoor de pathologische progressie van CHF wordt verlicht5,6,7,8.
De nucleus tractus solitarius (NTS), gelegen in de medulla oblongata, is een essentieel integratiecentrum voor het handhaven van de centrale autonome balans. Het fungeert als het primaire relaisstation voor cardiovasculaire reflexen en perifere sensorische input, waarbij het het dynamische evenwicht tussen de sympathische en vagale tonus reguleert9. Ondanks het anatomische en functionele belang blijven de specifieke moleculaire veranderingen binnen dit cruciale centrum van de hersenstam tijdens EA-behandeling voor CHF grotendeels onbekend. Geavanceerde high-throughput proteomics in combinatie met bioinformatica-analyse biedt een krachtig instrument om onbevooroordeeld de complexe eiwitnetwerken en signaleringscascades in kaart te brengen die betrokken zijn bij dit centrale neurobiologische proces10.
Daarom was deze studie erop gericht de effecten van EA op het HT7-acupunt op de hartfunctie en de neuronale activiteit van de NTS bij CHF te onderzoeken en de moleculaire veranderingen binnen de NTS die geassocieerd zijn met de EA-behandeling te karakteriseren. Door in vivo elektrofysiologie te integreren met kwantitatieve proteomica, bio-informatica-analyse en moleculaire validatie, poogde deze studie kandidaat-moleculaire targets te identificeren die geassocieerd zijn met EA-gemedieerde centrale neuromodulatie bij CHF.
Protocol
Alle methoden met gewervelde dieren zijn uitgevoerd in overeenstemming met de Animal Care and Use Committee van de Anhui University of Chinese Medicine, onder goedkeuringsnummer AHUCM-rats-2024145. De gebruikte reagentia en apparatuur staan vermeld in de Tabel met materialen.
Voorbereiding en groepering van de dieren
Voor alle experimenten werden schone mannelijke Sprague-Dawley ratten gebruikt, in de leeftijd van 8 weken en met een gewicht van 20 tot 250 g. De dieren werden gehuisvest in een gecontroleerde omgeving bij een temperatuur van 24 ± 2 °C en een relatieve vochtigheid van 50%–60%, onder een standaard licht-donkercyclus van 12 u. Alle ratten hadden ad libitum toegang tot voedsel en water en ondergingen een acclimatisatieperiode van 1 week voorafgaand aan de experimentele procedures.
Voor Experiment I, waarin de functionele en centrale neurale activiteit werd geëvalueerd, werden 24 ratten willekeurig verdeeld over vier groepen van zes dieren per groep: de Sham-, CHF-, EA- en Sham EA-groepen (Figuur 1A). Voor Experiment II, waarin moleculaire targets en high-throughput proteomics werden geëvalueerd, werden 36 ratten willekeurig toegewezen aan drie groepen van 12 dieren elk: Sham, CHF en EA. De steekproefgroottes werden bepaald op basis van de Resource Equation Method om te voldoen aan de ethische richtlijnen voor dierenwelzijn en het reductieprincipe, terwijl de statistische validiteit werd gewaarborgd (E waarde = 20 voor Experiment I; E waarde = 3 voor Experiment II)1. Deze strategie voor de steekproefgrootte was consistent met de protocollen die werden gebruikt in eerdere studies naar EA bij cardiovasculaire aandoeningen8,12. Post hoc power-analyses gaven aan dat een statistische power van meer dan 0,90 de adequaatheid van deze toewijzing ondersteunde. De Sham EA-groep werd uitgesloten van Experiment II omdat voorlopige functionele evaluaties wezen op een gebrek aan therapeutische werkzaamheid.
Vestiging van het model voor chronisch hartfalen
De ratten werden 12 h vóór de operatie gevast en hadden vrije toegang tot water. De anesthesie werd geïnduceerd met 3% isofluraan en gedurende de procedure gehandhaafd op 1,5%–2% isofluraan. Aangezien isofluraan een vluchtig anestheticum is, werd gebruikgemaakt van een geschikt afzuigingssysteem en werd de procedure uitgevoerd in een goed geventileerde ruimte om beroepsmatige blootstelling te voorkomen.
Standaard ledemaat-elektrocardiogrammen (ECG) werden continu geregistreerd. Er werd een linker thoracotomie uitgevoerd om het hart bloot te leggen, waarna de linker anterior descenderende (LAD) kransslagader permanent werd afgebonden 2 tot 3 mm onder de linker aurikel met een 7-0 niet-resorbeerbare hechtdraad13. Succesvolle ischemie werd bevestigd door het identificeren van een ST-segmentelevatie van ten minste 0,2 mV op het ECG (Figuur 1B). Om infecties te voorkomen en pijn te verlichten, werden postoperatief gedurende drie opeenvolgende dagen dagelijks intraperitoneale injecties van penicilline (20.0 U/mL) en subcutane injecties van carprofen (5 mg/kg) toegediend.
Voor de sham-controlegroep werd een identieke thoracotomieprocedure uitgevoerd, gevolgd door oppervlakkige naaldinsertie op de overeenkomstige anatomische locatie zonder ligatie van de LAD-kransslagader. Er werd identieke postoperatieve zorg en monitoring geboden. De echocardiografische beoordeling werd uitgevoerd 4 weken na de operatie. Het model werd als succesvol gevestigd beschouwd wanneer de linkerventrikelejectiefractie (LVEF) ≤45% was8 (Figuur 1C). Dieren die niet aan deze criteria voldeden, preoperatieve baseline-ECG-afwijkingen vertoonden of vroegtijdig stierven, werden systematisch uitgesloten. Aanvullende ratten werden onderworpen aan identieke chirurgische protocollen om uitgesloten dieren onmiddellijk te vervangen en een uniforme steekproefgrootte te handhaven.
Electroacupunctuurinterventie
In overeenstemming met gevestigde vergelijkende anatomische protocollen14 werden de bilaterale HT7-acupunctuurpunten op de Hand-Shaoyin Hartmeridiaan gelokaliseerd aan de palmaire zijde van de transversale polsplooi nabij de ulnaire rand, direct in de radiale depressie van de flexor carpi ulnaris pees. Het lokale gebied werd routinematig gedesinfecteerd. Twee steriele wegwerpacupunctuurnaalden (0.25 x 25 mm) werden loodrecht in elk HT7-acupunctuurpuntgebied ingebracht tot een doeldiepte van 2 tot 3 mm en met een tussenruimte van ongeveer 1 mm geplaatst om strikt binnen hetzelfde acupunctuurpuntgebied te blijven. Voor de videodocumentatie werd de inbrengdiepte visueel geverifieerd door de naaldschacht vóór inbreng op de 3 mm positie te markeren.
Eén naald werd bevestigd aan de kathodische terminal van het EA-apparaat en de aangrenzende naald werd bevestigd aan de anodische terminal om een gelokaliseerd elektrisch circuit te vormen (Figuur 1D). Een continue elektrische golfvorm werd toegediend met een constante frequentie van 2 Hz en een intensiteit van 1 mA, gekalibreerd om waarneembare maar milde spiertrekkingen in de betreffende ledematen op te wekken, gedurende 30 min per dag over zeven opeenvolgende dagen onder isofluraan-anesthesie.
Een minimaal naaldprotocol werd toegepast bij de cohort met de sham-interventie om rekening te houden met aspecifieke somatosensorische reacties15,16. Steriele naalden werden oppervlakkig ingebracht tot een diepte van 0,5–1 mm op identieke HT7-locaties zonder elektrische leidingen aan te sluiten of stroom toe te dienen, overeenkomend met de anesthesieduur van 30 min. De baseline Sham- en CHF-controlegroepen werden blootgesteld aan een identieke dagelijkse isofluraanblootstelling (1,5%–2% isofluraan gedurende 30 min per dag over zeven opeenvolgende dagen) zonder naaldinsertie of elektrische stimulatie. Deze procedure standaardiseerde de anesthesie-baseline over alle experimentele cohorten en controleerde voor potentiële neurosuppressieve of cardioprotectieve artefacten geïnduceerd door repetitieve vluchtige anesthesie.
Echocardiografische beoordeling en euthanasie van dieren
Na de interventie werden de ratten geanestheseerd met 3% isofluraan voor de inductie en 1% voor het onderhoud, waarna ze in rugligging op het dierenplatform werden gefixeerd. De borstharen werden zorgvuldig verwijderd met een depilatoir middel, en een akoppelingsmiddel werd gelijkmatig aangebracht op de blootgestelde huid. De hartfunctie werd geëvalueerd met een digitaal echographiesysteem uitgerust met een 18 MHz echo-transducer. M-mode echocardiografie werd geregistreerd om de LVEF en de fractionele verkorting van de linker ventrikel (LVFS) te meten, waarbij de gemiddelde waarde van 3 technische replica's werd berekend voor de uiteindelijke analyse.
Bloed werd afgenomen uit de abdominale aorta terwijl de dieren onder anesthesie bleven om subsequent bloedverlies en coagulatie te voorkomen en om de monsterkwaliteit voor de enzyme-linked immunosorbent assay (ELISA) te waarborgen. De ratten werden onmiddellijk geëuthanaseerd door continue inductie met 5% isofluraan tot aan het stoppen van de hartslag en ademhaling.
Weefselmonsters werden vervolgens toegewezen volgens het experimentele ontwerp. Voor Experiment I werden 3 ratten per groep gebruikt om het hart te oogsten voor hematoxyline en eosine (HE)/Masson-kleuring en de hersenen voor c-Fos-immunofluorescentie. De overige drie ratten werden toegewezen voor in vivo elektrofysiologie. Voor Experiment II werden bilaterale NTS-weefsels geëxtraheerd van zes ratten per groep voor proteomics. Weefsels van de resterende zes ratten werden geoogst voor moleculaire verificatie: drie werden gebruikt voor Western blotting en qPCR, en drie werden uitsluitend gebruikt voor qPCR.
Enzyme-linked immunosorbent assay
De verzamelde bloedmonsters kregen de tijd om natuurlijk te stollen bij 4 °C gedurende 10–20 min. De monsters werden gecentrifugeerd bij 1.0 x g gedurende 15 min bij 4 °C om het serum te scheiden, waarna de supernatanten werden verzameld. Wanneer de analyse niet onmiddellijk werd uitgevoerd, werden de serummonsters bewaard bij −80 °C tot gebruik. Serumconcentraties van N-terminaal pro-brain natriuretisch peptide (NT-proBNP) en cardiaal troponine T (cTnT) werden gekwantificeerd met specifieke ELISA-kits volgens de standaardinstructies. De absorbentiewaarden werden gemeten en de biomarkerniveaus werden berekend op basis van standaardcurves.
Histologische en immunofluorescentiekleuring
Oogsthartweefsels werden gespoeld in een vooraf gekoelde 0,9% natriumchlorideoplossing, gesneden op 5 mm boven de apex en ingebed in paraffine. De weefselcoupes werden gedeparaffineerd en gehydrateerd. HE-kleuring werd uitgevoerd door hematoxyline gedurende 10 min aan te brengen, gevolgd door tegenkleuring met eosine gedurende 2,5 min. Masson-kleuring werd uitgevoerd door hematoxyline gedurende 60 s en Masson's trichroom gedurende 30–60 s aan te brengen. De coupes werden gedifferentieerd in 6%–8% fosforzuur en tegengekleurd met lichtgroen gedurende 5 min. De collageenvolumefractie (CVF) werd gekwantificeerd om myocardiale fibrose te evalueren.
De geoogste hersenweefsels werden gefixeerd in 4% paraformaldehyde, gedehydrateerd in oplossingen met een toenemende sucroseconcentratie en gesneden met een dikte van 30 µm. Omdat paraformaldehyde toxisch is en wordt beschouwd als een vermoedelijk carcinogeen, werd hiermee gewerkt in een chemische zuurkast onder gebruik van passende persoonlijke beschermingsmiddelen. De coupes werden geblokkeerd met een buffer die 0,5% Triton X-10 en 3% runderseerumeiwit (BSA) bevatte, en vervolgens gedurende de nacht bij 4 °C geïncubeerd met een primair antilichaam tegen c-Fos. De coupes werden daarna gewassen met fosfaatgebufferde zoutoplossing (PBS) en gedurende 2 u bij kamertemperatuur in het donker geïncubeerd met de overeenkomstige secundaire antilichamen. De coupes werden gemonteerd met een fluorescentie-quenching-oplossing die 4',6-diamidino-2-phenylindole (DAPI) bevat, waarna de c-Fos-positieve neuronen werden afgebeeld.
In vivo elektrofysiologie
Ratten werden geanestheseerd met isofluraan bij 3% voor inductie en 1% voor instandhouding en gefixeerd in een stereotaxisch hersenapparaat. De hoofdhuid werd geschoren en gedesinfecteerd. Er werd een midline-incisie gemaakt om het bregma bloot te leggen, waarna de dura mater werd verwijderd. Er werd nauwkeurig een schedelgat geboord boven de NTS-regio op basis van de volgende stereotaxische coördinaten ten opzichte van Bregma: anteroposterieur (AP) ±12,6 mm, mediolateraal (ML) ±0,9–2,1 mm en dorsoventraal (DV) ±7,6–8,1 mm.
Na voltooiing van de elektrofysiologische registraties werd de exacte stereotaxische lokalisatie van de elektrodepunt geverifieerd. Een gelijkstroom van 1 mA werd gedurende 10 s kortstondig aangelegd op de registratie-elektrode om een kleine electrolytische laesie te creëren. Na het experiment werd de hersenstam in coupes gesneden en werd histologisch bevestigd dat het laesietraject anatomisch gelokaliseerd was binnen de NTS.
Een microelektrodenmatrix met acht kanalen (2 x 4) werd geïmplanteerd en met een gemotoriseerde micromanipulator langzaam naar de doelregio in de hersenen bewogen met een snelheid van 5 µm/s. Zodra er een stabiele neurale activiteit was vastgesteld, werden er gedurende 40 s continu opnames gemaakt. Een multichannel acquisitiesysteem werd gebruikt om neuronale spike-ontladingen (gefilterd op 150–8.0 Hz, bemonsteringssnelheid 40 kHz) en lokale veldpotentialen (LFP; gefilterd op 0,7–400 Hz, bemonsteringssnelheid 1 kHz) vast te leggen.
Spike-sorting software werd gebruikt om typische interferentiesignalen met een hoge amplitude en artefacten te elimineren via waveform-kruiscorrelatie. De daaropvolgende analyse van neurale signalen werd uitgevoerd met neural-analysis software. Neuronen werden alleen als actief geclassificeerd wanneer ze een spontane gemiddelde vuursnelheid >2 Hz vertoonden en een stabiele signaal-ruisverhouding >3:1 behielden. De drempelwaarde van 2 Hz werd gekozen op basis van de vastgestelde fysiologische kenmerken van autonome NTS-neuronen; hiermee werden voornamelijk stille cellen en laagfrequente respiratoir-ritmische bursts effectief uitgesloten, waardoor werd gewaarborgd dat de analyse zich richtte op tonisch actieve neuronen die de basale cardiovasculaire regulatie mediëren17,18,19,20. Op basis van deze criteria werden de gemiddelde neurale vuurfrequentie en spike-discharge raster plots gegenereerd. Energiespectrogrammen van de 2D LFP en 3D power spectral density (PSD) topografieën werden opgesteld om de kenmerken van de neurale oscillerende energie te beoordelen.
Na de opname werd de incisie gehecht en werden de ratten gemonitord totdat ze volledig waren hersteld van de anesthesie. Penicilline werd toegediend via een intraperitoneale injectie, en carprofen (5 mg/kg, s.c.) werd gedurende drie opeenvolgende dagen dagelijks toegediend.
Kwantitatieve proteomics-analyse via data-onafhankelijke acquisitie
Totaal eiwit werd geëxtraheerd met een lysisbuffer en gekwantificeerd via de bicinchoninezuurmethode. De eiwitten werden gedenatureerd, onderworpen aan reductieve alkylering en gedigesteerd met trypsine bij 37 °C gedurende 2 h. De resulterende peptiden werden ontzout met behulp van een C18-kolom, geconcentreerd bij 45 °C en改めて opgelost voor daaropvolgende massaspectrometrie-analyse.
Peptiden werden geladen op een trapkolom (5 µm C18, 30 µm x 5 mm) die geëquilibreerd was met 96% buffer A (0,1% mierenzuur in water). De peptiden werden gescheiden over een high-throughput ultra-high-performance vloeistofchromatografie-analytische kolom met behulp van een strikt geoptimaliseerde gradiënt van buffer A en buffer B (0,1% mierenzuur in 80% acetonitril).
Massaspectrometrie werd uitgevoerd in de positieve ionen data-independent acquisition (DIA) modus met een electrospray-spanning van 1,9 kV. Volledige massaspectrometer-scans werden verkregen over een massa-bereik van 380 tot 980 m/z met een resolutie van 240.00, een automatic gain control (AGC) target van 500% en een maximale injectietijd van 3 ms. MS/MS-spectra werden verkregen met een resolutie van 80.0 (AGC target: 50%; maximale injectietijd: 3 ms; RF-lensamplitude: 40%). Precursor-ionen werden gefragmenteerd middels higher-energy collisional dissociation met een isolatievenster van 2 Th en een genormaliseerde botsingsenergie van 25% bij een gedefinieerde cyclustijd van 0,6 s.
Ruwe massaspectrometriegegevens werden verwerkt met DIA-NN-software. Er werd een spectrale bibliotheek gegenereerd met behulp van het interne deep learning-algoritme, en de match-between-runs-functie werd toegepast voor kwantificering tegen de referentieproteoomdatabase van Rattus norvegicus, met trypsinevertering en maximaal 2 gemiste klievingen. De uiteindelijke kwantitatieve proteïnematrix werd gefilterd met een strikte drempelwaarde voor de false discovery rate van 1% op zowel precursor-ion- als proteïneniveau.
Bioinformatische analyse en hub-gen mining
Bio-informatica-analyses en datavisualisaties werden hoofdzakelijk uitgevoerd met de R-programmeeromgeving in combinatie met gespecialiseerde software voor netwerkvisualisatie. Om methodologische transparantie en reproduceerbaarheid te waarborgen, zijn alle aangepaste R-scripts die tijdens deze analyseprocessen zijn gebruikt, opgenomen in Aanvullend Bestand 1. De initiële kwaliteitscontrole van de gegevens en beoordelingen van de algemene distributie werden uitgevoerd met het ropls-pakket. Er werden overzichtsstatistieken voor proteïne-identificatie/kwantificatie samengesteld; er werd een partial least squares discriminant analyse (PLS-DA) uitgevoerd over de drie groepen; er werd een orthogonal partial least squares discriminant analyse (OPLS-DA) uitgevoerd voor paarsgewijze vergelijkingen; en er werden correlatie-heatmaps van monsters gegenereerd met het pheatmap-pakket.
Centrale differentieel tot expressie gebrachte eiwitten werden gescreend met drempelwaarden bestaande uit een p-waarde <0,05, een fold change >1,2 en een variable importance in projection-score >1,0. Dubbele volcano-plots werden gegenereerd met het ggplot2-pakket, intersecties werden geïdentificeerd met het ggVennDiagram-pakket en hiërarchische clustering-heatmaps werden uitgezet met het pheatmap-pakket om de overlappende eiwitten te visualiseren. Gene Ontology (GO)- en Kyoto Encyclopedia of Genes and Genomes (KEGG)-verrijkingsanalyses werden afzonderlijk uitgevoerd voor de opgereguleerde en neergereguleerde eiwitten met het enrichR-pakket op basis van de Enrichr-database.
Alle differentieel tot expressie gebrachte eiwitten werden in kaart gebracht in de STRING-database met een betrouwheidsdrempel van 0,4 om het eiwit-eiwitinteractienetwerk te construeren. De interactiegegevens werden geïmporteerd in software voor netwerkvisualisatie. De cytoHubba-plugin werd toegepast om topologische scores te berekenen, en de top 18 genen met de hoogste score werden geëxtraheerd op basis van de kleurdiepte van de knooppunten. De 18 hub-kandidaten ondergingen een pathway-enrichmentanalyse, en de 10 meest prominente eiwitten werden geselecteerd om hun expressieniveaus in menselijke weefsels te beoordelen met behulp van de Genotype-Tissue Expression (GTEx)-database. Het meest kritische hub-gen werd geïdentificeerd op basis van expressieniveaus in de menselijke hersenen en netwerktopologische scores. De Cistrome Data Browser werd gebruikt om downstream transcriptiefactoren en histonmodificaties te voorspellen die geassocieerd zijn met het specifieke hub-gen.
Western blot en kwantitatieve polymeraseketenreactie
Totaaleiwitten werden geëxtraheerd uit NTS-weefsels met behulp van een lysaatmengsel bestaande uit phenylmethanesulfonylfluoride lysisbuffer, PMSF en fosfataseremmers. De monsters werden gehomogeniseerd met een ultrasone celdisruptor en gecentrifugeerd bij 13.80 x g gedurende 20 min bij 4 °C om de supernatanten te verzamelen. Eiwitconcentraties werden bepaald met een bicinchoninezuur-eiwitassaykit. In totaal werd 20 µg eiwit van elk monster gescheiden via 10% natriumdodecylsulfaat-polyacrylamidegelelektroforese en vervolgens overgebracht op polyvinylideenfluoride-membranen.
De membranen werden geblokkeerd met 5% vetarme melk in Tris-gebufferde zoutoplossing Tween (TBST) gedurende 1 u bij kamertemperatuur en overnight geïncubeerd bij 4 °C met specifieke primaire antilichamen gericht tegen Yin Yang 1 (YY1) en β-actin als housekeeping-eiwit. De membranen werden drie keer gedurende 5 min gewassen met TBST en 1,5 u bij kamertemperatuur geïncubeerd met een secundair antilichaam geconjugeerd aan mierikswortelperoxidase. De doelbanden werden gevisualiseerd met behulp van een enhanced chemiluminescence-kit, vastgelegd met een imaging-systeem en gekwantificeerd ten opzichte van β-actin.
Totaal RNA werd geëxtraheerd uit NTS-weefsels met behulp van een RNA-extractiereagens. De RNA-concentratie en -zuiverheid werden gemeten met een spectrofotometer, en cDNA van de eerste streng werd gesynthetiseerd met een reverse transcriptiekit. Kwantitatieve real-time polymerasekettingreactie (PCR) werd uitgevoerd met een SYBR Green PCR-kit op een real-time PCR-systeem. De specifieke primersequenties die voor amplificatie werden gebruikt, samen met hun respectievelijke NCBI Reference Sequence-toegangsnummers, waren als volgt: YY1 (NM_0010271.1), forward 5'-AGCGTTCGTTGAGAGCTCAA-3' en reverse 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), forward 5'-TGTGATGACTGTGACCGTGG-3' en reverse 5'-TCCAAACAGGTGGCAACT-3'; DMAP1 (NM_0100705.1), forward 5'-GGTGTGACATTACGGAGCCA-3' en reverse 5'-TCCAGCAGCATCTGTTCCAG-3'; en glyceraldehyde-3-fosfaatdehydrogenase (GAPDH) (NM_01708.4), forward 5'-GGCACAGTCAAGGCTGAGAATG-3' en reverse 5'-ATGGTGGTGAAGACGCCAGTA-3'. Relatieve mRNA-expressieniveaus werden berekend met de 2-ΔΔCt methode en genormaliseerd ten opzichte van het interne referentiegen GAPDH.
Statistische analyse
Alle experimentele gegevens werden geanalyseerd met behulp van statistische software en gepresenteerd als het gemiddelde ± standaarddeviatie (SD). De normaliteit werd beoordeeld met de Shapiro-Wilk-test en de homogeniteit van de variantie werd geëvalueerd met de Brown-Forsythe-test.
Voor vergelijkingen tussen twee onafhankelijke groepen werd de Student's t-test of de gepaarde t-test gebruikt voor gegevens die voldeden aan de normaliteitscriteria. Gegevens die niet voldeden aan de normaliteitsaannames werden geanalyseerd met behulp van de Mann-Whitney U-test of de Wilcoxon signed-rank test. Voor vergelijkingen tussen meerdere groepen werd een éénweg variantieanalyse, gevolgd door de Holm-Sidak post hoc-test, gebruikt wanneer aan de aannames van normaliteit en homogeniteit werd voldaan. De Kruskal-Wallis H-test, gevolgd door de Dunn post hoc-test, werd gebruikt wanneer aan deze aannames niet werd voldaan.
Correlaties werden beoordeeld met behulp van de Pearson-correlatiecoëfficiënt, berekend met het Hmisc-pakket in R. De bijbehorende p-waarden werden aangepast met de Benjamini-Hochberg-methode voor de false discovery rate via het stats-pakket om de verhoogde type I-foutmarge als gevolg van meervoudig testen te beheersen. De algemene statistische significantie werd vastgesteld op p <0,05.
Resultaten
Electroacupunctuur verbetert de hartfunctie en vermindert myocardiale beschadiging bij ratten met chronisch hartfalen
Om de effecten van EA op CHF te beoordelen, werd het ratmodel tot stand gebracht via ligatie van de LAD-kransslagader, gevolgd door specifieke EA- of Sham EA-interventies. Er werden systematische evaluaties uitgevoerd, waaronder echocardiografie, biochemische analyses en histologische kleuringen (Figuur 2A). Functioneel vertoonde de CHF-groep ventriculaire dilatatie en een verslechtering van de contractiliteit. EA-behandeling verbeterde de afnames in LVEF en LVFS die werden waargenomen bij CHF-ratten, terwijl de Sham EA-groep cardiac functieniveaus vertoonde die vergelijkbaar waren met die van de CHF-groep (Figuur 2B en Figuur 2C).
Bovendien verlaagde EA de serumspiegels van NT-proBNP en cTnT, wat duidt op een verminderde cardiale belasting en een beperkte myocardiale beschadiging. In tegenstelling hiermee vertoonde de Sham EA-groep biochemische parameters die vergelijkbaar waren met die van de CHF-groep (Figuur 2E,F). Histologische analyse toonde aan dat de CHF-groep myocardiale structurele schade en fibrose vertoonde. EA-behandeling verbeterde de myocardiale architectuur en verminderde de CVF, terwijl de Sham EA-groep pathologische veranderingen en CVF-niveaus behield die vergelijkbaar waren met die in de CHF-groep (Figuur 2D). Over het algemeen oefende EA cardioprotectieve effecten uit tegen CHF, terwijl de Sham EA-interventie geen soortgelijke therapeutische resultaten opleverde.
Electroacupunctuur activeert neuronen in de nucleus tractus solitarius van ratten met chronisch hartfalen
Om vast te stellen of de NTS de centrale respons op EA-behandeling medieert, werd de neuronale activatie beoordeeld door kleuring voor c-Fos, een marker voor neurale excitatie. Immunofluorescentie-beeldvorming (Figuur 3A) en kwantitatieve celtellingen (Figuur 3B) onthulden dat het aantal c-Fos-positieve neuronen in de NTS lager was in de CHF-groep vergeleken met de Sham-groep. EA-behandeling verhoogde echter de c-Fos-expressie tot niveaus die vergelijkbaar waren met de Sham-baseline. Parallel aan de perifere functionele resultaten vertoonde de Sham EA-groep vergelijkbare c-Fos-expressieniveaus als de CHF-groep.
Om de functionele status van deze NTS-neuronen te evalueren, werden in vivo elektrofysiologische signalen geregistreerd. De spike-discharge-sporen (Figuur 3C) en de kwantitatieve gemiddelde vuursnelheid (Figuur 3D) kwamen overeen met de histologische bevindingen. De spontane vuurfrequentie van NTS-neuronen was verminderd onder CHF-condities. In tegenstelling hiermee verhoogde de EA-interventie de neuronale vuursnelheid, terwijl de Sham EA-procedure geen dergelijke elektrofysiologische veranderingen teweegbracht.
Dit patroon van neurale activatie werd ondersteund door de analyse van de lokale veldpotentialen. Zoals weergegeven in de 2D LFP-kleurenschaal-spectrogrammen en de 3D power spectral density-kaarten (Figuur 3E), was de neurale oscillatie-energie binnen de NTS verminderd tijdens de CHF-toestand. Na EA-behandeling was er een toename in power-intensiteit over het neurale frequentiespectrum, wat wijst op netwerkactivatie, welke afwezig was in de Sham EA-cohort.
Om de fysiologische relevantie van deze centrale activatie te onderzoeken, werd een Pearson-correlatieanalyse uitgevoerd, waarbij perifere cardiale metrieken werden geïntegreerd met de centrale neuronale activiteit van de NTS (Figuur 3F). De analyse toonde aan dat de gemiddelde vuursnelheid en c-Fos-expressie binnen de NTS positief correleerden met de LVEF. Omgekeerd vertoonden deze indicatoren van centrale neurale activiteit een negatieve correlatie met de serummarker voor hartfalen NT-proBNP. Deze correlaties geven aan dat de neurale activatie van de NTS, gemoduleerd door EA, gekoppeld is aan de perifere cardioprotectieve werkzaamheid ervan.
Elektroacupunctuur verandert het globale proteomische profiel in de nucleus tractus solitarius
Vanwege het gebrek aan therapeutische effectiviteit dat werd waargenomen in de Sham EA-groep tijdens de voorafgaande functionele evaluaties, omvatte de proteomics-fase alleen de Sham-, CHF- en EA-groepen. Voorafgaand aan de weefselafname ondergingen 12 ratten per groep een echocardiografische beoordeling om de therapeutische effecten van EA te evalueren, en deze resultaten worden gepresenteerd in Aanvullende Figuur 1A. Na deze evaluatie werden 6 biologische replica's van elke groep onderworpen aan een kwantitatieve proteomische analyse op basis van massaspectrometrie.
Kwaliteitscontrole en multivariate analyses werden uitgevoerd om de betrouwbaarheid en de algemene distributie van de proteomische gegevens te beoordelen. Het totale aantal geïdentificeerde eiwitten was 5.914 in de Sham-groep, 5.980 in de CHF-groep en 5.836 in de EA-groep, wat wijst op een vergelijkbare eiwitdetectie over de drie experimentele groepen (Figuur 4A en Aanvullende Tabel 1). Partial least squares discriminantanalyse toonde een duidelijke scheiding aan tussen de Sham-, CHF- en EA-groepen, wat wijst op verschillende globale proteomische profielen die geassocieerd zijn met de ziektestatus en de EA-interventie (Figuur 4B).
Paarsgewijze orthogonale partiële kleinste-kwadraten discriminantanalyse toonde verder een scheiding aan tussen de Sham- en CHF-groepen (Figuur 4C) en tussen de CHF- en EA-groepen (Figuur 4D). De overeenkomstige permutatietesten ondersteunden de betrouwbaarheid van de respectieve modellen. Daarnaast vertoonde de Pearson-correlatieheatmap hoge binnen-groeps-correlaties en duidelijke tussen-groeps-patronen onder de proteomische monsters, wat de reproduceerbaarheid van de biologische replica's ondersteunt (Figuur 4E). Gezamenlijk gaven deze kwaliteitscontroles en multivariate analyses aan dat de proteomische dataset voldoende robuust was voor de daaropvolgende identificatie en bioinformatische analyse van differentieel tot expressie gebrachte eiwitten.
Electroacupunctuur moduleert kernproteïnen met differentiële expressie en signaleringspaden in de nucleus tractus solitarius
Om de moleculaire doelwitten van EA te onderzoeken, werden de eiwitveranderingen geanalyseerd. De volcano-plots toonden de distributie van opgereguleerde en neergereguleerde eiwitten in de vergelijkingen Sham versus CHF en CHF versus EA (Figuur 5A, Aanvullende Tabel 2 en Aanvullende Tabel 3). Om de therapeutische doelwitten te identificeren, werd een intersectieanalyse uitgevoerd. Zoals geïllustreerd in de Venn-diagrammen, werden 58 eiwitten geïdentificeerd die opgereguleerd waren in de CHF-groep maar neergereguleerd na EA-behandeling, samen met 27 eiwitten die neergereguleerd waren in de CHF-groep en opgereguleerd door EA-interventie (Figuur 5B en Aanvullende Tabel 4). Deze screening leverde in totaal 85 kern-differentieel tot expressie gebrachte eiwitten op. De heatmap van de hiërarchische clustering toonde aan dat de EA-interventie de abnormale expressiepatronen van deze 85 eiwitten moduleerde, waardoor hun profielen verschoven richting de Sham-baseline (Figuur 5C).
Om de biologische functies van deze kern-targets te bepalen, werden GO- en KEGG-enrichmentanalyses afzonderlijk uitgevoerd voor de twee verschillende eiwit-subsets. Voor de subset van 58 eiwitten die werden gedownreguleerd door EA, toonde de GO-bubbleplot een significante verrijking aan in biologische processen, waaronder de organisatie van de extracellulaire matrix en de organisatie van de extracellulaire structuur, naast cellulaire componenten zoals de externe inkapselende structuur en collageen-trimeren, en moleculaire functies, waaronder collageenbinding en glutamaatreceptorbinding (Figuur 5D en Aanvullende Tabel 5). De daaropvolgende KEGG-pathwayanalyse, gevisualiseerd met chord- en Sankey-diagrammen, onthulde dat deze 58 eiwitten deelnemen aan cascades waaronder eiwitvertering en -absorptie, het cytoskelet in spiercellen en de TGF-β-signaleringsroute (Figuur 5E en Aanvullende Tabel 6). Deze topologische visualisaties benadrukten specifieke eiwitten, waaronder COL3A1, COL14A1, MYH1, DCN en DPF2, als prominente knooppunten die meerdere pathologische routes verbinden.
Omgekeerd werd een functionele annotatie uitgevoerd voor de subset van 27 eiwitten die waren opgereguleerd door de EA-interventie. De GO-verrijkingsanalyse wees op betrokkenheid bij biologische processen zoals de regulatie van celgroei en de positieve regulatie van DNA-templated transcriptie-elongatie, evenals moleculaire functies waaronder calciumafhankelijke eiwitbinding en tetrapyroolbinding (Figuur 5F en Aanvullende Tabel 7). De overeenkomstige KEGG-koord- en Sankey-diagrammen koppelden deze eiwitten aan kritieke routes, waaronder ATP-afhankelijk chromatineremodellering en het polycomb-repressieve complex (Figuur 5G en Aanvullende Tabel 8). Opmerkelijk is dat deze netwerkkartering sleuteleiwitten zoals YY1, E2F2 en ENTPD5 isoleerde, die een brug vormen tussen deze centrale signaleringsnetwerken. Deze uitgebreide functionele stratificatie vormde de structurele basis voor de daaropvolgende validatie van de kern-doelwitten.
Netwerktopologie en expressieprofilering identificeren YY1 als een kandidaat-doelwit dat geassocieerd is met de effecten van elektroacupunctuurinterventie
Om het hub-gen te bepalen tussen de 85 differentieel tot expressie gebrachte eiwitten, werd een eiwit-eiwit-interactienetwerk geconstrueerd. Topologische analyse identificeerde 18 knooppunten met hoge connectiviteitsscores (Figuur 6A en Aanvullende Tabel 9). Vervolgens werd de KEGG-pathwayanalyse specifiek uitgevoerd voor deze 18 hub-eiwitten. De bijbehorende chord- en Sankey-diagrammen brachten de complexe relaties tussen deze hubs en verrijkte signaleringscascades in kaart, waaronder ATP-afhankelijk chromatineremodeling, het polycomb-repressieve complex en de TGF-β-signaleringsroute (Figuur 6A en Aanvullende Tabel 10). Op basis van deze functionele profilering werden de top 10 prominent verrijkte eiwitten geselecteerd voor verdere screening. Omdat het therapeutische doelwit van EA zich in het centrale zenuwstelsel bevindt, werden deze 10 kandidaten geëvalueerd met behulp van de GTEx-database voor expressie in menselijk weefsel (Figuur 6B en Aanvullende Figuur 1B–J). De resultaten gaven aan dat alleen YY1 (Figuur 6B), DMAP1 (Aanvullende Figuur 1C) en DPF2 (Aanvullende Figuur 1D) tot expressie kwamen in hersenweefsels.
Om het zeer responsieve kandidaat-doelwit van EA te isoleren, werden in vivo moleculaire experimenten uitgevoerd met NTS-weefsels. Kwantitatieve real-time PCR werd gebruikt om de transcriptionele responsiviteit van de 3 hersen-verrijkte kandidaten te evalueren. De mRNA-expressie van YY1 was verminderd onder CHF-condities en verhoogd na EA-behandeling, terwijl de mRNA-expressieniveaus van DPF2 en DMAP1 geen statistisch significante veranderingen vertoonden tussen de experimentele groepen (Figuur 6C). Deze transcriptionele screening sloot DPF2 en DMAP1 uit van verdere validatie en ondersteunde YY1 als de primaire responsieve kandidaat. Vervolganalyse via Western blot gaf aan dat YY1-proteineniveaus verminderd waren in de CHF-groep ten opzichte van de Sham-nulmeting, terwijl de EA-interventie deze trend tegenging en de YY1-proteïne-expressie verhoogde (Figuur 6D en Figuur 6E). Deze experimentele resultaten geven aan dat EA de expressie van YY1 binnen de NTS opreguleert.
Om de stroomopwaartse regulatiemechanismen die de expressie van YY1 bepalen te onderzoeken, werden de gerelateerde histonmodificaties en transcriptiefactoren geanalyseerd. Het is belangrijk op te merken dat deze bevindingen uitsluitend gebaseerd zijn op computationele bio-informatica-voorspellingen afgeleid van de Cistrome Data Browser en geen directe experimentele ChIP-seq-validatie vertegenwoordigen. De epigenetische voorspelling wees op histonmodificaties, waaronder H3K27ac, H3K27me3 en H3K4me3, met hoge scores voor regulatoir potentieel voor de YY1-locus (Figuur 6F). Tegelijkertijd identificeerde de score voor regulatoir potentieel transcriptiefactoren zoals CDK9, PRDM1 en ELL2 als stroomopwaartse regulatoren van YY1 (Figuur 6G). Deze bio-informatica-voorspellingen schetsen de potentiële epigenetische en transcriptionele netwerken die de expressie van YY1 in de NTS controleren.
Samenvattend tonen de gepresenteerde gegevens aan dat EA-interventie de systemische hartfunctie effectief verbetert en myocardiale beschadiging bij ratten met CHF vermindert. Deze perifere cardioprotectieve effecten gaan centraal gepaard met het herstel van de neuronale vuuractiviteit en de neurale oscillatoire energie binnen de NTS. Bovendien identificeerde kwantitatieve proteomische screening 85 kern-differentieel tot expressie gebrachte eiwitten en markeerde het de transcriptiefactor YY1 als een zeer responsieve kandidaat-target. Gezamenlijk suggereren deze bevindingen dat de therapeutische effectiviteit van EA tegen CHF nauw verbonden is met het herstel van de neurale functie van de NTS en dat de opregulatie van YY1 betrokken kan zijn bij dit centrale neurobiologische proces.
Beschikbaarheid van gegevens
Alle gegevens die zijn gegenereerd en geanalyseerd ter ondersteuning van de bevindingen van deze studie zijn opgenomen in het manuscript en het Aanvullend Bestand 1. Om te voldoen aan de vereiste voor openbare toegankelijkheid van gegevens, zijn alle beschikbare ruwe gegevens ten grondslag aan dit onderzoek gedeponeerd in de openbare Zenodo-repository en zijn deze vrij toegankelijk via de volgende link: https://doi.org/10.5281/zenodo.2030720. Aanvullende ondersteunende gegevens zijn op redelijk verzoek verkrijgbaar via de corresponderende auteurs.
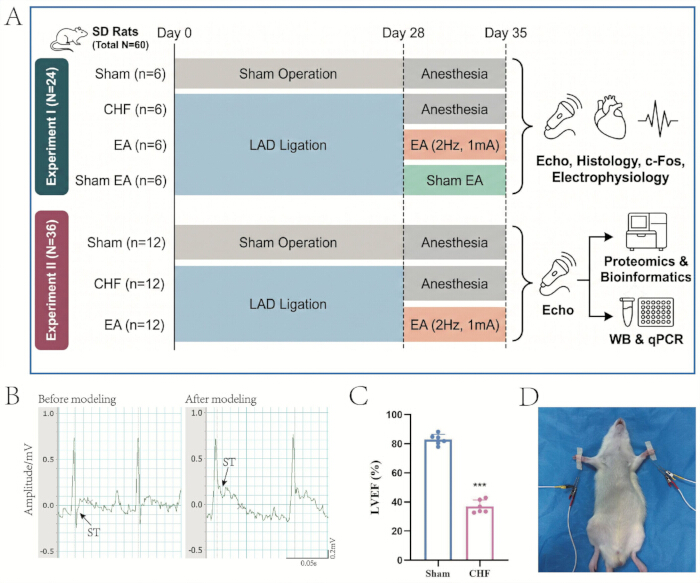
Figuur 1: Experimenteel ontwerp, totstandkoming van het ratmodel voor chronisch hartfalen en elektroacupunctuurinterventie. (A) Algemeen experimenteel stroomschema, inclusief de tijdlijn en groepsindeling voor de twee onafhankelijke experimentele series. (B) Representatieve elektrocardiogramregistraties voor en na de ligatie van de LAD-kransslagader, waarbij pijlen de ST-segmentelevatie aangeven die myocardiale ischemie bevestigt. (C) Kwantitatieve analyse van de LVEF 4 weken na de operatie om de succesvolle modellering te bevestigen (biologische replica's n = 6, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep. (D) EA-interventie bij de bilaterale HT7-acupunctuurpunten. Klik hier om een grotere versie van deze figuur te bekijken.
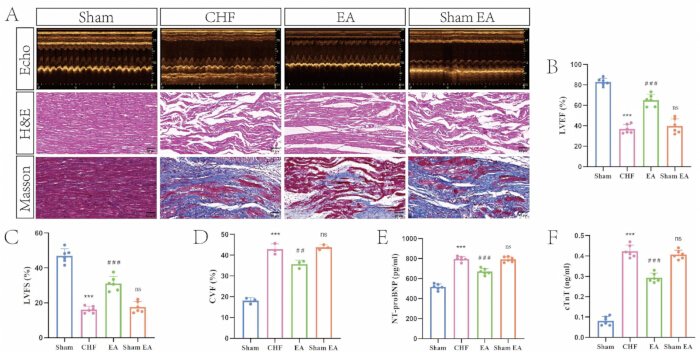
Figuur 2: Elektroacupunctuur verbetert de hartfunctie en vermindert myocardiale beschadiging bij ratten met chronisch hartfalen. (A) Representatieve M-mode echocardiogrammen naast afbeeldingen van hematoxyline-eosin en Masson trichroom kleuringen van myocardweefsels over de 4 experimentele groepen (schaalbalk = 50 µm). (B) Kwantitatieve analyse van de LVEF over de groepen (biologische replica's n = 6, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep; ###p < 0,01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (C) Kwantitatieve analyse van de LVFS over de groepen (biologische replica's n = 6, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep; ###p < 0,01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (D) Kwantitatieve analyse van de CVF over de groepen (biologische replica's n = 3, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep; ##p < 0,01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (E) Kwantitatieve analyse van serum NT-proBNP-spiegels over de groepen (biologische replica's n = 6, gemiddelde ± SD). ***p < 0,001 t.o.v. de Sham-groep; ###p < 0,01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (F) Kwantitatieve analyse van serum cTnT-spiegels over de groepen (biologische replica's n = 6, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep; ###p < 0,01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. Klik hier om een grotere versie van deze figuur te bekijken.
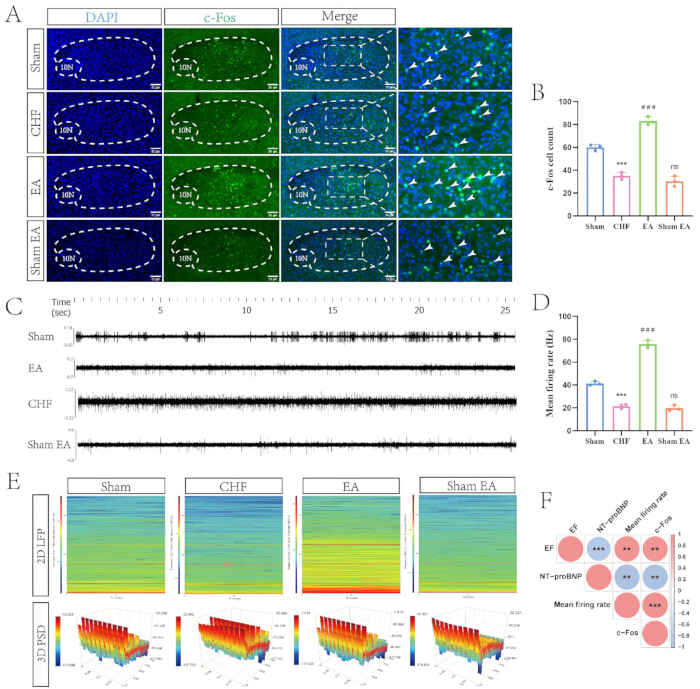
Figuur 3: Elektroacupunctuur herstelt de neuronale activiteit in de nucleus tractus solitarius bij ratten met chronisch hartfalen. (A) Representatieve immunofluorescentiebeelden van c-Fos-expressie in de NTS over de groepen heen. Kernen zijn tegengekleurd met DAPI en c-Fos-positieve cellen zijn groen gekleurd. De stippellijnen omlijnen de anatomische regio en witte pijlpunten geven representatieve c-Fos-positieve neuronen aan (schaalbalk = 30 µm). (B) Kwantitatieve analyse van de aantallen c-Fos-positieve cellen over de groepen heen (biologische replica's n = 3, gemiddelde ± SD). ***p < 0.01 t.o.v. de Sham-groep; ###p < 0.01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (C) Representatieve in vivo elektrofysiologische spike-ontladingssporen van de NTS over de groepen heen. (D) Kwantitatieve analyse van de gemiddelde neuronale vuursnelheid over de groepen heen (biologische replica's n = 3, gemiddelde ± SD). ***p < 0.01 t.o.v. de Sham-groep; ###p < 0.01 t.o.v. de CHF-groep; ns, niet significant t.o.v. de CHF-groep. (E) Representatieve 2D lokale veldpotentiaal-spectrogrammen en 3D vermogensspectrale dichtheidstopografieën die de neurale oscillatie-energie binnen de NTS illustreren. (F) Correlatiematrix die de relaties tussen perifere cardiovasculaire fenotypes en centrale neurale activiteitsparameters evalueert. Rode en blauwe cirkels geven respectievelijk positieve en negatieve correlaties aan. **p < 0.01; ***p < 0.01. Klik hier om een grotere versie van deze figuur te bekijken.
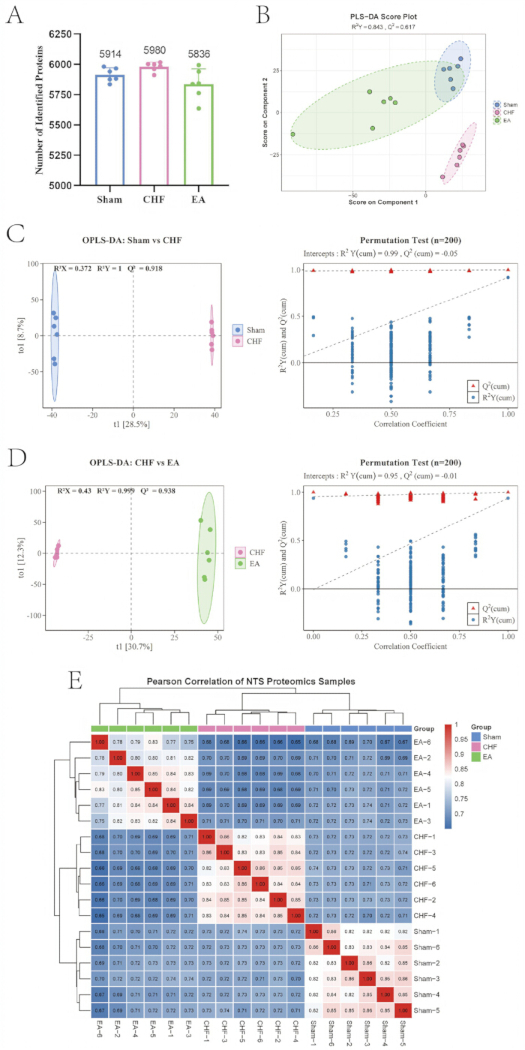
Figuur 4: Kwaliteitscontrole en multivariate statistische evaluatie van de proteomische profielen in de nucleus tractus solitarius. (A) Kwantitatief overzicht van de geïdentificeerde eiwitten over de 3 experimentele groepen (biologische replica's n = 6). (B) Scoreplot van de partial least squares discriminant analyse die de algemene ruimtelijke distributie en scheiding tussen de groepen illustreert. (C) Scoreplot van de orthogonale partial least squares discriminant analyse en de bijbehorende permutatietest die de betrouwbaarheid van het model valideert voor de vergelijking tussen Sham en CHF (20 permutaties). (D) Scoreplot van de orthogonale partial least squares discriminant analyse en de bijbehorende permutatietest die de betrouwbaarheid van het model valideert voor de vergelijking tussen CHF en EA (20 permutaties). (E) Heatmap van hiërarchische clustering van Pearson-correlatiecoëfficiënten ter evaluatie van de reproduceerbaarheid binnen de groepen en de variantie tussen de groepen over alle proteomische monsters. Klik hier om een grotere versie van deze figuur te bekijken.
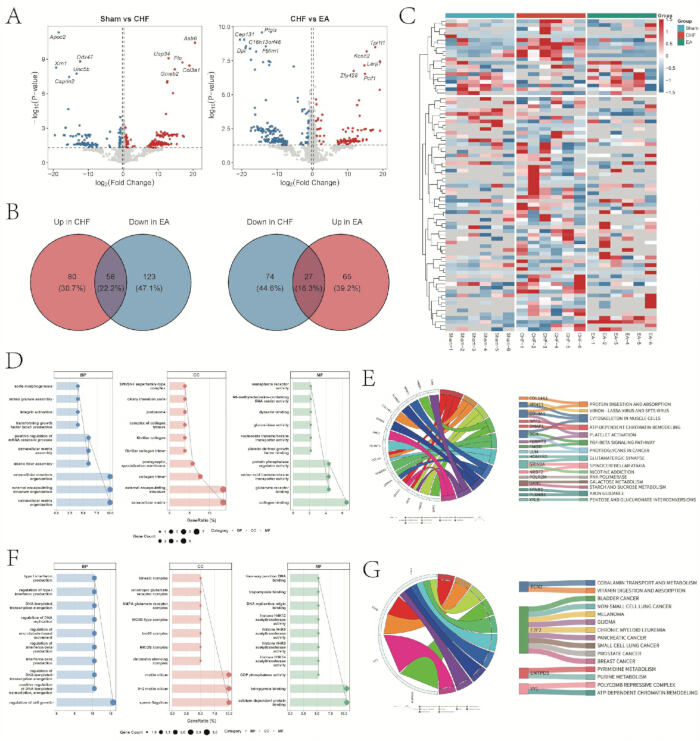
Figuur 5: Identificatie en functionele verrijkingsanalyse van kern-differentieel tot expressie gebrachte eiwitten gemoduleerd door elektroacupunctuur in de nucleus tractus solitarius. (A) Volcano plots die de distributie van opgereguleerde en neergereguleerde eiwitten illustreren in de vergelijkingen Sham versus CHF en CHF versus EA. (B) Venn-diagrammen die de intersectieanalyse weergeven om de neergereguleerde en opgereguleerde kern-eiwitten na de EA-interventie te identificeren. (C) Hiërarchische clustering heatmap van de expressieprofielen van de kern-differentieel tot expressie gebrachte eiwitten. (D) GO-bubbelplots die de verrijkte biologische processen, cellulaire componenten en moleculaire functies voor de subset van neergereguleerde eiwitten specificeren. (E) KEGG-chord- en Sankey-diagrammen die de signaleringspaden in kaart brengen die verrijkt zijn door de neergereguleerde eiwitten. (F) GO-bubbelplots die de verrijkte biologische processen, cellulaire componenten en moleculaire functies voor de subset van opgereguleerde eiwitten specificeren. (G) KEGG-chord- en Sankey-diagrammen die de signaleringspaden in kaart brengen die verrijkt zijn door de opgereguleerde eiwitten. Klik hier om een grotere versie van deze figuur te bekijken.
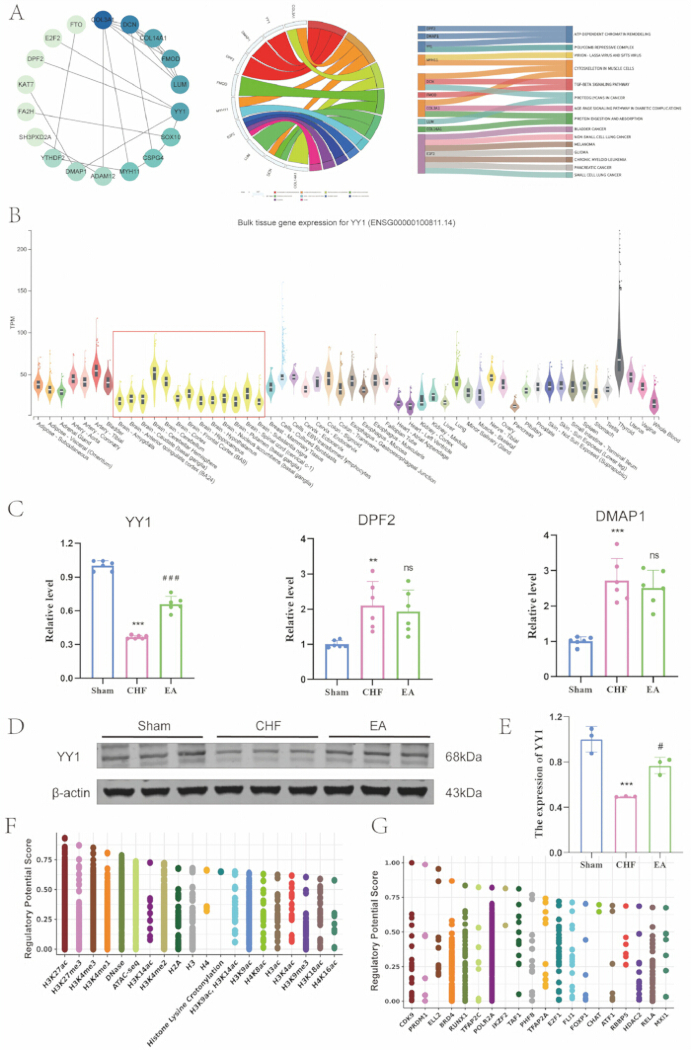
Figuur 6: Netwerktopologie, weefselexpressieprofilering en moleculaire validatie identificeren YY1 als een kandidaat-doelwit geassocieerd met elektroacupunctuur. (A) Proteïne-proteïne interactienetwerk, koorddiagram en Sankey-diagram van de geïdentificeerde hub-proteïnen. (B) Menselijk weefselexpressieprofiel van YY1 afgeleid uit de GTEx-database, waarbij het rode kader hersenweefsels markeert. (C) Kwantitatieve analyse van YY1, DPF2 en DMAP1 mRNA-expressie in de NTS over de groepen (biologische replica's n = 6, gemiddelde ± SD). **p < 0,01, ***p < 0,01 vs. de Sham-groep; ###p < 0,01 vs. de CHF-groep; ns, niet significant vs. de CHF-groep. (D) Representatieve Western blot-banden van YY1 en β-actin in de NTS over de groepen. (E) Kwantitatieve analyse van YY1-proteïne-expressie over de groepen (biologische replica's n = 3, gemiddelde ± SD). ***p < 0,01 vs. de Sham-groep; #p < 0,05 vs. de CHF-groep. (F) Bio-informatica-voorspelling van epigenetische histonmodificaties die de YY1-locus reguleren op basis van regulatory potential scores. (G) Bio-informatica-voorspelling van upstream transcriptiefactoren die de YY1-locus reguleren op basis van regulatory potential scores. Klik hier om een grotere versie van deze figuur te bekijken.
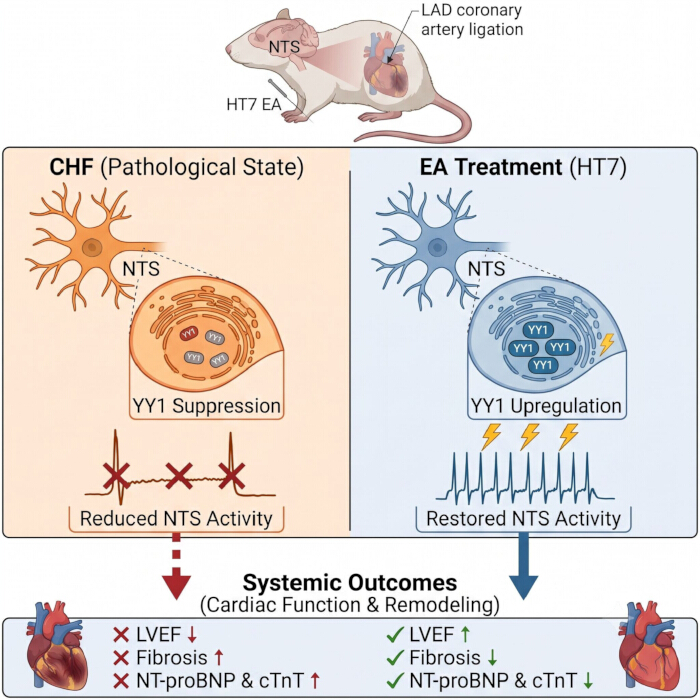
Figuur 7: Voorgesteld model van de associatie tussen elektroacupunctuur bij HT7, YY1-upregulatie, herstelde neuronale activiteit in de nucleus tractus solitarius en verbeterde chronische hartinsufficiëntie. (Links) Pathologische toestand: In het CHF-model geïnduceerd door LAD-kransslagaderligatuur is de neuronale activiteit binnen de NTS verminderd, vergezeld door de onderdrukking van de transcriptiefactor YY1. Deze centrale neurale inhibitie is geassocieerd met pathologische cardiale remodellering, wat zich manifesteert als een afname van de LVEF, toegenomen myocardfibrose en verhoogde serummarkers voor hartinsufficiëntie. (Rechts) EA-behandeling: EA-interventie bij het HT7-acupunt reguleert de expressie van YY1 in de NTS op en herstelt de neuronale vuring. Deze centrale neuromodulatie oefent cardioprotectieve effecten uit, waardoor pathologische remodellering wordt afgezwakt en de systemische hartfunctie verbetert. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1: Beoordeling van de hartfunctie van de proteomische cohort en menselijke weefselexpressieprofielen van kandidaat-hubgenen. (A) Kwantitatieve analyse van de LVEF en LVFS over de groepen (biologische replica's n = 12, gemiddelde ± SD). ***p < 0,01 t.o.v. de Sham-groep; ###p < 0,01 t.o.v. de CHF-groep. (B-J) Menselijke weefselexpressieprofielen van kandidaat-hubgenen afgeleid uit de GTEx-database, waaronder COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH1 (F), E2F2 (G), LUM (H), DCN (I) en COL14A1 (J).Klik hier om dit bestand te downloaden.
Aanvullende Tabel 1: Uitgebreide identificatie- en kwantificatiematrix van het globale proteoom in het nucleus tractus solitarius.Deze tabel presenteert de volledige kwantitatieve proteomics-dataset over alle experimentele cohorten. Belangrijke kolommen zijn Protein ID (UniProt-toegangsnummer), Gene (genesymbool), First.Protein.Description (functionele annotatie) en de genormaliseerde proteïne-intensiteitswaarden voor elk biologisch replica in de Sham-, CHF- en EA-groepen (n = 6 per groep).Klik hier om dit bestand te downloaden.
Aanvullende tabel 2: OPLS-DA variable importance in projection scores voor eiwitten in de vergelijking tussen Sham en CHF.Deze tabel vermeldt de kenmerken die de Sham- en CHF-groepen onderscheiden volgens het OPLS-DA-model. De belangrijkste kolommen zijn feature (die de identifier van het specifieke eiwit/gen vertegenwoordigt) en de VIP_value (Variable Importance in Projection), die de bijdrage van elk kenmerk aan de groepsscheiding aangeeft (drempelwaarde VIP > 1.0).Klik hier om dit bestand te downloaden.
Aanvullende Tabel 3: OPLS-DA variable importance in projection-scores voor eiwitten in de vergelijking tussen CHF en EA.Deze tabel bevat de kenmerken die de CHF- en EA-groepen onderscheiden op basis van het OPLS-DA-model. Net als in Tabel S2 bevat deze de kolom met kenmerken en de bijbehorende VIP_value, waarbij de kenmerken die het meest reageren op de EA-interventie worden benadrukt.Klik hier om dit bestand te downloaden.
Aanvullende tabel 4: Gedetailleerde lijst van de 85 kern-differentieel tot expressie gebrachte eiwitten die worden gemoduleerd door elektroacupunctuur. Deze tabel geeft de overlap weer van eiwitten die significant waren veranderd door CHF en vervolgens werden teruggedraaid door de EA-interventie. Belangrijke kolommen zijn Protein_ID, Gene, log2FC (log2 Fold Change die de expressievariatie aangeeft), P_value voor statistische significantie (drempelwaarde p < 0,05), en VIP_value ter evaluatie van de modelbijdrage.Klik hier om dit bestand te downloaden.
Aanvullende tabel 5: Gene Ontology-verrijkingsanalyse van de subset van downgereguleerde kernproteïnen.Deze tabel toont de functionele Gene Ontology (GO)-annotatie voor de 58 proteïnen die downgereguleerd werden door EA. Belangrijke kolommen zijn ONTOLOGY (gecategoriseerd in Biological Process [BP], Cellular Component [CC] en Molecular Function [MF]), functionele Description, p.adjust (gecorrigeerde p-waarde voor meervoudig testen) en geneID, die verwijst naar de specifieke genen die verrijkt zijn in elke term.Klik hier om dit bestand te downloaden.
Aanvullende Tabel 6: Kyoto Encyclopedia of Genes and Genomes pathway-verrijkingsanalyse van de subset van downgereguleerde kernproteïnen.Deze tabel illustreert de verrijkte signaleringscascades voor de 58 downgereguleerde proteïnen. Belangrijke kolommen zijn de pathway-term, de aangepaste p-waarde die de statistische significantie van de verrijking aangeeft, en de specifieke intersecterende genen die betrokken zijn bij elke pathway.Klik hier om dit bestand te downloaden.
Aanvullende Tabel 7: Gene Ontology-verrijkingsanalyse van de subset van opgereguleerde kernproteïnen.Deze tabel toont de functionele annotatie van de Gene Ontology (GO) voor de 27 proteïnen die zijn opgereguleerd door EA. Het formaat en de kolomdefinities (ONTOLOGY [BP, CC, MF], Description, p.adjust, geneID) zijn identiek aan die beschreven in Tabel S5.Klik hier om dit bestand te downloaden.
Aanvullende Tabel 8: Pathway-verrijkingsanalyse van de Kyoto Encyclopedia of Genes and Genomes voor de subset van opgereguleerde kernproteïnen.Deze tabel illustreert de verrijkte signaleringscascades voor de 27 opgereguleerde proteïnen. Het formaat en de kolomdefinities (Term, Gecorrigeerde p-waarde, Genen) zijn identiek aan die beschreven in Tabel S6.Klik hier om dit bestand te downloaden.
Aanvullende tabel 9: Topologische connectiviteitsscores van de 18 hub-eiwitten afgeleid van het eiwit-eiwitinteractienetwerk.Deze tabel vat de topologische netwerkparameters samen die zijn gebruikt om de kern-hubgenen te identificeren. Belangrijke kolommen bevatten de gennaam en centrale netwerkmetrieken zoals Degree, Betweenness Centrality en Closeness Centrality, die de relatieve belangrijkheid en connectiviteit van elke knoop binnen het biologische netwerk kwantificeren.Klik hier om dit bestand te downloaden.
Aanvullende tabel 10: Kyoto Encyclopedia of Genes and Genomes pathway-verrijkingsanalyse van de 18 netwerkhub-eiwitten.Deze tabel presenteert de specifieke signaleringspaden die exclusief verrijkt zijn door de 18 geïdentificeerde hub-eiwitten. Belangrijke kolommen omvatten de Term van het pad, de aangepaste p-waarde voor significantie en de betreffende genen die de functionele verrijking aansturen.Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: R-scripts gebruikt voor data-analyse en visualisatie en onbijgesneden Western blot-afbeeldingen. Het aanvullende bestand bevat de R-scripts die zijn gebruikt voor Pearson-correlatieanalyse, het genereren van dubbele volcano-plots en de identificatie van EA-omgekeerde eiwitten, Gene Ontology (GO) verrijkingsanalyse, het genereren van hiërarchische clustering heatmaps, Kyoto Encyclopedia of Genes and Genomes (KEGG) verrijkingsvisualisatie, orthogonale partial least squares discriminant analyse (OPLS-DA) en permutatietesten, partial least squares discriminant analyse (PLS-DA), het genereren van proteomische monster-correlatie heatmaps en Venn-diagramanalyse.Klik hier om dit bestand te downloaden.
Discussie
De huidige studie onderzocht de centrale mechanismen van EA op het HT7-acupunt in het ratmodel van CHF. Fysiologische en histologische gegevens gaven aan dat EA de LVEF verbeterde en myocardiale fibrose verminderde. Parallel aan deze perifere veranderingen ondersteunden in vivo elektrofysiologische registraties en neurale mapping dat EA de neurale vuursnelheden binnen de NTS herstelde. Via proteomics op basis van massaspectrometrie werd het moleculaire landschap van de NTS in kaart gebracht, waarbij 85 differentieel tot expressie gebrachte eiwitten werden geïdentificeerd waarvan de abnormale expressiepatronen door de interventie werden gemoduleerd. Vervolgende topologische analyse en weefselexpressieprofilering identificeerden de transcriptiefactor YY1 als een kandidaat biologisch doelwit. Moleculaire validatie wees uit dat EA de expressie van YY1 opreguleert. Deze bevindingen vormen een centraal moleculair netwerk voor EA en suggereren YY1 als een potentieel neurobiologisch doelwit dat centrale autonome regulatie verbindt met de verbetering van CHF. De uitgebreide centrale mechanismen zijn samengevat in Figuur 7.
De NTS dient als het integratiecentrum voor centrale cardiovasculaire reflexen en autonome regulatie21,2. In de context van cardiovasculaire aandoeningen houdt CHF een aanhoudende autonome disbalans in, gekenmerkt door sympathische overactivatie en vagale terugtrekking23. Tijdens de pathofysiologische progressie van deze aandoening neemt de gevoeligheid van perifere baroreceptoren af, wat de excitatoire afferente input naar de NTS vermindert24. Bijgevolg leidt deze neurale afstomping tot een verminderde activatie van de caudale ventrolaterale medulla en een daaropvolgende disinhibitie van de rostrale ventrolaterale medulla, wat culmineert in een excessieve centrale sympathische outflow25. Parallel aan deze mechanismen gaven de elektrofysiologische en histologische gegevens aan dat de spontane vuurfrequentie en c-Fos-expressie van NTS-neuronen verminderd waren in de CHF-toestand. Als gerichte neuromodulatiebenadering wordt theoretisch voorgesteld dat door EA gegenereerde somatosensorische afferente signalen via perifere zenuwen naar het dorsale hoorn van het ruggenmerg worden getransporteerd en opstijgen naar hersenstamstructuren, waaronder de NTS26. De resultaten gaven aan dat EA-interventie bij het HT7-acupunt de neurale oscillatie-energie verhoogde en de neuronale vuursnelheid in dit hersengebied herstelde. Fysiologisch gezien faciliteert de herstelde NTS-neuronale activiteit de activatie van inhiberende interneuronen in de medulla, waardoor hyperactieve sympathische premotorische neuronen worden onderdrukt, terwijl gelijktijdig parasympathische efferente signalen worden versterkt27. Door deze centrale neurale mechanismen te koppelen aan perifere cardiovasculaire fenotypes, ondersteunde de correlatieanalyse dat deze centrale neurale activatie positief geassocieerd was met LVEF en negatief geassocieerd met de perifere hartfalenmarker NT-proBNP. Deze bevindingen geven aan dat EA zijn perifere cardioprotectieve effecten kan uitoefenen door de pathologische inhibitie van NTS-neuronen te verlichten en de centrale autonome homeostase te bevorderen.
Om de moleculaire mechanismen ten grondslag aan deze centrale neuromodulatie te verhelderen, is het proteomische landschap van de NTS geanalyseerd. Proteomics op basis van massaspectrometrie identificeerde 85 eiwitten waarvan de expressiepatronen werden beïnvloed door de interventie. Functionele stratificatie onthulde dat een subset van 58 eiwitten die door EA werden gedownreguleerd, prominent betrokken is bij de organisatie van de extracellulaire matrix en de signaleringsroute van transforming growth factor β. De extracellulaire matrix in het centrale zenuwstelsel vormt een georganiseerd rooster, inclusief perineuronale netten die synaptische terminalen fysiek omhullen en de lokale ionenhomeostase reguleren28. Onder chronische pathologische stress, zoals bij hartfalen, creëert aberrante depositie van de extracellulaire matrix een restrictieve micro-omgeving binnen de hersenstam29. Deze structurele remodellering belemmert de synaptische structurele plasticiteit fysiek en houdt neurale circuits in een staat van sympathische hyperactiviteit30. Door de expressie van structurele eiwitten, zoals COL3A1 en COL14A1 samen met DCN, te moduleren, remodelleert EA deze pathologische extracellulaire barrière. Tegelijkertijd suggereert de verrijking van gerelateerde signaleringscascades — gecategoriseerd onder de KEGG-route "cytoskeleton in muscle cells", wat duidt op algemene structurele en integrine-gemedieerde veranderingen in plaats van de feitelijke aanwezigheid van myocyten binnen de NTS — dat extracellulaire veranderingen worden doorgegeven naar het intracellulaire compartiment31. Deze mechanotransductie-signalering herstelt de dynamische omzetting van dendritische spines en reguleert de synaptische transmissie en efficiëntie in de autonome reflexboog32.
Naast de extracellulaire structurele reorganisatie wees de functionele annotatie van de 27 eiwitten die door de interventie waren opgereguleerd op de betrokkenheid van ATP-afhankelijk chromatineremodellering. Een aanhoudende cardiovasculaire autonome disbalans wordt in stand gehouden door epigenetische beperkingen, waarbij gecondenseerd chromatine de toegankelijkheid van promoterregio's voor genen die neurale inhibitie reguleren beperkt3. ATP-afhankelijke chromatineremodelleringscomplexen gebruiken energie uit ATP-hydrolyse om nucleosomen te verschuiven of te verwijderen, waardoor genomische loci worden geopend voor actieve transcriptie34. De verrijking van dit pad, samen met de positieve regulatie van DNA-getemplateerde transcriptie-elongatie, geeft aan dat EA op epigenetisch niveau werkt om ziekte-geassocieerde transcriptionele geheugens te remodelleren35. De structurele relaxatie van de extracellulaire micro-omgeving vertaalt zich in nucleaire epigenetische modificaties, wat de gecoördineerde transcriptie van neuroprotectieve gennetwerken faciliteert, overbrugd door sleuteleiwitten zoals YY1 en E2F236,37. Om systematisch het biologische doelwit te isoleren dat de therapeutische effectiviteit van EA medieert, is een stapsgewijze screeningstrategie toegepast. De 85 differentieel tot expressie gebrachte eiwitten werden gefilterd via topologische netwerkmapping en padverrijkingsanalyse om 10 prominente hub-kandidaten te identificeren. Vervolgende weefsel-expressieprofilering bevestigde dat alleen YY1 en DPF2, samen met DMAP1, tot expressie komen in menselijk hersenweefsel. In vivo moleculaire validatie sloot DPF2 en DMAP1 verder uit vanwege een gebrek aan transcriptionele responsiviteit, wat YY1 bevestigde als een zeer responsief kandidaat-doelwit. YY1 is een zinkvinger-transcriptiefactor die controle uitoefent over de ontwikkeling van het centrale zenuwstelsel en neuronale plasticiteit38. In volwassen neurale circuits functioneert YY1 als een neuroprotectieve regulator door mitochondriale homeostase te handhaven en oxidatieve stress te verminderen39. Tijdens de pathologische progressie van CHF induceren aanhoudende hemodynamische stress en perifere inflammatie metabole dysfunctie en structurele schade in neuronen van de hersenstam40. De experimentele gegevens gaven aan dat de expressie van YY1 onder CHF-condities in de NTS is onderdrukt, terwijl EA-interventie deze pathologische onderdrukking tegenging. Strikt gebaseerd op computationele bio-informatica-voorspellingen in plaats van empirische validatie, wordt gehypothesiseerd dat YY1 interacteert met actieve histonmodificaties, zoals H3K27ac en H3K4me3, om de transcriptie van downstream neuroprotectieve gennetwerken te orkestreren 41. Het herstel van de YY1-activiteit kan het herstel van neuronale metabole paden faciliteren en de structurele integriteit van synaptische verbindingen bevorderen. Bijgevolg verbeteren de gemoduleerde NTS-neuronen hun vermogen om perifere baroreflex-inputs te verwerken en inhiberende controle uit te oefenen over descending sympathische premotorische paden, wat de cardiovasculaire verslechtering geassocieerd met CHF verbetert42.
Ondanks deze ontdekkingen rechtvaardigen verschillende methodologische beperkingen een grondige overweging. Ten eerste steunde het huidige experimentele ontwerp op correlationele omics en expressieprofilering zonder direct functioneel bewijs. Toekomstige onderzoeken moeten gerichte genetische manipulaties bevatten, zoals knockdown of overexpressie via virale vectoren binnen de NTS, samen met empirische ChIP-seq of CUT&Ten eerste zijn er tag-assays nodig om de causale rol van YY1 definitief vast te stellen en de downstream epigenetische netwerken ervan te valideren. Ten tweede beperkt het uitsluiten van de Sham EA-cohort uit de proteomics-fase ons vermogen om moleculaire signaturen die door aspecifieke somatosensorische stimulatie worden geïnduceerd, definitief uit te sluiten. Echter wordt het vergelijken van de CHF- en EA-groepen ten opzichte van de Sham-baseline in het huidige ontwerp beschouwd als voldoende om EA-specifieke moleculaire veranderingen te isoleren. Dit is omdat alle cohorten zonder interventie, specifiek de Sham- en CHF-groepen, een strikte baseline-standaardisatie ondergingen van de dagelijkse blootstelling aan isofluraan-anesthesie, wat de meest ingrijpende aspecifieke neurologische stressconfounders effectief minimaliseerde. Bovendien toonden onze initiële functionele gegevens aan dat Sham EA geen significante cardiovasculaire of neurale activatie opwekte ten opzichte van de CHF-groep, wat suggereert dat oppervlakkige somatosensorische stimulatie zonder elektrische stroom de drempel niet bereikt die nodig is om substantiële centrale moleculaire herprogrammering aan te drijven. Ten derde ontbreken in de studie standaard controlegroepen voor niet-acupunctuurpunten, waardoor een definitieve bevestiging van de specificiteit van het HT7-acupunctuurpunt uitblijft. Bovendien blijven de voorgestelde afferente neurale paden van HT7 naar de NTS speculatief zonder directe neurale tracing of validatie via zenuwblokkades. Tot slot evalueerde de in vivo elektrofysiologie de globale NTS-activiteit op één enkel tijdstip, zonder onderscheid te maken tussen specifieke excitatoire en inhibitoire neuronale subpopulaties, en zonder langdurige neurale plasticiteit te beoordelen. Vervolgonderzoek moet deze kritische lacunes adresseren om de centrale neurobiologische mechanismen te verfijnen.
Uiteindelijk biedt dit onderzoek, door deze bevindingen te integreren en rekening houdend met hun correlationele aard, een waardevol moleculair kader dat aangeeft dat EA pathologische cardiale remodellering vermindert door de neuronale functie van de NTS te herstellen. Deze gegevens benadrukken YY1 als een zeer responsief kandidaat-doelwit voor centrale cardiovasculaire neuromodulatie, wat nieuwe neurobiologische inzichten biedt voor de klinische toepassing van acupunctuurtherapie bij de behandeling van hartfalen.
Openbaarmakingen
Alle auteurs verklaren dat zij geen belangenconflicten hebben. De auteurs verklaren daarnaast dat er geen kunstmatige intelligentietools zijn gebruikt bij enig onderdeel van het proces van manuscriptvoorbereiding.
Dankbetuigingen
Wij willen onze oprechte dank uitspreken aan alle onderzoekers die hebben bijgedragen aan deze studie en erkennen met respect het offer van de proefdieren. Dit werk werd ondersteund door het National Key Research and Development Program of China (beurzen nr. 202YFC350500 en 202YFC350502) en het Xu Nenggui University-Level Talent Support Program (beurs nr. DT24002). De financiers hadden geen rol in het ontwerp van de studie, de gegevensverzameling en -analyse, de beslissing om te publiceren of het opstellen van het manuscript.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Volwassen mannelijke Sprague-Dawley ratten | Liaoning Changsheng Biotechnology Co., Ltd. | Nr. SCXK (LIAO) 2025-001 | RGD_70508 |
| Acupunctuurnaalden | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Antifade monteermedium met DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Anti-YY1 primair antilichaam | Proteintech Group, Inc | 6281-1-Ig | AB_288164 |
| Anti-beta-actine primair antilichaam | 609-1-Ig | AB_2687938 | |
| Runder serumalbumine (BSA) | Sigma Odellie Trading Co., Ltd. | V9093 | — |
| BCA-eiwitassaykit | Shanghai Biyuntian Biotechnology Co., Ltd. | P012S | — |
| c-Fos (9F6) konijn mAb | Sai Xin Tong Biological Reagents Co., Ltd. | 250S | AB_24721 |
| Cytoscape | Het Cytoscape Consortium | versie 3.2.1 | SCR_03032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q71-02 | — |
| Electroacupunctuurapparaat | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-20A | — |
| Achtkanaals (2 × 4) micro-elektrodenarray | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| ELISA-kit (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| ELISA-kit (cTnT) | MM-0795R2 | — | |
| Kit voor verbeterde chemiluminescentie | Proteintech Group, Inc | PK1001 | — |
| Geit anti-konijn IgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_238046 |
| HRP-geconjugeerd geit anti-muis IgG secundair antilichaam | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | Het is niet mogelijk om een vertaling te genereren omdat er geen brontekst is verstrekt. Voer aub de tekst in die u vertaald wilt hebben. |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| ImageJ-software | National Institutes of Health | versie 4.0 | SCR_03070 |
| Beeldvormingssysteem | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Multi-kanaals anesthesieapparaat voor kleine dieren | RWD Life Science Co., Ltd | R510-2-10 | — |
| Microscoop | Olympus Optical Co., Ltd. | DP72 | — |
| NeuroExplorer-software | Beijing Plexon Technology Co., Ltd. | versie 5.0 | SCR_01818 |
| Offline Sorter-software | Beijing Plexon Technology Co., Ltd. | versie 4.7.2 | SCR_0012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| PowerLab standaard leding voor ledematen II systeem | AD Instruments International Trading Co., Ltd. | ML18 | — |
| PepMap Neo Trap-kolom | Thermo Fisher Scientific | — | — |
| Fosfataseremmers | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| R-software | — | versie 4.5.2 | SCR_01905 |
| RIPA-lysisbuffer | Yeasen Biotechnology Co., Ltd. | 2015ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Digitaal echographiesysteem voor kleine dieren | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| Statistische software | GraphPad-software | Versie 8.0 | SCR_02798 |
| De multichannel-acquisitie van OmniPlex systeem | Beijing Plexon Technology Co., Ltd. | versie 1.20.0 | — |
| Triton X-10 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Vanquish Neo UHPLC-systeem | Thermo Fisher Scientific | — | — |
| µPAC Neo High Throughput-kolom | Thermo Fisher Scientific | — | — |
Referenties
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.