Acht weken loopbandtraining was geassocieerd met cardiale, intestinale barrière- en Nlrp3-gerelateerde transcriptionele veranderingen, evenals een gewijzigde darmmicrobiota, in het bijzonder een toename van Akkermansia muciniphila, bij diabetische muizen.
Onderzoeksartikel
Loopbandtraining is geassocieerd met veranderingen in de intestinale barrière en de expressie van het cardiale Nlrp3-gen bij diabetische muizen
In dit artikel
Samenvatting
Samenvatting
Deze studie onderzocht de associaties tussen lichaamsbeweging, genexpressie gerelateerd aan de darmbarrière en genexpressie gerelateerd aan het cardiale Nlrp3-inflammasoom in een diabetisch muismodel. Metabole dysregulatie werd geïnduceerd bij mannelijke C57BL/6J-muizen met behulp van een vetrijk dieet in combinatie met een lage dosis streptozotocine, gevolgd door 8 weken loopbandtraining (5° helling, 12 m/min, 20–50 min/dag, 5 dagen/week). In vergelijking met sedentaire diabetische muizen vertoonden de getrainde muizen een lagere nuchtere glucosewaarde, minder insulineresistentie en lagere serumlipidewaarden, samen met een hogere colone Occludin mRNA-expressie (relatieve expressie: 0,38 ± 0,04 bij diabetische muizen versus 0,79 ± 0,05 bij getrainde muizen, P < 0,001), een lagere cardiale mRNA-expressie van Nlrp3, IL-1β, TNF-α, Col1a1 en Tgfb1, en een lagere Bax/Bcl-2 mRNA-ratio (3,06 ± 0,19 versus 1,48 ± 0,10, P < 0,001). Fecale qPCR-analyse van zes geselecteerde taxa toonde aan dat lichaamsbeweging geassocieerd was met een verhoogde relatieve abundantie van Akkermansia muciniphila (0,31 ± 0,04 naar 0,84 ± 0,07) en Lactobacillus (0,48 ± 0,05 naar 1,01 ± 0,07) en een afname van Escherichia coli (3,84 ± 0,33 naar 1,68 ± 0,13, P < 0,01). Bij getrainde muizen was de abundantie van A. muciniphila negatief gecorreleerd met de cardiale Nlrp3 mRNA-expressie (R = −0,81, P = 0,0046). Deze correlationele bevindingen wijzen op associaties tussen lichaamsbeweging, cardiale en intestinale transcriptionele veranderingen en geselecteerde darmmicrobiële taxa bij diabetische muizen, maar stellen geen causale relaties vast. Alle moleculaire bevindingen zijn beperkt tot veranderingen op mRNA-niveau en tonen geen darmbarrièrefunctie, inflammasoomactivatie, myocardiale fibrose, apoptose of andere functionele effecten of effecten op eiwitniveau aan.
Inleiding
Diabetes mellitus is een groeiende wereldwijde bedreiging voor de gezondheid, en diabetische cardiale complicaties blijven ernstige aandoeningen met beperkte specifieke therapieën1,2,3,4. Training door middel van lichaamsbeweging kan de hartfunctie verbeteren in diabetische diermodellen5,6, maar de onderliggende mechanismen, in het bijzonder die welke betrekking hebben op het darmmicrobioom en de darmbarrière, zijn nog onvoldoende begrepen.
De darmmicrobiota reguleert het metabolisme en de immuniteit van de gastheer7. Bij diabetes kunnen darmdysbiose en een aangetaste barrière-integriteit de translocatie van lipopolysachariden (LPS) verhogen, TLR4-gemedieerde ontsteking bevorderen en myocardiale beschadiging verergeren8,9. Deze uit de darm afkomstige inflammatoire belasting kan bijdragen aan de progressie van diabetische complicaties, waaronder cardiale dysfunctie. Nuttige bacteriën zoals Akkermansia en Faecalibacterium kunnen verminderd zijn, terwijl bacteriën zoals E. coli kunnen toenemen10,11. Dergelijke microbiële veranderingen kunnen bijdragen aan lokale darmontsteking en systemische endotoxemie, wat potentieel verre organen, waaronder het hart, beïnvloedt. Het NLRP3-inflammasoom is een belangrijke mediator van cardiale ontsteking bij diabetische cardiale pathologie, en de activatie ervan kan worden gemoduleerd door microbiële metabolieten uit de darm12,13. Bepaalde microbiële producten, in het bijzonder kortketenige vetzuren en LPS, hebben tegengestelde effecten op de priming en assemblage van NLRP3, wat wijst op een potentiële associatie tussen de microbiële omgeving van de darm en de inflammatoire status van het myocard.
Lichaamsbeweging kan de darmmicrobiota veranderen en de darmbarrièrefunctie verbeteren14,15, maar de verbanden tussen lichaamsbeweging, de genexpressie gerelateerd aan de darmbarrière en de genexpressie gerelateerd aan het cardiale NLRP3-inflammasoom in diabetische modellen zijn nog onvoldoende begrepen. Het darmepitheel dient als interface tussen luminale microben en de systemische circulatie en kan daarom bijdragen aan de verbanden tussen veranderingen in de darmmicrobiota en cardiale ontstekingsreacties. Er is echter nog geen direct experimenteel bewijs dat een causaal verband vaststelt tussen door lichaamsbeweging geïnduceerde veranderingen in de darmbarrière, NLRP3-inflammasoomactivatie en cardiale bescherming in diabetische modellen.
Daarom was de hypothese dat loopbandtraining geassocieerd zou zijn met cardiale transcriptionele veranderingen, gewijzigde geselecteerde darmmicrobiële taxa, behoud van genexpressie gerelateerd aan de intestinale barrière en verminderde cardiale genexpressie gerelateerd aan het NLRP3-inflammasoom bij diabetische muizen. Een diabetisch muismodel werd tot stand gebracht met behulp van een vetrijk dieet in combinatie met een lage dosis streptozotocine, gevolgd door een 8-weekse interventie met loopbandtraining. De evaluaties omvatten metabole parameters, colone Occludine mRNA-expressie, cardiale genexpressie gerelateerd aan het NLRP3-inflammasoom en markers voor inflammatoire, fibrotische en apoptotische genexpressie. Geselecteerde darmmicrobiële taxa werden eveneens gekwantificeerd om trainingsgerelateerde veranderingen in het darmmicrobiota te beoordelen. Correlatieanalyses werden gebruikt om associaties te onderzoeken tussen de geselecteerde darmmicrobiële taxa, genexpressie gerelateerd aan de intestinale barrière en cardiale transcriptionele markers. Deze analyses waren bedoeld om associaties te identificeren in plaats van een causaal darmbarrière-NLRP3-mechanisme vast te stellen.
Protocol
Alle dierprocedures werden uitgevoerd in een dierfaciliteit die is geaccrediteerd door een internationale organisatie voor de accreditatie van laboratoriumdierenzorg. Het protocol is beoordeeld en goedgekeurd door de Institutional Animal Care and Use Committee (IACUC; goedkeurings-ID: VS212500103) van de faciliteit. De experimenten werden uitgevoerd in een goedgekeurde externe faciliteit, omdat de eigen instelling niet beschikte over een erkende dierfaciliteit voor dit specifieke model.
Vestiging van het diabetische muismodel
Mannelijke C57BL/6J muizen (8 weken oud, specifiek-pathogeen-vrij, lichaamsgewicht 20–22 g) werden gedurende 1 week geacclimatiseerd onder gecontroleerde omstandigheden (22 ± 2 °C, 50 ± 10% relatieve vochtigheid, 12 u licht/donker-cyclus) met ad libitum toegang tot standaard voer en water.
Na acclimatisatie werden de muizen met behulp van een randomisatietabel willekeurig toegewezen aan een normale controlegroep (Control, n = 10) of een groep voor diabetesinductie. Experimentele procedures en uitkomstmaten werden uitgevoerd door onderzoekers die blind waren voor de groepsindeling. De dieren werden met vieren per kooi gehuisvest in standaard polycarbonaatkooien met verrijkte bedding onder specifiek-pathogeen-vrije omstandigheden. Alleen mannelijke muizen werden gebruikt om potentiële variabiliteit in verband met oestruscycli te minimaliseren en omdat het high-fat diet/STZ-model consistentere metabole fenotypes opleverde bij mannetjes.
Muizen bij wie diabetes werd geïnduceerd, kregen gedurende 4 weken een vetrijk dieet (60% kcal uit vet), gevolgd door intraperitoneale injecties van streptozotocine (STZ; 30 mg/kg lichaamsgewicht) gedurende 5 opeenvolgende dagen. STZ werd vers opgelost in 0,1 mol/L citraatbuffer (pH 4,5), lichtbeschermd bewaard en binnen 15 min na bereiding toegediend. Controlemuizen ontvingen gelijke volumes citraatbuffer. Eén week na de laatste injectie werd de nuchtere bloedglucosewaarde (FBG) gemeten in bloed uit de staartpunt na een vastenperiode van 6 u. Muizen met een FBG ≥ 11,1 mmol/L werden als diabetisch beschouwd. Deze muizen bleven nog 4 weken lang op het vetrijke dieet om de ontwikkeling van diabetes-gerelateerde veranderingen in de genexpressie mogelijk te maken.
In totaal ondergingen 35 muizen modelinductie, waarvan 28 voldeden aan het diabetescriterium. Het lichaamsgewicht en de voedselinname werden wekelijks gemonitord, maar werden niet gebruikt als exclusiecriteria. Geen enkele dier is gestorven of uitgesloten tijdens de modellerings- of interventiefasen. Succesvol gemodelleerde muizen werden willekeurig onderverdeeld in een diabetesgroep (DM, n = 10) en een bewegingsinterventiegroep (DM+Ex, n = 10). De uiteindelijke steekproefomvang was n = 10 per groep voor alle analyses, waarbij elke individuele muis als experimentele eenheid diende.
Interventie met loopbandtraining
Muizen in de DM+Ex-groep voerden loopbandtraining uit bij een helling van 5° en 12 m/min, 5 dagen/week gedurende 8 weken. Alle trainingssessies vonden plaats tussen 9:00 en 11:00 uur. Voorafgaand aan de interventie werden de muizen 3 dagen lang geacclimatiseerd aan het lopen op de loopband bij 6 m/min gedurende 5 min/dag bij een helling van 0°. Elke trainingssessie omvatte een warming-up van 5 min bij 6 m/min en een cooling-down van 5 min bij 6 m/min. Er werd gebruikgemaakt van lichte stimulatie om het lopen aan te moedigen; elektrische stimulatie werd niet gebruikt.
De dagelijkse loopduuren waren 20 min in week 1, 25 min in week 2, 30 min in week 3, 35 min in week 4, 40 min in week 5, 45 min in week 6 en 50 min in de weken 7–8. Controlemuizen en DM-muizen werden gedurende gelijke perioden op stationaire loopbanden geplaatst om te controleren voor hantering en blootstelling aan de omgeving. Een vooraf vastgesteld exclusiecriterium was het niet voltooien van meer dan 80% van de voorgeschreven trainingssessies. Geen enkel dier voldeed aan dit criterium; alle dieren voltooiden de voorgeschreven trainingssessies en er werden geen bijwerkingen waargenomen.
Monstername
Twaalf uur na de laatste trainingssessie werden de muizen 6 h gevast en geanestheseerd via isofluraan-inhalatie (3% inductie en 1,5–2% onderhoud in 100% O₂ bij 1 L/min). Er werd ongeveer 500 µL bloed afgenomen uit de retro-orbitale veneuze plexus, dat 30 min bij kamertemperatuur werd gelaten om te stollen en vervolgens 15 min gecentrifugeerd werd bij 3.000 × g bij 4 °C. Het verkregen serum werd bewaard bij −80 °C.
De muizen werden vervolgens geëuthanaseerd door middel van cervicale dislocatie onder diepe anesthesie. De harten werden snel verwijderd en gespoeld met ijskoud fosfaatgebufferde zoutoplossing (PBS). Weefsel van de linker ventrikel werd geïsoleerd; één deel werd direct ingevroren in vloeibare stikstof en bewaard bij −80 °C voor RNA-extractie, en het resterende weefsel werd gefixeerd in 4% paraformaldehyde. Ongeveer 1 cm distaal colonweefsel werd verzameld, gespoeld met PBS, direct ingevroren en bewaard bij −80 °C. Verse fecesmonsters werden tussen 9:00 en 10:00 uur direct uit het rectum verzameld om contaminatie in de kooi te minimaliseren, overgebracht naar steriele buisjes en binnen 15 min na verzameling bewaard bij −80 °C.
Biochemische serummetingen
De FBG werd gemeten met een bloedglucosemetingssysteem. Seruminsuline werd bepaald via een enzyme-linked immunosorbent assay, en het totaalcholesterol en de triglyceriden werden gemeten met een geautomatiseerde biochemische analyzer. De insulineresistentie werd berekend met het homeostatic model assessment: HOMA-IR = FBG (mmol/L) × insuline (mIU/L)/22,5.
RNA-extractie en real-time kwantitatieve PCR uit myocardweefsel
Ongeveer 30 mg weefsel van de linker ventrikel werd gehomogeniseerd in een RNA-extractiereagens op basis van fenol-guanidinium, waarna totaal RNA werd geëxtraheerd volgens het protocol van het reagens. De RNA-concentratie en -zuiverheid werden spectrophotometrisch bepaald, waarbij een A260/A280-ratio van 1,8–2,0 als acceptabel werd beschouwd. Totaal RNA (1 µg) werd door reverse-transcriptie omgezet in complementair DNA (cDNA).
Kwantitatieve PCR (qPCR) werd uitgevoerd in een reactiemengsel van 20 µL bestaande uit een fluorescente DNA-bindende qPCR-mastermix, 0,4 µmol/L van elk de forward- en reverse-primers, en 2 µL cDNA-template. De amplificatiecondities waren 95 °C gedurende 30 s, gevolgd door 40 cycli van 95 °C gedurende 5 s en 60 °C gedurende 34 s. Smeltcurve-analyse werd uitgevoerd over het bereik 65–95 °C om de specificiteit van de amplificatie te verifiëren. Alle reacties werden in dubbeltoevoeging uitgevoerd, waarbij controles zonder template en zonder reverse-transcriptie werden opgenomen. De amplificatie-efficiënties voor alle primerparen varieerden van 90–105%. Primers voor Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 en Gapdh staan vermeld in Tabel 1. De relatieve genexpressie werd berekend met de 2−ΔΔCt-methode en uitgedrukt als fold change ten opzichte van de controlegroep.
DNA-extractie en qPCR-kwantificering van fecale microbiota
Totaal microbiële DNA werd geëxtraheerd uit fecesmonsters met behulp van een protocol voor feces-DNA-extractie. De relatieve abundanties van zes geselecteerde bacteriële taxa—Faecalibacterium prausnitzii, Akkermansia muciniphila, het genus Lactobacillus, het genus Bifidobacterium, Escherichia coli en het genus Desulfovibrio—werden bepaald via qPCR met gebruik van taxon-specifieke primers zoals vermeld in Tabel 1. Universele bacteriële 16S rRNA-primers werden gebruikt als referentie voor de totale bacteriële abundantie.
De relatieve abundantie werd berekend met de 2−ΔΔCt methode, waarbij het totale bacteriële 16S rRNA als referentie diende en de resultaten werden genormaliseerd ten opzichte van de controlegroep. Voor elk target werden standaardcurven gegenereerd met seriële verdunningen van plasmide-DNA bij bekende concentraties om de amplificatie-efficiëntie te verifiëren. Alle reacties werden in dubbeltoevoeging uitgevoerd met een smeltcurve-analyse. Omdat bacteriële taxa verschillen in het aantal kopieën van het 16S rRNA-gen, werden de resultaten gerapporteerd als relatieve abundantie via 2−ΔΔCt in plaats van als absolute kopie-aantallen.
Beoordeling van de colone Occludine-expressie
Ongeveer 30 mg colonweefsel werd verwerkt voor totale RNA-extractie en cDNA-synthese zoals hierboven beschreven. De mRNA-expressie van Occludin werd gemeten via qPCR met behulp van de volgende primers: forward, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; reverse, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh werd gebruikt als interne referentie, en de relatieve expressie werd berekend met de 2−ΔΔCt methode.
Statistische analyse
Gegevens werden gepresenteerd als gemiddelde ± standaarddeviatie (SD). Normaliteit werd beoordeeld met de Shapiro-Wilk-toets en homogeniteit van variantie werd beoordeeld met de toets van Levene. Tussengroepgegevens die voldeden aan de parametrische aannames werden geanalyseerd met een eenweg-variantieanalyse (ANOVA), gevolgd door de Tukey's honestly significant difference (HSD)-toets voor post-hoc paarsgewijze vergelijkingen. Vergelijkingen tussen twee groepen werden uitgevoerd met een ongepaarde tweezijdige Student's t-toets.
Spearman's rangcorrelatie werd gebruikt om associaties tussen variabelen te beoordelen. Voor de correlatieheatmap werden partiële Spearman-correlaties berekend, waarbij werd gecontroleerd voor de experimentele groep. P-waarden werden gecorrigeerd voor meervoudige vergelijkingen met behulp van de Benjamini-Hochberg-procedure voor de false discovery rate (FDR), waarbij een FDR-gecorrigeerde P < 0,05 als statistisch significant werd beschouwd. Effectgroottes (Cohen's f voor ANOVA en r voor correlaties) en 95% betrouwbaarheidsintervallen voor belangrijke gemiddelde verschillen werden gerapporteerd waar van toepassing. Alle statistische analyses werden uitgevoerd met statistische computersoftware (versie 4.2.0).
Resultaten
Lopbandtraining was geassocieerd met de verbetering van metabole abnormaliteiten bij diabetische muizen
Vergeleken met de controlegroep vertoonden diabetische muizen een significant hogere nuchtere bloedglucosewaarde (18,23 ± 0,61 vs. 6,03 ± 0,21 mmol/L, P < 0,001), seruminsuline (16,30 ± 1,04 vs. 8,23 ± 0,38 mIU/L, P < 0,001), HOMA-IR (13,19 ± 1,18 vs. 2,21 ± 0,17, P < 0,001), totaal cholesterol (4,62 ± 0,23 vs. 2,01 ± 0,09 mmol/L, P < 0,001) en triglyceriden (2,12 ± 0,15 vs. 0,80 ± 0,08 mmol/L, P < 0,001). Na de 8-weekse interventie met loopbandtraining daalden deze parameters respectievelijk naar 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L en 1,20 ± 0,14 mmol/L vergeleken met diabetische muizen (P < 0,01 of P < 0,001); de meeste waarden bleven echter hoger dan die in de controlegroep (Figuur 1A–E). Eenweg-ANOVA toonde significante groepseffecten aan voor alle parameters (alle F(2,27) > 25,0, P < 0,001).
Trainingstherapie was geassocieerd met een hogere colone Occludin mRNA-expressie en een lagere expressie van hartgerelateerde inflammasoomgenen
Bij diabetische muizen was de mRNA-expressie van colone Occludin ongeveer 62% lager dan in de controlegroep (0,38 ± 0,04 vs. 1,00 ± 0,06, P < 0,001). Gelijktijdig nam de mRNA-expressie van cardiale Nlrp3, Il1b en Tnfa respectievelijk toe tot 5,6-voudig, 6,5-voudig en 5,1-voudig ten opzichte van de controlewaarden (allemaal P < 0,001). Na de bewegingsinterventie steeg de mRNA-expressie van Occludin naar 0,79 ± 0,05 (P < 0,001 vs. diabetische muizen), terwijl de mRNA-expressie van Nlrp3, Il1b en Tnfa respectievelijk afnam naar 2,30 ± 0,21, 2,66 ± 0,25 en 2,14 ± 0,17 (allemaal P < 0,001 vs. diabetische muizen; Figuur 2A–D).
Lichaamsbeweging was geassocieerd met een lagere genexpressie gerelateerd aan myocardfibrose en apoptose
De diabetische groep vertoonde een verhoogde cardiale expressie van de fibrose-gerelateerde genen Col1a1 (4,46 ± 0,29-voudig, P < 0,001) en Tgfb1 (4,17 ± 0,24-voudig, P < 0,001), samen met een hogere Bax/Bcl2 mRNA-ratio (3,06 ± 0,19, P < 0,001) vergeleken met de controlegroep. Nastreding van training verminderde de mRNA-expressie van Col1a1 en Tgfb1 tot respectievelijk 2,02 ± 0,16 en 1,92 ± 0,16 (beide P < 0,001 t.o.v. diabetische muizen), en de Bax/Bcl2 mRNA-ratio nam af tot 1,48 ± 0,10 (P < 0,001 t.o.v. diabetische muizen; Figuur 3A–C).
Lichaamsbeweging was geassocieerd met veranderingen in geselecteerde darmmicrobiële taxa bij diabetische muizen
Vergeleken met de controlegroep vertoonden diabetische muizen significant lagere relatieve abundanties van vier geselecteerde bacteriële taxa: F. prausnitzii (0,25 ± 0,03 vs. 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 vs. 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 vs. 0,99 ± 0,04) en Bifidobacterium (0,56 ± 0,06 vs. 1,00 ± 0,06; alle P < 0,001). In contrast waren de relatieve abundanties van E. coli (3,84 ± 0,33 vs. 0,99 ± 0,08) en Desulfovibrio (3,07 ± 0,26 vs. 0,99 ± 0,07) significant hoger (beide P < 0,001). Een exercise-interventie was geassocieerd met significant hogere relatieve abundanties van F. prausnitzii, A. muciniphila, Lactobacillus en Bifidobacterium (P < 0,01 of P < 0,001), waarbij A. muciniphila 0,84 ± 0,07 bereikte. Gelijktijdig namen de relatieve abundanties van E. coli en Desulfovibrio af tot respectievelijk 1,68 ± 0,13 en 1,52 ± 0,08 (beide P < 0,001 vs. diabetische muizen; Figuur 4A–F).
Geselecteerde microbiële veranderingen werden gecorreleerd met genexpressie in het hart en het colon
Een correlatieanalyse van Spearman werd uitgevoerd om de associaties te beoordelen tussen de relatieve abundanties van geselecteerde microbiële taxa en genexpressiemarkers in hart- en colonweefsels (Figuur 5A). De relatieve abundantie van A. muciniphila was negatief gecorreleerd met cardiaal Nlrp3 mRNA (R = −0.81, P = 0.0046) en Tnfa mRNA (R = −0.80, P = 0.0054). De relatieve abundantie van E. coli was positief gecorreleerd met de colone Occludin mRNA-expressie (R = 0.66, P = 0.036; Figuur 5B–D). Deze bevindingen toonden associaties aan tussen geselecteerde darmmicrobiële taxa en cardiale en colone transcriptionele markers, maar stelden geen causale relaties vast.
DATABESCHIKBAARHEID:
De datasets die tijdens de huidige studie zijn gegenereerd en/of geanalyseerd, zijn op redelijk verzoek verkrijgbaar via de corresponderende auteur.
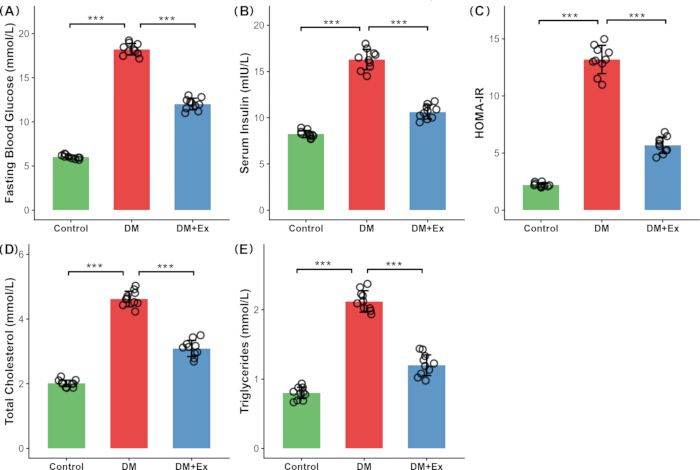
Figuur 1: Effecten van loopbandtraining op metabole parameters bij diabetische muizen. (A) Nuchtere bloedglucose. (B) Seruminsuline. (C) HOMA-IR. (D) Totaal cholesterol. (E) Triglyceriden in de Control-, DM- en DM+Ex-groepen. Gegevens worden weergegeven als gemiddelde ± SD (n = 10 per groep), waarbij individuele datapunten over elke staaf zijn geplaatst. Vergelijkingen tussen groepen werden uitgevoerd met behulp van eenweg-ANOVA gevolgd door Tukey's post hoc-test. *P < 0.05, **P < 0.01, ***P < 0.001; ns = niet significant. Afkortingen: DM = diabetesmodel; Ex = training; HOMA-IR = homeostatic model assessment of insulin resistance; SD = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
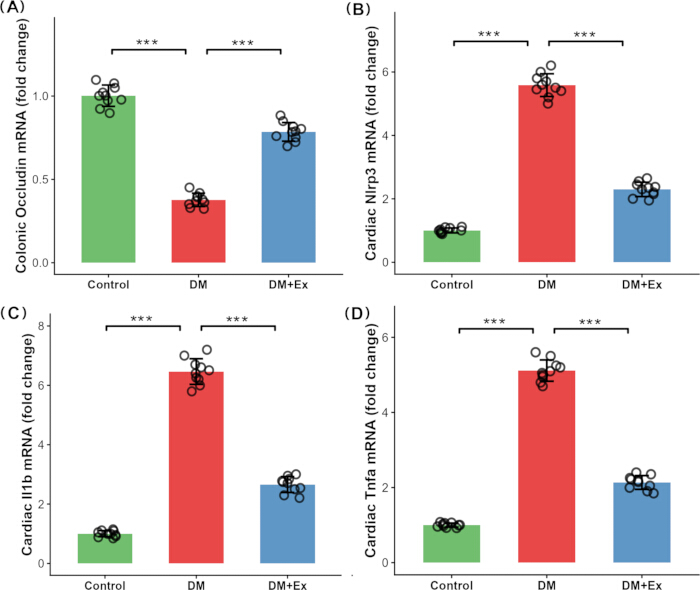
Figuur 2: Effecten van loopbandtraining op de genexpressie gerelateerd aan de darmbarrière en het cardiale inflammasoom bij diabetische muizen. (A) Relatieve colone Occludin mRNA-expressie. (B) Relatieve cardiale Nlrp3 mRNA-expressie. (C) Relatieve cardiale Il1b mRNA-expressie. (D) Relatieve cardiale Tnfa mRNA-expressie. Genexpressie werd genormaliseerd naar Gapdh en uitgedrukt als fold change ten opzichte van de controlegroep. Gegevens worden gepresenteerd als gemiddelde ± SD (n = 10 per groep). *P < 0.05, **P < 0.01, ***P < 0.001. Afkortingen: IL-1β = interleukine-1β; TNF-α = tumornecrosefactor-α; SD = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
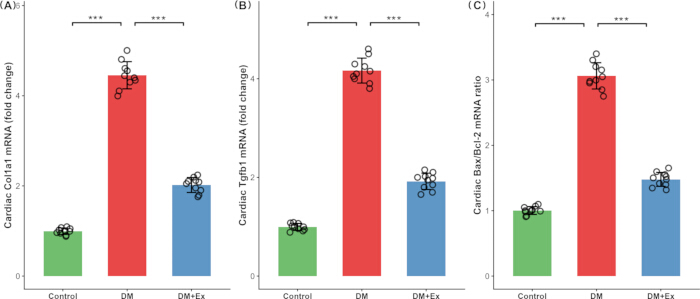
Figuur 3: Effecten van loopbandtraining op de genexpressie gerelateerd aan myocardiale fibrose en apoptose bij diabetische muizen. (A) Relatieve cardiale Col1a1 mRNA-expressie. (B) Relatieve cardiale Tgfb1 mRNA-expressie. (C) Bax/Bcl2 mRNA-ratio. Genexpressie werd genormaliseerd naar Gapdh en uitgedrukt als fold change ten opzichte van de controlegroep. De Bax/Bcl2 ratio werd berekend op basis van relatieve mRNA-expressiewaarden. Gegevens worden weergegeven als gemiddelde ± SD (n = 10 per groep), waarbij individuele datapunten over elke staaf zijn geplaatst. *P < 0.05, **P < 0.01, ***P < 0.001. Afkortingen: Col1a1 = collagen type I alpha 1; Tgfb1 = transforming growth factor-β1; Bax = BCL2-associated X protein; Bcl2 = B-cell lymphoma 2; SD = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
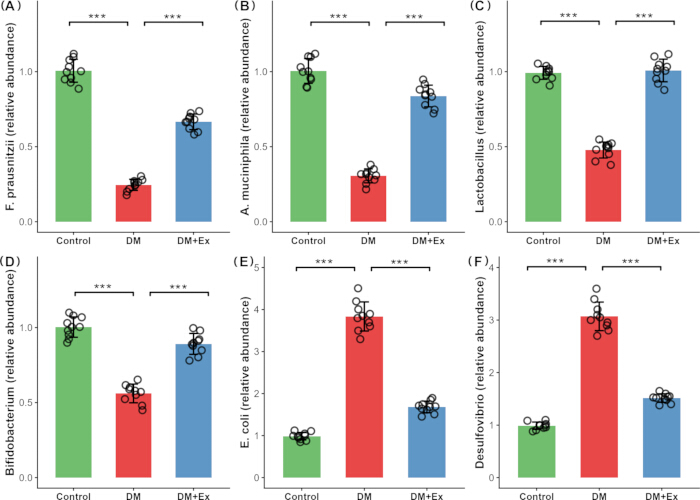
Figuur 4: Effecten van loopbandtraining op de relatieve abundanties van geselecteerde darmmicrobiële taxa bij diabetische muizen. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Relatieve abundanties werden bepaald via qPCR met taxon-specifieke 16S rRNA-targets ten opzichte van het totale bacteriële 16S rRNA en genormaliseerd naar de controlegroep. Gegevens worden gepresenteerd als gemiddelde ± SD (n = 10 per groep). *P < 0.05, **P < 0.01, ***P < 0.001. Afkorting: SD = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
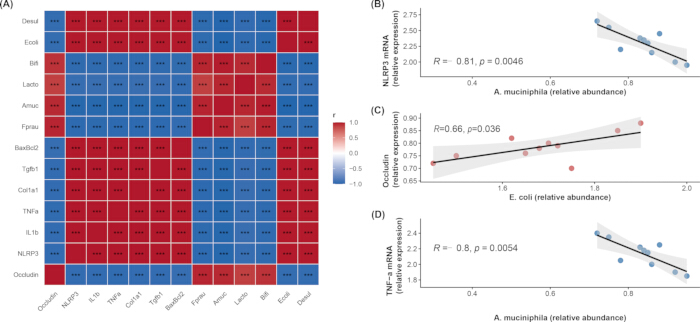
Figuur 5: Correlatieanalyse tussen geselecteerde darmmicrobiële taxa en genexpressieparameters in het hart en het colon. (A) Heatmap die de correlatiecoëfficiënten van Spearman laat zien tussen geselecteerde bacteriële taxa en colonic Occludin mRNA, cardiac Nlrp3, Il1b en Tnfa mRNAs, Col1a1 en Tgfb1 mRNAs, en de Bax/Bcl2 mRNA ratio. Correlaties werden berekend met gegevens van alle drie de groepen (n = 30) als partiële Spearman-correlaties, gecorrigeerd voor de experimentele groep. De kleurenschaal loopt van blauw voor negatieve correlaties tot rood voor positieve correlaties. Asterisken in de heatmap geven significantie aan na FDR-correctie (*P < 0.05, **P < 0.01, ***P < 0.001). (B) Correlatie tussen de relatieve abundantie van A. muciniphila en de cardiac Nlrp3 mRNA-expressie binnen de DM+Ex groep. (C) Correlatie tussen de relatieve abundantie van E. coli en de colonic Occludin mRNA-expressie binnen de DM+Ex groep. (D) Correlatie tussen de relatieve abundantie van A. muciniphila en de cardiac Tnfa mRNA-expressie binnen de DM+Ex groep. Elk punt representeert een individuele muis. Lineaire regressielijnen en 95% betrouwbaarheidsintervallen zijn weergegeven ter visualisatie. Afkortingen: DM = diabetesmodel; Ex = exercise (beweging); FDR = false discovery rate. Klik hier om een grotere versie van deze figuur te bekijken.
| Gen/Microbieel | Forward-primer | Reverse-primer |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Totale bacteriën (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabel 1: Primersequenties gebruikt voor real-time kwantitatieve PCR.
Discussie
In de huidige studie werd een diabetisch muismodel, geïnduceerd door een vetrijk dieet in combinatie met een lage dosis STZ, gebruikt om bewegingsgerelateerde metabole, intestinale, cardiale en microbiële veranderingen te evalueren. Acht weken loopbandtraining waren geassocieerd met verbeterde metabole parameters, een hogere colone Occludin mRNA-expressie, een lagere cardiale expressie van genen gerelateerd aan het Nlrp3-inflammasoom en een lagere genexpressie gerelateerd aan myocardiale ontsteking, fibrose en apoptose. Beweging was ook geassocieerd met veranderingen in de relatieve abundanties van geselecteerde gut microbial taxa. Collectief suggereren deze bevindingen dat bewegingsgerelateerde cardiale transcriptionele veranderingen mogelijk gerelateerd zijn aan wijzigingen in de expressie van genen gerelateerd aan de darmbarrière en geselecteerde gut microbial taxa, hoewel causaliteit niet is vastgesteld.
Zoals verwacht voor het diabetische model ontwikkelden de muizen uitgesproken metabole stoornissen, waaronder hyperglykemie, hyperinsulinemie, insulineresistentie en dyslipidemie, in overeenstemming met het goed vastgestelde pathologische paradigma16,17. Het 8-weekse trainingsregime was geassocieerd met reducties van ongeveer 34% in de nuchtere glucosewaarde en 57% in HOMA-IR, wat duidt op een gedeeltelijke verbetering van de insulineresistentie. Op myocardiaal niveau was training geassocieerd met reducties van 40%–60% in de expressie van pro-inflammatoire (Tnfa, Il1b), profibrotische (Tgfb1, Col1a1) en apoptose-gerelateerde (Bax/Bcl2) mRNA-markers, in overeenstemming met eerdere studies die aerobe training koppelen aan AMPK-activatie en NF-κB-inhibitie18,19. Geen van deze parameters keerde echter terug naar de Control-waarden, wat aangeeft dat de 8-weekse interventie onvoldoende was om het gevestigde diabetes-geassocieerde transcriptionele fenotype te normaliseren, wat mogelijk gerelateerd kan zijn aan aanhoudende glykemische geheugeneffecten20.
De mRNA-expressie van colonis Occludin was ongeveer 62% lager bij diabetische muizen, wat wijst op een verminderde expressie van genen gerelateerd aan de darmbarrière. Gelijktijdig nam de mRNA-expressie van cardiac Nlrp3, Il1b en Tnfa respectievelijk met 5,6-voud, 6,5-voud en 5,1-voud toe. Het NLRP3-inflammasoom is een belangrijke sensor van het aangeborene immuunsysteem en is geïmpliceerd in diabetische cardiale pathologie. Hyperglykemie kan de myocardiale Nlrp3-genexpressie verhogen via reactieve zuurstofverbindingen (ROS) en thioredoxine-interagerende proteïne (TXNIP)-paden, met daaropvolgende effecten op IL-1β- en IL-18-gerelateerde inflammatoire signalering21,22. Een verhoogde systemische translocatie van lipopolysaccharide (LPS) als gevolg van verstoring van de darmbarrière is ook beschreven als een upstream stimulus voor NLRP3-priming23. LPS kan de expressie van Nlrp3 en pro-Il1b verhogen via de TLR4/MyD88/NF-κB-signaleringsas, wat het eerste signaal levert dat vereist is voor inflammasoom-priming24. In het huidige diabetische model werd een verhoogde relatieve abundantie van E. coli waargenomen, samen met een verminderde colone Occludin mRNA-expressie en een verhoogde cardiac inflammasoom-gerelateerde genexpressie. Deze parallelle veranderingen zijn verenigbaar met een mogelijk darm-geassocieerd inflammatoir pad, maar tonen geen verhoogde LPS-translocatie of een causaal darm-hartmechanisme aan.
De exercise-interventie was geassocieerd met een toename van de colone Occludin mRNA-expressie tot ongeveer 79% van de Control-waarde, terwijl de cardiale Nlrp3, Il1b en Tnfa mRNA-expressie respectievelijk afnamen tot ongeveer 2,3-, 2,7- en 2,1-voud van de Control-waarden. Deze bevindingen wijzen op een associatie tussen een hogere expressie van genen gerelateerd aan de darmbarrière en een lagere expressie van cardiale inflammatoire genen na exercise. Eerdere studies hebben gesuggereerd dat exercise de darmbarrièrefunctie kan ondersteunen door een verhoogde mucusproductie, regulatie van tight junction-eiwitten en een verbeterde intestinale perfusie25,26,27,28. De huidige gegevens waren echter beperkt tot mRNA-metingen en bevestigden daarom deze functionele mechanismen niet.
Gerichte analyse van de darmmicrobiota toonde aan dat lichaamsbeweging geassocieerd was met een gedeeltelijke omkeer van diabetes-gerelateerde veranderingen in de relatieve abundanties van geselecteerde taxa, in het bijzonder een toename van A. muciniphila en een afname van E. coli. Deze wederzijdse veranderingen zijn consistent met eerder beschreven associaties tussen deze taxa en barrièreonderhoud en endotoxine-gerelateerde processen29,30,31. Omdat echter slechts geselecteerde taxa werden gekwantificeerd, moeten de bevindingen worden geïnterpreteerd als met lichaamsbeweging geassocieerde veranderingen in de relatieve abundanties van specifieke bacteriën, en niet als een volledige remodellering van de darmmicrobiota.
Correlatieanalyse identificeerde verder associaties tussen geselecteerde microbiële taxa en transcriptionele markers. Binnen de groep met exercise-interventie was de abundantie van A. muciniphila negatief gecorreleerd met de cardiale Nlrp3 (R = −0.81, P = 0.0046) en Tnfa (R = −0.80, P = 0.0054) mRNA-expressie. In contrast was de abundantie van E. coli positief gecorreleerd met de colone Occludin mRNA-expressie (R = 0.66, P = 0.036; Figuur 5C). De positieve associatie tussen E. coli en Occludin mRNA was in strijd met de initiële hypothese en geeft aan dat de relatie tussen geselecteerde darmmicrobiële taxa en genexpressie gerelateerd aan de intestinale barrière niet werd verklaard door een eenvoudig lineair model. Deze correlaties waren consistent met associaties tussen exercise, geselecteerde microbiële taxa en transcriptionele markers van de gastheer, maar stelden geen causaliteit vast. Eerdere bewijzen die aantonen dat depletie van A. muciniphila de intestinale permeabiliteit en metabole endotoxemie kan verhogen32, samen met bewijzen die NLRP3 impliceren in diabetische cardiale pathologie33, bieden een biologische context voor deze associaties. Desalniettemin heeft de huidige studie niet direct aangetoond dat een toename van A. muciniphila de mucusbarrièrefunctie verbeterde, LPS-translocatie verminderde of TLR4/NLRP3-gemedieerde cardiale inflammatie attenuationeerde.
Deze studie kende verschillende beperkingen. Ten eerste werd gerichte 16S rRNA qPCR gebruikt om zes representatieve bacteriële taxa te kwantificeren, in plaats van 16S amplicon sequencing of metagenomische sequencing. Bijgevolg is er geen uitgebreide beoordeling van de structuur van de gut microbiome-gemeenschap en de functionele capaciteit uitgevoerd, waardoor bredere verschuivingen in de gemeenschap of functionele pathways niet konden worden geëvalueerd. De bevindingen werden daarom beschreven als veranderingen in de relatieve abundantie van geselecteerde taxa in plaats van een remodeling van de gut microbiota. Ten tweede werden circulerende LPS-niveaus, plasmaconcentraties van SCFA en de intestinale permeabiliteit niet direct gemeten, wat de mechanistische interpretatie beperkt. Ten derde vertrouwde de studie primair op mRNA-expressiegegevens. Er is geen validatie op eiwitniveau of functionele validatie uitgevoerd van de barrière-integriteit, inflammasoomactivatie, fibrose en apoptose. Bijgevolg waren de conclusies beperkt tot transcriptionele veranderingen en werden functionele effecten of effecten op eiwitniveau niet vastgesteld. Ten vierde werd slechts één regime van exercise-intensiteit en -duur onderzocht, wat de conclusies beperkt met betrekking tot een optimaal exercise-voorschrift voor diabetes-geassocieerde cardiale transcriptionele veranderingen. Ten vijfde werden alleen mannelijke muizen bestudeerd, en de bevindingen zijn mogelijk niet generaliseerbaar naar vrouwtjes. Ten zesde beperkte de afwezigheid van een gezonde exercise-controlegroep de mogelijkheid om diabetes-specifieke reacties te onderscheiden van de fysiologische effecten van exercise. Ten zevende werden er geen echocardiografie en cardiale histopathologie uitgevoerd; daarom werd het model beschreven als een diabetisch muismodel in plaats van een bevestigd model voor diabetische cardiomyopathie, en waren alle cardiale bevindingen beperkt tot transcriptionele veranderingen. Ten slotte kunnen sommige waargenomen correlaties een weerspiegeling zijn van groepsscheiding in plaats van biologische relaties binnen de groep, hoewel partiële correlatieanalyse met correctie voor groep is gebruikt om dit risico te beperken.
Samenvattend waren 8 weken loopbandtraining geassocieerd met metabole verbetering en transcriptionele veranderingen in het hart en het colon bij diabetische muizen. Deze veranderingen traden gelijktijdig op met verschuivingen in de relatieve abundantie van geselecteerde microbiële taxa in de darm, in het bijzonder een toename van A. muciniphila en een afname van E. coli. De waargenomen associaties ondersteunen verder onderzoek naar de relaties tussen lichaamsbeweging, geselecteerde microbiële taxa in de darm, genexpressie gerelateerd aan de darmbarrière en transcriptie gerelateerd aan het cardiale inflammasoom. Toekomstige studies met uitgebreidere microbioomprofilering, kwantificering van SCFA, assays voor intestinale permeabiliteit en validatie op eiwitniveau of histologisch niveau zullen nodig zijn om de voorgestelde mechanismen te testen en causaliteit vast te stellen. Aanvullende interventiestudies met fecale microbiotatransplantatie, supplementatie met A. muciniphila of NLRP3-remming zouden vereist zijn om te bepalen of de waargenomen associaties causale paden weerspiegelen.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende financiële belangen of persoonlijke relaties zijn die invloed zouden hebben kunnen uitoefenen op het in dit artikel beschreven werk. Er zijn geen AI-tools gebruikt bij de voorbereiding van dit manuscript of de figuren.
AUTEURBIJDRAGEN:
H.H. en G.Z. hebben de studie bedacht en ontworpen. H.H., G.Z. en Y.X. hebben de dierproeven en de monstername uitgevoerd. H.H. en G.Z. hebben de moleculaire biologie-experimenten uitgevoerd en de gegevens verzameld. H.H. en Y.X. hebben de statistische analyse uitgevoerd. H.H. heeft het manuscript geschreven. H.W. heeft het manuscript kritisch herzien op belangrijke intellectuele inhoud. Alle auteurs hebben het definitieve manuscript gelezen en goedgekeurd
Dankbetuigingen
Dit onderzoek heeft geen specifieke subsidies ontvangen van financieringsinstanties uit de publieke, commerciële of non-profitsector.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Accu-Chek glucometer en teststrips | Roche | Accu-Chek Active | Gebruikt voor nuchtere bloedglucosemeting |
| Automatische biochemische analyzer | Hitachi | 7180 | Gebruikt voor biochemische serummetingen |
| C57BL/6J muizen (mannelijk, 8 weken) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Proefdieren gebruikt voor het opzetten van het diabetische muismodel |
| Citraatbuffer (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | Gebruikt voor de bereiding van de streptozotocine-oplossing |
| Enzyme-linked immunosorbent assay (ELISA) kit voor muisinsuline | Wuhan HuaMei Biotech | CSB-E05070m | Gebruikt voor de meting van seruminsuline |
| Hogevetdieet (60% kcal uit vet) | Research Diets | D12492 | Gebruikt voor de inductie en instandhouding van het diabetische model |
| Isofluraan | RWD Life Science | R510-22-10 | Gebruikt voor inhalatienarcose |
| Microcentrifuge | Eppendorf | 5424 R | Gebruikt voor monstercentrifugatie |
| NanoDrop 2000 spectrofotometer | Thermo Fisher Scientific | ND-2000 | Gebruikt om de RNA-concentratie en -zuiverheid te bepalen |
| Paraformaldehyde (4%, in PBS) | Servicebio | G1101 | Gebruikt voor fixatie van weefselmonsters |
| Fosfaatgebufferde zoutoplossing (PBS) | Servicebio | G0002 | Gebruikt voor het wassen en spoelen van weefselmonsters |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Gebruikt voor real-time kwantitatieve PCR |
| PrimeScript RT Reagent Kit (voor qPCR) | TaKaRa (Takara Bio) | RR037A | Gebruikt voor reverse transcriptie van RNA naar cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Gebruikt voor extractie van microbieel DNA uit fecesmonsters |
| R-software | R Foundation | 4.2.0 | Gebruikt voor statistische analyse |
| Real-time PCR-systeem (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Gebruikt voor real-time kwantitatieve PCR-amplificatie en -detectie |
| Streptozotocine (STZ) | Sigma-Aldrich | S0130 | Gebruikt in combinatie met een hogevetdieet om het diabetische muismodel te induceren |
| Totaal cholesterol (TC) assay kit | Nanjing Jiancheng Bioengineering Institute | A111-1 | Gebruikt voor de meting van totaal serumcholesterol |
| Loopband (gemotoriseerd, met hellingscontrole) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Gebruikt voor de loopband-bewegingsinterventie |
| Triglyceriden (TG) assay kit | Nanjing Jiancheng Bioengineering Institute | A110-1 | Gebruikt voor de meting van serumtriglyceriden |
| TRIzol-reagens | Invitrogen (Thermo Fisher) | 15596018 | Gebruikt voor totale RNA-extractie uit weefselmonsters |
Referenties
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.