Deze studie beschrijft een protocol voor het kwantificeren van biogene aminen in Drosophila-hersenen met behulp van hogedrukvloeistofchromatografie gekoppeld aan elektrochemische detectie (HPLC-ECD). Door gebruik te maken van de genetische hanteerbaarheid van Drosophila en HPLC-ECD, kan deze benadering onderzoekers helpen bij het ontrafelen van de moleculaire en genetische mechanismen die ten grondslag liggen aan veranderingen in biogene aminen bij hersenziekten.
Methodenartikel
Gebruik van hogedrukvloeistofchromatografie om veranderingen in biogene aminen te bestuderen in Drosophila-modellen van hersenaandoeningen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Veel neuropsychiatrische en neurodegeneratieve aandoeningen worden gekenmerkt door verstoringen in de neurotransmitters van de hersenen, waaronder veranderingen in de spiegels van de biogene aminen (BA's) dopamine (DA) en serotonine (5-hydroxytryptamine; 5-HT), evenals in hun afgifte of heropname. Deze neurochemische veranderingen correleren met verschillende belangrijke gedragsfenotypen, zoals locomotorische tekorten, slaapfragmentatie en veranderde stressreacties, enzovoort. Omdat de belangrijkste BA-systemen met elkaar interageren, vertonen ziekte-modellen vaak gecoördineerde verschuivingen over meerdere aminen in plaats van geïsoleerde veranderingen in één enkele neurotransmitter. Daarom is een nauwkeurige, simultane kwantificering van verschillende BA's essentieel voor de interpretatie van gedragsmatige en genetische bevindingen. Drosophila melanogaster biedt een genetisch hanteerbaar systeem voor het modelleren van dergelijke aandoeningen en neurotransmitterveranderingen, maar BA's komen in vliegenhersenweefsel voor in zeer lage, nanomolaire tot femtomolaire concentraties, en de geringe omvang van het centrale zenuwstelsel van de Drosophila maakt hun detectie technisch uitdagend. Deze studie beschrijft een protocol om DA, 5-HT en octopamine in vliegenhersenen te detecteren en te kwantificeren met behulp van hogedrukvloeistofchromatografie gekoppeld aan elektrochemische detectie (HPLC-ECD). HPLC-ECD werd toegepast om veranderingen in cerebrale DA en 5-HT te detecteren in een vliegenmodel voor de ziekte van Parkinson, gebaseerd op dopaminerge overexpressie van humaan alfa-synucleïne. De toepassing van dit protocol op het alfa-synucleïne model voor de ziekte van Parkinson onthult significant verhoogde dopamine, maar onveranderde serotonine ten opzichte van de controles, wat consistent is met vroege compensatoire dopaminerge mechanismen. Deze aanpak biedt een gevoelige, goedkope en gemakkelijk toegankelijke methode voor gemultiplexte BA-kwantificering uit beperkt Drosophila-weefsel. Het maakt daarnaast systematische screening mogelijk van genetische modifikatoren en kandidaat-therapeutica die zich richten op monoaminerge paden die relevant zijn voor menselijke hersenaandoeningen.
Inleiding
Monoamine-neurotransmitters, ook bekend als biogene aminen (BA's), staan erom bekend dat zij diverse belangrijke neurologische en gedragsmatige kenmerken reguleren over verschillende diertaxa heen, waaronder maar niet beperkt tot motivationele toestanden, slaap, leren, geheugen en stemmingsregulatie1,2,3,4. Ontregeling van BA's, zoals dopamine (DA) en serotonine (5-hydroxytryptamine; 5-HT), is een kritisch kenmerk van neurodegeneratieve aandoeningen zoals de ziekte van Parkinson, evenals psychiatrische stoornissen zoals schizofrenie3,5. De relatie tussen ziekteprogressie en specifieke neurochemische veranderingen in verschillende hersengebieden en neuronale subtypen is echter nog niet volledig in kaart gebracht. Het beantwoorden van dergelijke vragen vereist een modelsysteem dat niet alleen genetisch hanteerbaar is, maar ook in staat is om ziekterelateerde fysiologische en gedragsmatige fenotypes te reproduceren. Drosophila melanogaster is voor dit doel naar voren gekomen als een krachtig modelsysteem6,7. De fruitvlieg beschikt over discrete, goed gekarakteriseerde populaties dopaminerge en serotonerge neuronen7,8, en de biosynthetische routes, transporteurs en receptorfamilies die deze systemen aansturen zijn functioneel geconserveerd ten opzichte van hun zoogdier-tegenhangers9. Deze conservering biedt een mechanistische basis voor het vertalen van neurochemische bevindingen in de vlieg naar de bredere context van menselijke ziekten.
Het nut van vliegen voor het modelleren van neurologische en psychiatrische aandoeningen reikt veel verder dan genetische homologie. Als genetisch hanteerbaar systeem maken instrumenten in vliegen cel-specifieke screening van genen en signaalpaden mogelijk, waardoor factoren aan het licht komen die ziekterelevante symptomen verergeren of omkeren, wat de ontdekking van nieuwe therapeutische doelwitten faciliteert10. Bovendien kunnen binaire expressiesystemen zich niet alleen richten op specifieke monoaminerge neuronale subtypen, maar ook op specifieke ontwikkelingsvensters11, waardoor een opmerkelijke ruimtelijke en temporele precisie wordt geboden. Het model-systeem van de fruitvlieg biedt tevens een repertoire aan kwantificeerbare gedragingen die kunnen worden gebruikt om de reproductie van ziekterelevante symptomen te beoordelen, alsok om interventiestrategieën voor herstel te testen7. Zo omvatten goed gevestigde genetische modellen van de ziekte van Parkinson in vliegen dieren met Pink1 en parkin loss-of-function-mutaties, evenals vliegen die wild-type of punt-gemuteerde versies van menselijk α-synucleïne (α-syn), SNCA, overexpresseren12,13,14. Al deze vliegenmodellen vertonen enkele van de belangrijkste kenmerken van de ziekte, waaronder locomotorische tekorten, degeneratie van dopaminerge neuronen, mitochondriële dysfunctie en α-syn-aggregatie in vliegen die de menselijke sequentie dragen15,16,17,18,19. Aan de andere kant worden verstoringen in de neuro-ontwikkeling en aberrante dopamine-signalering ook beschouwd als onderliggende oorzaken van aandoeningen zoals schizofrenie20. In overeenstemming hiermee is Drosophila gebruikt om schizofrenie-achtige symptomen te modelleren, waaronder hyperactiviteit, veranderde sensorische responsiviteit en verminderde arousal bij volwassen vliegen21,22,23,24,25. Samen tonen deze modellen aan dat Drosophila zowel de progressie van neurodegeneratieve aandoeningen als de ontwikkelingsherkomst van psychiatrische aandoeningen kan vatten.
Het koppelen van gedragsveranderingen in genetische modellen aan neurochemische veranderingen vereist nauwkeurige, reproduceerbare kwantitatieve metingen van BA's. Bovendien is monoamine-dysregulatie bij verschillende ziekten niet beperkt tot één enkel neurotransmittersysteem. In Pink1B9 mutante vliegen is de serotoninegehalte verlaagd en is de activiteit van de serotoninetransporteur aangetast voordat motorische dysfunctie optreedt26. Vroege farmacologische herstel van de serotonerge signalering voorkomt het daaropvolgende verlies van aangetaste dopaminerge neuronen in Pink1B9 mutante vliegen. Serotonerge veranderingen kunnen dus voorafgaan aan en causaal bijdragen aan dopaminerge pathologie, een relatie die onzichtbaar zou blijven voor gedragsmetingen of metingen van een enkele analyt. Evenzo worden veranderingen in het serotonerge systeem waargenomen in modellen voor schizofrenie22,27,28. Bovendien interageren de belangrijkste biogene amines in Drosophila op gedeeltelijk redundante en gedeeltelijk antagonistische wijze, waardoor de status van één systeem een slechte proxy is voor de andere29. Daarom is het kwantificeren van individuele BA's in deze modellen van essentieel belang.
Biogene aminen zijn elektrochemisch actieve monoaminen (bijv. catecholaminen, indoleaminen) die in lage nanomolaire tot femtomolaire concentraties in biologisch weefsel voorkomen, waardoor hun simultane detectie technisch uitdagend is30,31. Om vragen over de genetische en moleculaire basis van veranderingen in BA bij ziekten te beantwoorden, is een analytische methode nodig die in staat is om meerdere structureel vergelijkbare aminen te scheiden. Deze methode moet bovendien biologisch relevante concentraties kunnen detecteren in de kleine weefselvolumes die beschikbaar zijn uit preparaten van het centraal zenuwstelsel van Drosophila. Hoge-resolutie vloeistofchromatografie (HPLC) gekoppeld aan elektrochemische detectie (ECD) voldoet aan deze eisen. HPLC is een analytische techniek die de scheiding van verschillende moleculen binnen een monster mogelijk maakt op basis van hun fysisch-chemische kenmerken. Door het chromatografische systeem te koppelen aan een elektrochemische detector kan een snelle, hooggevoelige analyse van elektrochemisch actieve analyten, zoals biogene aminen, worden uitgevoerd. Elektrochemische detectoren werken door oxidatie te induceren zodra analyten uit de kolom komen, waarbij interacties aan het elektrode-oppervlak worden omgezet in een kwantificeerbaar elektrisch signaal. Andere technieken, zoals massaspectrometrie, kunnen een vergelijkbare selectiviteit en gevoeligheid bieden32,33. Echter, de lage kosten per monster en de betrouwbaarheid van HPLC-ECD maken het ideaal voor routineuze, toegankelijke detectie van biogene aminen in biologische onderzoekslaboratoria. Het combineren van deze techniek met de kracht van Drosophila-genetica maakt een snelle, eenvoudige analyse van de genetische en moleculaire basis van veranderingen in aminerge systemen mogelijk.
Deze studie maakt gebruik van een genetisch Parkinsonmodel gebaseerd op α-syn overexpressie om een protocol te presenteren voor het bepalen van verschillen in BA-gehalte in Drosophila hersenmonsters. Het artikel beschrijft daarnaast hoe deze benadering kan worden gebruikt om de moleculaire basis van hersenaandoeningen te bestuderen.
Protocol
De ruwe gegevens die in dit werk worden gepresenteerd, zijn beschikbaar via https://doi.org/10.6084/m9.figshare.33868519.
De gebruikte reagentia en apparatuur staan vermeld in de Tabel met Materialen.
1. Synchronisatie en collectie van vliegen
- Entrain de vliegen van belang gedurende 3 dagen vóór collectie onder constante cycli van 12 h licht en 12 h donker, bij een constante temperatuur van 25 °C. Om te garanderen dat er voldoende vliegen per genotype/conditie worden voorbereid, dienen 3–9 biologische replica's van elk 5 vliegen te worden geëntraint.
- Plaats op de dag van collectie 1,5 mL buisjes op droogijs. Gebruik één buisje per vliegen genotype/conditie. Gebruik een trechter om de vliegen direct in de buisjes te storten om ze snel te invriezen.
OPMERKING: Directe collectie op droogijs maakt collectie op verschillende tijdstippen van de dag mogelijk zonder de potentieel schadelijke effecten van anesthesie. Op dit punt kunnen monsters onbeperkt worden bewaard bij -80 °C of direct worden verwerkt. Collecteer de experimentele en controlegroepen op hetzelfde tijdstip om eventuele storende effecten van variaties in het tijdstip van de dag te vermijden. In de huidige representatieve resultaten werden de vliegen 3 h na de overgang naar licht collecteerden.
2. Hersendissectie en monsterpreparatie
- Ter voorbereiding van de weefseldissectie gebruikt u een ondiepe houder, zoals het deksel van een pipetpuntendoos, en vult u deze met ijs. Plaats hierop een Petri-schaal van 30 mm om als dissectieplatform te dienen. Het uitvoeren van de weefseldissectie op ijs, vooral bij gebruik van een stereoscoop met warme verlichting, voorkomt weefseldegradatie.
- Plaats een druppel van 200 µL ijskoude 1x fosfaatgebufferde zoutoplossing (PBS) op de schaal en dissecteer onder een stereoscoop elke vlieg met fijne, scherpe pincetten.
- Om de hersenen te dissecteren, pakt u één vlieg bij het abdomen vast met één paar pincetten en dompelt u deze onder in de PBS-druppel. Verwijder de kop door de verbinding tussen de kop en het lichaam vast te pakken, zonder de vlieg los te laten.
- Zowel het lichaam als de kop zullen op de PBS drijven. Verwijder het lichaam uit de druppel en gooi dit weg. Pak de kop met een pincet bij de proboscis vast om deze terug in de PBS-druppel te duwen.
- Pak met het vrije paar pincetten de rand van het oog vast om de kop te fixeren en verwijder de proboscis.
- Pak het weefsel rond de opening die is ontstaan door het verwijderen van de proboscis vast en trek eraan. De hersenen moeten nu zichtbaar zijn.
- Reinig de hersenen voorzichtig om eventuele resten van de kop te verwijderen, aangezien achtergebleven weefsel de kwantificering kan beïnvloeden. Neem bovendien telkens één vlieg tegelijk uit de buis op droog ijs om degradatie van de monsters te voorkomen.
- Overbreng met een pipetpunt een klein volume met de gedissecteerde hersenen direct naar een buis met ijskoude 1x PBS. Herhaal deze stap tot een totaal van vijf hersenen per biologisch replica is bereikt. Om te voorkomen dat de hersenen aan de pipetpunt plakken, conditioneert u deze eerst met de oplossing van de dissectieschaal door enkele keren op en neer te pipetteren.
- Zodra de dissectie is voltooid, voert u een korte centrifugatie van 10 s uit bij 2.000 x g om de hersenen onderin de buis te verzamelen.
- Vervang de 1x PBS voorzichtig door 50 µL 0,2 N perchloorzuur (PCA) op ijs.
WAARSCHUWING: PCA is sterk corrosief. Bereid de aliquoten vooraf in een zuurkast voor en gebruik geschikte persoonlijke beschermingsmiddelen tijdens de behandeling. Dit omvat chemisch bestendige veiligheidsbrillen, zware neopreen handschoenen en een rubberen schort.
OPMERKING: Alternatief kunnen de hersenen ook direct worden verzameld in 50 µL 0,2 N PCA. In dat geval gebruikt u een naald voor de overdracht van de hersenen om ongewenste overdracht van PBS te vermijden. - Gebruik een ultrasone homogenisator om het weefsel te homogeniseren. Controleer de amplitude om warmteontwikkeling te voorkomen. Hier gebruiken we 10 kHz met cycli van korte pulsen van 3 s, gevolgd door 3 s op ijs.
- Centrifugeer het monster 15 min bij 15.000 x g en 4 °C. Verzamel 40 µL van het supernatant in een nieuwe buis die op ijs wordt bewaard. Het bewaren van de monsters in PCA voorkomt BA-oxidatie. Vermijd het verzamelen van weefsel in deze stap, aangezien dit het systeem waarschijnlijk zal verstoppen. Als er weefsel wordt verzameld, kunnen spuitfilters worden gebruikt, maar het monsterherstel zal hiervan negatief worden beïnvloed.
- Vlak voordat de monsters worden geanalyseerd, voegt u 8 µL 1 M natriumacetaat toe. Dit brengt de pH van het monster dichter bij de pH van de mobiele fase van 3,5, waardoor de piekvorm behouden blijft terwijl het monster door de detector gaat. De monsters zijn nu klaar voor injectie.
3. Bereiding van de mobiele fase
- Bereid 1 L citraat-acetaat mobiele fase voor door 870 mL ultrapuur water in een glazen fles te gieten.
- Voeg 5,61 g natriumacetaat trihydraat en 8,79 g watervrije citroenzuur toe aan het glaswerk en meng tot het is opgelost. Controleer of de pH 3,5 is; zo niet, pas deze dan dienovereenkomstig aan.
- Voeg in een zuurkast 130 mL methanol van HPLC-kwaliteit toe.
- Voeg 130 mg natrium 1-octanesulfonaat hydraat toe en meng grondig.
- Filtreer de oplossing onder vacuüm met een 0,2 µm filter terwijl u 1 h lang roert. Het roeren zorgt ervoor dat ingesloten gas uit de oplossing ontsnapt, en het vacuüm helpt hierbij en bij de filtratie.
- Sonicate de oplossing in een ultrasoonbad (42 kHz) gedurende 30 min om luchtbellen te verwijderen.
- Wikkel de container in aluminiumfolie en label deze op passende wijze.
OPMERKING: De kwaliteit van de reagentia heeft een grote invloed op de retentietijden. Het gebruik van reagentia van HPLC-kwaliteit helpt de consistentie tussen runs te behouden. Het gebruik van dezelfde reagentia bij het opnieuw bereiden van de mobiele fase waarborgt eveneens de consistentie van de resultaten.
4. Bereiding van standaarden
- Weeg voor de bereiding van de standaarden afzonderlijk 10 mg OA, DA en 5-HT af op weegpapier.
- Plaats de afgewogen hoeveelheid in afzonderlijke glazen flessen van 125 mL om individuele voorraadoplossingen te maken. Weeg het lege papier opnieuw om de exacte hoeveelheid OA, DA of 5-HT te berekenen die in de flessen is terechtgekomen.
- Bereken de hoeveelheid oplosmiddel die moet worden toegevoegd om een concentratie van 100 ng/µL van de analyt te bereiken. Als de volledige 10 mg zijn toegevoegd, gebruik dan 100 mL oplosmiddel. Gebruik voor OA en DA 0,1 M zoutzuur als oplosmiddel. Gebruik voor 5-HT in plaats daarvan 0,1 M azijnzuur.
- Vul de standaarden aan met 2Na-EDTA tot een eindconcentratie van 1 mg/mL. Meng grondig tot het volledig is opgelost. Wikkel de fles in aluminiumfolie om deze tegen licht te beschermen en bewaar bij 4 °C.
OPMERKING: Standaarden kunnen onder deze omstandigheden tot 3 maanden worden bewaard.
5. Bereiding van kalibratielösungen
OPMERKING: Bereid voor het maken van een kalibratiecurve drie standaarden voor met gemengde BA's in verschillende concentraties. In dit voorbeeld gebruiken we werkoplossingen van 0,03 ng/µL, 0,01 ng/µL en 0,001 ng/µL. De injectie van 10 µL levert standaardhoeveelheden op van respectievelijk 0,3 ng, 0,1 ng en 0,01 ng.
- Begin met het bereiden van een voorraadmix van 1 ng/µL door 1 µL van elke 100 ng/µL BA-voorraad toe te voegen aan 97 µL 0,02 M azijnzuur-1 mg/mL 2Na-EDTA. Meng grondig.
- Neem 2 µL van de 1 ng/µL-voorraad en voeg dit toe aan 64,6 µL 0,02 M azijnzuur-1 mg/mL 2Na-EDTA. Meng grondig. Dit is de werkoplossing van 0,03 ng/µL.
- Neem 2 µL van de 1 ng/µL-voorraad en voeg dit toe aan 18 µL 0,02 M azijnzuur-1 mg/mL 2Na-EDTA. Meng grondig. Dit is de werkoplossing van 0,1 ng/µL. Deze oplossing wordt in dit protocol niet geïnjecteerd, maar uitsluitend gebruikt voor seriële verdunningen.
- Neem 4 µL van de 0,1 ng/µL-voorraad en voeg dit toe aan 36 µL 0,02 M azijnzuur-1 mg/mL 2Na-EDTA. Meng grondig. Dit is de werkoplossing van 0,01 ng/µL.
- Neem tot slot 4 µL van de 0,01 ng/µL-voorraad en voeg dit toe aan 36 µL 0,02 M azijnzuur-1 mg/mL 2Na-EDTA. Meng grondig. Dit is de werkoplossing van 0,001 ng/µL.
OPMERKING: Bewaar deze standaarden in een doos die beschermd is tegen licht. Alle standaarden van de werkoplossing moeten vers bereid worden.
6. Injectie-opstelling en run
OPMERKING: Alle HPLC-systemen werken volgens dezelfde principes. Verschillen in de hardware kunnen echter een groot verschil maken in retentietijd en runlengte. Bovendien zal de gevoeligheid van de ECD leiden tot verschillende detectielimieten. Deze zullen empirisch bepaald moeten worden. In deze studie is gebruikgemaakt van een high-performance liquid chromatography (HPLC)-systeem uitgerust met een reverse-phase C18-kolom.
- Zet de HPLC-apparatuur aan, inclusief de pomp en de elektrochemische detector. Stel de stroomsnelheid in op 100 µL/min en laat de elektrochemische detector een stabiele basislijn bereiken. Dit zal 10 min tot 30 min duren.
- Zodra de monsters klaar zijn voor injectie, stelt u de stroomsnelheid in op 500 µL/min. Laat het systeem 5 min stabiliseren. Spoel ondertussen een Hamilton-spuit van 20 µL drie keer met ultrapuur water.
- Zuig 10–20 µL monster op in de spuit. Het volume is afhankelijk van de capaciteit van de monsterlus. Raadpleeg de handleiding van de monsterlus voor meer informatie.
- Zorg ervoor dat er geen luchtbellen in de spuit aanwezig zijn bij het injecteren. Elk ingesloten gas zal de correcte pomping van de mobiele fase of de ECD-metingen verstoren. Als er bellen aanwezig zijn, voer het monster terug en probeer de spuit opnieuw te vullen.
- Steek de naald volledig in de injectiepoort. Zet de hendel in de laadpositie en injecteer het monster door de zuiger van de spuit in te drukken totdat alle vloeistof uit de spuit is gegaan. Zet de hendel van de injector in de "inject"-positie. De run is gestart en zou onder deze omstandigheden in 30–35 min voltooid moeten zijn.
- Als er meer monsters moeten worden geanalyseerd, laat het systeem dan 10–15 min draaien op 500 µL/min voordat het volgende monster wordt geïnjecteerd.
OPMERKING: Als er consistente fluctuaties in het ECD-signaal optreden, controleer dan op veranderingen in de systeemdruk. Gas dat in het systeem is ingesloten, kan zorgen voor een ongelijkmatige stroom en een hogere achtergrond dan normaal. Spoel het systeem op hoge snelheid met een verse oplossing, waarbij de ECD wordt omzeild, om dit probleem op te lossen.
7. Gegevensopvraag en -analyse
OPMERKING: Er zijn verschillende analoog-digitaal-omzetters en softwarepakketten beschikbaar om dit type gegevens te verzamelen en te analyseren. Ze kunnen verschillen in de manier waarop ze gegevens verwerken, maar ze delen algemene principes. In deze studie werden respectievelijk software voor gegevensconversie en software voor de acquisitie en analyse van chromatografische gegevens gebruikt.
- Veranderingen in stroom/spanning die voortvloeien uit de oxidatie van de BAs en worden geregistreerd door de ECD, worden omgezet door de analoog-digitaalomzetter. De BA-concentratie is proportioneel aan de verandering in stroom/spanning.
- Gebruik de oppervlakte onder de curve, verkregen uit de stroom-tijdgrafieken van de standaardruns van de BAs, om een kalibratiercurve te schatten. De waarden worden weergegeven door een lineaire regressie in een grafiek van stroom/spanning (nA of mV) versus hoeveelheid (ng).
- Bereken met behulp van de lineaire vergelijking de concentratie van BAs in uw monster.
Resultaten
Biologische verbindingen worden geoxideerd bij verschillende voltages. In een complexe matrix, zoals hersenweefsels, maakt de keuze van het juiste ECD-potentiaal een schonere en nauwkeurigere kwantificering mogelijk. Hier hebben we twee verschillende voltages gekozen om de impact van deze factor op de identificatie en kwantificering van OA, DA en 5-HT in hersenmonsters van Drosophila aan te tonen. Bij 950 mV kunnen we deze 3 amines in een mengsel gemakkelijk detecteren (Figuur 1A), terwijl bij 650 mV alleen dopamine en serotonine worden waargenomen (Figuur 1B). Dit is consistent met de oxidatievoltages voor deze verbindingen: 900–1000 mV voor OA, 600–700 mV voor DA en 5-HT. De retentietijden voor OA, DA en 5-HT zijn respectievelijk 6 min, 11 min en 29 min. Kwantificering van drie verschillende hoeveelheden, 0,01 ng, 0,1 ng en 0,3 ng, levert vergelijkbare kalibratiecurves op voor 950 mV of 650 mV (Figuur 1C,D, respectievelijk). Deze curves tonen de lineariteit en gevoeligheid van de assay voor elke analyt over het geteste concentratiebereik bij elk detectiepotentiaal aan.
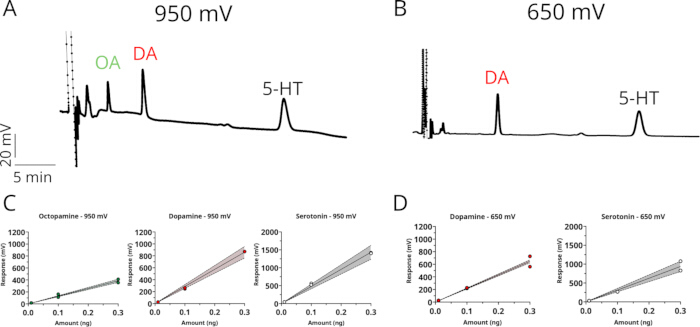
Figuur 1: Detectie en kwantificering van biogene aminen via HPLC-ECD bij twee oxidatiepotentialen. (A,B) Representatieve chromatogrammen die de scheiding tonen van standaarden van octopamine (OA), dopamine (DA) en serotonine (5-HT), gedetecteerd bij een toegepast potentiaal van (A) 950 mV of (B) 650 mV. Verticale as: respons (mV); horizontale as: retentietijd (5 min per markering, aangegeven door de schaalbalk). (C,D) Kalibratiecurves voor elke analyt bij (C) 950 mV en (D) 650 mV, waarbij de piekrespons (mV) is uitgezet tegen de standaardhoeveelheden (ng; 0,01–0,3 ng). Doorgetrokken lijnen vertegenwoordigen lineaire regressieaanpassingen, gearceerde banden geven 95% betrouwbaarheidsintervallen aan, en gevulde/open cirkels vertegenwoordigen 2 individuele standaardinjecties per concentratie. Klik hier om een grotere versie van deze figuur te bekijken.
Complexe monsters, zoals die van hersenextracten, zijn doorgaans verantwoordelijk voor een aanzienlijke biologische achtergrond. Volgens het hier beschreven protocol hebben we getracht het effect van de elektrodespanning op de detectie en kwantificering van BA's in hersenmonsters te bepalen. Volwassen mannelijke vliegen werden verzameld wanneer de lichten werden ingeschakeld na 2 volledige dagen entrainment, en de hersenen werden gedissecteerd in ijskoud PBS en vervolgens geplaatst in 0.2 N PCA op ijs. Na weefseldissociatie en centrifugatie werd het supernatant geëquilibreerd met 1 M natriumacetaat, waarna 10 µL werd geïnjecteerd. Door het elektrodepotentiaal in te stellen op 950 mV ontstaan er pieken voor octopamine, dopamine en serotonine op de respectievelijke retentietijden (Figuur 2A, zwarte lijn). Hun identiteiten werden verder bevestigd door een monster te analyseren dat was gespike met bekende hoeveelheden (elk 0.01 ng) van elke BA (Figuur 2A, rode lijn). Er worden echter verschillende aanvullende pieken waargenomen nabij de analyten van belang, wat de kwantificering kan bemoeilijken. Het instellen van het elektrodepotentiaal op 650 mV lost dit probleem op, ten koste van de detectie van octopamine (Figuur 2B). Zoals in Figuur 1, is OA niet gescheiden bij 650 mV, wat consistent is met het hogere oxidatiepotentiaal ervan.
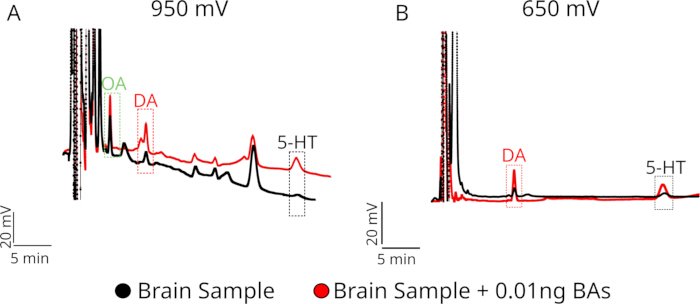
Figuur 2: Identificatie van endogene biogene aminen in hersenmonsters door piekversterking (spike-in) bij twee oxidatiepotentialen. (A,B) Representatieve chromatogrammen van een hersenweefselextract geanalyseerd via HPLC-ECD bij een aangelegd potentiaal van (A) 950 mV of (B) 650 mV, weergegeven vóór (zwarte lijn, "Hersenmonster") en na (rode lijn, "Hersenmonster + 0,01 ng BAs") spiking met een bekende hoeveelheid (0,01 ng) standaarden van octopamine (OA), dopamine (DA) en serotonine (5-HT). Gestippelde kaders geven de retentietijdvensters voor elke analyt aan. Verticale as: respons (20 mV, aangegeven door schaal); horizontale as: retentietijd (5 min, aangegeven door schaalbalk). Klik hier om een grotere versie van deze figuur te bekijken.
Volgens hetzelfde protocol gebruikten we HPLC-ECD om verschillen in het gehalte aan biogene aminen aan te tonen in de hersenen van vliegen die α-synucleïne tot expressie brengen in dopaminerge neuronen (TH-T2A-GAL4 > UAS-SNCA.J34), een vliegenmodel voor de ziekte van Parkinson. Eerdere studies met een PD-model gebaseerd op mutaties in het gen Pink1 hebben verschillen in dopamineniveaus aangetoond bij vliegen van slechts 0-3 dagen oud35. Hier werden vliegen van 3–6 dagen oud gebruikt om de dopamine- en serotonineniveaus te vergelijken. Dopamineniveaus waren significant verhoogd in PD-vliegen vergeleken met controle-vliegen (Figuur 3A), terwijl de serotonineniveaus onveranderd bleven (Figuur 3B). Verhoogde dopamineniveaus in de vroege stadia kunnen wijzen op compensatiemechanismen voorafgaand aan het begin van de PD-symptomen in dit model (Reviewed in Blesa J et al.36).
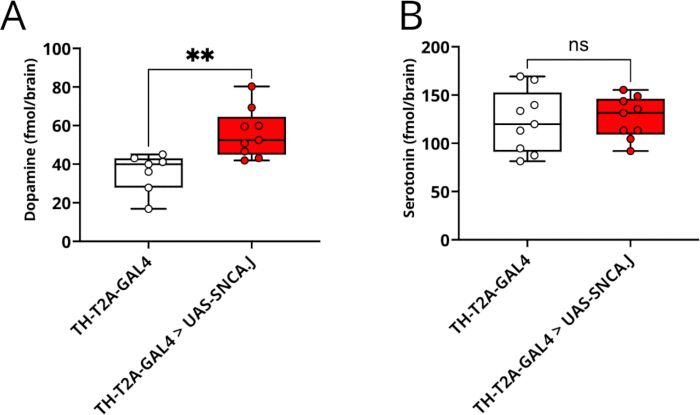
Figuur 3: Kwantificering van dopamine- en serotonineniveaus in een Drosophila-model van de ziekte van Parkinson via HPLC-ECD. Niveaus in het gehele hersenweefsel van dopamine (A) en serotonine (B), uitgedrukt in fmol/brein, in controlevliegen (TH-T2A-GAL4, n = 7 in A en n = 9 in B) en vliegen uit het Parkinson-model (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). In dit model wordt de codon-geoptimaliseerde menselijke α-synucleïne-sequentie (SNCA.J) selectief overgeëxprimeerd in dopaminerge neuronen onder controle van de TH-T2A-GAL4-driver. De gegevens worden gepresenteerd als box-and-whisker-plots (mediaan, interkwartielafstand en min–max), met daaroverheen individuele datapunten, waarbij elk punt één biologisch replicaat (n) vertegenwoordigt bestaande uit 5 gepoolde breinen. Statistische significantie werd bepaald met de ongepaarde t-test (**p < 0.01, ns, niet significant). Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
HPLC is een zeer aanpasbare scheidingstechniek. Daarom kunnen veel stappen van dit protocol worden gewijzigd. Betrouwbare resultaten zijn afhankelijk van zorgvuldige aandacht voor en consistentie van deze wijzigingen. De relatieve polariteit van de stationaire en mobiele fasen bepaalt de scheidingsmodus: bij de normale fase wordt een polaire stationaire fase gecombineerd met een niet-polaire mobiele fase, terwijl bij de reverse-phase een niet-polaire stationaire fase wordt gecombineerd met een polaire mobiele fase. Voor de analyse van biogene amines in biologisch weefsel worden doorgaans reverse-phase-condities gebruikt. In deze studie werd een citraat-acetaat mobiele fase gebruikt met methanol als hoofdolvent; vergelijkbare metingen werden echter succesvol uitgevoerd met een fosfaatbuffer en acetonitril als solvent22,26,35. De buffersamenstelling kan dus variëren, afhankelijk van de gewenste piekresolutie en -vorm. Het wijzigen van de samenstelling van de mobiele fase zal waarschijnlijk de elutietijden beïnvloeden37. Dit kan leiden tot overlap van pieken, waardoor kwantificering moeilijk of onmogelijk wordt. Om dit op te lossen, zijn pH-wijzigingen de meest effectieve oplossing, omdat de interactie van de analyt met de kolom sterk afhangt van hun pKa38.
Aminen kunnen onderhevig zijn aan oxidatieve degradatie, waardoor de weefselverzameling en -behandeling cruciale punten in het protocol zijn. Het verzamelen van monsters op droogijs en het bewaren ervan bij -80 °C tot aan de verwerking is een belangrijke stap. Na dissectie moeten de monsters snel worden gehomogeniseerd onder zure omstandigheden. Dit voorkomt de afbraak van de BAs30,39,40. In dit kader kunnen andere zuren nuttig zijn als de toegang tot PCA beperkt is. Een combinatie van mierenzuur, een niet-explosief oxidator-alternatief voor PCA, en methanol zou ook voor extractie gebruikt kunnen worden; we hebben dit echter niet getest in Drosophila-hersinmonsters41.
De keuze van de detector bepaalt wat er gemeten kan worden en met welke gevoeligheid; veelvoorkomende opties zijn UV/zichtbare, fluorescentie- en massaspectrometriedetectoren, die elk geschikt zijn voor verschillende analyteigenschappen en gevoeligheidseisen. Elektrochemische detectie is bijzonder geschikt voor catecholamines en indolamines zoals DA en 5-HT, die direct op de werkelektrode worden geoxideerd om een stroom te genereren die proportioneel is aan hun concentratie. ECD is beschreven als een eenvoudigere en nauwkeuriger techniek vergeleken met alternatieve detectiemethoden zoals fluorescentiedetectie en ultravioletdetectie, waarvan beide vaak meer stappen vereisen voordat monsters geanalyseerd kunnen worden, waardoor ze complexer of tijdrovender zijn42,43. HPLC-ECD biedt een uitstekende gevoeligheid, aangezien het analyten in biologische monsters in femtomolaire concentraties kan detecteren44. Gegeven het feit dat een enkel Drosophila-brein slechts een zeer kleine hoeveelheid weefsel levert, is dit niveau van gevoeligheid essentieel. Cruciaal is dat HPLC-ECD ook de simultane kwantificering van meerdere biogene amines uit één monster mogelijk maakt, wat betekent dat het volledige monoamineprofiel van een preparaat van het centrale zenuwstelsel van Drosophila in één enkele analytische run kan worden vastgelegd.
De methode kent inherente beperkingen die het toepassingsgebied definiëren. Hoewel deze methode zeer gevoelig is, vereist het kwantificeren van BA's uit Drosophila-monsters het poolen van hersenen. Daarom is er, net als bij andere benaderingen, geen detectie in een enkel brein gerapporteerd45. Een ander nadeel is elektrodevervuiling. Elektrodevervuiling kan na verloop van tijd optreden doordat oxidatieve bijproducten een dunne isolerende laag over het oppervlak vormen, wat de gevoeligheid beïnvloedt en signaaldrift veroorzaakt46. Dit is bijzonder duidelijk in onze resultaten bij het gebruik van een hoger oxidatiespanningspotentiaal (Figuur 2). Om dergelijke veranderingen op te vangen, kan het nuttig zijn om na enkele runs standaardinjecties te herhalen. Standaardinjecties zouden ook moeten worden herhaald telkens wanneer er een wijziging wordt aangebracht in de mobiele fase of het detectiepotentiaal om eventuele verschuivingen in de waargenomen pieken te corrigeren. Periodiek reinigen van de elektrode kan helpen bij dit probleem. Een ander nadeel is dat HPLC-ECD een bulkmatige, statische meting geeft van het aminegehalte geïntegreerd over het weefsel dat voor analyse is ingediend. Het geeft geen informatie over waar in de hersenen deze amines zich bevinden, noch over de relatieve bijdragen van specifieke neuronale populaties. Niet-elektroactieve verbindingen zoals GABA en glutamaat zijn niet detecteerbaar onder standaard ECD-condities en vereisen aparte assays. Misschien wel het belangrijkste is dat HPLC-ECD een gerichte methode is. Het kan niet worden gebruikt om onbekende moleculen te identificeren die mogelijk gecorreleerd zijn aan een gedragsfenotype, omdat het volledig vertrouwt op het vergelijken van retentietijden met bekende, goed gekarakteriseerde standaarden. Voor ongerichte ontdekking van neurochemische correlaten van gedrag zouden technieken zoals LC-MS/MS geschikter zijn, zij het tegen hogere kosten.
Binnen deze kaders behandelt HPLC-ECD een goed gedefinieerde en biologisch relevante set vragen in Drosophila stoornismodellen. Het kan bepalen of een genotype of behandeling de steady-state aminegehaltes verandert en of dergelijke veranderingen selectief zijn voor één transmissersysteem of het bredere monoamineprofiel beïnvloeden. Het kan neurochemische veranderingen volgen over ontwikkelingsstadia of ziekteprogressie, wat bewijs levert voor presymptomatische biochemische toestanden die voorafgaan aan detecteerbare gedragstypes47. Het is daarnaast zeer geschikt om te evalueren of een farmacologische of genetische interventie minedeficiënties in een bepaald model normaliseert, overschrijdt of niet herstelt26. Het beantwoorden van vragen zoals in welk stadium elke amine verschuift, of het corrigeren van één systeem een ander systeem perturbeert, en of een ontwikkelingsperturbatie een blijvend neurochemisch spoor achterlaat, is precies waarvoor een bulk-gebaseerde, gevoelige multi-amine methode is ontwikkeld. In combinatie met de gedragsassays en genetische tools die beschikbaar zijn in Drosophila, biedt HPLC-ECD een kwantitatieve biochemische laag die de interpretatieve reikwijdte van deze stoornismodellen aanzienlijk verbreedt.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengeling is.
Dankbetuigingen
Dit werk werd ondersteund door National Institutes of Health subsidie R00NS133470 (S.H.). De inhoud is uitsluitend de verantwoordelijkheid van de auteurs en vertegenwoordigt niet noodzakelijkerwijs de officiële standpunten van de National Institutes of Health. R.V.Z wordt ondersteund door Subvención a la Instalación en la Academia (SIA) N°85250142, en J.M.C. wordt ondersteund door FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Chili.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| (+-) Octopaminehydrochloride | Sigma Aldrich | 770-05-8 | |
| 500 mL Filtereenheid | Thermo Scientific | FB12566504 | 0.2 um aPES-membraan, 75 mm diameter |
| Azijnzuur, glaciaal | Fisher Scientific | 64-19-7 | |
| Citroenzuur anhydrisch | USB | 77-92-9 | |
| Clarity Chromatografie Software | Data Apex | Version 10.1 | |
| Colibrick Dataconverter | Data Apex | A/D-converter | |
| Dopaminehydrochloride | Sigma Aldrich | 62-31-7 | |
| Dumont #5 pincet (Dumoxel Biology) | Fine Science Tools | 11252-30 | Dissectiepincet |
| EDTA, dinatriumzout, dihydraat, kristal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Reverse Phase Scheidingskolom |
| EMD Milipore Synergy UV-R Ultrapuur (Type 1) Water | Milipore | ||
| Hamilton Spuit 25ul (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | HPLC-apparaat | |
| Zoutzuur | Sigma Aldrich | 7647-01-0 | |
| Lichte weefseldoekjes | VWR | 82003-820 | |
| Methanol HPLC-kwaliteit | Fisher Scientific | 67-56-1 | 0.2 micron gefilterd |
| Perchloorzuur, 70% in water | Fisher Scientific | AC424032500 | Gebruiken voor 0.2 N PCA |
| Serotoninehydrochloride 98% | Fisher Scientific | 153-98-0 | |
| Natrium 1-octaansulfonaat hydraat, HPLC-kwaliteit, 99+% | Thermo Scientific | 5324-84-5 | |
| Natriumacetaat, trihydraat, kristal | J.T Baker | 6131-90-4 | |
| Sonicator 1510 Bransonic Ultrasone Reiniger | Branson | Model #: 1510R-MT | Sonicator |
| Ultrasone Processor Sonicator | Fisherbrand | Model FB50 | Met CL18 probe |
Referenties
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar