Dit protocol dient als gids voor live confocale beeldvorming van microtubulidynamiek met behulp van fluorescerende microtubulimarkers in sensorische neuronen van Drosophila-larven.
Methodenartikel
Beeldvorming van microtubulusdynamiek in vivo in sensorische dendrieten van Drosophila
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Drosophila-larvale sensorische neuronen van klasse IV bevinden zich vlak onder de cuticula en worden gekenmerkt door sterk vertakte dendritische bomen die isotroop in twee dimensies uitbreiden naarmate de larven zich ontwikkelen. De groei van deze bomen wordt gedreven door stochastische processen waarbij de dendritische terminale uiteinden groeien, krimpen en pauzeren. Om de hypothese te testen dat de dynamiek van de uiteinden wordt aangestuurd door microtubulidynamiek, zijn protocollen ontwikkeld voor het imagen van fluorescentie-gelabelde microtubuli binnen dendrieten. De methode maakt de visualisatie van microtubulidynamiek in fijne terminale dendrieten van klasse IV sensorische neuronen mogelijk met behulp van confocale microscopie. Het is ontworpen om de morfologie van de dendritische boom tijdens het imagen te behouden, terwijl microtubuli samen met een membraanmarker kunnen worden gevisualiseerd. Dit manuscript beschrijft de procedures die worden gebruikt om Drosophila-larven voorbij live imaging voor te bereiden en om fluorescentie-gelabelde microtubuli in dendrieten te visualiseren. Het protocol biedt daarom een benadering om het gedrag van microtubuli in fijne terminale dendrieten te onderzoeken, terwijl het compatibel blijft met membraan-colabeling.
Inleiding
Neuronen zijn sterk gepolariseerde cellen waarvan het cytoskelet hun architectuur bepaalt. Microtubuli, een component van het neuronale cytoskelet, zorgen voor structurele ondersteuning en dienen als rails voor transport van lading over lange afstanden1,2. Het microtubuli-cytoskelet is cruciaal voor de ontwikkeling van dendrieten3. Dendrieten groeien stochastisch via een proces van vertakking, verlenging en inkrimping4. Dendritische arborisatie (da) neuronen in Drosophila-larven zijn een krachtig in vivo modelsysteem voor het bestuderen van dendritische morfogenese. Deze sensorische neuronen zijn ingedeeld in vier klassen (I–IV) op basis van toenemende dendritische complexiteit3,5. Klasse IV da neuronen hebben complexe, sterk vertakte dendrieten en functioneren als multimodale nociceptoren6,7,8. De dendrieten van deze neuronen vormen stereotype receptieve velden langs de abdominale segmenten en liggen vlak onder de transparante cuticula9,10. Deze anatomie, samen met de genetische hanteerbaarheid van Drosophila, maakt klasse IV da neuronen tot een geschikt systeem voor het visualiseren van dendrietontwikkeling in vivo met een hoge ruimtelijke en temporele resolutie. Terwijl de dendrieten tijdens de ontwikkeling groeien, wisselen hun uiteinden stochastisch af tussen toestanden van groei, inkrimping en pauze11. Groei en inkrimping van de uiteinden vertonen veel kinetische overeenkomsten met de groei en inkrimping van microtubuli12. Daarom is het visualiseren van microtubuli-dynamiek in deze cellen van aanzienlijke interesse.
Een gangbare aanpak voor het visualiseren van microtubulidynamiek in levende cellen, waaronder die in Drosophila-larven, is het in beeld brengen van fluorescentielabelled end-binding proteïnen zoals EB1 en EB313,14,15,16,17,18. De interpretatie van EB-GFP-signalen kan echter ambigu zijn. Zo kan een distaal bewegend EB-GFP-punctum, dat zich van het cellichaam af beweegt, wijzen op een naar buiten groeiend microtubuli plus-uiteinde of op een naar binnen groeiend plus-uiteinde van een microtubulus die in distale richting schuift. Hoewel EB-GFP hoofdzakelijk de plus-uiteinden van groeiende microtubuli labelt, kan het ook groeiende minus-uiteinden labelen19, wat leidt tot extra ambiguïteit. Directe visualisatie van microtubuli kan deze onduidelijkheden verminderen.
Een alternatieve benadering ten opzichte van EB-GFP is de directe labeling van microtubuli met behulp van GFP-tubuline20,21. Hoewel fluorescerende tubuline proximale dendrieten robuust labelt22, lukt het niet om distale dendrieten te labelen23. Een andere moeilijkheid bij fluorescerende tubuline is dat de hoge concentratie oplosbare tubuline het moeilijk maakt om individuele microtubuli te onderscheiden in smalle uitlopers, zoals terminale dendrieten. Daarom blijft het visualiseren van de microtubuli-dynamiek in intacte neuronen onder normale fysiologische omstandigheden een uitdaging.
Het Drosophila microtubuli-geassocieerde eiwit (MAP) Jupiter, een structurele homoloog van zoogdier Tau, MAP2 en MAP4, is gebruikt om microtubuli in Drosophila-weefsels te labelen, waaronder de eierstok en embryo's24. In klasse IV-dendrieten zijn mCherry-Jupiter en sfGFP-Jupiter gebruikt om microtubuli in proximale vertakkingen te kwantificeren22,25,26. Dit protocol beschrijft een live-imaging methode die high-resolutie, time-lapse observatie van het gedrag van neuronale microtubuli in distale dendrieten van Drosophila klasse IV-neuronen mogelijk maakt, met behulp van vliegenlijnen die het fluorescent gelabelde tubuline-bindende domein van Jupiter tot expressie brengen.
Protocol
In deze studie is gebruikgemaakt van Drosophila melanogaster, een ongewervelde modelorganisme waarvoor geen institutionele ethische goedkeuring voor dierproeven vereist was. De instrumenten die voor het protocol zijn gebruikt, staan vermeld in de Tabel met Materialen.
1. Genereren van experimentele vliegenlijnen
- Stel een kruising op om de gewenste ouderlijn te verkrijgen. Gebruik het GAL4/UAS-binair systeem om mNeonGreen (mNG)-Jupiter tot expressie te brengen in klasse IV dendritische arborisatie (da) neuronen die GAL4 tot expressie brengen onder de ppk-promotor.
- Kruis maagdelijke vrouwtjes van een homozygote UAS-mNG-Jupiter-lijn met mannetjes van een homozygote ppk-GAL4; CD4tdTomato-lijn. Verkrijg F1-nakomelingen die zowel ppk-GAL4; CD4tdTomato als UAS-mNG-Jupiter dragen.
OPMERKING: F1-nakomelingen die zowel ppk-GAL4; CD4tdTomato als UAS-mNG-Jupiter dragen, brengen mNG en CD4tdTomato sterk tot expressie in klasse IV da-neuronen. Voer beeldvorming uit met larven afgeleid van ten minste drie onafhankelijke genetische kruisingen, waarbij per kruising minimaal zes larven worden afgebeeld. - Houd de kruising voor de paring in een onderhoudsfles, waarbij een stipje gistpasta op de wand is aangebracht. Incubeer gedurende 2–3 dagen bij 25 °C.
OPMERKING: Het voeren van gist stimuleert de eiaflegging en ovipositie. - Bereid de gistpasta voor door een lepel gist in een klein bekerglas te doen en enkele druppels water toe te voegen. Meng grondig met een spatel tot de pasta een halfvaste consistentie heeft, waarbij indien nodig druppelsgewijs water wordt toegevoegd.
- Verplaats de vliegen elke dag naar een nieuwe onderhoudsfles met verse gistpasta.
OPMERKING: Zorg ervoor dat de gistpasta niet te zacht of te waterig is. Als deze te zacht wordt, kunnen de vliegen vast komen te zitten. Voor aanvullende methodologische details, zie Hales et al.27 en Roote en Prokop28.
2. Eiafzetting op druif-agarplaten, eiverzameling en larvale stadiering
- Bereid ongeveer 0,5 L druiven-agarmedium voor door 376 mL gedestilleerd water, 126 mL druivensap, 15 g agar en 6 g sucrose te combineren in een magnetronbestendig bekerglas van 1 L.
- Verwarm dit 3–5 min in de magnetron en draai het mengsel elke minuut om totdat de agar volledig is opgelost. Laat het mengsel enigszins afkoelen en voeg vervolgens 10 mL ethanol en 5 mL azijnzuur toe.
- Meng grondig en giet het medium in 60 mm Petri schalen om de druiven-agarplaten voor te bereiden. Bereid de platen vooraf, bewaar ze bij 4 °C door ze ondersteboven op te stapelen en in Petri schaalhoezen te wikkelen, en gebruik ze binnen 2 weken. Warm de platen voor gebruik op tot kamertemperatuur.
- Overbreng ongeveer 150 vliegen, bestaande uit 50 mannetjes en 100 vrouwtjes, van de onderhoudsfles naar een eiafzetkooi.
- Dek de eiafzetkooi af met een 60 mm druiven-agarplaat met een kleine hoeveelheid gistpasta.
- Laat de vliegen 2 u lang bij 25 °C eitjes leggen op de druiven-agarplaat met gistpasta. Vervang de plaat door een nieuwe druiven-agarplaat met gistpasta en laat de eiafzet nogmaals 2 u duren.
- Bied een derde 60 mm druiven-agarplaat met gistpasta aan en laat de vliegen 2 u lang eitjes leggen.
- Gebruik de derde plaat als experimentele plaat en gooi de eerste twee platen weg om heterogeniteit in de leeftijd van de embryo's te minimaliseren.
OPMERKING: De initiële eiverzameling bevat vaak embryo's in verschillende ontwikkelingsstadia, omdat vrouwelijke Drosophila bevruchte eitjes enkele uren in het voortplantingstrak kunnen vasthouden voordat ze deze leggen. Het weggooien van de eerste platen helpt om meer gesynchroniseerde eitjes te verkrijgen. - Voor gefaseerde beeldvorming na de eiafzet (AEL), laat de embryo's op de experimentele platen bij 25 °C rijpen tot het gewenste stadium is bereikt: Stadium 1, 24 u; Stadium 2, 48 u; Stadium 3, 72 u; en Stadium 4, 96–120 u.
3. Het reinigen van de larven
- Was de larven met 5 mL van een 5% sucrose-oplossing, gevolgd door 5 mL dH₂O, om gistresten van het oppervlak te verwijderen en uitdroging te voorkomen.
- Breng de larven, gewoonlijk drie of vier, met een 3/0 penseel over naar het deksel van een 35 mm celkweekschaal. Droog de larven met een laboratoriumdoekje om overtollig water te verwijderen.
4. Anesthesie
- Maak de larven schoon en droog ze af vóór de anesthesie.
- Bereid de anesthesie-opstelling vooraf voor (Figuur 1). Plaats de celkweekschaal in de kartonnen doos om de luchtstroom over de schaal te verminderen en verstoring van de isofluraananesthesie te minimaliseren.
WAARSCHUWING: Isofluraan is een vluchtig anestheticum. Hanteer en gebruik isofluraan met passende laboratoriumventilatie en in overeenstemming met de institutionele procedures voor chemische veiligheid. Immobiliseer de larven door het gemeten volume isofluraan toe te voegen aan de anesthetische wand die met ducttape in een 35 mm celkweekschaal is bevestigd, welke dient als verdampingsreservoir. - Plaats het deksel van de celkweekschaal met de schone, droge larven bovenop de celkweekschaal.
- Anestheseer de larven gedurende 2–3 min.
OPMERKING: Het isofluraanvolume en de duur van de anesthesie zijn afhankelijk van het larvale stadium en het aantal larven. Bepaal de hoeveelheid empirisch. Gebruik bijvoorbeeld 10–20 µL isofluraan gedurende 2 min om drie 72 uur oude larven gedurende ongeveer 30 min te anesthetiseren. Gebruik 5 µL ml isofluraan per larve per minuut als startdosis voor immobilisatie, ongeacht het larvale stadium.
5. Monteren
- Maak met Vaseline een rechthoekige of cirkelvormige omheining op een schoon glazen microscoopglaasje en laat in één hoek een kleine opening (Figuur 1C). Gebruik een henna-dispenser om de omheining op het glaasje te tekenen.
- Verplaats de geanestheseerde larven met een schilderspenseel naar de omheining. Monteer de larven met de dorsale zijde naar boven in een druppel Halocarbon Oil 700.
- Plaats een nr. 1,5 dekglas over de larve. Oefen lichte druk uit totdat de Vaseline de opening tussen het dekglas en het objectglas afsluit en de larve lichtjes tegen het microscoopglaasje wordt platgedrukt.
- Beeld het monster onmiddellijk af, gedurende maximaal 30–45 min vanaf de overdrachtstap beschreven in stap 5.2. Stop met het maken van beelden als er blebbing of neuronale schade, inclusief dendritische breuken, in het membraankanaal wordt waargenomen; gebruik in dat geval een lagere dosis anestheticum.
OPMERKING: Zorg ervoor dat er geen luchtbellen in de Halocarbon Oil aanwezig zijn na het plaatsen van het dekglas. Het vermijden van bellen is noodzakelijk voor hoogwaardige dynamische video's en om drift te minimaliseren. Om de vorming van luchtbellen te minimaliseren, laat u in één hoek van de Vaseline-omheining een kleine opening om lucht te laten ontsnappen tijdens het plaatsen van het dekglas. Sluit de opening indien nodig af met een fijn schilderspenseel.
6. Microscopie en beeldacquisitie
- Voer live-imaging uit van de larvale monsters met een spinning-disk confocale microscoop, uitgerust met een pinhole van 50 µm en een perfect-focus systeem.
- Stel de laserlijnen van 488 nm en 561 nm in op 30% van het maximale vermogen, uitgaande van 100 mW lasers, om de microtubuli-marker (zoals mNG-Jupiter) en de membraanmarker CD4tdTomato te visualiseren.
- Stel de belichtingstijd in op 200 ms. Leg de beelden vast met een sCMOS-camera met 6,5 µm sensoren en de bijbehorende software voor beeldacquisitie.
- Verwerven alle beelden met een 40× water-immersie objectief met een numerieke apertuur van 1,25 en een pixelgrootte van 0,1614 µm.
- Focus het monster handmatig om het tweede, derde en vierde abdominale hemisegment van het dorsale oppervlak te lokaliseren, waar klasse IV neuronen gemakkelijk toegankelijk zijn door de transparante cuticula.
- Verwerven voor elke opname een set z-stacks met een diepte tot 10 µm bij een stapgrootte van 1 µm. Neem de stacks op met intervallen van 10 s gedurende 10 of 15 min.
OPMERKING: Tenzij anders aangegeven, worden larven van 72 h AEL gebruikt voor de imaging.
7. Beeldverwerking en -analyse
- Importeer de opgenomen time-lapse-films in .ND2-formaat in FIJI (Fiji Is Just ImageJ) met behulp van de Bio-Formats-importer. Converteer de films naar TIFF-formaat voor verdere analyse.
- Stabiliseer de films om monsterdrift te corrigeren met behulp van de image stabilization-plugin met affine transformatie-instellingen in FIJI.
- Sluit films uit van de analyse als de beweging excessief is. Beschouw een beweging van meer dan 1 µm/min als excessief en sluit deze films uit van de analyse. Sluit films ook uit als er blebbing wordt waargenomen in het membraanmarker-kanaal (CD4tdTomato).
- Vlak de z-stacks af tot tweedimensionale tijdreeksen door maximum-intensiteitsprojecties langs de z-as te genereren in FIJI.
- Teken lineaire regions of interest (ROI's) in FIJI langs het kenmerk van belang om de dynamische eigenschappen van de tips en microtubuli te kwantificeren. Gebruik de Multi Kymograph-plugin in FIJI om kymografen te genereren. Genereer de kymograaf met een linescan van 3 pixels breed langs de ROI en verwerk deze met de Multi Kymograph-plugin in FIJI.
- Extraheer intensiteitsprofielen met de Plot Profile-tool met een lijnbreedte van 3 pixels. Genereer een multicolumn CSV-bestand waarin afwisselende kolommen de positie en intensiteit langs elke linescan coderen.
- Schat de achtergrondintensiteit in op basis van een overeenkomstige ROI in een leeg gebied van het beeldveld. Trek de achtergrondintensiteit af van elk frame.
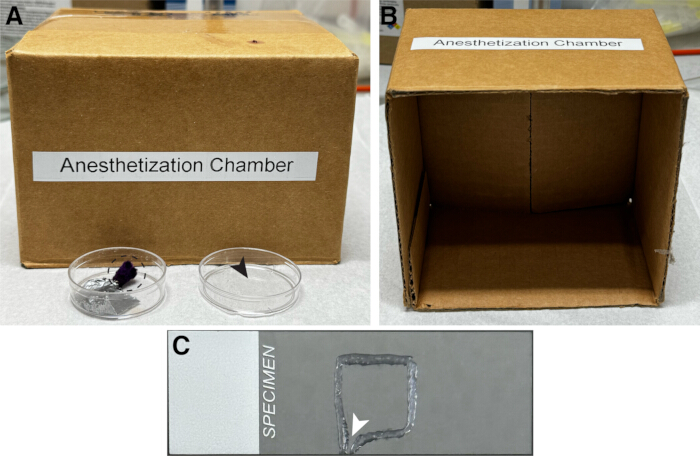
Figuur 1: Componenten van de anesthesie-opstelling. (A) Een klein kartonnen doosje dat een celkweekschaal van 35 mm bedekt, waarin een verdampingsanesthesiestokje is bevestigd met ducttape (zwarte gestreepte cirkel). Het deksel van de celkweekschaal werd gebruikt om schone, droge larven te bewaren vóór en tijdens de anesthesie (zwarte pijl). (B) Binnenzicht van het doosje. (C) Een microscoopglasplaat met een vierkante Vaseline-omheining, geprepareerd met een henna-dispenser om het larvenmonster tijdens de beeldvorming vast te houden. Een kleine opening (witte pijl) vergemakkelijkt de luchtverwijdering tijdens het plaatsen van het dekglas. Klik hier om een grotere versie van deze figuur te bekijken.
Resultaten
Volgens het hierboven beschreven protocol werden microtubuli succesvol gevisualiseerd in dendritische arborisatie (da) neuronen van klasse IV met behulp van mNG-Jupiter in combinatie met de membraanmarker CD4tdTomato (Figuur 2A–C). De membraanmarker bakende de algemene morfologie van de dendritische arbor af, terwijl mNG-Jupiter de microtubuli-bevattende regio's binnen de dendrieten labelde. Aan de distale uiteinden van terminale dendrieten was de mNG-Jupiter-fluorescentie zwak of afwezig nabij de dendritische tips, terwijl de CD4tdTomato-fluorescentie sterk bleef in de corresponderende terminals (Figuur 2D–F).
De dendritische bomen vertoonden geen duidelijke morfologische verschillen in vergelijking met larven die in eerdere studies alleen met de membraanmarker waren afgebeeld11. Om kwantitatief vast te stellen of de expressie van mNG-Jupiter morfologische abnormaliteiten veroorzaakte, werd het aantal dendritische uiteinden geteld in mNG-Jupiter-expresserende bomen en controlebomen op 72 h AEL. In acht cellen van acht mNG-Jupiter-larven was het aantal uiteinden in een kwart van de boom 153 ± 25 (gemiddelde ± SD), vergeleken met 144 ± 27 (gemiddelde ± SD) in controlelarven (Figuur 2G). Met de Welch's t-test werd geen significant verschil gedetecteerd (zie bijschrift Figuur 2). Daarom heeft de expressie van mNG-Jupiter het aantal dendritische vertakkingen niet detecteerbaar veranderd.
Time-lapse imaging toonde het dynamische gedrag van het mNG-Jupiter-signaal binnen terminale dendrieten aan. In de representatieve reeks getoond in Figuur 3A veranderde de positie van het heldere, met mNG-Jupiter gelabelde microtubulusuiteinde in de loop van de tijd. Opeenvolgende line-scans van het mNG-Jupiter-signaal werden in de tijd gerangschikt om veranderingen in de positie en lengte van de microtubuli te visualiseren. Het resulterende kymogram in Figuur 3B laat afwisselende fasen van extensie en retractie van het fluorescentiesignaal zien, wat consistent is met de waargenomen groei en inkrimping van de gelabelde microtubulus in terminale dendrieten (Video's 1 en 2). In dikkere dendrieten dichter bij het soma voorkwam het grotere aantal microtubuli de visualisatie van de dynamiek van individuele microtubuli.
Samen tonen de representatieve afbeeldingen en time-lapse opnamen aan dat het protocol visualisatie mogelijk maakt van zowel de dendritische morfologie als dynamische veranderingen in microtubuli-geassocieerde fluorescentie in intacte sensorische neuronen van Drosophila-larven. De membraanmarker dient als referentie voor de dendritische structuur, terwijl mNG-Jupiter het mogelijk maakt om het gedrag van microtubuli binnen de dendriet in de tijd te volgen (Figuren 2 en 3).
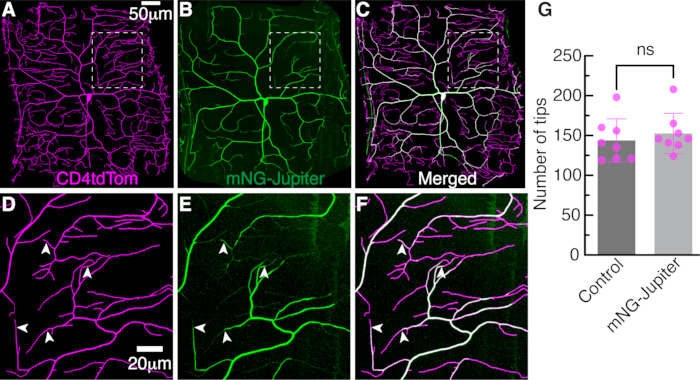
Figuur 2: Dendrieten in klasse IV-neuronen. Het dendritische arborisatiepatroon van een klasse IV dendritische arborisatie (da) neuron, in beeld gebracht met spinning-disk confocale microscopie 72 h na de eiafzetting (AEL). Microtubuli zijn gevisualiseerd met behulp van het GAL4/UAS binaire expressiesysteem. De klasse IV cel-specifieke driver ppk-GAL4 (pickpocket) faciliteert de expressie van mNG-getagd Jupiter (UAS-mNG-Jupiter). Dendritische membranen zijn gemarkeerd door directe ppk promoter-gemedieerde expressie van tdTomato gefuseerd aan de CD4-membraanmarker (ppk-CD4tdTomato). (A) Membraanmarker, CD4tdTomato. (B) Microtubuli-marker, mNG-Jupiter. (C) Samengevoegde afbeelding. (D–F) Vergrote weergaven van de regio's die zijn omkaderd door witte stippellijnen in A–C, illustreren respectievelijk de distributie van de microtubuli- en membraanmarkers. Witte pijlpunten geven de distributie van mNG-Jupiter in terminale dendrieten aan. (G) Kwantificering van het aantal dendritische tips in controle-neuronen en mNG-Jupiter-expresserende neuronen op 72 h AEL. Elke stip representeert het aantal tips geteld binnen één kwart van een enkel neuron van een afzonderlijke larve. In totaal werden acht neuronen van acht onafhankelijke larven per groep geanalyseerd. Foutenbalken representeren het gemiddelde ± SD. Groepen werden vergeleken met een twee-zijdige ongepaarde Welch's t-test; ns, niet significant (P > 0.05). Klik hier om een grotere versie van deze figuur te bekijken.
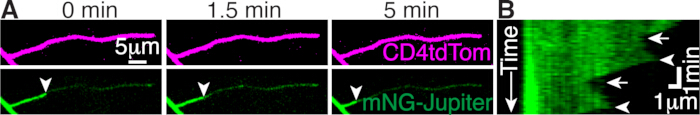
Figuur 3: Microtubuli-dynamiek in een terminale dendriet. (A) Drie beelden van een terminale dendriet die CD4tdTomato (boven) en mNG-Jupiter (onder) tot expressie brengt op de aangegeven tijdstippen. Pijlpuntjes geven het uiteinde van de microtubulus aan. Een zwak mNG-signaal is zichtbaar voorbij het heldere microtubuli-signaal. (B) Kymograaf die de groei en inkrimping van de microtubulus laat zien. Pijlpuntjes geven groeifasen aan en pijlen geven inkrimpingfasen aan. Opeenvolgende 3-pixel brede lijnescans van het mNG-signaal zijn onder elkaar geplaatst, waarbij de tijd in neerwaartse richting toeneemt. Klik hier om een grotere versie van deze figuur te bekijken.
Video 1: Time-lapse beeldvorming van mNG-Jupiter in klasse IV dendritische arborisatie-neuronen. Time-lapse sequentie die mNG-Jupiter fluorescentie toont in Drosophila larvale klasse IV dendrieten. De sequentie illustreert veranderingen in microtubuli-geassocieerde fluorescentie over tijd binnen de dendritische arbor. Beelden zijn verkregen met de live-imaging condities die in het Protocol worden beschreven. Schaalbalk, 20 µm. Klik hier om dit bestand te downloaden.
Video 2: Time-lapse beeldvorming van de CD4tdTomato membraanmarker in klasse IV dendritische arborisatie-neuronen. Time-lapse sequentie die CD4tdTomato fluorescentie laat zien in de overeenkomstige Drosophila larvale klasse IV dendritische arbor. De membraanmarker dient als referentie voor de dendritische morfologie tijdens de beeldvormingsperiode. De beelden zijn verkregen onder de live-imaging condities zoals beschreven in het Protocol. Schaalbalk, 20 µm. Klik hier om dit bestand te downloaden.
Discussie
Dit protocol demonstreert het gebruik van transgene Jupiter-vliegenlijnen voor live-imaging van microtubulusdynamiek in sensorische neuronen van Drosophila met behulp van confocale microscopie. De methode maakt visualisatie van microtubulus-geassocieerde fluorescentie in intacte larven mogelijk, terwijl de dendritische morfologie behouden blijft, zoals beoordeeld met een membraanmarker11,29. Een vergelijkbare aanpak is ook gebruikt om actinedynamiek te beelden met GFP-actine en LifeAct-GFP in klasse IV-neuronen22,30,31,32. In principe kan dezelfde algemene aanpak ook worden toegepast op het beelden van andere microtubulibindende eiwitten in klasse IV-cellen en in andere klassen van neuronen met dendritische arborisatie (klassen I, II en III). In het bijzonder kan het combineren van fluorescente microtubuluslabeling met EB-labeling de ambiguïteit bij de interpretatie van microtubulusgroei verminderen. Zo zou de afwezigheid van een EB-komeet kunnen wijzen op zowel de afwezigheid van microtubuli als de aanwezigheid van microtubuli die niet actief groeien; directe visualisatie van microtubuli kan helpen om deze mogelijkheden te onderscheiden. Co-labeling van mNG-Jupiter met fluorescent EB1 kan dus de interpretatie van de groeidynamiek van microtubuli mogelijk maken binnen de lokale context van de organisatie, overvloed en afgeleide oriëntatie van de microtubuli.
Verschillende stappen zijn cruciaal voor het verkrijgen van geschikte live-imaging data. Het protocol maakt gebruik van het vluchtige anestheticum isofluraan voor een gedefinieerd, kort immobilisatieregime. De dosis isofluraan moet tijdens de immobilisatie zorgvuldig worden gecontroleerd, omdat onvoldoende anesthesie larvale beweging toelaat, terwijl overmatige anesthesie kan leiden tot neuronale degradatie. Luchtbellen moeten tijdens het monteren worden vermeden, omdat ze de beeldkwaliteit kunnen beïnvloeden en kunnen bijdragen aan sample drift. Daarnaast moet overmatige druk van het dekglas worden vermeden, omdat dit kan leiden tot dendritische blebbing en daaropvolgende neuronale schade. Deze stappen zijn belangrijk voor het behouden van de stabiliteit van het monster en de dendritische morfologie gedurende de beeldvorming.
Een belangrijke beperking van dit protocol is dat de immobilisatie- en visualisatiemethode, waarbij gebruik wordt gemaakt van een combinatie van blootstelling aan anesthetica en fysieke beperking door het dekglas, de microtubulidynamiek kan beïnvloeden. Om vast te stellen of microtubuli onder deze omstandigheden worden verstoord, kunnen alternatieve immobilisatiemethoden afzonderlijk of in combinatie met dit protocol worden gebruikt. Dergelijke benaderingen omvatten het beelden van embryo's en het gebruik van temperatuurgevoelige mutanten, zoals Shibirets 33, gevolgd door een vergelijking van kinetische parameters zoals groeisnelheden en de frequentie van catastrofes.
Met deze beperking maakt het huidige protocol het mogelijk om larven gedurende ongeveer 30 minuten na het monteren te beelden zonder dat er dendritische blebbing, verslechtering van de morfologie of verlies van detecteerbare microtubuli- en tipdynamiek optreedt. De methode maakt de acquisitie van tijdreeksgegevens met een hoge resolutie van intacte larven mogelijk en de visualisatie van het dynamische gedrag van microtubuli in terminale dendrieten.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
Dankbetuigingen
De auteurs danken alle leden van het Howard-laboratorium, in het bijzonder oud-laboratoriumlid Dr. Maijia Liao voor het initiëren van het project voor microtubuli-labeling, en Dr. Sonal Shree voor het ontwikkelen van het protocol voor het visualiseren van dendritische dynamiek in Drosophila binnen het Howard-laboratorium. Het onderzoek dat in deze publicatie wordt beschreven, werd ondersteund door de National Institutes of Health onder Award Number R35 GM161634 (National Institute of General Medical Sciences) en Award Number R01 NS118884 (National Institute of Neurological Disorders and Stroke) aan J.H. De inhoud is uitsluitend de verantwoordelijkheid van de auteurs en vertegenwoordigt niet noodzakelijkerwijs de officiële standpunten van de National Institutes of Health. Dit werk werd ook ondersteund door NSF Grant PHY-2210464 en PEW Charitable Trusts Award 38044 aan J.H.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Azijnzuur (geconcentreerd, ACS-reagens, ≥99.7%) | Sigma-Aldrich | 695092 | Wordt gebruikt voor de bereiding van druivenagarmedium; 5 mL per ongeveer 0,5 L bereiding |
| Agar (bactoagar) | Becton Dickinson | 214010 | Wordt gebruikt voor de bereiding van druivenagarmedium; 15 g per ongeveer 0,5 L bereiding |
| Anesthesiepen | Carolina Biological Supply Co. | 173010 | Wordt gebruikt om isofluraan vast te houden in het verdampingsreservoir tijdens de anesthetisering van larven |
| Bekerglas, 1 L, magnetronbestendig | Corning Inc. | 1000-1L | Wordt gebruikt voor de bereiding van ongeveer 0,5 L druiven-agarmedium |
| Bekerglas, 100 mL | Corning Inc. | 1000-100 | Gebruikt voor het bereiden van gistpasta |
| Bio-Formats-importeur | Open Microscopy Environment Project | Niet van toepassing | FIJI-plugin gebruikt voor het importeren van .ND2 time-lapse bestanden |
| Camera (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm sensor; gebruikt voor beeldacquisitie |
| Kartonnen doos (5 × 5 × 3 inch) | Uline | S-4579 | Wordt gebruikt om de anesthesie-opstelling af te dekken en de luchtstroom over de celkweekschaal te verminderen |
| Celkweekschaal | Corning Incorporated | 430165 | 35 × 10 mm; gebruikt voor het hanteren van larven en als reservoir voor de verdamping van isofluraan |
| Dekglas | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, nr. 1,5; geplaatst over de gemonteerde larve |
| Darwin-kamer | Darwin-kamers | IN030-AA-LT-DA-MP | Gebruikt voor het onderhouden van vliegkruisingen, het leggen van eieren en het bepalen van het larvale stadium bij 25 °C |
| Gedestilleerd water, laboratoriumreagenskwaliteit | Research Products International (RPI) | Niet van toepassing | Gebruikt voor de bereiding van druivenagar, de bereiding van gistpasta en het wassen van larven |
| Ducttape | Uline | S-6519 | Wordt gebruikt om de anesthesie-pen in de celkweekschaal te fixeren |
| Eierlegkooi/embryocollectiekooi | Genesee Scientific | 59-100 | Kleine maat; past in een 60 × 15 mm Petrischaal; gebruikt voor gecontroleerde eiverzameling |
| Ethanol (anhydrisch, 200 proof) | Decon Labs Inc. | V1001G | Wordt gebruikt voor de bereiding van druif-agarmedium; 10 mL per circa 0,5 L bereiding |
| FIJI (Fiji Is Just ImageJ) | NIH | Versie 2.16.0/1.54p | Gebruikt voor beeldimport, stabilisatie, maximumintensiteitsprojectie, ROI-analyse, het genereren van kymografen en het extraheren van intensiteitsprofielen |
| Vliegenlijnen: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | Gebruikt voor de expressie van CD4tdTomato en mNG-Jupiter in dendritische arborisatie-neuronen van klasse IV |
| Druivensap, 100% Concord-druif | Welch's | Niet van toepassing | Gebruikt voor de bereiding van druivenagarmedium; 126 mL per circa 0,5 L bereiding |
| Halcarbon olie 700 | Sigma-Aldrich | H8898 | Wordt gebruikt voor het monteren van larven voor live-imaging |
| Henna-dispenser | ZEYER | ZEYER-1005 | Gebruikt om de Vaseline-afsluiting op het microscoopglas plaatje te vormen |
| Beeldstabilisator | Ontwikkeld door Kang Li | Niet van toepassing | FIJI-plug-in gebruikt met instellingen voor affiene transformatie om monsterdrift te corrigeren |
| Isofluraan | Santa Cruz Biotechnology, Inc. | sc-470926 | Wordt gebruikt om larven te immobiliseren voorafgaand aan het monteren en afbeelden |
| Laboratoriumdoekjes (Kimwipes) | Kimberly-Clark Professional | 34120 | Wordt gebruikt om overtollig water te verwijderen van gewassen larven vóór de anesthesie |
| Onderhoudsfles | Lab Express Inc. | 7001-PBT | Vierkantbodem polypropyleen fles, 6 oz; bevat Fly Food B (Bloomington-recept) en wordt gebruikt voor het onderhouden van vliegenstammen en kruisingen |
| Magnetron | Panasonic | NN-SN686S | Gebruikt om agar op te lossen tijdens de bereiding van druiven-agarmedium |
| Inverteerde microscoop | Nikon Instruments Inc. | 736228 | Ti Eclipse omgedraaide microscoop uitgerust met een perfect-focus systeem voor live imaging |
| Microscoopglaasje | Fisherbrand | 12550143 | Superfrost-preparaatglas; gebruikt voor het monteren van larven voor beeldvorming |
| Multi-kymograaf | Ontwikkeld door Jens Rietdorf, Arne Seitz en Johannes Schindelin | Niet van toepassing | FIJI-plugin gebruikt om kymografen van microtubulusdynamiek te genereren |
| Nikon Elements software | Nikon Instruments Inc. | Versie 5.21.03 | Gebruikt voor de acquisitie van time-lapse microscopiebeelden en het genereren van .ND2-bestanden |
| objectief, waterimmersie | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; gebruikt voor live imaging |
| Schilderkwast | Dynastie | 2157r | Maten 0 en 3/0; gebruikt om larven over te brengen en de vaseline-afsluiting te verzegelen |
| Petrischaal | Falcon | 351007 | 60 × 15 mm; gebruikt voor druiven-agarplaten |
| Spatel | VWR | 82027-532 | 22,9 cm (9 in); gebruikt om gist en water te mengen tijdens de bereiding van het gistpasta-mengsel |
| Spinning-disk confocale eenheid | Yokogawa CSU-W1 | SBW001 | 50 µm pinhole; gebruikt voor live confocale beeldvorming |
| Sucrose | Sigma-Aldrich | 57-50-1 | Gebruikt in druiven-agarmedium en als 5% oplossing voor het wassen van larven |
| Vaseline | Unilever | Niet van toepassing | Wordt gebruikt om de afsluiting tussen het microscoopglaasje en het dekglas te vormen |
| Gist (Red Star Active Dry Yeast) | Lesaffre Corporation | Niet van toepassing | Wordt gebruikt voor het bereiden van gistpasta en ter ondersteuning van de eiafzet |
Referenties
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar