Dit protocol beschrijft microfluïdische levensduuranalyse via time-lapse microscopie van Saccharomyces cerevisiae gameten verkregen uit jonge of verouderde precursorcellen.
Methodenartikel
Een op microfluidica gebaseerde assay voor de ontdekking van gametogene verjongingsfactoren in Saccharomyces cerevisiae
In dit artikel
Samenvatting
Samenvatting
Saccharomyces cerevisiae veroudert progressief door asymmetrische celdelingen, waarbij ouderdomsgerelateerde schade in de moedercel wordt behouden terwijl er jonge dochtercellen worden geproduceerd. Gametogenese reset de replicatieve levensduur van verouderde cellen volledig, waardoor de verouderingsklok voor de volgende generatie wordt teruggedraaid. Hoewel gametogene verjonging bij gist eerder is beschreven, ontbraken technieken om het resetten van de replicatieve levensduur op high-throughput wijze te kwantificeren. Voorgaande methoden voor het kwantificeren van verjonging na gametogenese waren beperkt tot low-throughput, arbeidsintensieve benaderingen die vertrouwden op herhaalde handmatige micromanipulatie van individuele cellen. Hier beschrijven we in detail een high-throughput microscopie-assay op basis van microfluidics die systematische karakterisering mogelijk maakt van de factoren die vereist zijn voor gametogene verjonging in S. cerevisiae. Deze methode maakt gebruik van twee inerte genetische modificaties die microfluidics-gebaseerde beoordeling van de replicatieve levensduur van gameten mogelijk maken. Na sortering op leeftijd en tetradedissociatie worden conditioneel steriele gameten geladen in microfluidics-gebaseerde imaging-apparaten en geïdentificeerd met behulp van een gamet-specifieke marker. Lange-termijn time-lapse imaging maakt robuuste tracering en vergelijking mogelijk van de replicatieve levensduren van gameten afgeleid van jonge en verouderde precursorcellen. Hier bieden we een stapsgewijs protocol dat systematische kwantificering van de levensduur van gameten en high-throughput identificatie van moleculaire factoren die gametogene cellulaire verjonging in S. cerevisiae mediëren, mogelijk maakt.
Inleiding
Saccharomyces cerevisiae-cellen verouderen replicatief tijdens de mitose door asymmetrisch te delen, waarbij ouderdomsgerelateerde schade in de moedercel blijft terwijl er jonge dochtercellen worden geproduceerd1,2,3,4. De replicatieve levensduur van gist is daarom beperkt, gedefinieerd als het aantal dochtercellen dat een gegeven moedercel produceert vóór haar terminale deling, gevolgd door senescentie en uiteindelijk de dood. Opvallend genoeg, als een verouderde S. cerevisiae-cel de gametogenese voltooit, wordt de replicatieve levensduur van alle resulterende gameten volledig gereset, waardoor ze ononderscheidbaar zijn van gameten afgeleid van jonge precursorcellen5,6,7,8,9 (Figuur 1A). Sinds de initiële ontdekking van gametogene verjonging bij gist zijn meerdere belangrijke factoren geïdentificeerd die ouderdomsgerelateerde schade tijdens de gametogenese opruimen, maar de afwezigheid van high-throughput technieken heeft het uitdagend gemaakt om de impact van deze routes op de levensduur van gameten te onderzoeken6. De kwantificering van de replicatieve levensduur van gameten was historisch afhankelijk van het handmatig scoren van celdelingen met een fluorescentiemicrodissectiemicroscoop, waarbij de replicatieve levensduur van gameten over meerdere dagen wordt gescoord door continu tellen en handmatige verwijdering van de gegenereerde dochtercellen7. Hoewel de replicatieve levensduur van gameten met deze techniek kan worden geanalyseerd, heeft het arbeidsintensieve en tijdrovende karakter geleid tot een marginale implementatie in het vakgebied gedurende het afgelopen decennium10,11. Het feit dat er sinds de initiële ontdekking geen specifieke moleculaire routes zijn aangetoond die direct bijdragen aan gametogene verjonging7, onderstreept de beperkingen van de huidige techniek en de noodzaak van een geautomatiseerde high-throughput assay.
In recente jaren zijn nieuwe microfluidica-gebaseerde benaderingen in de plaats gekomen van de kwantificering van de replicatieve levensduur via micromanipulatie, waardoor de noodzaak voor handmatige scheiding van dochtercellen vervalt12. Verschillende vallen zijn ontwikkeld om moedercellen in beeldvormingskamers vast te leggen en vast te houden, waarbij een constante stroom van vers medium gedurende hun volledige replicatieve levensduur over hen heen vloeit, waardoor nieuw gevormde dochtercellen worden weggespoeld. Parallelisatie van meerdere beeldvormingskamers maakt het verder mogelijk om de replicatieve levensduur van honderden cellen met verschillende genetische achtergronden gedurende meerdere dagen in één enkel experiment vast te leggen13,14,15,16,17,18,19. Hoewel deze microfluidica-gebaseerde benaderingen nu de voorkeur hebben voor vegetatief groeiende haploïde gistcellen, is de toepassing van deze techniek voor het meten van de replicatieve levensduur van gistgameten tot nu toe niet gerapporteerd.
Drie belangrijke technische en biologische obstakels belemmeren de beoordeling van de replicatieve levensduur van S. cerevisiae-gameten met behulp van microfluïdische apparaten. Ten eerste ondergaat een diploïde gistcel tijdens de gametogenese twee meiotische delingen en vormt een dichtgepakte tetrade die vier haploïde gameten bevat met een 2:2 segregatie van de twee paringstypen, MATa en MATα (Figuur 1A). Wanneer MATa- en MATα-gameten in microfluïdische apparaten worden geladen, zullen uitgescheiden paringsferomonen een paringsrespons in naburige cellen induceren, wat leidt tot groeistop, abnormale celmorfologieën en verstopping van de microfluïdische apparaten. Ten tweede scheiden de vier gameten binnen een tetrade-ascus zich niet natuurlijk tijdens de kieming. Zonder handmatige scheiding kunnen dus alleen volledige tetraden in microfluïdische kamers worden gevangen. De verminderde retentie van niet-gescheiden tetraden in de vallen en de onmogelijkheid om individuele delingen van de vier nog verbonden gameten te volgen, maken de beoordeling van de replicatieve levensduur van elke individuele gamet onmogelijk. Ten derde, indien tetraden vóór het laden in microfluïdische apparaten worden gescheiden in individuele gameten, zijn deze aanzienlijk kleiner dan vegetatief groeiende cellen en worden ze niet opgevangen door standaardvallen (Figuur 2A–C).
Om deze beperkingen te overwinnen, combineerden Spiri et al. 20269 inerte genetische modificaties, tetradenscheiding en gametengroei, samen met een gametenspecifieke marker om microfluidica-gebaseerde high-throughput kwantificering van de replicatieve levensduur van gameten en karakterisering van factoren die nodig zijn voor gametogene verjonging in S. cerevisiae mogelijk te maken (Figuur 1B–F). Ten eerste werd, om paring na kieming te voorkomen zonder standaard genetische kruisingen te hinderen, een conditioneel steriel allel ontwikkeld (Figuur 3A). Ten tweede werd, om tetraden te scheiden in enkelvoudige gameten, een Zymolyase-behandeling, die de buitenste sporenwand verzwakt, gecombineerd met mechanische manipulatie. Ten derde werd, om efficiënte identificatie van gameten mogelijk te maken, zelfs na scheiding en de korte groei die vereist is voor het gebruik van standaard microfluidische traps, een langdurige, behouden gametenspecifieke fluorescente reporter geïntroduceerd. Met deze aanpak kunnen enkelvoudige gameten, afgeleid van eerder gesorteerde jonge en oude precursorcellen, worden geïsoleerd en in microfluidische apparaten worden geladen om continue time-lapse imaging over 72 h uit te voeren, wat kwantitatieve analyse en vergelijking van de replicatieve levensduur van gameten uit jonge en oude precursorcellen mogelijk maakt9. Het hier beschreven gedetailleerde protocol verbetert de haalbaarheid en throughput van de analyse van de levensduur van gameten in zowel oude als jonge precursorcellen aanzienlijk, waardoor directe identificatie van de moleculaire paden die cellulaire verjonging tijdens gametogenese mediëren, mogelijk wordt.
Protocol
Een gedetailleerde lijst van reagentia en apparatuur die in dit protocol worden gebruikt, staat vermeld in de Tabel met Materialen.
1. Replicatieve veroudering van founder-cellen
OPMERKING: Alle experimenten die gebruikmaken van het onderstaande protocol worden uitgevoerd in diploïde S. cerevisiae-cellen van de SK1-stamachtergrond met de volgende minimale genetische achtergrond: pPMA2-PMA2-eGFP, ste5::NATR-pTet07.1-STE5, pRNR2-TetR-TUP1, pTetO7.1-TetR, flo8Δ, amn1D368V. Voor alle culturen die worden geïncubeerd in glazen kolven mag het cultuurvolume 1/5 van het kolfvolume niet overschrijden om een goede beluchting te garanderen.
- Ontdooi diploïde cellen op gistextract-pepton (YP) glycerolplaten en incubeer deze overnight bij 30 °C. Transfer de diploïde cellen naar YP-dextrose (YPD) platen en incubeer bij 30 °C (>8 u).
- Inoculeer vers ontdooide diploïden in 5 mL vloeibaar YPD (2% dextrose). Schud de culturen (300 rpm) overnight bij kamertemperatuur (>12 u).
- Verdun de startcultuur opnieuw tot een optische dichtheid bij 600 nm (OD600) = 0,2 in 30 mL YPD (2% dextrose). Schud de culturen (300 rpm) 3–4 u bij 30 °C totdat de culturen een dichtheid van OD600 = 0,6–1 bereiken.
- Zorg ervoor dat u begint met voldoende cultuur om per genotype 16 OD600 eenheden cellen te kunnen labelen. Transfer 2 x 8 OD600 eenheden cellen voor elk genotype naar een kegelvormige buis van 50 mL.
- Aanbevolen: splits de 16 OD600 eenheden in twee monsters (elk 8 OD600 eenheden) om twee onafhankelijke founder-celculturen per genotype op te zetten. Combineer na de sortering op leeftijd (stap 2.16) de verouderde cellen van de twee founder-celculturen om de totale opbrengst aan verouderde cellen te verhogen.
- Centrifugeer de kegelvormige buis van 50 mL gedurende 2 min bij 1.900 x g en schenk het supernatant af. Resuspendeer het pellet in 20 mL fosfaatgebufferde zoutoplossing (PBS) (pH 8).
- Herhaal stap 1.6 nog twee keer voor in totaal drie wasbeurten in PBS (pH 8). Bereid een biotine-oplossing van 8 mg/mL voor (500 μL nodig per 8 OD600 eenheden cellen).
- Weeg biotine af (4 mg/monster) en suspendeer het poeder volledig in PBS (pH 8) om een eindconcentratie van 8 mg/mL te bereiken (500 μL nodig per monster). Resuspendeer de cellen na de derde wasbeurt in 1 mL PBS (pH 8).
- Verdeel 500 μL van de celsuspensie over twee centrifugebuisjes met lage adhesie, waarbij de initiële 2 x 8 OD600 eenheden worden gesplitst. Voeg 500 μL biotine-oplossing (8 mg/mL) toe aan elk centrifugebuisje voor een totaalvolume van 1 mL (Figuur 1B).
- Sluit het deksel af met parafilm en vortex gedurende 1 minuut. Verouderde cellen zijn gevoelig voor mechanische stress; dit is de laatste keer dat de cellen worden gevortexed. Resuspendeer celpellets vanaf nu door voorzichtig met een pipet op en neer te pipetteren.
- Transfer de centrifugebuisjes naar een roterend rek en incubeer 30 min bij 4 °C. Centrifugeer 2 min bij 1.900 x g en pipetteer vervolgens het supernatant af. Resuspendeer het pellet in 1 mL PBS (pH 8 + 100 mM glycine) om overtollige biotine chemisch te quenchen.
- Herhaal stap 1.11 nog drie keer voor in totaal 3 wasbeurten met PBS (pH 8 + 100 mM glycine). Resuspendeer de cellen in 1 mL YPD (2% dextrose).
- Centrifugeer 2 min bij 1.900 x g en pipetteer het supernatant af. Bereid voor elk biotine-gelabeld monster culturen van 50 mL YPD (2% dextrose) + ampicilline (100 µg/mL) in kolven van 500 mL.
- Resuspendeer de biotine-gelabelde cellen in 1 mL YPD (2% dextrose) en voeg deze toe aan de kolf van 500 mL. Meet de optische dichtheid (OD600) van de founder-cultuur om het aantal generaties voor de volgende dag te schatten.
- Schud de founder-culturen (300 rpm) overnight (16–18 u) bij 30 °C om replicatieve veroudering te bewerkstelligen (Figuur 1B). Dit resulteert in ongeveer 6–7 delingen van elke biotine-gelabelde founder-cel.
2. Isolatie van verouderde stamcellen
OPMERKING: Bewaar PBS (pH 7.4) + BSA (5 g/L) bij 4 °C en houd dit tijdens het experiment op ijs.
Zorg bij het herverdunnen van celpellets dat deze volledig zijn geresuspendeerd en gemengd om verstopping van de kolom te voorkomen en de sorteerefficiëntie te maximaliseren. Om de zuiverheid van de populatie verouderde cellen te verhogen, worden twee opeenvolgende sorteerstappen uitgevoerd door het eluaat van de eerste sorteerkolom opnieuw aan te brengen op een verse tweede sorteerkolom. Deze procedure levert populaties verouderde cellen op met minimale contaminatie door jonge cellen (90–98% zuiverheid). Verouderde cellen zijn gevoelig voor mechanische stress; resuspendeer celpellets door voorzichtig op en neer te pipetteren met een serologische pipette.
- Registreer na 16–18 u incubatie de optische dichtheid (OD600) van elke startcultuur. Bereken het geschatte aantal generaties (gemiddelde leeftijd = log2(OD600Einde / OD600Start)).
- Centrifugeer elke cultuur 2 min bij 1.900 x g in 50 mL conische buizen en schenk het supernatant af. Resuspendeer het pellet met 20 mL PBS (pH 7.4 + BSA (5 g/L)) door herhaaldelijk op te zuigen en uit te pipetteren met een serologische 25 mL pipette.
- Herhaal stap 2.2 eenmaal. Meng het flaconnetje met de Anti-Biotin MicroBeads-suspensie door inversie. Voeg met een afgeknipt pipetpunt 100 μL Anti-Biotin MicroBeads toe aan de celsuspensie.
- Meng door inversie. Incubeer 15 min bij 4 °C. Incubeer op een roterend rek of keer de buis elke 5 min ten minste 3–4 keer om (Figuur 1C).
- Stel het QuadroMACS-magneetrek, de kolommen en de pre-separatiefilters (30 µm) op. Plaats een opvangbak onder de kolom om alle doorstroomafval op te vangen.
- Prime elk filter/kolom met 3 mL PBS (pH 7.4 + BSA (5 g/L)). Label voor elke kolom en conditie twee 15 mL conische buizen (één voor "aged cell eluate" en één voor "young cell flow-through").
- Centrifugeer de celsuspensies 2 min bij 1.900 x g en schenk het supernatant af. Resuspendeer het pellet met 20 mL PBS (pH 7.4 + BSA (5 g/L)) en centrifugeer opnieuw.
OPMERKING: Deze stap is belangrijk om overtollige vrije Anti-Biotin MicroBeads te verwijderen, die anders de kolom zouden verzadigen. - Resuspendeer het celpellet volledig in 5 mL PBS (pH 7.4 + BSA (5 g/L)) en breng dit aan op de eerste sorteerkolom (Figuur 1C). Label de kolommen met het toegepaste genotype ter referentie.
- Vang de eerste flow-through op in de 15 mL conische buizen met het label "young cell flow-through". Vervang de 15 mL conische buizen door een opvangbak voor afval zodra de celsuspensie door de kolom is gestroomd.
- Combineer de twee young cell flow-through-suspensies van hetzelfde genotype in één 15 mL conische buis. Verdun 250 μL van de gecombineerde young cell flow-through met 9,75 mL PBS (pH 7.4 + BSA (5 g/L)) in een nieuwe 15 mL conische buis. Zet dit apart met het label "diluted young cells" voor latere stappen.
- Was elke kolom 4x met 3 mL PBS (pH 7.4 + BSA (5 g/L)). Voeg bij de eerste wasbeurt 3 mL PBS (pH 7.4 + BSA (5 g/L)) toe aan de 50 mL conische buis waarin de celsuspensie zat. Breng dit over naar de overeenkomstige kolom om eventuele resterende cellen op de kolom aan te brengen. Was de kolom daarna 3 keer met verse 3 mL PBS (pH 7.4) + BSA (5 g/L).
- Stel nieuwe kolommen en pre-separatiefilters (30 µm) op voor de tweede sortering. Prime elk filter/kolom met 3 mL PBS (pH 7.4 + BSA (5 g/L)).
- Verwijder de eerste kolom van de magneet en houd deze boven de tweede kolom voor de tweede sortering. Voeg 5 mL PBS (pH 7.4 + BSA (5 g/L)) toe aan de eerste kolom en druk gestaag (voorzichtig maar stevig) met de meegeleverde plunjer om de verouderde cellen te elueren.
- Breng de geëlueerde verouderde cellen aan op de tweede kolom. Label de kolommen met het toegepaste genotype ter referentie.
- Was elke kolom 3 keer met 3 mL PBS (pH 7.4) + BSA (5 g/L). Verwijder de kolom van de magneet en plaats deze in een 15 mL conische buis met het label aged cell eluate. Voeg 5 mL PBS (pH 7.4) + BSA (5 g/L) toe aan de kolommen en druk gestaag (voorzichtig maar stevig) met de meegeleverde plunjer om de verouderde cellen te elueren.
- Combineer twee eluaten van de twee onafhankelijke startculturen van hetzelfde genotype om de totale opbrengst van verouderde cellen te verhogen (zie stap 1.5).
3. Fluorescent labelen van knoplittekens en biotine
OPMERKING: Wanneer cellen zijn gelabeld met fluorescerende kleurstoffen, moeten ze tijdens de incubatie tegen licht worden beschermd. Geconditioneerd gametogenese-inducerend medium wordt verkregen door een gametogenese-inducerende cultuur in standaard gametogenese-inducerend medium 5 h na de inductie van de gametogenese steriel te filtreren. Bewaar geconditioneerd gametogenese-inducerend medium afgesloten met parafilm bij 4 °C.
- Centrifugeer de gecombineerde suspensie van oude en verdunde jonge cellen gedurende 2 min bij 1.900 x g en schenk het supernatant af. Resuspendeer de cellen in 12 mL PBS (pH 7).
- Herhaal stap 3.1 tweemaal en resuspendeer de cellen bij de tweede keer in 4 mL PBS (pH 7). Voeg aan elke buis 4 μL fluorescent gelabeld tarwekiemagglutinine (1 µg/mL) en 4 μL fluorescent gelabeld streptavidine (1 µg/mL) toe (Figuur 1C).
- Incubeer gedurende 15 min in het donker bij kamertemperatuur. Keer de buizen elke 5 min 3–4 keer om. Centrifugeer de cellen gedurende 2 min bij 1.900 x g en schenk vervolgens het supernatant af.
- Resuspendeer in 12 mL gametogenese-inducerend medium. Herhaal het centrifugeren en de resuspensiewas drie keer; resuspendeer de cellen na de laatste wasbeurt in 2 mL geconditioneerd gametogenese-inducerend medium met ampicilline (100 µg/mL).
4. Inductie van gametogenese en analyse van leeftijdssortering
WAARSCHUWING: Formaldehyde is toxisch en irriterend; hanteer dit in een chemische zuurkast met het gebruik van geschikte persoonlijke beschermingsmiddelen (PBM).
- Meet de dichtheid (OD600) van de resuspendeerde cel-suspensie (uit stap 3.4). Verdun de culturen tot een OD600 van 0,8 met geconditioneerd gametogenese-inducerend medium bevattend ampicilline (100 µg/mL) en breng deze vervolgens over naar een glazen kolf.
OPMERKING: Het volume hangt af van de totale opbrengst van verouderde cellen; een definitief cultuurvolume van 10 mL is voldoende voor downstream toepassingen. - Verdeel aliquoten van 135 μl verdunde pre-gametogene cultuur over 1,5 mL centrifugebuisjes die 15 μl formaldehyde (37%) bevatten. Roteer en incubeer gedurende 15 min bij kamertemperatuur. Bewaar bij 4 °C.
- Schud de culturen (300 rpm) gedurende 24 u bij 30 °C om de gametogenese te voltooien (Figuur 1C).
PAUSEERPUCKT: De beeldvorming van met formaldehyde gefixeerde cellen kan op elk gewenst moment worden uitgevoerd. Het wordt echter aanbevolen om de sorteerefficiëntie van verouderde cellen te verifiëren voordat men verdergaat met de rest van het protocol. Cellen kunnen tot 48 u worden bewaard in formaldehyde-fixatiemedium bij 4 °C. Voor langdurige bewaring dient de formaldehyde-houdende oplossing te worden vervangen door sorbitol (1,2 M) en bewaard te worden bij -20 °C. - Centrifugeer de met formaldehyde gefixeerde cellen vóór beeldvorming gedurende 2 min bij 1.900 x g. Pipetteer het supernatant af in een speciale afvalbak voor formaldehyde.
- Resuspendeer in 20 μL sorbitol (1,2 M). Voeg 3,3 μL van de cel-suspensie toe aan een standaard objectglas en breng een dekglas van 22 x 22 mm aan.
- Neem een z-stack op inclusief het volledige celvolume in de DAPI-, mCherry-, FITC- en differential interference contrast (DIC)-kanalen om het aantal bud scars, de biotine-labeling en Pma2-GFP te beoordelen (Figuur 1C en Figuur 4A; respectievelijk weergegeven in magenta, geel en cyaan).
- Ga door met het vastleggen van ten minste 50 cellen per conditie.
5. Beeldanalyse om de efficiëntie van biotinylering en het aantal knoplittekens te beoordelen
PAUSEPUNT: Beeldanalyse om de scheiding op basis van leeftijd te verifiëren kan op elk gewenst moment worden uitgevoerd. Het wordt echter aanbevolen om de sorteerefficiëntie te verifiëren voordat u verdergaat met de rest van het protocol.
OPMERKING: Afbeeldingen worden gekwantificeerd met behulp van aangepaste semi-automatische Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 macro's. Specifieke opmerkingen over de macro-invoeren staan vermeld in de koptekst van elke macro en moeten worden aangepast aan de individuele invoergegevens.
- Open Fiji/ImageJ. Sleep en laat de macro Manual ROI Selection and TIFF Export (Supplementary File 1) in Fiji/ImageJ vallen om deze te openen.
- Klik op Run in het macrovenster. Selecteer de in- en uitvoermappen zoals gevraagd en klik op OK.
- Teken een rechthoek rond de cellen van belang en voeg elke rechthoek handmatig of via de sneltoets t toe aan de region of interest (ROI) manager. Sluit de gehele cel in de rechthoek en laat aan elke zijde een marge van ongeveer één celdiameter over.
- Zodra alle ROI's van de eerste afbeelding aan de ROI-manager zijn toegevoegd, klikt u op OK in het promptvenster: Action Required (all ROI selected and saved to ROI manager (t)?) (Supplementary Figure 1). Alle gekozen ROI's worden automatisch bijgesneden en opgeslagen. De volgende afbeelding in de inputmap wordt automatisch geopend.
- Herhaal stappen 5.3–5.4 voor alle afbeeldingen in de inputmap. De macro stopt zodra alle afbeeldingen in de inputmap zijn verwerkt. Sleep en laat de macro Single-Cell 3D and Z Projection (Supplementary File 2) in Fiji/ImageJ vallen om deze te openen.
- Pas indien nodig de slice-afstand aan in het commando 3D Project…. Klik op Run in het macrovenster. Selecteer de in- en uitvoermappen zoals gevraagd en klik op OK.
OPMERKING: De macro wordt automatisch uitgevoerd, er is geen input van de gebruiker nodig. De macro stopt zodra alle afbeeldingen in de map zijn verwerkt. - Verplaats alle afbeeldingen genaamd Y_projection… naar een nieuwe inputmap voor het tellen. Sleep en laat de macro Manual Budscar and Biotin Annotation (Supplementary File 3) in Fiji/ImageJ vallen om deze te openen.
- Klik op Run in het macrovenster. Selecteer de in- en uitvoermappen zoals gevraagd en klik op OK. Tel de budscars door de cel in 3D te roteren.
OPMERKING: Elke DAPI- en mCherry-positieve ringachtige structuur wordt geteld als één budscar, tenzij ze overlappen en hetzelfde budscar-event vertegenwoordigen. De grote, gevulde, cirkelvormige biotin-positieve (mCherry) markering op elke cel vanaf de geboorte wordt niet meegeteld in het totale aantal budscars (Figure 4A). - Klik op OK in het promptvenster: Action Required (Number of bud scars?). Selecteer het getelde aantal budscars in het promptvenster en klik vervolgens op OK (Supplementary Figure 2).
- Stel vast of de cel biotin-gelabeld is door het mCherry-signaal te inspecteren. Als een cel aanwezig was tijdens de biotin-labeling, is de gehele cel mCherry-positief (Figure 4A).
- Klik op OK in het promptvenster: Action Required (Biotin label: No = 0/ Yes = 1?). Kies 0 als de cel geen biotin-label heeft en 1 als de cel een biotin-label heeft. Klik in het venster Other op OK (Supplementary Figure 3).
- De resultaten worden automatisch geregistreerd in het Log-venster en opgeslagen als een .txt-bestand in de uitvoermap. Sluit het Log-venster niet tijdens het tellen.
- De volgende afbeelding wordt automatisch geopend. Herhaal stappen 5.9–5.13 voor alle afbeeldingen in de inputmap. De macro stopt zodra alle afbeeldingen in de inputmap zijn verwerkt.
6. Beoordeel de efficiëntie van de gametogenese en analyseer de leeftijd van de tetraden
OPMERKING: Het is belangrijk om de scheiding van tetraden op basis van leeftijd opnieuw te verifiëren om gametogenese-specifieke verarming van verouderde cellen uit te sluiten. Gebruik dezelfde analysepijplijn als voor de pre-gametogene cellen beschreven in stap 5 (Beeldanalyse om de efficiëntie van biotinylering en het aantal bud-littekens te beoordelen), met als verschil dat voor post-gametogene condities alleen tetraden worden uitgesneden en gebruikt voor analyse, aangezien alleen gameten binnen tetraden de Zymolyase-behandeling overleven en zo bijdragen aan de gametenpopulatie. Beelden worden gekwantificeerd met behulp van aangepaste semi-geautomatiseerde Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 macro's. Specifieke opmerkingen over de macro-inputs staan in de koptekst van elke macro en moeten worden aangepast aan de individuele inputgegevens.
PAUZEPUNT: De bepaling van de sporulatie-efficiëntie kan worden uitgevoerd na het opzetten van de sporenscheiding door een aliquot (100 μl) van de initiële cultuur in een centrifugebuis apart te zetten voor het tellen.
- Bepaal de sporulatie-efficiëntie door het aantal monaden, dyaden en tetraden voor 300 cellen uit elke cultuur te tellen met een lichtmicroscoop.
- Schenk na 24 u in gametogenese-inducerende media 135 μL van de verdunde post-gametogenese cultuur (uit stap 4.3) in buisjes die 15 μL formaldehyde (37%) bevatten.
- Roteer en incubeer 15 min bij kamertemperatuur. Bewaar bij 4 °C.
PAUSEPUNT: Indien de ouderdomssortering voor pre-gametogene cellen is beoordeeld, kan de beeldvorming van formaldehyde-gefixeerde tetraden op elk gewenst moment worden uitgevoerd. Cellen kunnen tot 48 u worden bewaard in formaldehyde-fixatiemedia bij 4 °C. Voor langdurige bewaring kan de formaldehyde-bevattende oplossing worden vervangen door sorbitol (1.2 M) en bewaard worden bij -20 °C. - Centrifugeer de formaldehyde-gefixeerde cellen vóór beeldvorming 2 min bij 1.900 x g. Pipetteer het supernatant af in een speciale container voor formaldehyde-afval.
- Resuspendeer in 20 μL sorbitol (1.2 M). Voeg 3,3 μL van de celsuspensie toe aan een standaardpreparaat en breng een dekglas van 22 x 22 mm aan.
- Neem een z-stack op inclusief het volledige celvolume in de DAPI-, mCherry-, FITC- en DIC-kanalen om het aantal bud scars, de biotine-labeling en PMA2-GFP te beoordelen (Figuur 1D en Figuur 4A; respectievelijk weergegeven in magenta, geel en cyaan).
- Zet de acquisitie voort voor ten minste 50 tetraden per conditie.
PAUSEPUNT: Indien de ouderdomssortering voor pre-gametogene cellen is beoordeeld, kan de analyse van de biotine-labeling-efficiëntie en het aantal bud scars op tetraden op elk gewenst moment worden uitgevoerd. - Analyseer de biotine-labeling-efficiëntie en het aantal bud scars van post-gametogene tetraden zoals beschreven in stap 5.
7. Scheiding van tetraden in enkelvoudige gameten
OPMERKING: Na behandeling met Zymolyase zijn cellen zeer plakkerig; wees voorzichtig bij het resuspenderen van celpellets om aspiratie of verlies ervan te voorkomen. Bereid YPD (2% dextrose) + ampicilline (100 µg/mL) vers en filtergesteeriliseerd op de dag van het experiment om ongewenst residu of neerslag te elimineren.
WAARSCHUWING: β-mercaptoethanol is giftig en vluchtig; hanteer dit in een zuurkast onder gebruik van geschikte PBM.
- Breng de culturen (uit stap 4.3) na 24 uur in gametogenese-inducerend medium over naar 15 mL conische buisjes. Centrifugeer gedurende 2 min bij 1.900 x g en schenk het supernatant af.
- Resuspendeer in 900 μl steriel gedeïoniseerd H2O en breng over naar 1,5 mL low adhesion-buisjes. Voeg 100 μL Zymolyase (1 mg/mL) toe.
- Voeg in een zuurkast 2 μL β-mercaptoethanol toe. Sluit de buisjes af met parafilm, plaats ze in een roteerrek en incubeer gedurende 3 u bij 30 °C (Figuur 1D).
- Breng de suspensie na 3 u incubatie over naar een 15 mL conisch buisje. Pipetteer voorzichtig: de cellen zijn zeer plakkerig. Centrifugeer de monsters gedurende 2 min bij 1.900 x g. Pipetteer het supernatant volledig en voorzichtig af, waarbij de plakkerige pellet wordt vermeden, en resuspendeer vervolgens in 1 mL steriel gedeïoniseerd H2O.
- Herhaal stap 7.4 eenmaal. Behandel de monsters met een handsonicator (Figuur 1D). Sonicateer de monsters gedurende 20 seconden bij 1 puls/seconde en een duty cycle van 50%. Plaats de monsters tussen elke sonicatiecyclus 1 minuut op ijs.
- Was de sonicator tussen de monsters door met 70% ethanol. Herhaal de in stap 7.5 beschreven sonicatieprocedure nog vijf keer, voor in totaal zes sonicatiecycli.
- Verifieer de scheiding van tetraden met een lichtmicroscoop (Figuur 3B). Voeg 1 mL YPD (2% dextrose) + ampicilline (100 µg/mL) (gefilterd gesteriliseerd op de dag van het experiment) toe aan elk monster.
- Verdun opnieuw tot OD600 = 0,8 met YPD (2% dextrose) + ampicilline (100 µg/mL). Het volume is afhankelijk van de totale opbrengst van gescheiden cellen.
OPMERKING: Het maximale volume is 12 mL indien 15 mL conische buisjes worden gebruikt. - Filtreer de culturen via een pre-separatiefilter in een nieuw 15 mL conisch buisje. Plaats ze in een roteerrek en incubeer bij 30 °C gedurende 3 u voordat ze in de microfluïdische apparaten worden geladen (Figuur 1D).
8. Voorbereiding van het microfluïdische apparaat
OPMERKING: Deze sectie beschrijft de installatie van microfluïdische apparaten (Figuur 2A–C>) volgens de aanbevelingen van de fabrikant, met gebruik van een omgekeerde fluorescentiemicroscoop met een klimaatbeheersingskamer. Gebruik 70% ethanol om het werkgebied, de scharen, de slangjes en de handschoenen gedurende de installatie te steriliseren om het risico op contaminatie te verminderen. Om het risico op celklontering en verstoppingen tijdens het experiment te verkleinen, wordt Pluronic F-127 aan het groeimedium toegevoegd. Los één dag voor het experiment 5 g Pluronic F-127 poeder (10 g/L) op in 500 mL YPD-medium (2% dextrose), voeg ampicilline (100 µg/mL) toe en filtersteriliseer dit 1–2 u vóór gebruik. Zorg ervoor dat er geen luchtbellen achterblijven in de mediumspuiten en slangjes tijdens de installatie van het microfluïdische apparaat.
- Los 5 g Pluronic F-127-poeder (10 g/L) op in 500 mL YPD (2% dextrose). Bereid dit één dag vóór het experiment en laat het gedurende de nacht oplossen. Voeg op de dag van het experiment ampicilline toe (100 µg/mL) naar YPD (2% dextrose), Pluronic F-127 (10 g/L).
- Filtersteriliseer YPD (2% dextrose) + ampicilline (100 µg/mL) + Pluronic F-127 (10 g/L). Laat dit 1–2 uur staan voordat de mediapompen worden geladen om luchtbellen die tijdens de filtratie zijn ontstaan te verwijderen.
- Inspecteer het microfluïdische apparaat op beschadigingen, zoals een gebarsten dekglas. Sluit de inlaatpoorten voor het laden van de cellen af met massieve roestvrijstalen pinnen (Figuur 2A,D,E).
OPMERKING: Men dient er voorzichtig op toe dat massieve roestvrijstalen pinnen niet te diep in de poorten voor het laden van cellen worden ingebracht, omdat dit de verwijdering tijdens het laden van de cellen kan bemoeilijken. - Snijd de slang voor de mediumuitlaat op de benodigde lengte om de poort van de mediumuitlaat met de opvangbak voor afval te verbinden, waarbij voldoende speling wordt gelaten voor de beweging van de tafel tijdens de beeldvorming (Figuur 2A,G).
- Verbind holle roestvrijstalen pinnen met de slang van de media-uitlaat. Steek de holle roestvrijstalen pinnen en de slang in de media-uitlaatpoorten (Figuur 2D–F). Voeg olie toe aan de objectief van de microscoop en het dekglas op het microfluïdische apparaat.
- Monteer het microfluïdische apparaat op de microscoop (Figuur 2G). Bepaal het brandvlak van de beeldeenheden en inspecteer de integriteit van de U-trap-structuren van polydimethylsiloxaan (PDMS) (Figuur 2C).
- Leid de slang vanaf de uitlaatpoort voor het medium rechtstreeks naar een afvalcontainer (Figuur 2G). Plak de slang van de mediumuitlaat aan de microscooptafel (Figuur 2G, groene tape).
- Zorg ervoor dat de slang van de mediumuitlaat zich ruim boven de bodem van de afvalcontainer bevindt, om te voorkomen dat de slang onderdompelt in het afvalmedium dat zich tijdens het experiment ophoopt, wat zou leiden tot tegendruk.
- Kort de slang van de media-uitlaat indien nodig in. Snijd de slang van de media-inlaat op de benodigde lengte om de media-inlaatpoort te verbinden met de mediaspuiten op de micropompen. Laat voldoende speling voor de beweging van de tafel tijdens de beeldvorming.
- Sluit holle roestvrijstalen pinnen aan op de slang van de mediuminlaat. Open de verpakking van de spuit van 20 mL en verwijder alle lucht volledig.
- Neem 20 mL YPD (2% dextrose) + ampicilline (100 µg/mL) + Pluronic F-127 (10 g/L) in spuiten van 20 mL. Bevestig een spuitenadapter aan de kop van de spuit met het medium.
- Zorg ervoor dat de spuitadapter stevig is vastgedraaid. Verbind de toevoerslang voor het medium met de spuitadapter voor het medium. Plak het andere uiteinde van de toevoerslang voor het medium aan een opvangbak voor afval, zodanig dat de holle roestvrijstalen pin naar de bak is gericht.
- Verwijder zorgvuldig de resterende luchtbellen uit de spuit met medium. Houd de spuit met medium verticaal, zodat de luchtbellen naar de kop van de spuit kunnen stijgen. Oefen druk uit om de luchtbellen en het medium via de slang in de afvalbak te persen.
- Tik de zijkant van de spuit voorzichtig tegen een tafel terwijl u deze rechtop houdt om resterende luchtbellen te laten ontsnappen, en oefen vervolgens opnieuw druk uit tot alle luchtbellen zijn verdreven. Controleer de slang en de spuit zorgvuldig op eventuele resterende luchtbellen.
- Bevestig de spuit met het medium aan de micropomp. Indien een micropomp met meerdere sleuven wordt gebruikt, herhaalt u de spuitvoorbereiding zoals beschreven in stappen 8.10–8.14 voor elke extra spuit en bevestigt u elke voorbereide spuit aan de micropomp totdat alle gewenste sleuven zijn gevuld. Beweeg de zuiger van de micropomp naar voren totdat deze in contact komt met de zuigers van de spuiten en het medium via de slangetjes van alle spuiten begint te stromen.
- Plaats de holle roestvrijstalen pinnen, die verbonden zijn met slangetjes en een spuit met medium, in de mediuminlaatpoort van het gemonteerde microfluïdische apparaat (Figuur 2A,H,I).
- Start de pomp met een stroomsnelheid van 2.4 µL/min zodra alle spuiten die op de micropomp zijn gemonteerd, zijn aangesloten op het microfluïdische apparaat. Plak de slang die is verbonden met de mediuminlaatpoort vast aan de microscooptafel (Figuur 2I, groene tape op de achtergrond).
- Zorg voor voldoende speling in de slanglijnen om beweging van de objecttafel tijdens de beeldvorming mogelijk te maken. Zet de environmental chamber aan en stel deze in op 30 °CLaat de mediumpompen ten minste 2 uur draaien voordat de cellen worden geladen, om de beeldeenheden met medium te vullen.
- Maak testopnames van de ROI na ongeveer 1 uur mediumstroom om verschillen in het brandvlak binnen een enkele imaging unit te testen.
- Verwerf, afhankelijk van de microscoop en de vergroting, voor elke kamer 2 x 27 beelden en drie z-slices per positie met 3–8 µm afstandsbewaking, om te compenseren voor verschillen in het brandvlak over een enkele beeldeenheid.
- Stop de pompen 1 uur voor het laden van de cellen om de druk te verlagen en het laden te vergemakkelijken.
9. Laden van gameten in microfluïdische apparaten
OPMERKING: Het laden van de cellen voor alle condities moet in minder dan 1 h worden voltooid om voortijdige celdelingen van gameten te voorkomen. Indien dit niet gebeurt, leidt dit tot verdunning van de gameten door nieuw gegenereerde dochtercellen en een onnauwkeurige beoordeling van de totale replicatieve levensduur. Voor elke conditie en elk genotype worden twee imaging units geladen om twee technische replica's voor analyse te verkrijgen.
- Snijd de slang voor het laden van de cellen op de benodigde lengte om de inlaat voor het laden van de cellen met de spuit te verbinden. Bevestig holle roestvrijstalen pinnen aan de slang voor het laden van de cellen. Bevestig een spuitadapter aan de kop van een 5 mL spuit.
- Verbind de slang voor het laden van de cellen met de spuitadapter op de 5 mL spuit. Controleer na 3 h hergroei (stap 7.9) of de meeste gameten aan groei zijn begonnen. Controleer met een lichtmicroscoop op vergrote gameten en ontluikende knoppen.
- Pipetteer 2 mL van de eerste te laden conditie in een 2 mL centrifugebuis. Voer voor elke conditie de stappen 9.3–9.15 één voor één uit. Verwijder de massieve roestvrijstalen pin uit de twee beeldeenheden die met cellen van een specifieke conditie worden geladen om de druk te ontlasten.
- Sonicate de gepipetteerde cellen met een handsonicator (vijf pulsen bij 1 puls/seconde en 50% duty cycle) vlak voordat ze met een spuit worden opgezogen. Leid de gesonicate celsuspensie via een pre-separatiefilter (30 µm) in een nieuwe 2 mL centrifugebuis.
- Laad de celsuspensie in de voorbereide 5 mL spuit via de holle roestvrijstalen pin en de aangesloten slang. Verwijder de lucht uit de spuit met de celsuspensie, zodat er geen lucht in de spuit en de slang achterblijft.
- Duw de spuitplunjer in tot er een kleine druppel vloeistof op de holle roestvrijstalen pin verschijnt. Steek de holle roestvrijstalen pin in de inlaat voor het laden van de cellen van het microfluidische apparaat.
- Voorkom dat er lucht binnenkomt door een vloeistofdruppel van een roestvrijstalen pin direct met de inlaat voor het laden van de cellen te verbinden. Gebruik een opgerold pluisvrij laboratoriumdoekje om overtollige vloeistof van het microfluidische apparaat te deppen.
- Laad de cellen handmatig door voorzichtig druk uit te oefenen op de spuitplunjer terwijl de beeldeenheid direct op de microscoop met live view wordt geobserveerd. Oefen druk uit op de plunjer totdat de PDMS U-trap-structuren licht beginnen te vervormen.
- Handhaaf de druk continu en wacht tot de cellen in het beeldgebied beginnen te stromen. Oefen geen overmatige druk uit, omdat dit kan leiden tot overbelading en/of het loslaten van PDMS-structuren van het dekglas, waardoor de beeldeenheid onbruikbaar wordt.
- Laat de druk los zodra de cellen in de traps beginnen te laden en monitor de ladefficiëntie over de hele beeldeenheid. Oefen opnieuw druk uit om de ladecyclus te herhalen totdat er voldoende cellen zijn gevangen.
- Herhaal de ladecyclus als er minder dan 200 traps bezet zijn. Optimaal geladen eenheden hebben cellen die 2/3 van de traps bezetten, wat een balans biedt tussen voldoende lading en het risico op overbelading, wat het risico op verstopping tijdens het experiment vergroot.
- Als gedeelde pompen worden gebruikt voor verschillende beeldeenheden en één beeldeenheid overbelast raakt, wordt de slang van de betreffende eenheid losgekoppeld van de mediapomp om te voorkomen dat de pomp vastloopt door verstopping en om het verlies van aanvullende experimentele condities te vermijden (Figuur 2J).
- Verwijder de holle roestvrijstalen pinnen uit de inlaat voor het laden van de cellen zodra er voldoende cellen zijn geladen. Steek de massieve roestvrijstalen pin voorzichtig en langzaam terug in de poort van de inlaat voor het laden van de cellen.
- Voorkom dat de massieve roestvrijstalen pin te diep of te snel in de laadpoort wordt gestoken, omdat dit een plotselinge druktoename in de beeldeenheid kan veroorzaken, wat leidt tot het verlies van gevangen cellen. Laad het tweede kanaal voor dezelfde conditie door opnieuw te beginnen bij stap 9.6.
- Verwijder de massieve roestvrijstalen pin uit de beeldeenheden die als volgende geladen moeten worden en begin vervolgens opnieuw bij stap 9.3 om de volgende conditie te laden. Herhaal dit totdat alle condities zijn geladen.
- Inspecteer met live view op de microscoop alle geladen beeldeenheden om een voldoende en stabiele lading te waarborgen en te bevestigen dat de eenheid niet overbelast is. Zodra alle aan de micropomp gekoppelde beeldeenheden zijn geladen en de juiste cellading is bevestigd, start de micropomp bij een constante stroomsnelheid van 2.4 µL/min.
- Inspecteer het microfluidische apparaat zorgvuldig op lekkages bij de teruggeplaatste laadpoorten zodra de mediastroom is hervat. Indien er lekkage wordt waargenomen: verwijder de massieve roestvrijstalen pin en steek deze voorzichtig opnieuw in.
- Als het lek niet kan worden gestopt, koppel dan de betreffende beeldeenheid los van de mediapomp door de slang te verwijderen van de 20 mL mediaspuitadapter (Figuur 2J). Als de beeldeenheid overbelast is, ontkoppel de beeldeenheid dan van de mediapomp door de slang los te koppelen van de spuitadapter bij de kop van de 20 mL mediaspuit.
10. Beeldacquisitie
OPMERKING: Zodra de pompen draaien en de kwaliteitscontrole is voltooid, worden gameten geïdentificeerd door het volledige gezichtsveld (gebieden met gevangen cellen) voor elke kamer te beelden in de FITC- en brightfield-kanalen op het t0-tijdstip (Figuur 1E en Figuur 3D,E). De beeldvormingscondities zijn afhankelijk van het specifieke systeem en de experimentele behoefte en kunnen dienovereenkomstig worden aangepast. Er worden bijvoorbeeld, bij gebruik van een 40x objectief, 2 x 27 beelden en drie z-slices per positie met een tussenruimte van 3–8 µm opgenomen in de FITC- en brightfield-kanalen, om te compenseren voor variabele verschillen in het brandvlak over een enkele unit. Na de acquisitie van t0 wordt time-lapse imaging van hetzelfde gezichtsveld uitgevoerd met intervallen van 15–20 min gedurende 72 h om de volledige replicatieve levensduur van de gameten te bestrijken (Figuur 3D,E). Time-lapse imaging wordt uitsluitend in het DIC-kanaal uitgevoerd om cumulatieve fototoxiciteit door herhaalde beeldvorming in het FITC-kanaal te vermijden.
- Zodra de micropompen draaien, moeten alle ROI's en brandvlakken voor alle geladen beeldeenheden opnieuw worden geverifieerd. Leg het eerste tijdspunt (t0) vast in de FITC- en DIC-kanalen voor alle ROI's om gameten (GFP-positief) te identificeren (Figuur 1D en Figuur 3C).
- Na de acquisitie van t0 wordt gestart met time-lapse imaging met intervallen van 15–20 min voor een totale duur van 72 h, waarbij uitsluitend in het DIC-kanaal wordt opgenomen (Figuur 1E en Figuur 3D,E). Controleer het apparaat tijdens het experiment sporadisch op spontane lekken. Als er lekken worden waargenomen, moet de bijbehorende spuit worden losgekoppeld om grootschalige pompstoringen of het morsen van medium in de microscoop te voorkomen.
- Zodra de time-lapse is voltooid, worden de gegevens overgezet en wordt overgegaan tot de schoonmaak.
11. Opruimen
- Stop de pompen 30 min vóór de schoonmaak, zodra de time-lapse acquisitie is voltooid. Verwijder de mediaspuiten uit de micropompen en schakel de pompen uit. Koppel de holle roestvrijstalen pinnen los die verbonden zijn met de slang en de mediaspuit.
- Verwijder het microfluïdische apparaat van de microscoop en koppel alle roestvrijstalen pinnen los. Verwijder de olie van het microscoopobjectief.
- Gooi het microfluïdische apparaat en de roestvrijstalen pinnen weg in de daarvoor bestemde afvalbakken. Transfer de gegevens en schakel de microscoop uit.
12. Analyse van de replicatieve levensduur van gameten
OPMERKING: Om de replicatieve levensduur van gameten na voltooiing van een time-lapse experiment te kwantificeren, worden de beelden verwerkt en wordt de replicatieve levensduur van de gameten geteld (Figuur 1F). De verwerking is afhankelijk van de microscoopopstelling en de specifieke behoeften. Kort gezegd worden brightfield time-lapse beelden van elke conditie (dezelfde imaging-unit) aan elkaar gestikt om een hyper-stack te vormen. Indien nodig worden de brightfield time-lapse hyper-stack en de t0 FITC-beelden bijgesneden en aangepast in grootte, zodat de X-Y coördinaten van een specifiek punt in alle beelden gelijk zijn. Beelden worden gekwantificeerd met behulp van aangepaste semi-geautomatiseerde Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 macro's. Specifieke opmerkingen over de macro-inputs staan vermeld in de koptekst van elke macro en moeten worden aangepast aan de individuele inputgegevens. De replicatieve levensduur wordt gemeten voor 200 cellen per technisch replica voor elk genotype en elke conditie. Tellingen van twee technische replica's worden samengevoegd om robuuste metingen van de replicatieve levensduur te verkrijgen. Het experiment wordt herhaald om een individueel biologisch replica te verkrijgen.
PAUZEPUNT: Beeldanalyse om de replicatieve levensduur van gameten te beoordelen kan op elk gewenst moment worden uitgevoerd zodra het experimentele deel van het protocol is voltooid.
- Open het t0 FITC-beeld voor een specifieke microfluidica-unit. Selecteer de invoer- en uitvoermappen zoals gevraagd en klik op OK.
- Teken een rechthoek rond de FITC-positieve gamet die in de microfluidische trap is geladen en voeg de rechthoek toe aan de ROI-manager (sneltoets t). Snijd niet te strak rond de cel; laat aan elke zijde een marge van ongeveer één trapbreedte over (Figuur 1D, Figuur 3C, en Aanvullende Figuur 4).
- Ga door tot alle FITC-positieve gameten aan de ROI-manager zijn toegevoegd (Aanvullende Figuur 5). Ga naar de ROI-manager en selecteer alle punten. Klik op More en Save.
- Sla de ROI-lijst op in de uitvoermap. Sleep de macro Manual ROI Crop and TIFF Export - Open Images (Aanvullend Bestand 4) naar FIJI/ImageJ om deze te openen.
- Selecteer de laatste ROI in de lijst en klik op Run in het macrovenster: Manual ROI Crop and TIFF Export - Open Images (Aanvullend Bestand 4). Selecteer de uitvoermap volgens de aanwijzingen om de macro te starten.
- De macro begint met het dupliceren en opslaan van alle gekozen ROI's in de opgegeven uitvoermap. De macro stopt zodra alle ROI's zijn gedupliceerd en opgeslagen.
- Sluit het t0 FITC-beeld. Open de brightfield time-lapse hyperstack voor dezelfde microfluidica-unit. Indien nog niet geopend, sleep de macro Manual ROI Crop and TIFF Export - Open Images (Aanvullend Bestand 4) naar Fiji/ImageJ om deze te openen.
- Indien nog niet geopend, sleep de opgeslagen ROI-lijst van het t0 FITC-beeld naar Fiji/ImageJ om deze te openen. Selecteer de laatste ROI in de lijst en klik op Run bij de macro: Manual ROI Crop and TIFF Export - Open Images (Aanvullend Bestand 4).
- Selecteer de uitvoermap volgens de aanwijzingen om de macro te starten en klik op OK. De macro begint met het dupliceren en opslaan van alle gekozen ROI's in de opgegeven uitvoermap.
- De macro stopt zodra alle gekozen ROI's zijn gedupliceerd en opgeslagen. Sluit de brightfield time-lapse hyperstack.
- Sleep de macro Manual GFP, RLS, and Terminal Phenotype Annotation (Aanvullend Bestand 5) naar Fiji/ImageJ om deze te openen. Klik op Run in het macrovenster.
- Selecteer de invoer- en uitvoermappen zoals gevraagd en klik vervolgens op OK. Inspecteer t0 FITC om er zeker van te zijn dat er een gamet (GFP-positieve cel) is geladen. Vergelijk het t0 FITC-beeld en de t0 brightfield time-lapse om te bevestigen dat dezelfde cel nog steeds geladen is in de t0 brightfield time-lapse (Figuur 3C).
- Klik op OK in het promptvenster: Action Required (GFP cell trapped Y/N?) (Aanvullende Figuur 6). Als de t0 FITC-cel niet GFP-positief is, kies dan 0 in het promptvenster.
- Als de cel die in de t0 brightfield time-lapse is geladen niet dezelfde cel is als in het t0 FITC-beeld, kies dan 0 in het promptvenster. Als de t0 FITC-cel GFP-positief is en de cel in de t0 brightfield time-lapse dezelfde cel is als in het t0 FITC-beeld, kies dan 1 in het promptvenster (Aanvullende Figuur 7). Klik op OK in het promptvenster zodra de beslissing over de GFP-cel is genomen.
- Tel de replicatieve levensduur (RLS) door vast te stellen hoeveel dochtercellen er voortkomen uit de geladen gamet voordat deze een terminaal fenotype bereikt (stopt met delen) of uit de trap wordt geworpen (verloren gaat uit de ROI).
- Zodra de replicatieve levensduur is geteld, klik op OK in het promptvenster: Action Required (RLS of cell?) (Aanvullende Figuur 8). Kies in het promptvenster hoeveel delingen er zijn waargenomen (RLS) (Figuur 3D,E; Aanvullende Figuur 9).
- Zodra de RLS is doorgegeven, klik op OK in het promptvenster. Bepaal of de cel het terminale fenotype heeft bereikt of uit de trap is geworpen voordat het delen stopte.
- Klik op OK in het promptvenster: Action Required (Terminal?) (Aanvullende Figuur 10). Kies in het promptvenster 0 als de cel wordt uitgeworpen terwijl deze nog deelt, voordat het terminale fenotype is waargenomen.
- Kies in het promptvenster 1 als er een terminaal fenotype is waargenomen (Aanvullende Figuur 11). Kies in het promptvenster “?” als dit onduidelijk is.
- Klik op OK in het promptvenster zodra de beslissing over het terminale lot is genomen. Klik op OK in het promptvenster: Action Required (Reason?) (Aanvullende Figuur 12).
- Als de cel wordt uitgeworpen voordat het terminale fenotype is bereikt, kies dan het lot van de uitgeworpen cel: “ejected” = cel uitgeworpen terwijl deze nog deelde; als de cel het terminale fenotype bereikte, kies dan uit de terminale lotten van de cel: (a) ejected/done = cel kreeg terminale morfologie maar werd binnen 3 u na de laatste deling uitgeworpen; (b) enlarged = cel werd groter en stopte met delen; (c) failed division and enlarged = cel slaagde er niet in om te scheiden tijdens de laatste deling en stopte met delen; (d) shriveled up = cel deelt niet meer en vertoont een gekrompen, verschrompelde morfologie (Aanvullende Figuur 13); (e) other = elke andere klasse die niet in de bovenstaande beschrijvingen past.
- Klik op OK in het promptvenster zodra de beslissing over het terminale lot van de cel is genomen. De resultaten van alle prompts worden automatisch geregistreerd in het Log-venster en opgeslagen als een .txt-bestand in de uitvoermap.
- Sluit het Log-venster niet tijdens het tellen. Het volgende beeld in de invoermap wordt automatisch geopend. Herhaal stappen 12.12–12.22 totdat het script alle beelden in de invoermappen heeft doorlopen.
Resultaten
Beoordeling van de scheiding van replicatieve leeftijd en de efficiëntie van gametogenese
Om de replicatieve levensduur van gameten uit precursorcellen van verschillende leeftijden te vergelijken, moet een voldoende leeftijdsonderscheid en zuiverheid van de celpopulaties worden gegarandeerd. Om de zuiverheid van de verkregen verouderde celpopulaties te verhogen naar 90–100%, is een kritische aanpassing van het standaardprotocol voor leeftijdscheiding doorgevoerd, waarbij het eluaat van de verouderde cellen uit een eerste sortering opnieuw op een nieuwe kolom wordt aangebracht voor een tweede sortering9. Om de zuiverheid en leeftijd van dubbel gesorteerde verouderde en jonge celpopulaties te evalueren, wordt een kleuring tegen knopsporen en biotine uitgevoerd, waarbij ongeveer 50 cellen per conditie worden afgebeeld. Wheat germ agglutinine bindt specifiek aan knopsporen, wat chitinrijke ringstructuren op de gistcelwand zijn; na elk knoppingsproces blijft er één van deze sporen achter, waardoor de precieze replicatieve leeftijd van een cel wordt onthuld (Figuur 1C en Figuur 4A)22. Beelden van pre-gametogene cellen worden geanalyseerd volgens de pipeline voor beeldanalyse die wordt beschreven in stap 5 van het protocol.
Het hier beschreven opeenvolgende sorteerprotocol resulteert consistent in jonge celpopulaties met slechts ongeveer 3,63% gebiotinyleerde cellen en een gemiddelde replicatieve leeftijd van 1,16, en verouderde celpopulaties die ongeveer 96,74% gebiotinyleerde cellen bevatten met een gemiddelde replicatieve leeftijd van 8,55 (Figuur 4B,C)9. Indien de zuiverheid van zowel de verouderde als de jonge celpopulatie, beoordeeld via biotinvleuring, lager is dan 80%, wordt het experiment gestaakt. In een optimaal experiment is het verschil in gemiddelde leeftijd tussen de jonge en verouderde celpopulaties ten minste 6 delingen; als de scheiding minder dan 4 delingen bedraagt, wordt het experiment gestaakt.
De efficiëntie van de gametogenese wordt geanalyseerd na 24 u in gametogenese-inducerende media. Onder de beschreven omstandigheden vormen 79,8% van de jonge cellen en 78,89% van de verouderde cellen succesvol zichtbaar onderscheidbare tetraden in het controle-genotype (Figuur 4D)9. Een lage efficiëntie van de gametogenese is geen strikte flessenhals voor dit protocol, maar het zal de opbrengst aan gameten verminderen, waardoor downstream stappen uitdagender en minder reproduceerbaar worden. Daarom wordt, indien de efficiëntie van de gametogenese onder de 30% ligt, de celinput voor sortering verdubbeld (4 x 8 OD600) om een voldoende hoge opbrengst aan gameten uit verouderde precursorcellen te garanderen.
Post-gametogene tetradpopulaties van jonge precursorcellen hebben reproduceerbaar een zuiverheid van 13,38% gebiotinyleerde cellen en een gemiddelde replicatieve leeftijd van 1,31, terwijl die van verouderde cellen een zuiverheid hebben van 97,34% gebiotinyleerde cellen en een gemiddelde replicatieve leeftijd van 8,17 (Figuur 4E,F)9. Verdere beoordelingen moeten worden uitgevoerd indien, bij een specifiek genotype, de zuiverheid van de gesorteerde tetradpopulaties met meer dan 20% verandert of de gemiddelde leeftijd van verouderde tetraden met meer dan 3 delingen afneemt ten opzichte van pre-gametogene verouderde celpopulaties (Figuur 4E,F).
Samenvattend maakt opeenvolgende sortering met magnetische kralen een efficiënte scheiding op basis van leeftijd van pre-meiotische cellen mogelijk, met vergelijkbare efficiënties van gametogenese in zowel jonge (79,8%) als oudere (78,89%) cellen. De replicatieve leeftijd en de zuiverheid van de celpopulaties worden twee keer geanalyseerd: voor en na de gametogenese. Het herverifiëren van de leeftijdsscheiding van tetraden is belangrijk om de mogelijkheid uit te sluiten dat een specifieke mutatie de gametogenese op een leeftijdsafhankelijke manier beïnvloedt, wat zou leiden tot een gametogenese-specifieke uitdunning van de oudere cellen.
Beoordeling van gametogene verjonging
Pre-gametogene wildtype-cellen werden gesorteerd in jonge en oude celpopulaties, en gametogenese werd geïnduceerd zoals hier beschreven. Het aantal knoplittekens per tetrade werd gekwantificeerd om de replicatieve leeftijd van populaties te bepalen voorafgaand aan de scheiding van gameten en de acquisitie van de replicatieve levensduur van gameten (Figuur 5A)9. Na time-lapse imaging bleek uit de kwantificering en vergelijking van de replicatieve levensduur van gameten afkomstig van jonge en oude precursorcellen dat de mediane replicatieve levensduur vergelijkbaar was voor gameten afkomstig van jonge en oude precursorcellen (respectievelijk 21 en 22 delingen; p = 0,982; Figuur 5B), wat bevestigt dat het hier beschreven protocol gametogene verjonging vastlegt.
Met deze benadering stellen we vast dat de afbraak van beschadigde cellulaire componenten via selectieve autofagie noodzakelijk is voor gametogene verjonging9. Autofagiepaden, die de afbraak van beschadigde componenten via de vacuole mediëren, nemen af bij het ouder worden, wat leidt tot een toename van beschadigde cellulaire componenten23,24. Atg11, het belangrijkste selectieve autofagie-steigerprotein dat nodig is voor de rekrutering van de kernautofagiemachinerie naar selectieve autofagiereceptoren die specifieke vrachten markeren, wordt dynamisch opgereguleerd tijdens de gametogenese9. Om te testen of de klaring van schade via selectieve autofagie belangrijk is voor gametogene verjonging, werden pre-gametogene atg11Δ cellen gesorteerd in jonge en verouderde celpopulaties, waarna de gametogenese werd geïnduceerd volgens het hier beschreven protocol. Nadat de replicatieve leeftijd van de tetradepopulatie was bevestigd door het kwantificeren van knoplittekens per tetrade (Figuur 5C)9, werden de tetraden gescheiden en werd de replicatieve levensduur van de gameten bepaald. De kwantificering van de mediane replicatieve levensduur van atg11Δ gameten uit jonge en verouderde precursoren onthulde dat gameten uit verouderde precursorcellen een significant en reproduceerbaar kortere replicatieve levensduur hadden dan gameten uit jonge atg11Δ precursorcellen (Figuur 5D, Rep.1, p = 2 x 10⁻⁶, Rep.2, p = 3 x 10⁻⁶ vergeleken met Figuur 5B)9. Dit resultaat suggereert dat selectieve autofagie via Atg11 een cruciale rol speelt in de volledige verjonging van gameten afgeleid van verouderde precursorcellen en laat zien dat de hier beschreven workflow componenten kan onthullen die noodzakelijk zijn om volledig verjongde gameten te produceren.
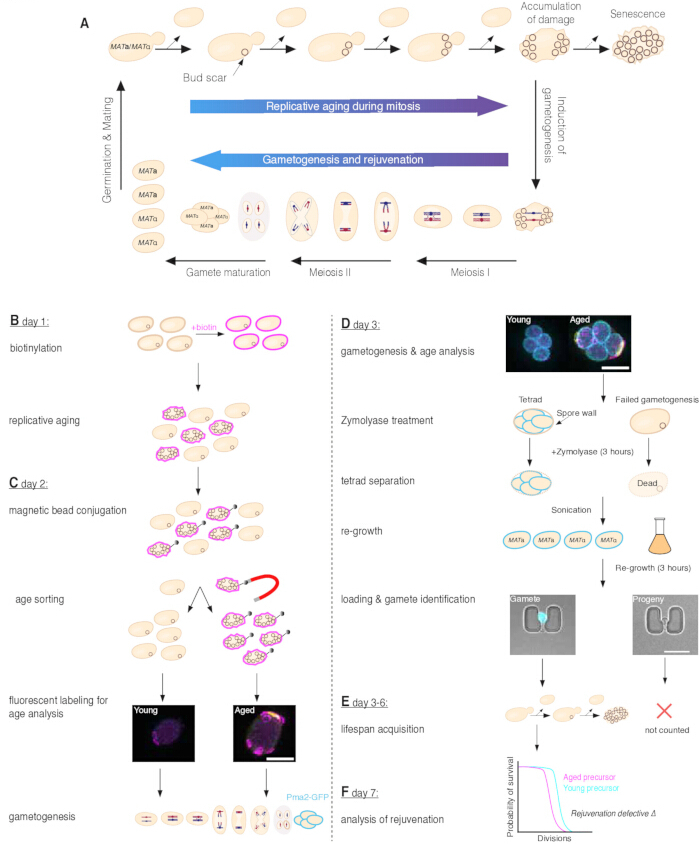
Figuur 1. Gametogene verjonging en een pijplijn om de replicatieve levensduur van gameten te beoordelen. (A) Tijdens vegetatieve groei delen budding gistcellen asymmetrisch. Nieuw gevormde dochtercellen worden jong geboren, terwijl moedercellen progressief ouderdomsgerelateerde schade ophopen en uiteindelijk senescent worden. De replicatieve leeftijd van een individuele gistcel wordt aangegeven door het aantal knoplittekens, die na elke deling ontstaan en op de celwand van de moedercel blijven (bovenste paneel). Gametogenese wordt geïnduceerd door nutriëntendepletie (pijl naar beneden, rechts). Tijdens dit proces delen diploïde gistcellen symmetrisch, waarbij tetraden ontstaan die vier gelijkmatig jonge haploïde gameten van twee paringstypes bevatten. De replicatieve levensduur van gameten wordt volledig gereset, zelfs in gameten afgeleid van replicatief verouderde precursorcellen (onderste paneel). Na toevoeging van nutriënten kiemen de gameten, hervatten ze de mitotische groei en vormen ze diploïde cellen na paring van de twee paringstypes (pijl omhoog, links). (B) Founder-cellen worden op dag 1 gelabeld met biotine en overnight gekweekt in rijk medium bij de optimale groeitemperatuur om replicatief verouderde founder-cellen en jonge dochtercellen te genereren. (C) Op dag 2 worden biotine-gelabelde founder-cellen geconjugeerd aan magnetische beads, gevolgd door magnetische leeftijdssortering om verouderde founder-cellen te scheiden van jonge dochtercellen. De biotine- en knoplitteken-fluorescentie worden vervolgens beoordeeld om de sorteringsefficiëntie te bepalen en de replicatieve leeftijden van de gescheiden populaties te verifiëren. De cellen worden daarna overnight geïncubeerd in gametogenese-inducerend medium om tetraden te genereren die Pma2-GFP tot expressie brengen. (D) Op dag 3 worden de gametogenese-efficiëntie, biotine-labeling en knoplittekens beoordeeld om de gametogenese en de leeftijdsverdelingen van de populaties te verifiëren. Tetraden worden 3 h behandeld met Zymolyase om de sporewand te verteren en cellen te lyseren die de gametogenese niet succesvol hebben doorlopen, gevolgd door mechanische scheiding door sonicatie. Gescheiden gameten krijgen de kans om opnieuw te groeien om retentie in de microfluïdische U-traps te vergemakkelijken en worden vervolgens in het microfluïdische apparaat geladen. Representatieve beelden tonen een Pma2-GFP-positieve gamet (links) en Pma2-GFP-negatieve gamet-nakomelingen (rechts) gevangen in de U-trap en gevisualiseerd door brightfield en Pma2-GFP-fluorescentie (cyaan). (E) De replicatieve levensduur van gameten wordt gemeten met behulp van op microfluïdica gebaseerde long-term time-lapse imaging tijdens dag 3–6 van het protocol. (F) Hypothetisch resultaat na analyse van de replicatieve levensduur van gameten in een verjongingsdefecte achtergrond op dag 7 van het protocol. Schaalbalken = 5 µm. Deze figuur is aangepast van Spiri et al.9. Klik hier om een grotere versie van deze figuur te bekijken.
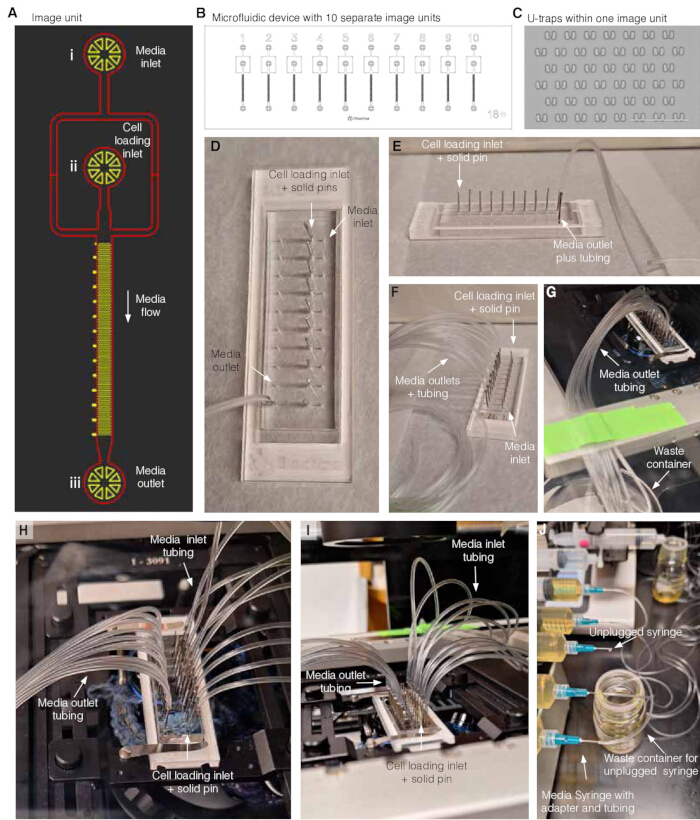
Figuur 2. Voorbereiding van het microfluidische apparaat. (A) Schematisch overzicht van één imaging-unit. (i) mediuminlaat; (ii) celinlaat, en (iii) mediumuitlaat. Tijdens het experiment stroomt vers medium van de mediuminlaat (i) naar de mediumuitlaat (iii), terwijl de celinlaat (ii) is afgedicht met een massieve roestvrijstalen pin. (B) Schematisch overzicht van één microfluidisch apparaat met 10 afzonderlijke imaging-units. (C) Afbeelding van PDMS U-traps en tussenruimtes in één imaging-unit, de schaalbalk is 100 µm. (D) Bovenaanzicht van het microfluidische apparaat met massieve roestvrijstalen pinnen in alle celinlaten en een holle roestvrijstalen pin met slangetje in één mediumuitlaat voor het opvangen van de mediumdoorstroming. (E) Zijaanzicht van het microfluidische apparaat met massieve roestvrijstalen pinnen in alle celinlaten en een holle roestvrijstalen pin met slangetje in één mediumuitlaat voor het opvangen van de mediumdoorstroming. (F) Microfluidisch apparaat met massieve roestvrijstalen pinnen in alle celinlaten en holle roestvrijstalen pinnen met slangetjes in alle mediumuitlaten voor het opvangen van de mediumdoorstroming. (G) Microfluidisch apparaat met massieve roestvrijstalen pinnen in alle celinlaten en holle roestvrijstalen pinnen met slangetjes in alle mediumuitlaten voor het opvangen van de mediumdoorstroming, gemonteerd op een microscoop. Het slangetje voor het opvangen van de mediumdoorstroming is met tape (groene tape) aan de microscooptafel bevestigd en naar de afvalbak geleid. (H) Microfluidisch apparaat met massieve roestvrijstalen pinnen in alle celinlaten, holle roestvrijstalen pinnen met slangetjes in alle mediumuitlaten en holle roestvrijstalen pinnen met slangetjes verbonden met mediumspuiten in alle mediuminlaten, gemonteerd op een microscoop. (I) Microfluidisch apparaat met massieve roestvrijstalen pinnen in alle celinlaten, holle roestvrijstalen pinnen met slangetjes in alle mediumuitlaten en holle roestvrijstalen pinnen met slangetjes verbonden met mediumspuiten in alle mediuminlaten, gemonteerd op een microscoop. Slangetjes van de mediumspuiten zijn aan de microscooptafel bevestigd (groene tape op de achtergrond). (J) Voorbeeld van hoe de mediumspuit uit het microfluidische apparaat kan worden verwijderd in geval van een lek of een overbelaste imaging-unit. Figuur 2A–C zijn aangepast van Jo et al.15. Figuur D–J zijn aangepast van Spiri et al.9. Klik hier om een grotere versie van deze figuur te bekijken.
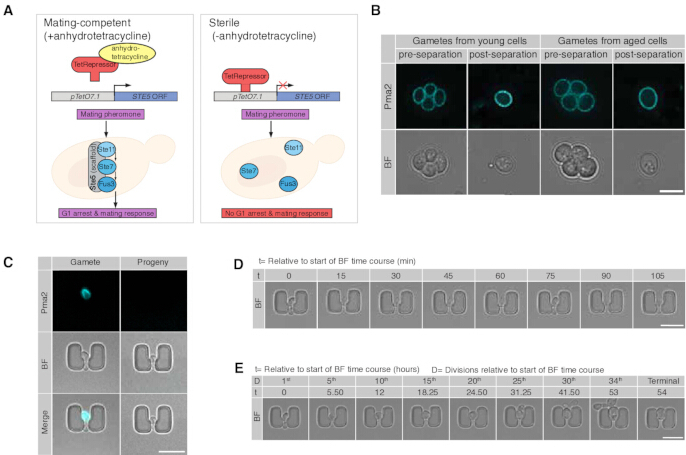
Figuur 3. Gametepreparatie voor microfluïdische acquisitie van de replicatieve levensduur van gameten. (A) Schematische weergave van het genetische systeem om conditionele steriliteit te bereiken. De endogene promoter van STE5, een steunproteïne die noodzakelijk is voor signaaltransductie na detectie van paringsferomonen, is vervangen door het pTetO7.1 promoterfragment. In de basistoestand bindt het Tet-repressoreiwit (TetR), dat tot expressie komt onder een constitutieve promoter, aan pTetO7.1 en onderdrukt de transcriptie vanaf deze promoter. Toevoeging en binding van anhydrotetracycline induceert een conformationele verandering in de Tet-repressor, waardoor de affiniteit voor pTet07.1 afneemt en de transcriptie van STE5 dus wordt gede-reprimeerd. (B) Representatieve enkelvoudige z-coupes van respectievelijk vóór en na gescheiden jonge (linkerpaneel) en verouderde (rechterpaneel) tetraden en gameten, met visualisatie van brightfield en Pma2-GFP (cyaan). (C) Representatieve Pma2-GFP positieve gamet (linkerpaneel) en Pma2-GFP negatieve gamet-nakomelingen (rechterpaneel) gevangen in microfluïdische apparaten, met visualisatie van brightfield en Pma2-GFP (cyaan). (D) Representatieve gevangen gamet die twee keer deelt over een periode van 2 h. (E) Representatieve gamet gevangen in een microfluïdische imaging-unit, met visualisatie van elke 5e deling tot de terminale 34e deling over een tijdsbestek van 54 h. Schaalbalken = 5 µm. Deze figuur is aangepast van Spiri et al.9. Klik hier om een grotere versie van deze figuur te bekijken.
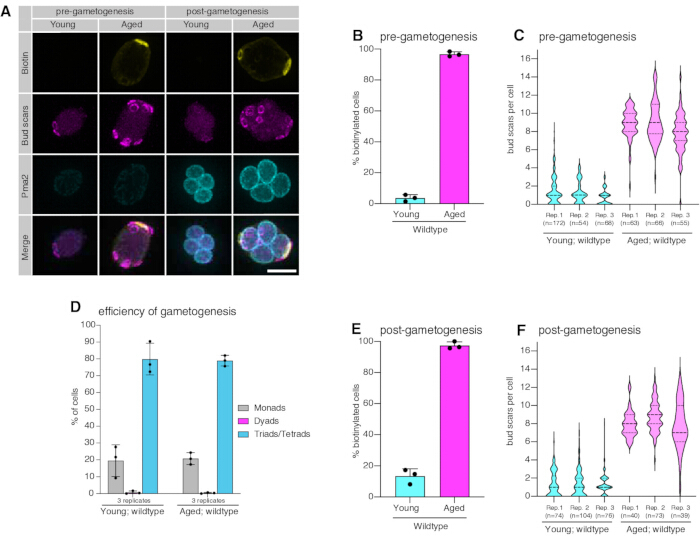
Figuur 4. Kwantificering van de replicatieve leeftijd en de efficiëntie van de gametogenese. (A) Representatieve, op leeftijd gesorteerde pre-gametogene cellen met maximale intensiteitsprojectie (linkerpaneel) en post-gametogene tetraden (rechterpaneel) waarinbiotine is gevisualiseerd met fluorescent gelabeld streptavidine (geel), chitinerijke knoplittekens zijn gevisualiseerd met fluorescent gelabeld tarwekiemagglutinine (magenta), en Pma2-GFP (cyaan). (B) Kwantificering van de fractie gebiotineerde cellen in jonge (3,63 ± 2,12 %, gemiddelde ± standaarddeviatie (SD), 3 replica's, n = 172, 54 en 68, respectievelijk) en verouderde (96,74 ± 1,58 %, gemiddelde ± SD, 3 replica's, n = 63, 66 en 55, respectievelijk) wildtype celpopulaties; de foutenbalken representeren de SD. (C) Kwantificering van de replicatieve leeftijd door beoordeling van het aantal knoplittekens in jonge (1,16 ± 0,41, gemiddelde ± SD, n = 3 replica's, n = 172, 54 en 68, respectievelijk) en verouderde (8,55 ± 0,66, gemiddelde ± SD, 3 replica's, n = 63, 66 en 55, respectievelijk) wildtype celpopulaties. (D) Kwantificering van de fractie tetraden in jonge (79,8 ± 9,43%; gemiddelde ± SD, 3 replica's, Rep.1 en 3 n = 300, Rep. 2 n = 281) en verouderde (78,89 ± 3,17 %, gemiddelde ± SD, 3 replica's n = 300 elk) post-gametogene wildtype celpopulaties; de foutenbalken representeren de SD. (E) Kwantificering van de fractie gebiotineerde tetraden in jonge (13,38 ± 4,74%, gemiddelde ± SD, n = 3 replica's, n = 74, 104 en 76, respectievelijk) en verouderde (97,34 ± 2,33%, gemiddelde ± SD, 3 replica's, n = 40, 73 en 39, respectievelijk) wildtype populaties na voltooiing van de gametogenese; de foutenbalken representeren de SD. (F) Kwantificering van de replicatieve leeftijd door beoordeling van het aantal knoplittekens in jonge (1,31 ± 0,04, gemiddelde ± SD, 3 replica's, n = 74, 104 en 76 respectievelijk) en verouderde (8,17 ± 0,54, gemiddelde ± SD, 3 replica's, n = 40, 73 en 39 respectievelijk) wildtype tetradepopulaties. Schaalbalken = 5 µm. Betrouwbaarheidsintervallen zijn berekend met de Wilson-scoremethode. Vioolplots geven de mediaan (doorgetrokken lijnen) en het 25ste en 75ste percentiel (stippellijnen) aan. Deze figuur is aangepast naar Spiri et al.9. Klik hier om een grotere versie van deze figuur te bekijken.
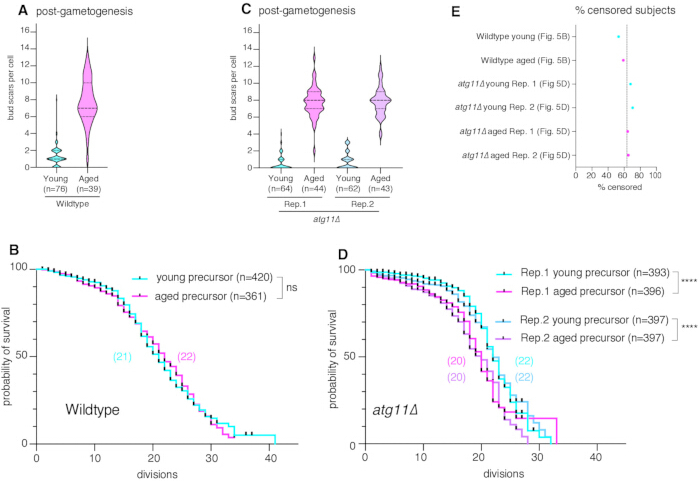
Figuur 5. Kwantificering van de replicatieve levensduur. (A) Kwantificering van de replicatieve leeftijd door bepaling van het aantal knoplittekens in jonge (1,3 ± 1,2, gemiddelde ± SD, n = 76) en oude (7,8 ± 2,6, gemiddelde ± SD, n = 39) wildtype gametenpopulaties, dezelfde gegevens als weergegeven in Figuur 4F voor Rep. 3. (B) Kwantificering van de replicatieve levensduur van jonge (mediane levensduur = 21, n = 420, 223 gecensureerde subjecten) en oude (mediane levensduur = 22, n = 361, 213 gecensureerde subjecten, p = 0,982 vergeleken met jong) wildtype gameten. Tellingen van twee technische replica's werden samengevoegd. (C) Kwantificering van de replicatieve leeftijd door bepaling van het aantal knoplittekens in atg11Δ tetradepopulaties: Rep. 1 jong (0,53 ± 0,91, gemiddelde ± SD, n = 64) en oud (7,8 ± 1,8, gemiddelde ± SD, n = 44); Rep. 2 jong (0,82 ± 1, gemiddelde ± SD, n = 62) en oud (7,9 ± 1,7, gemiddelde ± SD, n = 43). (D) Kwantificering van de replicatieve levensduur van atg11Δ gameten voor twee onafhankelijke biologische replica's: Rep. 1 jong (mediane levensduur = 22, n = 393, 267 gecensureerde subjecten) en oud (mediane levensduur = 20, n = 396, 255 gecensureerde subjecten, p = 2 x 10⁻⁶); Rep. 2 jong (mediane levensduur = 22, n = 397, 280 gecensureerde subjecten) en oud (mediane levensduur = 20, n = 397, 259 gecensureerde subjecten, p = 3 x 10⁻⁶ vergeleken met jong). Voor elke onafhankelijke biologische replica werden tellingen van twee technische replica's samengevoegd. (E) Percentage gecensureerde gebeurtenissen over alle levensduurexperimenten. De stippellijn geeft het gemiddelde (63,4% ± 6,2 gemiddelde ± SD) van de gecensureerde subjecten weer uit n = 6 experimenten. De statistische significantie van verschillen in replicatieve levensduur werd beoordeeld met de Log-rank (Mantel-Cox) test; streepjes op de overlevingscurves representeren gecensureerde gebeurtenissen. Violin plots geven de mediaan (doorlopende lijnen) en het 25e en 75e percentiel (stippellijnen) aan. p-waarden zijn aangegeven (ns = p > 0,05, * = p ≤ 0,05, ** = p ≤ 0,01, *** = p ≤ 0,001, **** = p ≤ 0,0001). Deze figuur is aangepast van Spiri et al.9. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1: Selectie van interessegebieden voor analyse van knoplittekens.Representatieve ImageJ-screenshot waarop individuele cellen te zien zijn die zijn geselecteerd met behulp van rechthoekige interessegebieden (ROI's) en zijn toegevoegd aan de ROI Manager voor verdere analyse. De geselecteerde ROI's worden weergegeven als gele kaders. Klik hier om dit bestand te downloaden.
Aanvullende figuur 2: Handmatige invoer van het aantal knopnocsaars.Representatieve ImageJ-screenshot die het dialoogvenster toont dat wordt gebruikt om handmatig het aantal geïdentificeerde knopnocsaars voor elke geselecteerde cel in te voeren. Knopnocsaars worden geteld door de Y-projectie te roteren en het wheat germ agglutinine-signaal te bestuderen. Klik hier om dit bestand te downloaden.
Aanvullende figuur 3: Handmatige classificatie van biotinylering. Representatieve ImageJ-screenshot die het dialoogvenster toont dat wordt gebruikt om vast te leggen of een geselecteerde cel positief of negatief is voor biotinylering. Een waarde van 1 duidt een biotine-positieve cel aan, en een waarde van 0 duidt een biotine-negatieve cel aan. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 4: Selectie van regio's van belang in een microfluïdisch apparaat. Representatieve ImageJ-screenshot die individuele microfluïdische U-traps toont die zijn geselecteerd met behulp van rechthoekige ROI's en zijn toegevoegd aan de ROI Manager. Elke ROI omvat één enkele U-trap voor verdere analyse. Klik hier om dit bestand te downloaden.
Aanvullende figuur 5: Visualisatie van geselecteerde microfluïdische U-trap ROI's. Representatieve screenshot van ImageJ waarop meerdere rechthoekige ROI's worden getoond over het microfluïdische apparaat na selectie van individuele U-traps. De ROI's worden gelijktijdig weergegeven met de functie “Show All” in de ROI Manager. Klik hier om dit bestand te downloaden.
Aanvullende figuur 6: Identificatie van GFP-positieve cellen in microfluïdische U-traps. Representatieve ImageJ-screenshot die de prompt toont die wordt gebruikt om te bepalen of een GFP-positieve cel is gevangen in de geselecteerde U-trap. Een fluorescentiebeeld wordt naast het brightfield-beeld weergegeven om de identificatie te vergemakkelijken. Klik hier om dit bestand te downloaden.
Aanvullende figuur 7: Handmatige classificatie van GFP-positieve cellen. Representatieve ImageJ-screenshot waarop het dialoogvenster te zien is dat wordt gebruikt om de GFP-status van een cel binnen een geselecteerde U-trap vast te leggen. Een waarde van 1 geeft een GFP-positieve cel aan, terwijl een waarde van 0 een GFP-negatieve cel aangeeft. Klik hier om dit bestand te downloaden.
Aanvullende figuur 8: Handmatige invoer van de replicatieve levensduur. Representatieve screenshot van ImageJ waarop het dialoogvenster te zien is dat wordt gebruikt om de replicatieve levensduur (RLS) van een individuele cel in te voeren na het bekijken van de time-lapse beeldstapel. De RLS wordt bepaald als het totale aantal waargenomen celdelingen. Klik hier om dit bestand te downloaden.
Aanvullende figuur 9: Handmatige invoer van de replicatieve levensduur.Representatief Fiji/ImageJ-screenshot dat het dialoogvenster toont dat wordt gebruikt om de replicatieve levensduur (RLS) van een individuele cel in te voeren na het beoordelen van de brightfield time-lapse beeldstack. De RLS wordt geregistreerd als het totale aantal waargenomen celdelingen. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 10: Beoordeling van de terminale status tijdens analyse van de replicatieve levensduur. Representatief Fiji/ImageJ-schermafbeelding die de prompt “Terminal?” laat zien, die werd gebruikt om te bepalen of de geanalyseerde cel een terminaal fenotype bereikte of uit de val werd geworpen vóór de terminale arrestatie. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 11: Registratie van de terminale status tijdens analyse van de replicatieve levensduur. Representatieve Fiji-screenshot die de selectie van de waarde voor de terminale status toont nadat is vastgesteld of een terminaal fenotype werd waargenomen. Klik hier om dit bestand te downloaden.
Aanvullende figuur 12: Selectie van het uiteindelijke celbestemming. Representatieve Fiji-screenshot die de prompt laat zien die is gebruikt om de reden voor censurering of het uiteindelijke lot van een geanalyseerde cel toe te wijzen. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 13: Classificatie van de terminale celmorfologie. Representatieve Fiji-screenshot die de selectie van het terminale fenotype laat zien, inclusief de classificatie "ingeschrompeld" voor een cel die stopte met delen en een gekrompen morfologie vertoonde. Klik hier om dit bestand te downloaden.
Aanvullend bestand 1. Fiji-macro voor handmatige ROI-selectie en TIFF-export. Aangepaste Fiji/ImageJ-macro gebruikt om individuele cellen handmatig te selecteren als regio's van belang (ROI's), de geselecteerde ROI's bij te snijden en de bijgesneden afbeeldingen te exporteren als TIFF-bestanden voor verdere analyse. Klik hier om dit bestand te downloaden.
Aanvullend bestand 2. Single-Cell 3D- en Z-projectie Fiji-macro. Aangepaste Fiji/ImageJ-macro gebruikt voor het genereren van driedimensionale projecties en Z-projectiebeelden van individuele uitgesneden cellen voor daaropvolgende analyse van knoplittekens en biotinylering. Klik hier om dit bestand te downloaden.
Aanvullend bestand 3. Fiji-macro voor handmatige annotatie van knoplittekens en biotine. Aangepaste Fiji/ImageJ-macro gebruikt om handmatig het aantal knoplittekens vast te leggen en individuele cellen te classificeren op basis van de biotine-labelingsstatus. Klik hier om dit bestand te downloaden.
Aanvullend bestand 4. Handmatige ROI-uitsnede en TIFF-export – Open Images Fiji-macro. Aangepaste Fiji/ImageJ-macro gebruikt voor het uitsnijden en exporteren van overeenkomstige regio's van belang (ROI's) uit de t0 FITC-beelden en brightfield time-lapse hyper-stacks voor de daaropvolgende analyse van de replicatieve levensduur van gameten. Klik hier om dit bestand te downloaden.
Aanvullend bestand 5. Fiji-macro voor handmatige annotatie van GFP, RLS en terminaal fenotype. Aangepaste Fiji/ImageJ-macro gebruikt voor het identificeren van GFP-positieve gameten, het handmatig vastleggen van de replicatieve levensduur (RLS), het bepalen van de terminale status en het classificeren van terminale of ejectie-fenotypes tijdens de analyse van de replicatieve levensduur van gameten. Klik hier om dit bestand te downloaden.
Discussie
Hier bieden we een gedetailleerd protocol om de replicatieve levensduur van gistgameten afgeleid van precursorcellen met verschillende leeftijden te meten, met behulp van een high-throughput workflow op basis van microfluïdica, geïntroduceerd door Spiri et al9. Deze techniek versnelt het onderzoek naar de efficiëntie van gametogene verjonging over diverse genetische achtergronden en kan worden ingezet om mechanistische inzichten te verkrijgen in het geconserveerde proces van gametogene verjonging. De ontdekking dat gametogenese de replicatieve levensduur in gist reset, werd aanvankelijk gedaan in de W303- en A364-stamachtergronden, waarbij microdissectie-assays als uitkomstmaat werden gebruikt7. Het resetten van de replicatieve levensduur na gametogenese kon niet worden beoordeeld voor de SK1-stam, ondanks het prominente gebruik ervan voor de studie van gametogenese, vanwege moeilijkheden bij het scheiden van de eerste paar dochtercellen van de gamet7. Tijdens de ontwikkeling van dit protocol hebben we deze beperking omzeild door de SK1-stamachtergrond genetisch te modificeren, waarbij de D368V-puntmutatie in de AMN1-locus is geïntroduceerd om de celseparatie te moduleren en FLO8 is verwijderd om flocculatie te elimineren25,26. Verder werd de expressie van STE5, een signalerings-scaffold-eiwit dat essentieel is voor het triggeren van de paringsrespons, conditioneel beperkt door de implementatie van een anhydrotetracycline-induceerbaar Tet-OFF-systeem op de endogene locus (Figuur 3A)27,28,29. Dit resulteert in een volledig conditioneel paringsdefect tussen MATa- en MATα-cellen, waardoor genetische kruisingen mogelijk zijn terwijl het triggeren van paringsresponsen tussen MATa- en MATα-gameten tijdens experimenten wordt vermeden. Ten slotte is, om gameten te identificeren en te onderscheiden van vegetatieve cellen na een korte uitgroei, een transgeen reportergen geïntroduceerd dat een Pma2-GFP-fusie-eiwit draagt onder zijn endogene promoter. Pma2-GFP wordt specifiek laat in de gametogenese tot expressie gebracht, lokaliseert naar het plasmamembraan van de gamet en blijft behouden gedurende meerdere ronden van celdeling na kieming (Figuur 1D, Figuur 3B,C, en Figuur 4A)9. De hier beschreven assay op basis van microfluïdica verhoogt de doorvoer en haalbaarheid van onderzoeken naar het gametogene verjongingsprogramma aanzienlijk in vergelijking met arbeidsintensieve, meerdaagse microdissectie-assays, die voorheen de enige beschikbare methode waren voor het kwantificeren van gametogene verjonging. In overeenstemming met de resultaten verkregen in W303 en A364 via microdissectie7, tonen we aan dat de replicatieve levensduur volledig wordt gereset na gametogenese in de SK1-stamachtergrond. Bovendien onthulden we door deze methode toe te passen dat Atg11-afhankelijke selectieve autofagie essentieel is voor volledige verjonging van gameten (Figuur 5B,D) (gegevens afgeleid van Spiri et al)9.
Microfluïdische apparaten (Figuur 2A–D) worden klaargezet en gemonteerd volgens het beschreven protocol (stap 8). Voordat het microfluïdische apparaat op de microscoop wordt gemonteerd, wordt het dekglas zorgvuldig geïnspecteerd op barsten. Er moet zorg worden betracht om beschadiging van het dekglas te vermijden bij het hanteren van het microfluïdische apparaat. Indien er barsten worden gedetecteerd, zal de betreffende imaging-unit niet worden gebruikt om morsen van medium in de microscoop en drukinstabiliteiten tijdens het experiment te voorkomen. Hoewel niet-aangetaste imaging-units van hetzelfde microfluïdische apparaat in theorie nog kunnen worden gebruikt, wordt aangeraden over te stappen op een nieuw microfluïdisch apparaat, aangezien het structureel aangetaste dekglas een hoog risico op verdere barstvorming tijdens het experiment met zich meebrengt. Vervolgens moet elke imaging-unit onder de microscoop worden geïnspecteerd om de integriteit van de PDMS-structuren en hun juiste hechting aan het dekglas te verifiëren. Om het risico op celklontering en verstoppingen tijdens het experiment te verminderen, wordt Pluronic F-127 aan het groeimedium toegevoegd en wordt het medium vóór het experiment filtergesteriliseerd om debris te verwijderen. Het medium wordt gedurende ten minste 2 h door de microfluïdische imaging-units gepompt voordat de cellen worden geladen, om ervoor te zorgen dat de imaging-units voldoende zijn geprimed met medium. Als er in een specifieke imaging-unit een aanzienlijke hoeveelheid debris ophoopt aan de bovenkant van de U-trap-regio, wat de cellading en de mediumstroom belemmert, wordt aangeraden deze unit uit het experiment te verwijderen door deze los te koppelen van de mediapomp (Figuur 2J). Zodra het medium volledig over de imaging-units is verdeeld, wordt een testbeeld van de ROI's gemaakt om te controleren op verschillen in het brandvlak binnen een enkele imaging-unit en over het gehele microfluïdische apparaat. Als het microfluïdische apparaat een interne kanteling vertoont, kunnen micro-aanpassingen van de tafelkanteling dit probleem verhelpen. Als alternatief kunnen drie z-slices per positie en tijdstip worden gefotografeerd met een z-afstand van 3–8 µm om verschillen in het brandvlak over een enkele imaging-unit te compenseren.
Om tetraden te scheiden in enkelvoudige gameten, worden op leeftijd gesorteerde post-gametogene culturen gedurende 3 u geïncubeerd met Zymolyase (Figuur 1D). Dit enzym verteert specifiek de celwand van gist, waardoor de tetradische ascus die de gameten beschermt wordt verzwakt en niet-gameten lyseren (Figuur 1D). Gescheiden gameten worden beschermd door hun eigen celwanden, die resistenter zijn tegen digestie en lysis dus voorkomen. Controleer na de scheiding van de tetraden de gescheiden gameten om te bevestigen dat er voldoende tetradische dissociatie heeft plaatsgevonden en dat de integriteit van de gameten behouden is gebleven. Als meer dan 30% van de cellen intacte tetraden blijven, kunnen aanvullende sonicatiecycli helpen om deze verder op te breken (Figuur 3B). Het wordt geadviseerd het experiment te staken en opnieuw te beginnen met een verse batch Zymolyase als meer dan 30% van de tetraden intact blijft, aangezien deze tijdens de uitgroei celklonters kunnen vormen, wat problemen kan veroorzaken bij het laden en bedienen van het microfluïdische systeem. Na scheiding worden de gametenculturen gedurende 3 u bij 30 °C in een rijk medium uitgegroeid; dit is lang genoeg om de gameten in grootte te laten toenemen zodat ze gemakkelijk in microfluïdische apparaten kunnen worden gevangen, maar kort genoeg zodat de meeste cellen hun eerste deling nog niet hebben voltooid (Figuur 1D). Na de uitgroei worden de cellen onder een lichtmicroscoop geïnspecteerd om de toegenomen grootte en het verschijnen van de eerste knop te verifiëren. Als een specifiek genotype significant langer nodig heeft om in grootte toe te nemen en te beginnen met delen, moet de timing dienovereenkomstig worden aangepast om een efficiënte vangst van gameten te garanderen.
Uitgegroeide cellen worden vervolgens handmatig in microfluïdische beeldeenheden geladen door voorzichtig druk uit te oefenen op de spuit terwijl de eenheid via de live-weergave van de microscoop wordt geobserveerd. Er moet worden gewaakt voor het uitoefenen van overmatige druk, omdat dit kan leiden tot het loslaten van de PDMS-structuren van het dekglas, waardoor de beeldeenheid beschadigd raakt. Druk wordt continu uitgeoefend totdat de PDMS-structuren licht beginnen te vervormen en de cellen naar het beeldgebied beginnen te stromen. Zodra de cellen in het beeldapparaat beginnen te stromen, wordt de druk verminderd terwijl ze door de eenheid passeren en individuele vallen vullen. Als er in de eerste ronde minder dan 200 cellen zijn gevangen, wordt de druk opnieuw toegepast om de laadcyclus te herhalen. Optimaal geladen eenheden hebben cellen die ten minste 66% van de vallen vullen, waarbij een balans wordt gezocht tussen voldoende belading en overbelading, wat het risico op verstopping tijdens het experiment verhoogt. Overbeladen beeldeenheden bevatten overmatige hoeveelheden cellen en debris boven en binnen het U-valgebied, wat de mediastroom door de beeldeenheid kan belemmeren. Als gedeelde pompen worden gebruikt voor verschillende beeldeenheden en één beeldeenheid per ongeluk overbelast raakt, wordt de getroffen eenheid losgekoppeld van de mediapomp om te voorkomen dat de pomp stilvalt door verstopping, waardoor verstoring van aanvullende experimentele groepen wordt voorkomen (Figuur 2J). Het laden van alle condities wordt binnen 1 h voltooid om voortijdige celdelingen van gameten te vermijden, wat zou leiden tot verdunning van gameten door gegenereerde dochtercellen en een onnauwkeurige beoordeling van de replicatieve levensduur. Wanneer het laden voor alle condities is voltooid en de mediastroom is hervat, wordt het microfluïdische apparaat zorgvuldig geïnspecteerd op eventuele lekkage van media vanuit de opnieuw afgesloten laadpoorten. Als er lekkage wordt waargenomen, verwijder dan voorzichtig de massieve roestvrijstalen pin en steek deze opnieuw in de laadpoorten om het probleem op te lossen. Alternatief, als de lekkage niet kan worden gestopt, wordt de beeldeenheid losgekoppeld van de mediapomp om vloeistofmorsing in de microscoop tijdens het experiment te voorkomen (Figuur 2J). Als de beeldeenheid overbelast is, zoals aangegeven door het aantal cellen en debris rond de eerste paar vallen, wordt deze eveneens losgekoppeld van de mediapomp om te voorkomen dat de pomp tijdens het experiment stilvalt door verhoogde tegendruk als gevolg van een verminderde mediastroom (Figuur 2J).
De hier gebruikte aangepaste open U-trap microfluidische apparaten, specifiek ontworpen voor gebruik met SK1, kunnen een breed dynamisch bereik van de replicatieve levensduur vastleggen met een geringere ruimtelijke beperking van cellen in vergelijking met andere trap-ontwerpen, waardoor de kans op eerder gerapporteerde effecten op de levensduur wordt geminimaliseerd30. Dit open ontwerp heeft echter het nadeel dat cellen voortijdig kunnen worden uitgestoten voordat senescentie kan worden waargenomen, voornamelijk door een aanzienlijke toename van de celgrootte tijdens de laatste paar delingen van het replicatieve leven (specifiek waargenomen voor SK1 en onvermijdelijk) of door geringe drukafwijkingen in het fluidische systeem na verloop van tijd. Daarom moet er bijzondere zorg worden betracht om te voorkomen dat er lucht in het microfluidische systeem terechtkomt tijdens de voorbereiding van het apparaat en het laden van de cellen. Om bias te vermijden bij het evalueren van de replicatieve levensduur van gameten, wordt elke gameet die aan het begin van onze time-lapse is geladen geteld totdat 200 gameten zijn geanalyseerd. Cellen die vóór de senescentie worden uitgestoten, worden voor analysedoeleinden strikt geclassificeerd als gecensureerde subjecten. We stelden vast dat de censureringspercentages vergelijkbaar zijn tussen genotypen (Figuur 5E, gecensureerde subjecten = 63,4% ± 6,2, gemiddelde ± SD), zonder systematische relatie tussen de frequentie van uitstoting en de waargenomen levensduur-fenotypen. Hoewel dit tot nu toe niet is waargenomen, raden we aan het experiment te herhalen als de uitstotingspercentages 80% overschrijden onder de geanalyseerde cellen. Hoewel celuitstoting dus een aanzienlijke bron van censurering vormt die inherent is aan de assay, mede omdat we elke geladen gameet tellen zelfs als deze binnen de eerste paar delingen wordt uitgestoten, zien we geen bewijs dat differentiële uitstoting tussen genotypen verantwoordelijk is voor de gerapporteerde verschillen in levensduur. Door deze aanpak te volgen, kan de replicatieve levensduur consistent en robuust worden gemeten. Om uitstotingsgebeurtenissen in toekomstige experimenten te verminderen, worden momenteel apparaten met nieuwe trap-ontwerpen ontwikkeld en getest.
Hoewel de doorvoer voor het kwantificeren van de gametogene reset van de levensduur aanzienlijk hoger is dan die van de eerder bestaande methode, moeten de celdelingen in elke gamete handmatig worden geteld door een getrainde wetenschapper, waardoor data-analyse momenteel een beperking vormt van de gepresenteerde methode. Recente vorderingen in machine-learningbenaderingen voor het automatiseren van de analyse van de replicatieve levensduur van gist bieden een veelbelovende strategie om de bovengenoemde beperking te overwinnen31. Bijzonder veelbelovend is een onlangs gepubliceerde benadering genaamd BudFinder, die gebruikmaakt van een Masked Autoencoder die in een zelfgesuperviseerde manier is voorgetraind op grootschalige gistbeeldgegevens, om vervolgens een transformermodel te verfijnen voor het direct detecteren van celdelingsgebeurtenissen32. Deze benadering vermindert het aantal handmatig geannoteerde delingsgebeurtenissen dat nodig is voor modelverfijningen aanzienlijk in vergelijking met eerdere methoden. Opwindend is dat de enorme hoeveelheid gegevens die reeds zijn gegenereerd en geannoteerd met behulp van het hier beschreven protocol, zeer geschikt is voor een soortgelijke benadering die in de toekomst de replicatieve levensduuranalyse van gameten zou kunnen automatiseren en de huidige beperking kan wegnemen. Bovendien kan dit protocol voor toekomstige toepassingen gemakkelijk worden gecombineerd met gevestigde biomarkers en geavanceerde expressiesystemen om moleculaire mechanismen en factoren te identificeren die cellulaire verjonging tijdens de gametogenese in S. cerevisiae mediëren, waardoor nieuwe inzichten in dit geconserveerde proces mogelijk worden.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn.
Dankbetuigingen
Wij danken de huidige en voormalige leden van het laboratorium van Brar en Ünal voor de kritische discussie en opmerkingen over het manuscript. Dit werk wordt ondersteund door het Swiss National Science Foundation mobility fellowship P500PB_214421 aan S.S., G.A.B. wordt ondersteund door financiering van de National Institutes of Health (R01AG071869), T.L.S. werd ondersteund door een Longevity Impetus Grant van de Norn Group, Hevolution Foundation en Rosenkranz Foundation. E.Ü. wordt ondersteund door financiering van de National Institutes of Health (R01AG071801) en het Astera Institute.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1000 mL Vacuümfilter-/opslagfles-systeem | Corning | 431098 | 0.22 µm porie 54,5 cm2 PES-membraan, steriel. Bewaren bij kamertemperatuur. |
| spuit van 20 mL | Becton, Dickinson and Company (BD) | 302830 | 20 mL Luer-Lok spuit. Bewaren bij kamertemperatuur. |
| spuit van 5 mL | Becton, Dickinson and Company (BD) | 14-829-45 | 5 mL Luer-Lok spuit, bewaren bij kamertemperatuur. |
| Ampicilline | Alpha Teknova | A9510 | Bewaren bij -20 °C na reconstitutie in water. |
| Anti-biotine magnetische kraaltjes | Miltenyi Biotecnology | 130-097-046 | Bewaren bij 4 °C. |
| β-mercaptoethanol | MilliPORE SIGMA | M625-250mL | Bewaren bij 4 °C. |
| BSA | MilliPORE SIGMA | A4503-100G | Bewaren bij 4 °C. |
| Clay Adams Intramedic Luer-stub-adapter | Becton, Dickinson and Company (BD) | 427565 | 23 gauge, bewaar bij kamertemperatuur. |
| Cuvetten | Bio Rad | 2239955 | Wegwerpcuvetten van polystyreen voor semimicrovolumes. Bewaren bij kamertemperatuur. |
| Ethanol | N.A. | diverse | |
| EZ-Link Sulfo-NHS-LC-biotine | ThermoFisher Scientific | 21335 | Biotine voor het labelen van founder-cellen voor replicatieve veroudering |
| Fiji-software | https://fiji.sc/ | NIET VAN TOEPASSING | versie: Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) |
| Fluorescerend gelabelled streptavidine | ThermoFisher Scientific | S11225 | Alexa Fluor 546-conjugaat, bewaren bij -20 °C in aliquoten. |
| Fluorescent gelabelleerd tarwekiemagglutinine | ThermoFisher Scientific | W11263 | Alexa Fluor 350-conjugaat, bewaren bij -20 °C in aliquoten. |
| Formaldehyde | ThermoFisher Scientific | F79-1 | 37%, Bewaren bij 4 °C. |
| Medium voor de inductie van gametogenese | N.v.t. | In-house bereid volgens standaardrecept | 2% kaliumacetaat, aminozuuraanvullingen en ampicilline (40 mg/L adenine, 40 mg/L uracil, 10 mg/L histidine, 10 mg/L leucine en 10 mg/L tryptofaan, 100 μg/mL ampicilline) |
| Glycine | ThermoFisher Scientific | BP381-1 | 100%, 200 proof. Bewaren bij kamertemperatuur. |
| Holle roestvrijstalen pin | iBiochips | HSP-100 | P/N: 0,28”, OD, 0,016”, ID, 0,500” Langdurig, bewaren bij kamertemperatuur. |
| Inverteerde fluorescentiemicroscoop | Niet beschikbaar | Niet beschikbaar | |
| Legato 200 spuitpompen | kdScientific | 788200 | Bewaren bij kamertemperatuur. |
| Legato 200/210 plastic of glas 6/10 multi rack | kdScientific | 788300 | Bewaren bij kamertemperatuur. |
| Lichtmicroscoop | Niet beschikbaar | Niet van toepassing | |
| Low-adhesiebuizen | USA Scientific | 1415-2600 | Bewaar bij kamertemperatuur. |
| LS-kolommen | Miltenyi Biotechnology | 130-042-401 | Bewaren bij kamertemperatuur. |
| Microfluïdische apparaten | iBiochips | ADU-10, (AD-chips van de #18++) | Bewaar bij kamertemperatuur. |
| Medische slang zonder DEHP | iBiochips | MTB-100 | ID = 0,202”, OD = 0,060”, wand = 0,20”, bewaar bij kamertemperatuur. |
| PBS | Niet beschikbaar | In-house bereid volgens standaardrecept | Bereid 1 L voor van: PBS pH 7; PBS pH 8, PBS pH 8 + 100 mM glycine, PBS pH 7,4 + 0,5% BSA |
| Pluronic F-127 | MilliPORE SIGMA | P2443 | Bewaren bij kamertemperatuur. |
| Voorfiltratiefilter | Miltenyi Biotechnology | 130-041-407 | Poriegrootte 30 µm |
| QuadroMACS-separator en startkits | Miltenyi Biotechnology | 130-091-051 | Bewaren bij kamertemperatuur. |
| Massieve roestvrijstalen pin | iBiochips | SSP-200 | OD, 0,027”, ID, 0,500”, bewaren bij kamertemperatuur. |
| Sonicator | Branson | 100-132-1623R & 101-135-066R | |
| Spectrofotometer | N.v.t. | Geen gegevens beschikbaar | |
| Buisrotator | N.V.T. | Niet van toepassing | |
| Y+A8+2:29+2:31+A8+2+2:33 | Brar-Üdatabase van giststammen | pÜB42275 | trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| Giststam 2 | Brar-Üdatabase van giststammen | pÜB48561 | atg11Δ::KanMX, trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| YPD (YEP + 2% glucose, aangevuld met Trp en Ura) | Niet van toepassing | In-house bereid volgens standaardrecept | YPD (1% gistextract, 2% peptone, 2% glucose, 22,4 mg/L uracil en 80 mg/L tryptofaan). |
| Zymolyase 100T | MP Biomedicals | 8320932 | Bewaren bij -20 °C in aliquots na reconstitutie in water. |
Referenties
- Denoth Lippuner A, Julou T, Barral Y. Budding yeast as a model organism to study the effects of age. FEMS Microbiol Rev. 2014;38(2):300-25.
- Higuchi-Sanabria R et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Res. 2014;14(8):1133-46.
- Hughes AL, Gottschling DE. An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature. 2012;492(7428):261-5.
- Nyström T, Liu B. Protein quality control in time and space—links to cellular aging. FEMS Yeast Res. 2014;14(1):40-8.
- Neiman AM. Sporulation in the budding yeast Saccharomyces cerevisiae. Genetics. 2011;189(3):737-65.
- Sing TL, Brar GA, Ünal E. Gametogenesis: exploring an endogenous rejuvenation program to understand cellular aging and quality control. Annu Rev Genet. 2022;56(1):89-112.
- Ünal E, Kinde B, Amon A. Gametogenesis eliminates age-induced cellular damage and resets life span in yeast. Science. 2011;332(6037):1554-7.
- Ünal E, Amon A. Gamete formation resets the aging clock in yeast. Cold Spring Harb Symp Quant Biol. 2011;76:73-80.
- Spiri S et al. A role for selective ER autophagy in gametogenic rejuvenation revealed by high-throughput lifespan profiling. Nat Commun. 2026. doi:10.1038/s41467-026-77993-0.
- Koch BA, Staley E, Jin H, Yu HG. The ESCRT-III complex is required for nuclear pore complex sequestration and regulates gamete replicative lifespan in budding yeast meiosis. Nucleus. 2020;11(1):219-36.
- Lee MB et al. Defining the impact of mutation accumulation on replicative lifespan in yeast using cancer-associated mutator phenotypes. Proc Natl Acad Sci U S A. 2019;116(8):3062-71.
- Mortimer RK, Johnston JR. Life span of individual yeast cells. Nature. 1959;183(4677):1751-2.
- Chen KL, Crane MM, Kaeberlein M. Microfluidic technologies for yeast replicative lifespan studies. Mech Ageing Dev. 2017;161(Pt B):262-9.
- Jin M et al. Divergent aging of isogenic yeast cells revealed through single-cell phenotypic dynamics. Cell Syst. 2019;8(3):242-53.e3.
- Jo MC et al. High-throughput analysis of yeast replicative aging using a microfluidic system. Proc Natl Acad Sci U S A. 2015;112(30):9364-9.
- Li Y et al. A programmable fate decision landscape underlies single-cell aging in yeast. Science. 2020;369(6501):325-9.
- Li Y et al. Multigenerational silencing dynamics control cell aging. Proc Natl Acad Sci U S A. 2017;114(42):11253-8.
- Liu P, Young TZ, Acar M. Yeast Replicator: a high-throughput multiplexed microfluidics platform for automated measurements of single-cell aging. Cell Rep. 2015;13(3):634-44.
- Thayer NH et al. The Yeast Lifespan Machine: a microfluidic platform for automated replicative lifespan measurements. bioRxiv. 2022;2022.02.14.480146.
- Schindelin J et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Spiri S. Fiji macros for microscopy analysis of gametogenic rejuvenation [Internet]. Zenodo; 2026. Available from: [https://doi.org/10.5281/zenodo.22004193](https://doi.org/10.5281/zenodo.22004193)
- Cabib E, Bowers B. Chitin and yeast budding: localization of chitin in yeast bud scars. J Biol Chem. 1971;246(1):152-9.
- Mizushima N, Levine B, Cuervo AM, Klionsky DJ. Autophagy fights disease through cellular self-digestion. Nature. 2008;451(7182):1069-75.
- Rubinsztein DC, Mariño G, Kroemer G. Autophagy and aging. Cell. 2011;146(5):682-95.
- Kobayashi O, Suda H, Ohtani T, Sone H. Molecular cloning and analysis of the dominant flocculation gene FLO8 from Saccharomyces cerevisiae. Mol Gen Genet. 1996;251(6):707-15.
- Fang O et al. Amn1 governs post-mitotic cell separation in Saccharomyces cerevisiae. PLoS Genet. 2018;14(10):e1007691.
- Azizoglu A, Brent R, Rudolf F. A precisely adjustable, variation-suppressed eukaryotic transcriptional controller to enable genetic discovery. eLife. 2021;10:e69549.
- Choi KY, Satterberg B, Lyons DM, Elion EA. Ste5 tethers multiple protein kinases in the MAP kinase cascade required for mating in S. cerevisiae. Cell. 1994;78(3):499-512.
- Bellí G et al. An activator/repressor dual system allows tight tetracycline-regulated gene expression in budding yeast. Nucleic Acids Res. 1998;26(4):942-7.
- Gao Z et al. Comparative analysis of yeast replicative lifespan in different trapping structures using an integrated microfluidic system. Adv Mater Technol. 2020;5(12):2000655.
- Aspert T, Hentsch D, Charvin G. DetecDiv, a generalist deep-learning platform for automated cell division tracking and survival analysis. eLife. 2022;11:e79519.
- Nguyen P et al. BudFinder: a masked auto-encoder vision transformer framework for yeast budding detection and lifespan quantification. PLoS Comput Biol. 2026;22(5):e1013700.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar