Dit protocol maakt een betrouwbare isolatie van levensvatige ventriculaire cardiomyocyten mogelijk uit de kortlevende jaarlijkse killifish, Nothobranchius furzeri, over verschillende leeftijdsgroepen heen, wat resulteert in cellen die geschikt zijn voor whole-cell patch-clamp studies naar leeftijdsgerelateerde cardiale remodellering.
Methodenartikel
Isolatie van ventriculaire cardiomyocyten van de jaarlijkse killifish Nothobranchius furzeri voor whole-cell patch clamp-registraties
In dit artikel
Samenvatting
Samenvatting
Geïsoleerde functionele cardiomyocyten blijven de standaardbenadering voor het bestuderen van de cardiale elektrofysiologie. Single-cell preparaten maken directe onderzoeken en nauwkeurige metingen van ionenstromen en actiepotentialen mogelijk zonder de structurele complexiteit van intact hartweefsel. Nothobranchius furzeri (Afrikaanse turquoise killikvis) is snel een prominent modelorganisme geworden voor gerontologisch onderzoek vanwege de uitzonderlijk korte levensduur en overeenkomsten in verouderingsmechanismen met zoogdieren, inclusief mensen. Deze soort combineert praktische voordelen, zoals een kleine omvang, goedkope huisvesting en een snelle levenscyclus, met translationele relevantie. N. furzeri vertoont leeftijdsonafhankelijke afnames in locomotorische activiteit, cognitie en orgaanfunctie, accumulatie van moleculaire kenmerken van veroudering en gevoeligheid voor farmacologische behandelingen die de levensduur en gezondheidsspan beïnvloeden. Het onderzoeken van de functionele achteruitgang van het verouderende hart vereist echter een betrouwbare methode om hoogwaardige, levensvatbare cellen te verkrijgen die geschikt zijn voor veeleisende single-cell technieken. Deze studie optimaliseerde een eerder beschreven protocol voor de isolatie van Danio rerio cardiomyocyten om een consistente recovery van gezonde functionele myocyten uit zowel jonge als senescente N. furzeri te waarborgen. Dit protocol beschrijft de isolatie van ventriculaire cardiomyocyten uit N. furzeri, specifiek geoptimaliseerd voor de whole-cell patch clamp techniek. Het artikel demonstreert hoe het hart efficiënt kan worden uitgesneden, hoe enzymatische dissociatie van het myocard via retrograde perfusie wordt uitgevoerd en hoe de geïsoleerde cardiomyocyten worden bewaard. We bespreken de selectie van enzymen die nodig zijn om de extracellulaire matrix en intercellulaire verbindingen te verteren zonder de structuur van de ionkanalen aan te tasten. Vers geïsoleerde cardiomyocyten zijn geschikt voor elektrofysiologische assays met hoge resolutie, waaronder registraties van actiepotentialen en metingen van belangrijke binnenwaartse en buitenwaartse ionenstromen over verschillende leeftijdsgroepen. Het artikel behandelt daarnaast de kenmerken van cardiomyocytenisolatie bij vissen die verschillen van standaard isolatieprocedures bij zoogdieren.
Inleiding
De leeftijdsafhankelijke functionele achteruitgang van het hart wordt gedreven door structurele, moleculaire en elektrofysiologische remodellering, wat gezamenlijk de cardiale reserve beperkt en de vatbaarheid voor aritmogenese verhoogt1. Om de mechanismen die cardiale veroudering op cellulair niveau aandrijven te begrijpen, dient de whole-cell patch clamp-techniek als een onmisbaar experimenteel instrument. Hiermee is een directe, kwantitatieve evaluatie van individuele transmembraan-ionenstromen en hun kinetiek mogelijk, evenals van actiepotentialen (AP), wat inzicht geeft in de specifieke veranderingen in ionenstromen die ten grondslag liggen aan leeftijdsgerelateerde myocardiale dysfunctie. Het onderzoeken van deze mechanismen vereist betrouwbare vertebratenmodellen voor cardiale senescentie. In recente jaren is de Afrikaanse turquoise killikvis (Nothobranchius furzeri) naar voren gekomen als een veelbelovend model voor het bestuderen van cardiale veroudering vanwege zijn natuurlijk korte levensduur2,3. Voorlopige moleculaire en histologische studies hebben gelijkenissen in verouderingsprocessen tussen Nothobranchius en zoogdieren onthuld. Onderzoeken uitgevoerd door andere groepen hebben vastgesteld dat N. furzeri essentiële kenmerken van cardiale veroudering bij zoogdieren vertoont, waaronder telomeerverkorting, een verminderde inhoud van mitochondriaal DNA en expressie van antioxidante enzymen, structurele en elektrofysiologische myocardiale veranderingen, en de accumulatie van verouderingsmarkers zoals lipofuscine en verhoogde β-galactosidase-activiteit4,5,6.
Ondanks de groeiende prominentie van N. furzeri in cardiovasculair onderzoek, wordt gedetailleerde elektrofysiologische karakterisering op single-cell niveau beperkt door aanhoudende technische uitdagingen. Het verkrijgen van hoogwaardige patchclamp-opnames is strikt afhankelijk van het isoleren van functionele cardiomyocyten die hun structurele integriteit, intacte ionkanalen en een niet-hypergecontracteerde morfologie behouden. Hoewel enzymatische dissociatieprotocollen voor zoogdier-cardiomyocyten goed zijn vastgesteld, blijft het isoleren van levensvatige cardiac mycocyten uit vissenharten moeilijk vanwege de niet-zoogdierachtige weefselarchitectuur, de relatief lage cellulaire opbrengst en de geringe hartgrootte7,8. De belangrijkste beperkingen van deze procedure zijn de technische moeilijkheid om het hart correct te canuleren en de gevoeligheid van de preparatie voor kleine variaties in de enzymatische behandeling. Elke verstoring van de perfusiestroom leidt tot een aanzienlijke verslechtering van zowel de celkwaliteit als de opbrengst. Bovendien kunnen zelfs geringe afwijkingen in de enzymconcentratie of digestietijd de cellevensvatbaarheid en de kwaliteit van daaropvolgende elektrofysiologische opnames aanzienlijk beïnvloeden. Ook de leeftijd van het dier moet worden meegewogen. Hoewel harten van oudere vissen iets hogere enzymconcentraties en verlengde digestietijden vereisen vanwege hun verhoogde gehalte aan collageenvezels en fibroblasten2, blijven de algemene principes van isolatie constant, waarbij enzymconcentraties en blootstellingstijden variëren binnen 10% om optimale resultaten te behalen.
Bijgevolg is een gedetailleerd, zeer reproduceerbaar enzymatisch isolatieprotocol een vereiste voor het verder brengen van elektrofysiologisch onderzoek naar cardiale veroudering in vismodellen. Ondanks bepaalde morfologische overeenkomsten in lineaire afmetingen vereist de isolatie van cardiomyocyten uit N. furzeri verschillende substantiële aanpassingen in vergelijking met het protocol voor Danio rerio. De klassieke procedure voor het isoleren van cellen uit het hart van de zebravis houdt in dat het intacte hart gedurende een relatief lange periode wordt ondergedompeld in een enzymatische oplossing7,8,9. Hoewel deze aanpak levensvatbare cellen oplevert, kan deze te agressief zijn voor het hart van Nothobranchius en kan dit leiden tot overmatige enzymatische digestie. Deze methode waarborgt een stabiele stroom van oplossingen direct in de hartkamers, waardoor een efficiëntere uitspoeling van bloed uit het hart wordt gerealiseerd en een preciezere en mildere enzymatische behandeling mogelijk wordt. Dit artikel beschrijft een verfijnde methodologie voor het isoleren van levensvatbare, voor patchclamp geschikte cardiale myocyten uit N. furzeri, waarbij de belangrijkste aanpassingen worden behandeld die nodig zijn om elektrofysiologische opnames van hoge kwaliteit te garanderen.
Protocol
De studie werd uitgevoerd op N. furzeri van de GRZ-stam. Jonge, seksueel volwassen vissen van beide geslachten in de leeftijd van 1,5–2 maanden (N = 19, lichaamsmassa = 0,71 g ± 0,36 g) werden gebruikt om actiepotentialen en ionstromen in geïsoleerde ventriculaire cardiomyocyten vast te leggen. De vissen werden gefokt en geleverd door het A.N. Severtsov Institute of Ecology and Evolution van de Russische Academie van Wetenschappen. De dieren werden gehouden in aquaria bij 24 °C ± 1 °C onder een licht/donkercyclus van 12 uur in watertanks van 60–100 L. De dierdichtheid bedroeg 10–20 dieren per tank, overeenkomstig eerder gepubliceerde aanbevelingen10.
Het principe van de isolatie van cardiomyocyten uit N. furzeri is gebaseerd op de klassieke isolatiemethode voor vissen die eerder is beschreven en is aangepast voor kleine vissen11,12. Alle experimenten werden uitgevoerd in overeenstemming met de Guide for the Care and Use of Laboratory Animals (US National Institutes of Health) en EU-richtlijn 2010/63/EU. Het experimentele protocol is goedgekeurd door de Bioethische Commissie van de Lomonosov Moscow State University (aanvraag №202-a, goedgekeurd tijdens de vergadering van de Bioethische Commissie №169-d op 27.02.2025). De gebruikte reagentia en apparatuur staan vermeld in de Tabel met Materialen.
1. Bereiding van de oplossingen
- Bereid de Ca2+-vrije isolatie-oplossing voor bestaande uit (in mmol L-1): 100 NaCl, 10 KCl, 1,2 KH2PO4, 4 MgSO4, 50 taurine, 20 glucose en 10 HEPES. Stel de pH bij naar 6,9 met NaOH bij kamertemperatuur (24 °C). Voer de isolatie uit met een fysiologische zoutoplossing op kamertemperatuur. Zuurstofverzadiging van de oplossing is niet vereist voor de isolatie.
OPMERKING: De isolatie-oplossing kan 3–4 dagen bij 4 °C worden bewaard in een glazen fles. - Bereid 3 mL enzymatische oplossing voor op basis van de Ca2+-vrije oplossing, bestaande uit 0,8 mg mL-1 collagenase type 1A, 0,5 mg mL-1 trypsine en 0,8 mg mL-1 runder serumalbumine (BSA). Voeg de enzymen vlak voor de isolatieprocedure toe om de enzymatische activiteit te behouden.
OPMERKING: De enzymconcentraties moeten mogelijk worden aangepast, aangezien de enzymactiviteit per batch varieert. - Koel 50–100 mL kraanwater voor in een koelkast tot +4 °C. Het gekoelde water is nodig voor de analgesie van de vis.
2. Voorbereiding van het isolatiesysteem
- Bevestig twee spuitcilinders van 10 mL aan een statief op een hoogte van ongeveer 35 cm.
- Sluit siliconen slangen (d = 8 mm) aan op de cilinders en verbind de vrije uiteinden met een 3-weg infusiekraan.
- Vul één slang met de Ca2+-vrije isolatieoplossing en de andere met de enzymatische oplossing. Zorg ervoor dat er geen luchtbellen in de slangen achterblijven, aangezien deze de doorstroming belemmeren en de kwaliteit van de isolatie verminderen. Sluit de doorstroming af.
- Vul een 32 G doseernaald met Ca2+-vrije oplossing met behulp van een insulinespuit van 1 mL om luchtbellen bij de naaldpunt te voorkomen.
- Bevestig de gevulde naald aan het vrije uiteinde van de 3-weg kraan.
- Fixeer de naald met montagekneedgum aan een Petri-schaal van 100 mm, parallel aan het bodemvlak.
- Plaats de Petri-schaal die is aangesloten op het perfusiesysteem onder de stereomicroscoop en bevestig deze met de tafelklemmen en montagekneedgum (Figuur 1A).
3. Dissectie en isolatie van het hart
- Bereid de chirurgische instrumenten voor: twee paren microschirurgische oogscharen en pincetten, en een dissectieschaal met vier medische naalden.
- Neem het vooraf gekoelde kraanwater uit de koelkast en dompel de vis snel onder. Wacht tot de kieuwdeksels stoppen met bewegen.
WAARSCHUWING: Bevestig het stoppen van de operculaire beweging om adequate analgesie te waarborgen voordat u verder gaat. - Haal de vis uit het water, plaats deze met de rugzijde naar boven op de dissectieschaal en doorsnij het ruggenmerg met de oogscharen.
- Draai de vis op zijn rug en zet deze met naalden vast op de schaal. Pin de kop, staart en opercula vast, waarbij de opercula in een volledig geopende positie naar achteren worden gepind om meer ruimte te creëren.
- Maak een transversale incisie van het peritoneum. Breid de incisie longitudinaal uit naar de hoofdas van het lichaam, waarbij de huid met pincetten voorzichtig van de viscerale organen wordt getild. Ga door tot aan de rand van de onderkaak en zet de huidranden links en rechts vast (Figuur 1B).
- Lokaliseer de ventrikel en de bulbus arteriosus. Pak de bulbus arteriosus met een pincet zo ver mogelijk van de ventrikel vast en til deze voorzichtig uit het lichaam. Snijd, zonder het pincet los te laten, caudaal aan de ventrikel om deze intact te houden.
- Verplaats het geïsoleerde hart onder de stereomicroscoop naar de Petrischaal. Bevestig de canulepunt in de ventrikel door deze eerst in de bulbus arteriosus te plaatsen en vervolgens voorzichtig door de aortaklep te leiden zonder het omliggende weefsel te beschadigen. Succesvolle canulatie kon in > 90% van de harten worden bereikt.
- Zet de bulbus arteriosus met een ligatuur aan de canule vast (Figuur 1C).
OPMERKING: Een menselijke haar (d = 50–70 µm) dient goed als ligatuur, aangezien standaard hechtgaren te dik is voor het kleine hart.
4. Isolatie van cardiomyocyten
- Open de 3-weg stopkraan om de vloeistofstroom vanuit het reservoir met Ca2+-vrije oplossing toe te laten. Bij een correcte uitvoering vult de ventrikel zich met de oplossing en zet deze uit. De stroomsnelheid was ingesteld op 43 µL min-1.
- Trim de resten van het atrium en de sinus venosus met microschirische scharen zonder de ventriculaire wanden te beschadigen.
- Perfundeer het hart gedurende 10–12 min terwijl u controleert op een uniforme stroom. Druk voorzichtig op de siliconenslang om een kortstondige puls oplossing af te geven die de ventriculaire trabeculae uitzet en het resterende bloed uitspoelt. Een succesvolle uitspoeling wordt aangegeven door een hartstilstand en het stoppen van de stroom erythrocyten onder de stereomicroscoop.
- Draai de stopkraan om de enzymatische oplossing naar de ventrikel te leiden. Perfundeer gedurende 4–6 min. Bevestig de enzymatische behandeling visueel door het verlies van de integriteit van de ventriculaire wand en het loslaten van kleine myocardfragmenten.
WAARSCHUWING: Vermijd het bemonsteren of overbrengen van het perfusaat naar een omgekeerde microscoop voor onderzoek, omdat dit kan leiden tot verlies of mechanische beschadiging van het celmateriaal en de continue monitoring van de perfusiekwaliteit kan onderbreken. Het is beter om te vertrouwen op de hierboven beschreven tekenen van een succesvolle isolatie, die duidelijk zichtbaar zijn onder een binoculaire microscoop. - Voeg een kleine aliquot (300–400 µL) Ca2+-vrije oplossing toe aan een weefselkweekschaal van 35 mm. Snijd de ventrikel los van de bulbus arteriosus en breng deze over in de schaal.
- Snipper de ventrikel met fijne scharen en tritureer het weefsel vervolgens voorzichtig door herhaaldelijk te pipetteren met een micropipet van 100 µL voorzien van een afgeknotte tip.
- Breng de celsuspensie over in een buisje van 1500 µL. Controleer een aliquot onder een omgekeerde microscoop bij lage vergroting (10×). Schat visueel de dichtheid van staafvormige, gestreepte cardiomyocyten in het gezichtsveld. Als het veld te vol is, met veel overlappende staafvormige cellen (>50 per 10× veld), voeg dan Ca2⁺‑vrije oplossing toe om de celdichtheid te verlagen en overmatige opeenhoping in de meetkamer te voorkomen. Laat de cellen 40–50 min bezinken bij 4 °C voor aanvang van de metingen.
OPMERKING: Cellen kunnen tijdens de bezinkperiode bij 4 °C worden bewaard; gebruik ze voor metingen binnen 8 u na isolatie.
5. Whole-cell patchclamp-registraties
- Bereid de extracellulaire en intracellulaire oplossingen voor de verschillende ionenstromen en actiepotentiaalmetingen voor die in Tabel 1 staan vermeld.
- Trek patchpipetten uit dunwandige borosilicaatglascapillairen (zonder filament) met een verticale puller en vul deze met intracellulaire oplossing. De weerstand van de gevulde pipet moet 2,0–3,0 MΩ zijn voor alle meetconfiguraties.
- Vul het perfusiereservoir met de extracellulaire badoplossing en spoel de leidingen door om alle luchtbellen te verwijderen voordat de cellen in de meetkamer worden geplaatst.
- Voeg een klein volume (30–40 µL) van de suspensie van geïsoleerde cardiomyocyten toe aan de meetkamer met glazen bodem en laat de cellen 5–10 min bezinken.
- Bevestig de pipet aan de head-stage van de versterker. Breng de pipet onder microscopische begeleiding met de micromanipulator naar de doelcardiomyocyt totdat de punt het membraan raakt, wat zichtbaar is als een kleine inkeping en een toename van de pipetweerstand.
- Pas een lichte negatieve zuigkracht toe om een GΩ-seal met hoge weerstand te vormen, wat gewoonlijk binnen enkele seconden gebeurt.
- Stel het holdingpotentiaal in op -80 mV. Ruptureer het membraan met een reeks korte zuigpulsen. Minimaliseer na het tot stand brengen van de whole-cell configuratie de capaciteitstransiënten en compenseer de celcapaciteit en serieweerstand (toegangsweerstand) met behulp van de compensatieschakelingen van de versterker.
- Compenseer deze capacitieve stromen met de bedieningselementen voor Celcapaciteit en Serieweerstand op de versterker. Pas de bediening voor Celcapaciteit aan om de belangrijkste capacitieve transiënt te minimaliseren, en pas vervolgens de bediening voor Serieweerstand aan om de resterende overshoot te verminderen totdat deze grotendeels is opgeheven en de basislijnstroom vlak is.
- Accepteer alleen cellen met een geschatte toegangsweerstand na compensatie van ≤10–12 MΩ voor de registratie van actiepotentialen en ionenstromen. Ga over tot het registreren van actiepotentialen of ionenstromen, waarbij indien nodig de specifieke blokkers worden toegevoegd die in Tabel 2 staan vermeld voordat de registratie begint.
- Registreer met patchclamp-acquisitiesoftware waarmee aangepaste stimulatieprotocollen voor elke doelstroom kunnen worden geconfigureerd. De in deze studie gebruikte voltage-clamp-protocollen worden weergegeven in Figuur 2.
Resultaten
Dit protocol levert individuele, staafvormige ventriculaire cardiomyocyten van N. furzeri op die geschikt zijn voor whole-cell patch clamp-registraties met een hoge resolutie. Een succesvolle isolatie wordt eerst beoordeeld op basis van celmorfologie en de kwaliteit van de seal, en vervolgens functioneel bevestigd door het vermogen om stabiele actiepotentialen en elk van de belangrijkste ionenstromen te registreren met de verwachte spanningsafhankelijkheid en amplitude. De onderstaande representatieve registraties zijn verkregen van jonge N. furzeri en definiëren de referentiewaarden die duiden op een gezonde, goed geklemde cel. Afwijkingen van deze benchmarks duiden doorgaans op een suboptimale isolatie en worden beschreven bij elk criterium.
Celmorfologie en vorming van de afsluiting
Levensvatige ventriculaire cardiomyocyten van N. furzeri zien er langgerekt en staafvormig uit met een glad, morfologisch intact sarcolemma (Figuur 3). In sommige cellen kon onder de lichtmicroscoop een vage transversale striatie worden waargenomen, hoewel dit niet in elke cel consistent zichtbaar was; daarom werden het gladde, intacte membraan en de langgerekte, staafvormige morfologie gebruikt als de primaire criteria voor het selecteren van cellen voor registratie. Dergelijke cellen vormen gemakkelijk een seal met een hoge weerstand (>1 GΩ) en tolereren membraanruptuur. Daartegenover zijn afgeronde, gecontracteerde, granulaire of gezwollen cellen tekenen van overmatige digestie of mechanische beschadiging: zij sluiten slecht af, raken snel uitgeput en dienen te worden weggegooid. Een gezonde cel behoudt een stabiel rustmembraanpotentiaal en vertoont minimale lekstroom bij het holdingpotentiaal van -80 mV.
Kenmerken van patchclamp-metingen
Whole-cell patch-clamp opnames werden uitgevoerd bij 22–24 °C met een patch-clamp versterker. Signalen werden gesampled op 10 kHz en laagdoorlaatgefilterd op 1–2 kHz. De uitgangsversterking (α) werd ingesteld op ×0,5 om de signaalresolutie op de digitizer te optimaliseren. Serieweerstand werd voor 70%–80% gecompenseerd; lag 10 µs. Opnames werden verworpen als de geschatte toegangsweerstand 10–12 MΩ overschreed of met meer dan ~10% veranderde tijdens de opname. Voor opnames van actiepotentialen en ionenstromen werd geen lineaire lekstroomcorrectie toegepast.
Cellen werden uitgesloten van analyse als ze voldeden aan een van de volgende criteria: rustmembraanpotentiaal minder negatief dan −70 mV in current‑clamp modus; onvermogen om een stabiele gigaseal te vormen (>1 GΩ); accesweerstand >10–12 MΩ na compensatie; snelle run‑down van ionische stromen tijdens de registratie; morfologische schade (afgerond, granulair of hypergecontracteerd uiterlijk).
Actiepotentialen (positieve controle voor levensvatbaarheid)
Actiepotentialen die zijn geregistreerd in current-clamp modus bieden de meest directe beoordeling van de elektrische levensvatbaarheid van een geïsoleerde cardiomyocyt. Wek AP's op met depolariserende stroompulsen van 1 ms (0,4–1 nA, ~30% boven de drempelwaarde). Stel de stimulatiefrequentie in op 0,3 Hz. Registreer de AP's na ~5 min, zodra de golfvorm een stabiele, stationaire toestand bereikt. In een goed geïsoleerde cardiomyocyt van jonge N. furzeri is de rustmembraanpotentiaal (RMP) stabiel en ligt deze dicht bij -85 mV (Figuur 4B). De AP schiet door naar ongeveer +30 mV, wat resulteert in een duidelijke alles-of-niets stijgende fase (Figuur 4A). Representatieve AP-kenmerken omvatten een APD90 van ~530 ms, een APD50 van ~460 ms en een maximale stijgsnelheid (dV/dtmax) van ~50 V s-1. Een gedepolariseerde RMP (minder negatief dan ongeveer -70 mV), een verminderde of afwezige overshoot, een vertraagde stijgsnelheid, of het onvermogen om herhaaldelijke vuringen met een stabiele amplitude en duur in de meeste gevallen te handhaven, duidt op een beschadigde of slecht geklampte cel, die niet kan worden gebruikt om AP-kenmerken te evalueren.
Snelle natriumstroom (INa)
De snelle natriumstroom ligt ten grondslag aan de stijgende fase van de AP en is een gevoelige marker voor de membraanintegriteit en de kwaliteit van de clamp. Met behulp van de op Cs+ gebaseerde oplossingen in Tabel 1 wordt INa geregistreerd als een grote, snel activerende en inactiverende binnenwaartse stroom (Figuur 5A). In gezonde jonge myocyten wordt INa detecteerbaar nabij -60 mV, bereikt het een piekdensiteit van ongeveer -13 pA pF−1 bij ongeveer -30 mV en keert het om nabij +20 mV (Figuur 5B). De tijdconstante voor inactivatie neemt af van ~8 ms bij -50 mV tot ~2 ms bij -10 mV, en de halve-inactivatiespanning ligt nabij -70 mV13 (Figuur 5C,D). Een aanzienlijk verminderde amplitude van de piekstroom, een verschoven of onduidelijk omkeerpotentiaal, of vertraagde en vervormde activatie-/inactivatiekinetiek duiden op inadequate spanningscontrole (serieweerstands-fout) of een aangetaste membraanintegriteit, in plaats van op de isolatie zelf.
Calciumstromen (ICaL en ICaT)
Wanneer opgenomen met de calciumstroomoplossingen (Tabel 1), vertonen N. furzeri cardiomyocyten een netto binnenwaartse calciumstroom met twee componenten. De stroom begint te activeren bij ongeveer -60 mV, wat wijst op een T-type component (ICaT) naast de dominante L-type stroom (ICaL), en bereikt een piekdichtheid van ongeveer -7 pA pF−1 tussen -10 mV en 0 mV (Figuur 6B). De identiteit van de componenten wordt farmacologisch bevestigd: 10 µM nifedipine blokkeert de stroom gedeeltelijk, terwijl 100 µM een bijna volledige inhibitie produceert (Figuur 6A). Het is belangrijk om op te merken dat een nifedipineconcentratie van 100 µM alleen werd gebruikt in specifieke controle-experimenten om te verifiëren dat de residuele stroom na 10 µM nifedipine volledig gevoelig is voor hogere concentraties en dus geïdentificeerd kon worden als ICaT. Voor standaard routine-opnames is 50 µM voldoende om de netto ICa stroom volledig te blokkeren. De ICaL component wordt gedefinieerd als een stroom opgewekt vanuit een holdingpotentiaal van -50 mV, en ICaT wordt verkregen als het verschil tussen de stroom opgenomen vanaf -90 mV en de geïsoleerde ICaL (Figuur 6C,D). Een helder gedefinieerde, nifedipine-gevoelige binnenwaartse stroom met de beschreven activerings- en piekstroomvoltage's duidt op goed behouden calciumkanalen.
Vertraagde gelijkrichter-kaliumstromen (IKr en IKs)
De aanwezigheid van uitwaartse kaliumstromen bevestigt dat het repolarisatiemechanisme functioneel intact blijft na de isolatie. Onder de farmacologische condities (Tabel 2) roept depolarisatie tot -40 mV en hoger een uitwaartse stroom op in alle gezonde cellen. Met selectieve blokkers worden twee componenten onderscheiden: de trage vertraagde gelijkrichter (IKs), gevoelig voor chromanol 293B (20 µM), en de snelle vertraagde gelijkrichter (IKr), gevoelig voor E4031 (1 µM) (Figuur 7A,B). In myocyten van jonge vissen bereiken zowel IKs als IKr een dichtheid van ongeveer 1 pA pF−1 bij sterk gedepolariseerde potentialen (Figuur 7C,D). De aanwezigheid van beide vertraagde gelijkrichtercomponenten, die een belangrijke rol spelen bij de menselijke ventriculaire repolarisatie maar minder bijdragen in standaard knaagdiermodellen14, dient als een cruciale validatie dat de geregistreerde cel een N. furzeri ventriculaire myocyt is met intacte repolarisatiestromen.
Achtergrond inwaartse gelijkrichterstroom (IK1)
De achtergrond-inwaartse gelijkrichterstroom bepaalt het rustmembraanpotentiaal en kan eenvoudig worden beoordeeld met een voltage-ramp-protocol van +60 tot -120 mV (Figuur 7E). In een gezonde cel keert IK1 om nabij -80 mV, wat consistent is met het RMP dat in current-clamp-modus is gemeten. Bij potentialen die positiever zijn dan het omkeerpotentiaal vertoont IK1 een karakteristieke uitwaartse bult, met een piek van enkele pA pF−1 (Figuur 7F). Een omkeerpotentiaal die ver afligt van -80 mV of een grote constante lekstroom duidt op een slechte seal of een beschadigd membraan.
Samengevat wordt een preparaat als succesvol beschouwd wanneer het langgerekte, staafvormige cellen oplevert met gladde, intacte membranen die gigaohm-seals vormen en de hierboven beschreven referentie-actiepotentiaalvorm en stroomkenmerken vertonen. Het verkrijgen van meerdere van dergelijke cellen uit één enkel hart bevestigt dat de enzymatische dissociatie zowel de membraanintegriteit als het volledige complement van cardiale ionkanalen heeft behouden die nodig zijn voor vervolgonderzoek naar de elektrofysiologie.
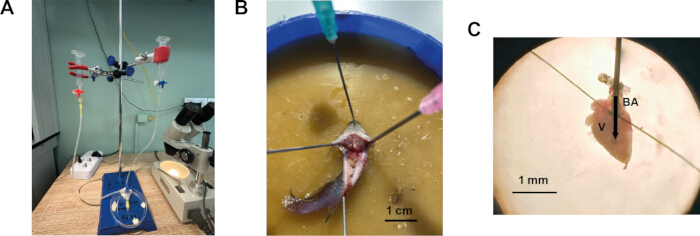
Figuur 1: Procedure voor de isolatie van ventriculaire cardiomyocyten uit het hart van N. furzeri. (A) Cardiomyocyten-isolatiesysteem aangepast voor kleine vissen. (B) Vis vastgezet in een dissectieschaal, ventraalzijde naar boven, waarbij het peritoneum transversaal en longitudinaal is ingesneden. (C) N. furzeri hart gecannuleerd en vastgezet voor perfusie. BA – bulbus arteriosus, V – ventrikel. De pijl geeft de richting van de vloeistofstroom naar de ventrikel aan. Klik hier om een grotere versie van deze figuur te bekijken.
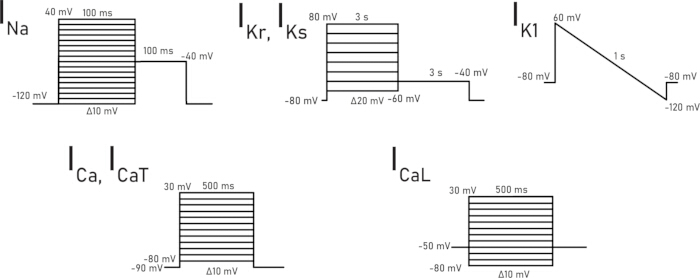
Figuur 2: Voltage-clamp-protocollen gebruikt voor het registreren van elke specifieke ionenstroom. Klik hier om een grotere versie van deze figuur te bekijken.
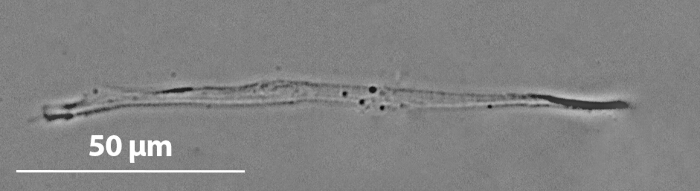
Figuur 3: Representatieve microfoto van een ventriculaire cardiomyocyt van een jonge N. furzeri. Klik hier om een grotere versie van deze figuur te bekijken.
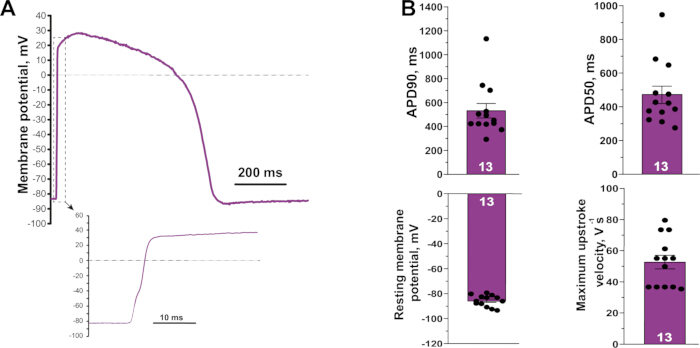
Figuur 4: Representatief actiepotentiaal geregistreerd van een ventriculaire cardiomyocyt van een jonge N. furzeri. (A) Golfvorm van het actiepotentiaal. De inzet toont de snelle depolarisatiefase op een uitgebreide tijdschaal. (B) Kenmerken van het actiepotentiaal gemeten bij geïsoleerde jonge myocyten (rustend membraanpotentiaal, APD50, APD90 en maximale depolarisatiesnelheid). (N = 7, n = 13). Waarden zijn weergegeven als gemiddelde ± S.E.M. Klik hier om een grotere versie van deze figuur te bekijken.
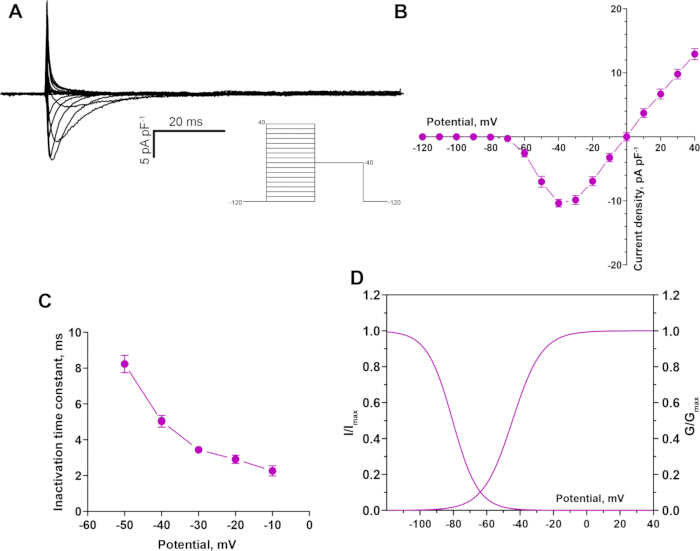
Figuur 5: Snelle natriumstroom (INa) geregistreerd van een jonge N. furzeri ventriculaire cardiomyocyt. (A) Representatieve registratie van de INa. (B) Stroom-spanningsrelatie voor INa, met activering nabij -60 mV en een piek nabij -30 mV. (C) Spanningsafhankelijkheid van de inactivatie-tijdconstante. (D) Steady-state activatie- en inactivatiecurven. (N = 5, n = 11). Waarden zijn weergegeven als gemiddelde ± S.E.M. Klik hier om een grotere versie van deze figuur te bekijken.
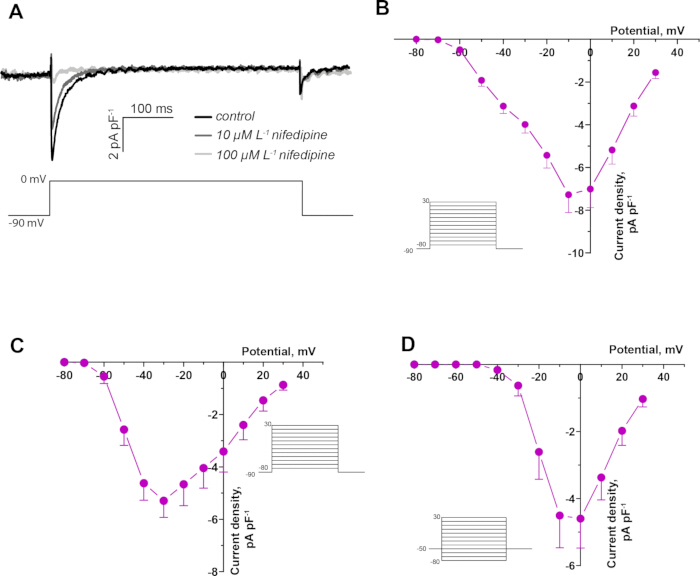
Figuur 6: Calciumstromen in een jonge N. furzeri ventriculaire cardiomyocyt. (A) Representatieve opname van de netto calciumstroom in controlecondities en in aanwezigheid van 10 µM en 100 µM nifedipine in een jonge N. furzeri ventriculaire cardiomyocyt. (B) Stroom-spanningsrelatie voor de netto calciumstroom, met activatie nabij -60 mV en een piek nabij -10 mV (N = 5, n = 11). (C) Stroom-spanningsrelatie voor de T-type component (ICaT) (N = 3, n = 6). (D) Stroom-spanningsrelatie voor de L-type component (ICaL) (N = 5, n = 7). Waarden zijn weergegeven als gemiddelde ± S.E.M. Klik hier om een grotere versie van deze figuur te bekijken.
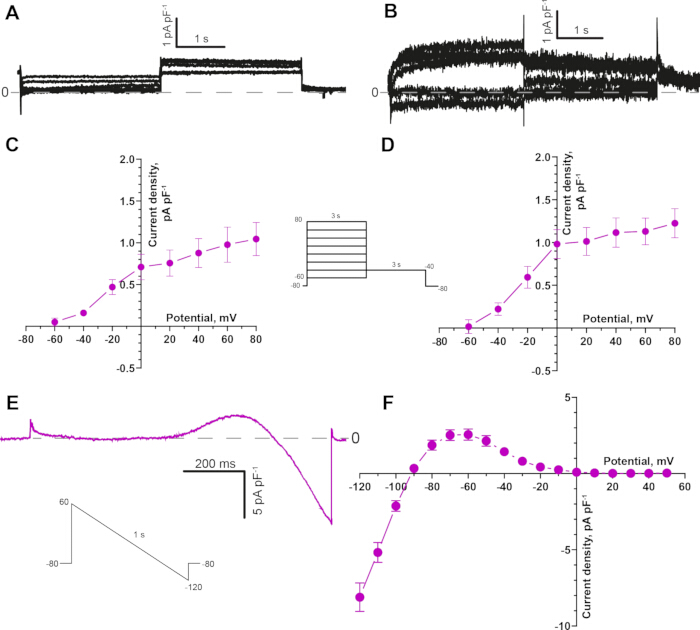
Figuur 7: Kaliumstromen in ventriculaire cardiomyocyten van jonge N. furzeri. (A) Representatieve registratie van de langzame vertraagde rectifierstroom (IKs), geïsoleerd in aanwezigheid van E4031 (1 µM) om IKr te blokkeren. (B) Representatieve registratie van de snelle vertraagde rectifierstroom (IKr), geïsoleerd in aanwezigheid van chromanol 293B (20 µM) om IKs te blokkeren. (C) Stroom-spanningsrelatie voor de IKs-stroom (N = 5, n = 9). (D) Stroom-spanningsrelatie voor de IKr-stroom (N = 5, n = 10). (E) Representatieve IK1 geregistreerd met een dalend spanningsramp-protocol van +60 mV tot -120 mV. (F) Stroom-spanningsrelatie voor IK1, met een omkeerpunt nabij -80 mV (N = 5, n = 18). Waarden zijn weergegeven als gemiddelde ± S.E.M. Klik hier om een grotere versie van deze figuur te bekijken.
| Naam oplossing | Reagens en concentratie (mM) |
| Extracellulaire oplossing voor actiepotentiaal en kaliumstromen | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl2, 10 glucose, 10 HEPES; pH 7.4 ingesteld met NaOH |
| Intracellulaire oplossing voor actiepotentiaal en kaliumstromen | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP en 10 HEPES; pH 7.2 ingesteld met KOH |
| Extracellulaire oplossing voor natriumstroom | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose en 10 HEPES; pH 7.2 ingesteld met CsOH |
| Intracellulaire oplossing voor natriumstroom | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP en 15 TEA; pH 7.2 ingesteld met CsOH |
| Extracellulaire oplossing voor calciumstroom | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose en 10 HEPES; pH ingesteld op 7.2 met NaOH |
| Intracellulaire oplossing voor calciumstroom | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP en 15 TEA; pH 7.2 ingesteld met CsOH. |
Tabel 1: Samenstelling van de extracellulaire en intracellulaire oplossingen voor patch-clamp registratie van actiepotentialen en ionstromen.
| Stroommeting | Concentratie van blokkeermiddel (μM) | |
| 1. | Actiepotentiaal | Geen blokkers vereist |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxine |
| 7. | ICaL | 1 Tetrodotoxine |
Tabel 2: Farmacologische blokkers toegevoegd aan de extracellulaire oplossingen voor selectieve registratie van een gegeven ionenstroom.
Discussie
Een succesvolle isolatie van levensvatige ventriculaire cardiomyocyten van N. furzeri vormt een methodologische vooruitgang die directe elektrofysiologische karakterisering van leeftijdsgerelateerde cardiale remodellering op cellulair niveau mogelijk maakt. Deze resolutie is essentieel voor het identificeren van de specifieke ionische mechanismen die ten grondslag liggen aan leeftijdsgerelateerde cardiale dysfunctie, welke niet uitsluitend met organen- of gehele-hartpreparaten kunnen worden onderscheiden. Het bestuderen van native cardiomyocyten biedt direct inzicht in hoe veroudering fundamentele elektrofysiologische eigenschappen verandert, waaronder ionstromen en actiepotentiaal-kenmerken.
Verschillende stappen in het huidige protocol zijn cruciaal voor het verkrijgen van hoogwaardige, geschikte cardiomyocyten voor patch-clamp uit N. furzeri. Ten eerste varieert de enzymactiviteit per batch, waardoor de concentraties collagenase en trypsine voor elke preparatie moeten worden aangepast. Overmatige digestie veroorzaakt membraanschade en verlies van ionkanaalfunctie, terwijl onvoldoende digestie resulteert in weinig cellen en een stabiel contact tussen pipet en membraan verhindert. De geïsoleerde cellen behouden een langwerpige, staafvormige morfologie met een glad, intact sarcolemma, wat wijst op het behoud van de cellulaire integriteit tijdens de isolatie; in sommige cellen kunnen onder de lichtmicroscoop ook vage sarcomere striaties worden waargenomen. Dit behoud is essentieel voor betrouwbare elektrofysiologische gegevens, aangezien beschadigde cellen vaak een gewijzigde ionkanaalfunctie en aangetaste membraaneigenschappen vertonen. Ten tweede vormt de geringe grootte van het hart van N. furzeri een technische uitdaging die een zorgvuldige optimalisatie van de enzymatische isolatie en een nauwkeurige handmatige dissectie vereist, waarbij de cellulaire opbrengst per hart lager is dan bij zoogdierpreparaten. Bovendien zijn inconsistente perfusie of lekkage uit het gecannuleerde hart enkele van de meest voorkomende uitdagingen tijdens de procedure. Oefen de cannulatie op meerdere harten om een consistente hoek en diepte van de benadering te ontwikkelen. Zorg ervoor dat de naaldpunt vrij is van luchtbellen en dat de bulbus stevig is vastgebonden zonder door het weefsel heen te snijden. Controleer daarnaast, voordat u overgaat tot de registratie, of de cellen staafvormig zijn met een glad, intact membraan (een vage striatie kan in sommige cellen zichtbaar zijn). Afgeronde of granulaire cellen moeten worden weggegooid. Controleer of alle oplossingen vers zijn bereid en correct pH-gecorrigeerd. Zorg ervoor dat de pipetweerstand binnen het aanbevolen bereik ligt (2,0–3,0 MΩ). Controleer tijdens de registratie de hierboven beschreven versterkerparameters; de toegangsweerstand na compensatie mag 10–12 MΩ niet overschrijden; de rustmembraanpotentiaal is minder negatief dan −70 mV in de current-clamp modus en de cel vormt een stabiele gigaseal.
Niettemin levert het protocol betrouwbaar hoogwaardige cellen op die geschikt zijn voor patch-clampmetingen en potentieel andere toepassingen, waardoor N. furzeri wordt gevestigd als een praktisch model voor cellulaire cardiale veroudering. Aangezien N. furzeri duidelijke voordelen biedt ten opzichte van traditionele zoogdiermodellen voor studies naar cardiale veroudering. Als de kortlevende gewervelde die in gevangenschap kan worden gefokt, maakt het longitudinale studies naar cardiale veroudering mogelijk binnen praktische tijdskaders, in vergelijking met muismodellen die 18–24 maanden nodig hebben om vergelijkbare biologische leeftijden te bereiken15. Ondanks de korte levensduur vertoont het belangrijke kenmerken van cardiale veroudering bij gewervelden, waaronder elektrofysiologische remodellering, behouden actiepotentiaalduur met een verminderde stijgsnelheid en downregulatie van belangrijke ionenstromen6.
Vergelijking met bestaande methoden voor de isolatie van cardiomyocyten.
Enzymatische isolatie van levensvatbare ventriculaire cardiomyocyten is een goed gevestelde vereiste voor single-cell elektrofysiologie bij een breed scala aan soorten. Bij zoogdieren berust de gouden standaardbenadering op retrograde aortaperfusie van het intacte hart met een calciumvrije buffer, gevolgd door een enzymhoudende oplossing, doorgaans collagenase en proteasen, onder gecontroleerde druk en temperatuur. Deze strategie zorgt voor een uniforme toediening van enzymen via de coronaire vaten, een efficiënte uitspoeling van bloed en een relatief zachte dissociatie van het myocardium, wat resulteert in grote aantallen staafvormige myocyten die geschikt zijn voor patch-clampmetingen met een hoge resolutie16,17.
Bij teleosteenvissen vereisen de anatomische organisatie van het hart en de afwezigheid van een coronair arterieel systeem dat vergelijkbaar is met dat van zoogdieren echter belangrijke aanpassingen. Bij de zebravis, een van de meest gebruikte kleine vismodellen in cardiovasculair onderzoek, is de succesvolle isolatie van ventriculaire cardiomyocyten gebaseerd op de digestie van het intacte hart in een enzymatische oplossing gedurende een relatief langere periode8,9. In deze protocollen wordt het uitgesneden hart direct overgebracht naar een druppel of een klein volume enzymoplossing, waar het wordt geïncubeerd bij kamertemperatuur of bij een soortspecifieke temperatuur, gevolgd door mechanische trituratie om individuele cellen vrij te maken. Deze aanpak is effectief gebleken voor het verkrijgen van levensvatbare, gestreepte cardiomyocyten die geschikt zijn voor registraties van belangrijke ionenstromen11.
Ondanks het nut heeft de batch-digestiestrategie verschillende beperkingen wanneer deze wordt toegepast op zeer kleine of bijzonder kwetsbare harten. Ten eerste is de enzymatische blootstelling minder beheersbaar: de buitenste lagen van de ventrikel worden gedurende een langere tijd blootgesteld aan een hogere effectieve enzymconcentratie dan de binnenste lagen, wat kan leiden tot heterogene digestie en een mengsel van onder- en over-gedigesteerde cellen. Ten tweede verhoogt langdurige onderdompeling in de enzymoplossing het risico op over-digestie, vooral wanneer enzymbatches variëren in activiteit of wanneer het hart uitzonderlijk klein is. Ten derde is de uitspoeling van bloed primair afhankelijk van passieve diffusie en voorzichtig handmatig spoelen, wat onvoldoende kan zijn om de nauwe luminale ruimtes van een kleine teleost-ventrikel volledig te reinigen.
We hebben de algemene principes van calciumvrije behandeling, enzymatische digestie en zachte trituratie behouden. De studie heeft echter de toediening van de oplossingen gewijzigd door de bulbus arteriosus te canuleren en het ventriculaire lumen direct te perfunderen. Deze aanpak stelt de onderzoeker in staat om bloed uit de ventriculaire ruimten te spoelen vóór de digestie, tussen oplossingen te wisselen zonder het hart te verplaatsen en de enzymatische behandeling te beëindigen zodra de ventriculaire wand begint te versoepelen. Deze aanpassingen zijn bijzonder belangrijk voor het kleine en delicate hart van N. furzeri, waarbij langdurige onderdompeling in de enzymoplossing kan leiden tot overmatige digestie en een verminderde celkwaliteit.
Toekomstige toepassingen
De huidige isolatiemethode opent verschillende wegen voor toekomstig onderzoek. Ten eerste maakt het een systematische karakterisering mogelijk van ouderdomsafhankelijke veranderingen in de morfologie van actiepotentialen en de dichtheid, kinetiek en spanningsafhankelijkheid van ionstromen in N. furzeri-cardiomyocyten, wat aanvullend is aan recente moleculaire en histologische beschrijvingen van hartveroudering bij deze soort2,3,4,5. Ten tweede kan het protocol worden gecombineerd met farmacologische instrumenten om te testen hoe interventies die de levensduur of de gezonde levensspanne moduleren, de cardiale elektrofysiologie op single-celniveau beïnvloeden. Ten derde kunnen geïsoleerde N. furzeri-cardiomyocyten worden gebruikt voor toepassingen buiten patch-clamp-registraties, waaronder moleculaire analyses (qPCR, RNA-seq, proteomics) van ouderdomsgerelateerde veranderingen in ionkanaalexpressie en post-translationele modificaties, immunocytochemie en hoge-resolutie beeldvorming van de sarcomere organisatie. Ten slotte kan het hier beschreven methodologische kader worden aangepast aan andere kleine teleost-modellen met een vergelijkbare hartgrootte en anatomie, waardoor de bruikbaarheid van N. furzeri als translationeel model voor onderzoek naar hartveroudering wordt uitgebreid.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende financiële belangen hebben.
Dankbetuigingen
Dit werk werd ondersteund door het Russian Science Foundation (Grant No. 22-14-00075). De auteurs zijn Andrei Nikiforov dankbaar voor zijn hulp bij het fokken en onderhouden van de Nothobranchius furzeri-populatie die in deze studie is gebruikt.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1 mL insulinespuit | Med Aim | 939863 | |
| spuiten van 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| Petrischaal van 100 mm | SARSTEDT | 83.3902 | |
| 100 μL micropipet | Thermo Scientific | 4640040 | |
| 35 mm weefkweekschaal | SPL LIFE SCIENCES | 11035 | |
| drieweg-infusiekraan | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL buisje | Eppendorf | EP0030124537-500EA | |
| 5-200 μL tip | Deltalab | 200009 | |
| Versterker | Moleculaire apparaten | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Borosilicaatglascapillairen | Sutter Instrument | B150-110-10 | |
| Runderserumalbumine | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Collagenase type 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Dispenseernaald (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glucose | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Omgekeerde microscoop | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Micromanipulator | RWD | MM-500 | |
| Microsurgicale oftalmologische pincetten | CILITA | F-111T | |
| Microschirurgische oogheelkundige scharen | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifedipine | Sigma-Aldrich | N7634 | |
| Perfusionsysteem | Biotechnologieën | Bio_4_p | |
| Pipettrekker | Narishige Group | PC-10 | |
| Siliconenslangen (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Statief | NV-lab | 00000034085 | |
| Stereomicroscoop | Labcomplex LCC | 10557 | |
| Taurine | Acros Organics | 166545000 | |
| Tetraethylammoniumchloride (TEA) | Merck | 822148 | |
| Tetrodotoxine | Tocris Bioscience | 1078 | |
| Trypsine | Sigma-Aldrich | T0303 | |
| WinSCP-software | University of Strathclyde | - | V5.7.5 |
Referenties
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar