Neureksyny i neuroliginy są białkami adhezyjnymi błony neuronów, które pełnią kluczowe role w różnicowaniu i transmisji synaptycznej. Mutanty C. elegans z niedoborem neuroliginy wykazują defekt w wykrywaniu siły osmotycznej, jednak gdy posiadają one również mutację w genie kodującym neureksynę, odzyskują fenotyp typu dzikiego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Unikanie osmotyczne u Caenorhabditis elegans: funkcja synaptyczna dwóch genów, ortologów ludzkich genów NRXN1 i NLGN1, jako kandydatów w badaniach nad autyzmem
W tym artykule
Podsumowanie
Streszczenie
Neureksyny i neuroliginy są cząsteczkami adhezyjnymi obecnymi w synapsach pobudzających i hamujących i są niezbędne do prawidłowego funkcjonowania sieci neuronalnych1. Białka te znajdują się w błonach presynaptycznych i postsynaptycznych 2. Badania na myszach wskazują, że neureksyny i neuroliginy odgrywają kluczową rolę w przekazywaniu sygnałów synaptycznych 1. Niedawne doniesienia wykazały, że zaburzenia połączeń neuronalnych podczas rozwoju ludzkiego układu nerwowego mogą stanowić podstawę etiologii wielu przypadków zaburzeń ze spektrum autyzmu 3.
Caenorhabditis elegans może być wykorzystany jako narzędzie eksperymentalne ułatwiające badanie funkcjonowania komponentów synaptycznych ze względu na prostotę prowadzenia doświadczeń laboratoryjnych oraz fakt, że jego układ nerwowy i okablowanie synaptyczne zostały w pełni scharakteryzowane. W C. elegans nrx-1 i nlg-1 geny są ortologiczne do ludzkich NRXN1 i NLGN1 geny kodujące odpowiednio białka alfa-neureksynę-1 i neuroliginę-1. U ludzi i nicieni organizacja neureksyn i neuroligin jest podobna pod względem domen funkcjonalnych.
Głowa nicienia zawiera amfid, narząd zmysłowy nicienia, który pośredniczy w reakcjach na różne bodźce, w tym na siłę osmotyczną. Amfid składa się z 12 sensorycznych neuronów dwubiegunowych z rzęskowatymi dendrytami i jednego presynaptycznego aksonu terminalnego 4. Dwa z tych neuronów, nazwane ASHR i ASHL, są szczególnie istotne dla funkcji sensorycznej osmotycznej, wykrywając rozpuszczalne w wodzie repelenty o wysokiej sile osmotycznej 5. Dendryty tych dwóch neuronów sięgają koniuszka otworu gębowego, a aksony rozciągają się do pierścienia nerwowego, gdzie tworzą połączenia synaptyczne z innymi neuronami determinującymi odpowiedź behawioralną 6.
Aby ocenić rolę neureksyn i neuroligin w unikaniu wysokiego ciśnienia osmotycznego, przedstawiamy zróżnicowaną odpowiedź mutantów C. elegans z defektami w nrx-1 i nlg-1 genów, stosując metodę opartą na pierścieniu z 4M fruktozą 7Fenotypy behawioralne potwierdzono przy użyciu specyficznych klonów RNAi. 8W C. elegansdsRNA niezbędne do wywołania RNAi można podać drogą pokarmową 9Podanie dsRNA wraz z pożywieniem indukuje interferencję RNAi w obrębie interesującego nas genu, co umożliwia identyfikację komponentów genetycznych oraz ścieżek sieciowych.
Protokół
1: Test unikania osmotycznego.
- Około 16-24 godziny przed analizą należy przenieść zwierzęta w stadium larwalnym L4 każdego genotypu na nową płytkę NGM zawierającą E. coli OP50 i inkubować je w temperaturze 20 °C. Następnego dnia eksperyment należy rozpocząć z młodymi osobnikami dorosłymi.
- Zaleca się przeprowadzenie analizy metodą „ślepej próby”. Płytki z każdym badanym szczepem powinny zostać ponownie oznakowane przez drugiego eksperymentatora; analiza powinna być przeprowadzona przy użyciu tych ponownie oznakowanych płytek, a kod zostanie ujawniony po zakończeniu eksperymentu.
- W dniu analizy należy przygotować 4M roztwór zapasowy fruktozy z 1% roztworem czerwieni kongowej i całkowicie rozpuścić go w temperaturze pokojowej. Zalecamy sprawdzenie roztworu przed każdą analizą, ponieważ barwnik z czasem może wytrącić się z roztworu.
- Pierścień (o średnicy 1 cm) na płytce NGM wyznacza się w centrum stałego podłoża, nanosząc 15 μl czerwonego 4M roztworu fruktozy. Należy odczekać, aż roztwór fruktozy wniknie w agar, co zazwyczaj zajmuje od 2 do 5 minut.
- Należy umieścić pojedyncze młode osobniki dorosłe każdego szczepu wewnątrz pierścienia i obserwować je przez kolejne 10 minut, aby określić reakcję na barierę osmotyczną. Zwierzęta, które unikają pierścienia więcej niż sześć razy z rzędu, klasyfikuje się jako normalne; te, które opuszczają pierścień w mniej niż sześciu próbach, są uznawane za wadliwe pod kątem wrażliwości osmotycznej.
Uwaga: W każdej analizie należy użyć szczepu kontrolnego. Młode osobniki dorosłe N2 służą jako kontrole pozytywne, ponieważ zdecydowanie unikają bariery pierścienia. Nie należy używać zwierząt, które były wcześniej głodzone, przeszły przez stadium larwy Dauer lub pochodzą z płytek, które są zbyt suche. Na początku należy ocenić zwierzęta kontrolne w dwóch powtórzeniach, aby potwierdzić poprawność płytek analitycznych i roztworu.
2: Generowanie nicieni z wyciszonymi genami za pomocą karmienia RNAi.
- Płytki RNAi: Płytki do karmienia RNAi NGM zawierają na litr: 17 g agaru, 2,5 g peptonu, 3,0 g NaCl, 1 ml cholesterolu (5 mg ml-1); napełnić kolbę wodą H2O do objętości 1 litra i autoklawować. Po ostygnięciu agaru do około 65 °C dodać 25 ml 1 M KPO4, pH 6,0, 1 ml 1 M CaCl2, 1 ml 1 M MgSO4, 0,5 ml karbenicyliny (50 mg ml-1) oraz 1 ml 1 M IPTG. W przypadku rozpoczęcia pracy z gotowym stałym podłożem NGM, należy stopić podłoże w mikrofalówce, a następnie pozostawić ciekłe NGM na blacie do ostygnięcia i dodać KPO4, pH 6,0, CaCl2, MgSO4, karbenicylynę oraz IPTG zgodnie z powyższymi instrukcjami.
Wlać 10 ml podłoża NGM do każdej 60 mm szalki Petriego. Pozostawić do ostygnięcia i odwrócić płytki, przechowując je w temperaturze pokojowej (RT) przez noc przed użyciem. Płytki można przechowywać w plastikowym worku w temperaturze 4 °C przez około 4-5 dni. - Przygotowanie i indukcja bakterii: Wyizolować kolonie szczepu E. coli HT15 (DE3), transformowanego wektorem L40 zawierającym fragment odpowiadający genowi docelowemu, na płytki z agarem Luria-Bertani (LB) (17 g agaru, 10 g tryptonu, 5 g ekstraktu z drożdży i 10 g NaCl na litr) zawierające ampicylinę (50 μg/ml) i tetracyklinę (15 μg/ml).
Nabrać pojedynczą kolonię bakterii i zaszczepić do LB z 50 μg/ml ampicyliny, a następnie hodować przez 6-8 h z wytrząsaniem w 37 °C; nanieść kroplę tej hodowli na przygotowane płytki NGM i dokładnie osuszyć płytki przed inkubacją przez noc (12-24 h) w temperaturze pokojowej, aby umożliwić wzrost bakterii i rozpoczęcie indukcji. Inkubację prowadzono w ciemności, ponieważ tetracyklina jest światłoczuła, co może wpływać na zmienność wyników testów RNAi między płytkami.
W eksperymentach z karmieniem RNAi konieczne jest zastosowanie kontroli pozytywnej i negatywnej. Kontrolą pozytywną są komórki E. coli HT15 transformowane wektorem L40 zawierającym sekwencję genu unc-2. Wyciszenie genu unc-2 powoduje wystąpienie „fenotypu drgawek”. Kontrolą negatywną są komórki E. coli HT15 transformowane pustym wektorem L440. - Obsługa i ocena nicieni: Pierwszego dnia przenieść nicienie w stadium L4 z płytki NGM zaszczepionej OP50 na płytki NGM bez bakterii i inkubować w 20 °C przez 12 godzin (post).
Następnego dnia przenieść młode, głodzone dorosłe hermafrodyty na płytkę zaszczepioną bakteriami wykazującymi RNAi specyficznego genu docelowego. Pozostawić na 40-48 godzin w 20 °C w celu uzyskania potomstwa F1.
Następnie przenieść kilka dorosłych nicieni F1 na inną płytkę zaszczepioną tymi samymi bakteriami. Po 24-48 godzinach wyselekcjonować i wyizolować z potomstwa F2 młode osobniki dorosłe (całkowicie wykształcona, wystająca vulva z kilkoma jajami) i ocenić fenotypy.
Uwaga: indukcja RNAi w neuronach posiada pewne ograniczenia ze względu na właściwości refrakcyjne układu nerwowego C. elegans na RNAi. Aby pokonać problemy związane z tą niewydajnością w neuronach, zaleca się stosowanie szczepu rrf-3, który wykazuje nadwrażliwość na efekty RNAi w neuronach 10. W naszych eksperymentach nie stwierdzono różnic między szczepami Bristol N2 i rrf-3 dla analizowanych genów i fenotypów.
3: Wykorzystane szczepy.
Szczepy C. elegans wykorzystane w tej pracy przedstawiono w Tabeli 1. Szczepy mutantów poddano krzyżowaniu zwrotnemu z typem dzikim N2-typu co najmniej cztery razy, aby usunąć niepożądane przypadkowe mutacje, które mogły powstać podczas protokołu mutagenezy.
OP50 E. coli szczep został dostarczony przez Caenorhabditis Centrum Genetyki, University of Minnesota, USA. E. coli Szczep HT15 (DE3) z plazmidem pL40 zawierającym fragmenty genów nrx-1 (JA:C29A12.5) oraz nlg-1 (JA:C40C9.5) został udostępniony przez dr. Petera Askjaera z Centro Andaluz de Biología del Desarrollo (CABD), CSIC Universidad Pablo Olavide w Sewilli w Hiszpanii.
4: Reprezentatywne wyniki.
Przykładowe wyniki przedstawiono na rysunkach 1 i 2. Badaniem objęto dziesięć zwierząt każdego szczepu, a eksperyment powtórzono co najmniej trzykrotnie.
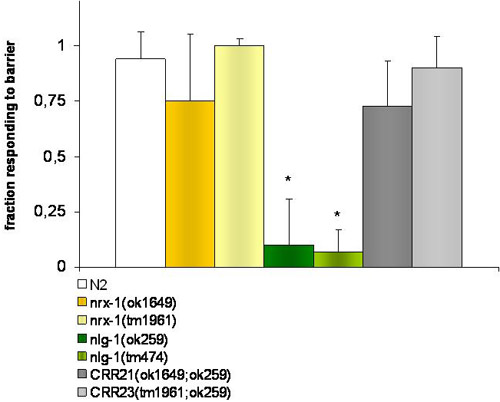
Rycina 1. Eksperymenty dotyczące zachowania unikania osmotycznego.
Szczepy kontrolne i nrx-1 (ok1649 i tm1961)V robaki z mutacją deficytową reagują, cofając się, po napotkaniu bariery osmotycznej (4M fruktozy). nlg-1 (Należy pamiętać, że w przypadku braku tekstu źródowego do przetłumaczenia, nie mogę wygenerować tłumaczenia. Proszę o dostarczenie treści naukowej lub edukacyjnej z JoVE, którą należy przełożyć na język polski. i tm474) X mutanty nie wykrywają tej bariery. Podwójne mutanty z niedoborem nlg-1 i nrx-1, szczepy CRR21 (Podstawy techniki Western blot: oddzielanie białek w elektroforezie żelowej SDS-PAGE i detekcja przeciwciałami ; Niestety, dostarczony przez Ciebie tekst składa się jedynie z kodu „ok259”. Proszę o przesłanie pełnej treści źródłowej w języku angielskim, którą należy przetłumaczyć na język polski zgodnie z wytycznymi dla treści naukowych JoVE.)VX oraz CRR23 (tm1961; ok259)VX odzyskano fenotyp typu dzikiego. Gwiazdka (*) oznacza istotne różnice (P ≤ 0,01) w odpowiedzi każdego szczepu w stosunku do typu dzikiego Bristol N2, wykazane testem t-Studenta
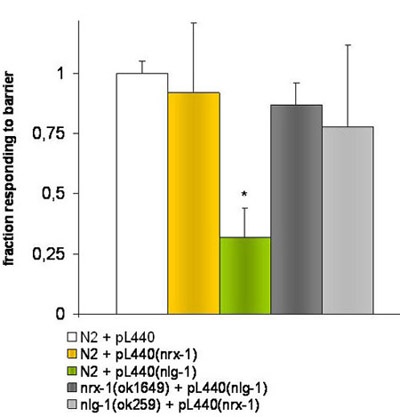
Rysunek 2. Eksperymenty z użyciem nicieni z wyciszeniem genów metodą RNAi poprzez podawanie pokarmu.
E. coli HT15 (DE3) przekształcone pustym wektorem pL40 lub wektorem zawierającym fragment odpowiadający genom docelowym nrx-1 lub nlg-1 wykorzystano do karmienia różnych szczepów nicieni. * oznacza istotne różnice (P ≤ 0,001) w teście t-Studenta w odpowiedzi szczepu N2 karmionego bakteriami niosącymi wektor pL40 z fragmentem celującym w nlg-1 gen w porównaniu z przeciągiem N2 zasilanym pustym wektorem pL40.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Neureksyny i neuroliginy pełnią kluczowe role w transmisji synaptycznej11 oraz różnicowaniu połączeń synaptycznych 12. Obie cząsteczki zostały zidentyfikowane jako geny kandydackie dla autyzmu 13,14.
W tym filmie przedstawiamy prostą metodę, która pozwala na badanie wpływu genów oddziałujących na reakcję unikania osmotycznego u C. elegans. Mutanty z niedoborem neuroliginy wykazują defekt w wykrywaniu siły osmotycznej; natomiast mutanty z niedoborem ne...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Podziękowania
Chcielibyśmy podziękować dr. Antonio Miranda-Vizuete za jego cenną pomoc. Pragniemy również wyrazić wdzięczność Salmie Boulayoune i Isabel Caballero za cenny wsparcie techniczne. Praca ta została sfinansowana z grantu Junta de Andalucıa (BIO-272). Niniejsze badania zostały przeprowadzone zgodnie z obowiązującymi przepisami prawa regulującymi eksperymenty genetyczne w Europie.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
Tabela 1. C. elegans szczepy. | |||
| Szczep | Gen | Allel | Źródło |
| Bristol N2 | - | - | aCGC |
| VC228 | nlg-1 | ok259 | CGC |
| FX00474 | nlg-1 | tm474 | bNBP-JAPAN |
| VC1416 | nrx-1 | ok1649 | CGC |
| FX1961 | nrx-1 | tm1961 | NBP-JAPAN |
| NL2099 | rrf-3 | pk1436 | CGC |
| CRR21 | nrx-1; nlg-1 | ok1649; ok259 | Niniejsza praca |
| CRR22 | nrx-1; nlg-1 | tm1961;ok259 | Niniejsza praca |
a. Caenorhabditis Centrum Genetyki, University of Minnesota, USA.
b. Narodowy Projekt Biozasobów dla Zwierząt Doświadczalnych "Nicień C. elegans"Tokyo Women’Uniwersytet Medyczny, Japonia.
Bibliografia
- Sudhof, T. C. Nature. 455 (7215), 903-903 (2008).
- Fabrichny, I. P., Leone, P., Sulzenbacher, G. Neuron. 56 (6), 979-979 (2007).
- Garber, K. Science. 317 (5835), 190-190 (2007).
- Wang, K., Zhang, H., Ma, D. Nature. 459 (7246), 528-528 (2009).
- Ward, S., Thomson, N., White, J. G. The Journal of comparative neurology. 160 (3), 313-313 (1975).
- Bargmann, C. I., Thomas, J. H., Horvitz, H. R. Cold Spring Harbor symposia on quantitative biology. 55, 529-529 (1990).
- White, J. G., Southgate, E., Thomsom, J. N., Brenner, S. Philos. Trans. R. Soc. Lond. B Biol. Sci. 314, 1-1 (1986).
- Culotti, J. G., Russell, R. L. Genetics. 90 (2), 243-243 (1978).
- Fire, A., Xu, S., Montgomery, M. K. Nature. 391 (6669), 806-806 (1998).
- Timmons, L., Fire, A. Nature. 395 (6705), 854-854 (1998).
- Simmer, F., Tijsterman, M., Parrish, S., Koushika, S. P., Nonet, M. L., Fire, A., Ahringer, J., Plasterk, R. H. Curr Biol. 12, 1317-1317 (2002).
- Missler, M., Zhang, W., Rohlmann, A. Nature. 423 (6943), 939-939 (2003).
- Varoqueaux, F., Aramuni, G., Rawson, R. L. Neuron. 51 (6), 741-741 (2006).
- Graf, E. R., Zhang, X., Jin, S. X., Scheiffele, P., Fan, J., Choih, J. Cell. 119 (7), 1013-1013 (2004).
- Scheiffele, P., Fan, J., Choih, J. Cell. 101 (6), 657-657 (2000).
- Jamain, S., Quach, H., Betancur, C. Nature genetics. 34 (1), 27-27 (2003).
- Szatmari, P., Paterson, A. D., Zwaigenbaum , L. Nature genetics. 39 (3), 319-319 (2007).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
