Lokomocja jest często badana jako wynik behawioralny w różnych modelach chorób w dziedzinach takich jak neuronauka i ortopedia. Niniejszy artykuł wideo ma na celu opisanie metody pomiaru sił reakcji podłoża oraz kinematyki u szczurów podczas swobodnej lokomocji.
Artykuł metodologiczny
Wyznaczanie kinematyki i siły reakcji podłoża: demonstracja ilościowej oceny zdolności lokomocyjnych szczurów młodych, dorosłych w średnim wieku oraz geriatrycznych
W tym artykule
Podsumowanie
Streszczenie
Zachowanie, w najszerszym ujęciu, można zdefiniować jako motoryczną manifestację procesów fizjologicznych. W związku z tym wszystkie zachowania przejawiają się poprzez układ ruchowy. W dziedzinach neuronauki i ortopedii lokomocja jest powszechnie ocenianym zachowaniem w różnych modelach chorób. Na przykład powrót funkcji lokomocyjnych po urazach układu nerwowego jest jednym z najczęściej ocenianych zachowań 1-3. Chociaż lokomocję można oceniać za pomocą różnych pomiarów punktów końcowych (np. czas potrzebny na wykonanie zadania lokomocyjnego itp.), półilościowych pomiarów kinematycznych (np. porządkowych skal ocen, takich jak skala lokomocyjna Basso Beattie i Bresnahan (BBB) itp.) oraz miar zastępczych zachowania (np. siła mięśniowa, prędkość przewodzenia nerwowego itp.), tylko kinetyka (pomiary sił) i kinematyka (pomiary segmentów ciała w przestrzeni) dostarczają szczegółowego opisu strategii, dzięki której zwierzę jest w stanie się poruszać 1. Pomiary kinematyczne i kinetyczne lokomocji gryzoni, choć nie są nowością, stały się obecnie bardziej dostępne dzięki dostępności komercyjnego sprzętu zaprojektowanego w tym celu. Co istotne, eksperymentatorzy muszą być jednak bardzo dobrze zapoznani z teorią analiz biomechanicznych oraz rozumieć zalety i ograniczenia tych form analiz przed rozpoczęciem badań, które okażą się stosunkowo pracochłonne. Celem niniejszej pracy jest opisanie metody gromadzenia danych kinematycznych oraz danych o sile reakcji podłoża przy użyciu komercyjnie dostępnego sprzętu. Opisano szczegóły konfiguracji sprzętu i aparatury, wstępne szkolenie zwierząt, kryteria włączenia i wykluczenia dopuszczalnych prób oraz metody zbierania danych. Ilustrujemy użyteczność tej techniki analizy behawioralnej, opisując kinematykę i kinetykę młodych dorosłych, średnich i geriatrycznych szczurów tej samej linii.
Protokół
1. Wymagania wstępne do biomechanicznych analiz lokomocji
Przed zakupem kosztownego sprzętu do analizy lokomocji oraz planowaniem eksperymentów, w których przeprowadzana będzie ocena kinematyczna i/lub kinetyczna lokomocji, niezbędne jest, aby badacz zapoznał się z technicznymi i praktycznymi aspektami analiz biomechanicznych, zachowań sensoromotorycznych, warunkowania instrumentalnego zwierząt oraz obsługi, przechowywania i zarządzania dużymi ilościami zdigitalizowanych danych. Chociaż wymagania te wydają się wielu osobom oczywiste, dopiero po rozpoczęciu tego typu eksperymentów stażyści uświadamiają sobie techniczne i praktyczne trudności związane z przeprowadzaniem stosunkowo szczegółowej analizy lokomocji. Autorzy zalecają, aby badacze zapisali się na kurs z podstaw biomechaniki, zaznajomili się z językiem programowania wymaganym do zarządzania danymi lub zatrudnili osobę posiadającą taką wiedzę, a co równie ważne, poświęcili znaczną ilość czasu na interakcję, obsługę i pracę ze zwierzętami laboratoryjnymi. W celu zrozumienia analizy lokomocji oraz sensoromotorycznej analizy behawioralnej w naukach o układzie nerwowym, badaczy odsyła się do kilku ważnych pozycji literaturowych (patrz 1, 4-7).
2. Aparatura do badań kinematycznych i kinetycznych
Aparat do badań kinematycznych i kinetycznych, przydatny do gromadzenia danych obustronnych, składa się z następujących komponentów (szczegóły znajdują się w „Tabeli specyficznych odczynników i sprzętu”):
- Ciche pomieszczenie o odpowiedniej wielkości (niekoniecznie wygłuszone, lecz zlokalizowane w miejscu o niskim natężeniu ruchu)
- Radio do generowania „szumu” w tle, aby ograniczyć rozpraszające hałasy docierające do zwierząt z zewnątrz pomieszczenia
- Przezroczysty, zamknięty tor z pleksiglasu o płaskiej powierzchni (180 cm długości X 20 cm szerokości X 60 cm wysokości) z kwadratowym otworem (11 cm X 11 cm) umieszczonym w centrum toru, w równej odległości od obu końców
- Kawałek pleksiglasu (10,5 cm X 10,5 cm)
- Dwustronna taśma klejąca
- Odblaskowa taśma klejąca 3M do markerów skórnych
- Dziurkacz do tworzenia markerów skórnych
- Aparat do anestezji izofluranem, niezbędny do znieczulenia zwierząt w celu ich ogolenia przed umieszczeniem markerów skórnych
- Płatki Cheerios w celu zachęcenia zwierzęcia do poruszania się wzdłuż toru
- Platforma siłomierzowa AMTI HE6X6
- Dostosowany system Vicon Motus (oprogramowanie, komputer itp.)
- 4 kamery wideo (częstotliwość próbkowania co najmniej 60 Hz) oraz statywy z odpowiednimi kablami połączeniowymi
- 4 lampy halogenowe montowane na kamerach, zapewniające optymalne oświetlenie badanego zwierzęcia oraz odblaskowych markerów skórnych
- Ramka lub objętość kalibracyjna o odpowiednim rozmiarze, niezbędna do kalibracji pozycji x, y, z w systemie Vicon Motus na rzeczywiste miary odległości
3. Trenowanie zwierząt
Przed rozpoczęciem gromadzenia danych każde zwierzę musi zostać przeszkolone do pokonywania zamkniętego toru o płaskiej powierzchni. Po otrzymaniu szczurów od odpowiedniego dostawcy zwierząt, należy poddać je aklimatyzacji w nowym miejscu przez 1 tydzień. W czasie aklimatyzacji do klatki szczura codziennie wkłada się kilka płatków Cheerios. Zwierzęta poddawane są ograniczeniu podaży pokarmu do poziomu zapotrzebowania energetycznego na utrzymanie, aby zapobiec otyłości i zapewnić motywację do wykonania zadania. Następnie przez 1 tydzień eksperymentator codziennie obchodzi się z każdym zwierzęciem przez 10-15 minut. W tym samym okresie każde zwierzę jest umieszczane w torze, w którego obu końcach znajdują się płatki Cheerios. Gdy zwierzę oswoi się z otoczeniem, zacznie jeść płatki. Kiedy zwierzę poczuje się swobodnie i zacznie jeść płatki w torze, eksperymentator musi przeprowadzić warunkowanie instrumentalne zwierzęcia, aby przebiegło ono całą długość toru w zamian za nagrodę pokarmową. Osiąga się to poprzez rzucanie ¼ płatka Cheerios na przeciwległy koniec toru względem pozycji szczura. Gdy szczur zje ten płatek, kolejny ¼ płatka Cheerios jest umieszczany na drugim końcu toru. Procedurę tę powtarza się codziennie przez 15-20 minut, aż szczur będzie konsekwentnie (>90% rzutów) poruszał się wzdłuż toru ze stałą prędkością (tj. bez zatrzymywania się, startowania, eksplorowania lub zmiany chodu), aby zjeść płatek, bez galopowania/skakania. Szczur powinien poruszać się wyłącznie kłusem. Nadmierne warunkowanie zwierząt do tego zadania może prowadzić do galopowania i skakania; chody te wskazują na prędkość przemieszczania się >90 cm/s. Chody skaczące i galopujące są z biomechanicznego punktu widzenia trudniejsze do interpretacji z wielu powodów (np. kryteria włączenia wiodącej kończyny itp.). W naszym doświadczeniu, gdy szczury zaczną konsekwentnie stosować galop lub skakanie, trudno jest, jeśli nie wręcz niemożliwe, skłonić je do poruszania się kłusem podczas lokomocji w torze. Prędkości >90 cm/s są rzadko obserwowane u zwierząt po urazie obwodowego lub ośrodkowego układu nerwowego. Czas potrzebny do pomyślnego ukończenia treningu jest zmienny w zależności od szczepu i płci szczurów. Szczepy Wistar, Lewis, Long-Evans i Sprague-Dawley są w stanie konsekwentnie pokonywać tor w ciągu 2 tygodni od rozpoczęcia treningu 8. W naszym doświadczeniu szczury Fischer (F-344) potrzebują zazwyczaj od 4 do 6 tygodni na opanowanie tego zadania 8.
4. Zaznaczanie pozycji stawów
Analiza kinematyczna kończyn przednich jest niewiarygodna ze względu na artefakt ruchu skóry wywołany umieszczeniem markerów skórnych na kończynach przednich, co jest szczególnie widoczne u gatunków o przykuczonej postawie, takich jak szczury 9. Zamiast tego, kinematykę kończyn przednich należy badać za pomocą kinematografii rentgenowskiej lub fluoroskopii 10-13. W związku z tym, w niniejszym opracowaniu opisano jedynie rozmieszczenie markerów pozycji stawów kończyn tylnych.
Przed rozpoczęciem gromadzenia danych każda szczur musi zostać znieczulona co najmniej 24 godziny wcześniej przy użyciu odpowiedniego środka znieczulającego do podania drogą wziewną (np. izofluran, 1,5-2% ustawione na precyzyjnym waporyzatorze), podawanego w tlenie przez maskę twarzową, a następnie należy zaznaczyć kluczowe anatomiczne punkty orientacyjne. Ze względu na krótki czas trwania procedury oraz fakt, że nie stosuje się długo działających środków znieczulających, nie ma konieczności używania urządzenia do ogrzewania zwierząt w celu utrzymania temperatury ciała zwierzęcia. Po znieczuleniu zwierzęcia zgala się kończyny tylne oraz grzbiet do poziomu grzebieni biodrowych. Następnie zwierzę umieszcza się w pozycji brzusznej, a jego kończyny tylne ustawia się w przybliżonej pozycji stojącej, wykorzystując sztywną piankę stabilizującą do podparcia. Skórę nad najbardziej kranialnymi częściami grzebieni biodrowych, krętarzem większym kości udowej, boczną guzą piszczelową, stawem skokowym oraz dystalnym i bocznym aspektem 5th kości śródstopia zaznacza się nietoksycznym markerem permanentnym. Zwierzę zostaje wybudzone z narkozy. W przypadku badań czasowych może być wymagane okresowe znieczulanie w celu ponownego ogolenia kończyn tylnych, co umożliwi późniejsze rozmieszczenie markerów refleksyjnych (patrz poniżej). Ponadto wymagane będzie codzienne odświeżanie wcześniej zaznaczonych punktów orientacyjnych (przy użyciu tego samego nietoksycznego markera), ponieważ szczury będą powoli usuwać oznaczenia w wyniku naturalnych zachowań pielęgnacyjnych.
5. Rejestracja danych
Wszystkie widoki kamer są sprawdzane w celu upewnienia się, że ich położenie jest odpowiednie i rejestrują one to samo pole widzenia. Każda kamera powinna być ustawiona pod kątem około 60-80 stopni względem siebie. Pole widzenia powinno obejmować płytę dynamometryczną w centrum oraz odcinek bieżni wystarczający do zarejestrowania dwóch kroków.
Objętość kalibracyjną umieszcza się w określonym obszarze toru. Z każdej z kamer rejestruje się pojedynczą klatkę obrazu objętości kalibracyjnej w obrębie toru. Wszystkie znaki kalibracyjne wzdłuż długości każdego z prętów zostają zdigitalizowane. Dopiero po osiągnięciu satysfakcjonującego poziomu błędu digitalizacji eksperymentator może przystąpić do gromadzenia danych lokomotorycznych. Ten etap kalibracji jest krytyczny przed rozpoczęciem zbierania danych. Jeśli kalibracja nie zostanie przeprowadzona dokładnie lub jeśli nie zostanie wykonana bezpośrednio przed sesją nagraniową, wszystkie uzyskane dane będą niedokładne i bezużyteczne. Co ważne, jeśli którakolwiek z kamer zostanie dotknięta lub przesunięta, należy przyjąć, że kalibracja systemu musi zostać powtórzona.
Bezpośrednio przed umieszczeniem zwierzęcia w torze należy zapisać jego masę ciała i przykleić wcześniej przygotowane stożkowe markery odblaskowe (z taśmy odblaskowej 3M, patrz tabela) do wyznaczonych wcześniej punktów na punktach topograficznych kończyn tylnych. Zapisanie masy ciała zwierzęcia pozwoli na retrospektywną normalizację sił reakcji podłoża do masy ciała, co jest istotnym aspektem w przypadku chęci przeprowadzenia porównań między grupami. Dodatkowo pomiar masy ciała ułatwia monitorowanie ogólnego stanu zdrowia zwierzęcia przez cały czas trwania eksperymentu. Umieszczenie markerów wymaga jedynie odpowiedniego obchodzenia się ze zwierzęciem i nie wymaga jego znieczulenia. Jeśli klej na taśmie odblaskowej jest niewystarczający, aby przylgnęła ona do skóry zwierzęcia, można użyć bardzo małej ilości nietoksycznego kleju (np. 3M VetBond Tissue Adhesive), aby ułatwić przyleganie markera do ciała zwierzęcia. Po umieszczeniu markerów na kończynach tylnych eksperymentator powinien wygodnie usiąść przy klawiaturze komputera i trzymać w ręku marker zdarzeń podłączony do systemu Vicon Motus. Wykorzystując plik kalibracyjny jako szablon, przed rozpoczęciem rejestracji należy przygotować kilka plików. Zazwyczaj konieczne jest zapisanie od 25 do 30 plików. Każdy plik powinien mieć unikalną nazwę. Każdy plik będzie reprezentował jedno zarejestrowane przebiegnięcie zwierzęcia. Wymagane jest 25 do 30 plików, aby zapewnić zgromadzenie wystarczającej liczby przebiegnięć spełniających kryterium włączenia dotyczące prędkości (tj. 60-90 cm/s). Po utworzeniu odpowiedniej liczby plików eksperymentator może rozpocząć zbieranie danych. Eksperymentator musi zachęcić szczura do przemieszczania się wzdłuż toru, rzucając ćwiartki płatków Cheerios na oba końce toru. Przy starannej koordynacji i wyczuciu czasu, marker zdarzeń jest aktywowany w momencie rozpoczęcia i tuż przed zakończeniem udanego przejścia szczura przez tor. Po zbadaniu surowego zapisu siły reakcji podłoża i odnotowaniu, czy płyta siłową uderzyły kończyny lewe czy prawe, plik jest zapisywany i zamykany. Należy zarejestrować taką samą liczbę uderzeń w płytę siłową kończynami lewymi i prawymi. Proces rejestrowania danych z danego przebiegnięcia jest powtarzany, aż zostanie zarejestrowana wystarczająca liczba przebiegnięć.
6. Analiza danych
Po zakończeniu zbierania danych dotyczących kinematyki i sił reakcji podłoża, każde podejście każdego zwierzęcia musi zostać ocenione pod kątem prędkości. Wykorzystując dwa stosunkowo stałe markery (np. skrzydła kości biodrowej), można ocenić wirtualny punkt znajdujący się pomiędzy markerami (konfiguracja ta jest wykonywana wcześniej podczas tworzenia szablonu pliku Vicon Motus). Przed obliczeniem prędkości tego „wirtualnego” punktu należy zdigitalizować markery kości biodrowej. Przy użyciu oprogramowania Vicon Motus obliczana jest prędkość tego wirtualnego punktu w kierunku X (poziomy kierunek ruchu). W ten sposób do końcowych analiz wykorzystuje się wyłącznie podejścia mieszczące się w określonym zakresie prędkości (ustalonym a priori). Stwierdzono, że zwierzęta poruszające się z prędkością 60-90 cm/s stosują spójny chód kłusem. Wymagane jest minimum 10 podejść (5 podejść, w których lewa kończyna styka się z platformą sił, oraz 5 podejść, w których prawa kończyna styka się z platformą sił). Po zidentyfikowaniu dopuszczalnych podejść dla każdego zwierzęcia należy zakończyć digitalizację pozostałych markerów skórnych.
Aby skompensować artefakty wynikające z ruchu skóry nad kolanem, pozycję kolana oblicza się metodą triangulacji (przecięcie dwóch okręgów w kinetyce 2D lub przecięcie dwóch sfer w kinetyce 3D), zgodnie z wcześniejszymi opisami. Można teraz wyznaczyć kąty, prędkości i przyspieszenia w stawach biodrowych, kolanowych i skokowych. Można również ocenić czasy fazy podparcia i wymachu, choć ich dokładność jest ograniczona przez częstotliwość próbkowania stosowanych kamer. Te oraz inne obliczenia można wykonać bezpośrednio (tj. bez eksportu) przy użyciu oprogramowania Vicon Motus KineCalc lub wyeksportować dane w formacie ASCII i przeanalizować je za pomocą dostosowanych procedur w programach takich jak MatLab.
Dane dotyczące siły reakcji podłoża są mierzone i wzmacniane przez platformę dynamometryczną AMTI, a następnie gromadzone z częstotliwością 1200 Hz za pomocą systemu Vicon Motus. W związku z tym, po zebraniu danych o sile reakcji podłoża, przy użyciu oprogramowania Vicon Motus do danych stosowany jest odpowiedni filtr cyfrowy. Ponieważ badacz określił już prędkość poruszania się i zidentyfikował poprawne próby po digitalizacji odpowiednich markerów skórnych, dane o sile reakcji podłoża, zebrane jednocześnie z danymi kinematycznymi, mogą być analizowane bezpośrednio w module Vicon Motus KineCalc lub pośrednio przy użyciu innego, dostosowanego oprogramowania. Można obliczyć szereg zmiennych dla sił w każdym z trzech kierunków ortogonalnych. Zmienne te obejmują m.in. siłę szczytową oraz pole pod krzywą (tj. impuls). Co ważne, badacz musi oddzielić dane dla kończyn prawej i lewej dla każdej próby każdego zwierzęcia. Dane pozyskane z kończyn prawych lub lewych są uśredniane dla każdego zwierzęcia i traktowane jako dane reprezentatywne dla danego osobnika. Następnie dane są analizowane z wykorzystaniem odpowiednich procedur statystycznych.
7. Reprezentatywne wyniki
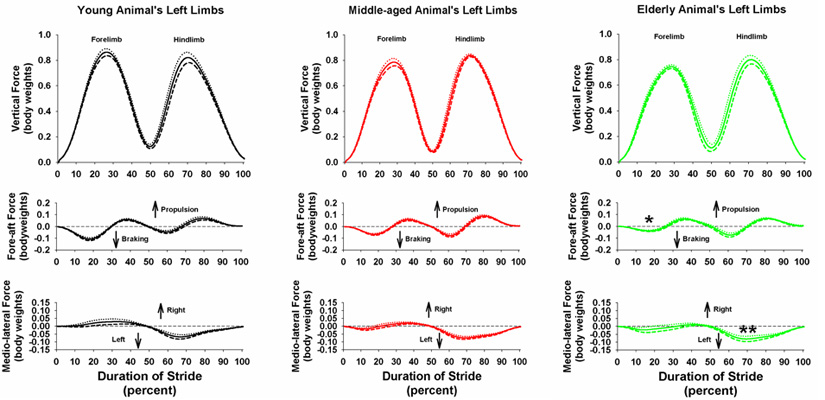
Aby przedstawić użyteczność tej formy analizy lokomocji, wyznaczono kinematykę oraz siły reakcji podłoża dla młodych, dorosłych i geriatrycznych samic szczurów Wistar. Na podstawie tej analizy stwierdzono różnice związane z wiekiem u samic szczurów Wistar. W szczególności analiza siły reakcji podłoża wykazuje, że szczury geriatryczne mają ograniczoną zdolność hamowania kończynami przednimi i wykazują tendencję do częstszego wykorzystywania kończyn tylnych do stabilizacji bocznej w porównaniu z pozostałymi grupami zwierząt (Rycina 1). Analiza kinematyczna nie ujawniła istotnych statystycznie różnic między poszczególnymi grupami, choć wykazała, że dane kinematyczne można bez problemu rejestrować u szczurów w niemal każdym wieku (Rycina 2).

Rycina 1. Zapis siły reakcji podłoża pobrany z lewych kończyn młodych (4 miesiące; n=7), w średnim wieku (13-14 miesięcy; n=7) i geriatrycznych (24 miesiące; n=5) samic szczurów Wistar. Wyniki dla prawych kończyn były podobne. Wyraźnie widać, że szczury geriatryczne rzadziej wykorzystują kończyny przednie do hamowania (* = p<0.05) w porównaniu do szczurów młodych i w średnim wieku, a szczury geriatryczne mają tendencję do częstszego wykorzystywania kończyn tylnych do stabilizacji bocznej w porównaniu do szczurów młodych (**). Linie ciągłe reprezentują średnią, linie kropkowane reprezentują średnią + SE; linie przerywane reprezentują średnią - SE.Prosimy kliknąć tutaj, aby zobaczyć powiększony rysunek.

Rycina 2. Kinematyczne modele szkieletowe (stick figures) lewej kończyny szczurów młodych, w średnim wieku i geriatrycznych. Modele szkieletowe reprezentują średni ruch lewej kończyny dla każdej z grup. Nie stwierdzono istotnych różnic między grupami zwierząt w zakresie kąta w stawie podczas cyklu kroku.Kliknij tutaj, aby zobaczyć powiększoną rycinę.

Dyskusja
Niniejsza praca przedstawia metodologię oceny lokomocji z wykorzystaniem ciągłej kinematyki ilościowej oraz wyznaczania siły reakcji podłoża. Osoby zainteresowane wdrożeniem tej metodologii powinny posiadać solidną wiedzę z zakresu biomechaniki lokomocji, sensoromotoryki zwierząt oraz zarządzania i przetwarzania danych. Chociaż wyznaczanie parametrów kinematycznych i siły reakcji podłoża wymaga więcej czasu i specjalistycznej wiedzy w porównaniu z niektórymi innymi formami analizy lokomocji (np. pomiarami punktowymi, porządkowymi skalami ocen), uzyskane dane są czułe, obiektywne i ilościowe dla różnych ortopedycznych14-22 oraz neurologicznych1-3, 23-32 modeli chorób u wielu gatunków.
Przedstawiliśmy dane opisujące różnice w lokomocji u szczurów tej samej linii w różnym wieku – informacje, których nie można by uzyskać za pomocą prostszych i mniej czułych pomiarów. Ponadto analiza kinematyczna i kinetyczna lokomocji była wykorzystywana do opisu zaburzeń ruchowych w wielu schorzeniach układu nerwowego, w których inne formy oceny okazałyby się nieskuteczne.8, 23-25, 27 Stosowanie czułych metod pomiarowych staje się szczególnie istotne przy ocenie potencjalnych środków terapeutycznych w różnych modelach chorób. Jeśli test nie jest wystarczająco czuły, aby wykryć efekt potencjalnego leku, badacz ryzykuje popełnienie błędu statystycznego drugiego rodzaju (tj. wyciągnięcie wniosku o braku efektu leczenia, podczas gdy w rzeczywistości efekt ten wystąpił). Co więcej, w przypadku pomiarów końcowych oraz bardziej subiektywnych testów oceniających lokomocję, istnieje ryzyko wystąpienia błędu systematycznego. Ocena kinematyczna i kinetyczna jest całkowicie obiektywna w tym sensie, że przy założeniu wcześniejszego ustalenia odpowiednich kryteriów włączenia/wykluczenia a priori, badacz po prostu gromadzi, analizuje i stosuje odpowiednie statystyki do danych (tj. proces wyznaczania danych nie posiada komponentu subiektywnego).
Analiza kinematyczna i kinetyczna umożliwia również zastosowanie tych metod u wielu gatunków zwierząt. W rzeczywistości kinematyka, wyznaczanie siły reakcji podłoża lub obie te metody były stosowane u różnych gatunków, takich jak słonie33-35, bydło36, konie37-40, psy4, 41-45, koty21, 46-49, różne gryzonie3, 8, 50, 51, ptaki4, 52-55 oraz ryby56, 57 (lista ta w żadnym razie nie jest wyczerpująca). Jednak w doświadczeniu autorów wykorzystanie myszy jest problematyczne, ponieważ trudno jest je poddać warunkowaniu instrumentalnemu w celu poruszania się wzdłuż bieżni. Z tego powodu myszy nie poruszają się z relatywnie stałą prędkością, lecz zamiast tego przyspieszają i zwalniają podczas pokonywania bieżni. Zachowanie to można prawdopodobnie częściowo obejść, przeprowadzając myszy na bieżni mechanicznej i nagrywając wideo przemieszczającego się zwierzęcia.58 Gdyby aparat eksperymentalny do wyznaczania siły reakcji podłoża został zmodyfikowany do użytku z bieżnią mechaniczną, prawdopodobnie łatwo byłoby uzyskać jedynie pionową siłę reakcji podłoża, ponieważ pas bieżni zakłócałby wyznaczanie siły w kierunku przód-tył oraz boczno-przyśrodkowym.
Podsumowując, analiza kinematyczna i kinetyczna lokomocji jest niezawodną, czułą i obiektywną metodą, którą można zastosować w różnych modelach schorzeń ortopedycznych i neurologicznych. Co więcej, cały sprzęt stał się dostępny do użytku u gryzoni, co eliminuje wszelkie powiązane z tym powody, by nie przeprowadzać tej formy analizy behawioralnej sensoryczno-motorycznej.
Oświadczenia
Nie zgłoszono żadnych konfliktów interesów.
Podziękowania
Badania te zostały wsparte grantem Discovery przyznanym AAW przez Natural Sciences and Engineering Research Council of Canada.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Miniaturowa platforma siłowa o niskim zakresie pomiarowym | AMTI | HE6X6 | http://amti.biz/PDFDownloads/0908HE6x6.pdf |
| Vicon Motus | Vicon | oprogramowanie Vicon Motus | http://www.vicon.com/applications/animal.html Platformę siłową można nabyć jako zintegrowany pakiet wraz z systemem Vicon Motus. |
| Vicon Motus KineCalc | Vicon | oprogramowanie Vicon Motus KineCalc | http://www.vicon.com/applications/animal.html Oprogramowanie zastrzeżone, kompatybilne z danymi Vicon Motus, co umożliwia bezpośrednie i konfigurowalne obliczenia danych. |
| Kamery wideo | Vicon | Zmienne w zależności od potrzeb | http://www.vicon.com/applications/animal.html Do dwustronnego obrazowania 2D lub 3D kinematyki kończyn tylnych podczas lokomocji szczura wymagane jest co najmniej 4 kamery. Kamery z częstotliwością próbkowania 60 Hz są wystarczające dla szczurów poruszających się z prędkością od 60 do 90 cm/s. Kamery wysokiej rozdzielczości czasowej pozwolą na identyfikację bardzo niewielkich, lecz potencjalnie istotnych różnic w koordynacji między kończynami. |
| Objętość lub klatka kalibracyjna | Vicon | Niestandardowy | http://www.vicon.com/applications/animal.html Należy nabyć i stosować odpowiednią objętość kalibracyjną do kalibracji współrzędnych przed każdym nagraniem wideo podczas każdego nowego cyklu zbierania danych lub w przypadku przesunięcia którejkolwiek z kamer. Wymiary tej objętości kalibracyjnej zależą od badanego pola widzenia. |
| Taśma odblaskowa | 3M | ND | Można nabyć hurtowo poprzez dystrybutora 3M lub w zależności od potrzeb od firmy VICON http://solutions.3m.com/en_US/?WT.mc_id=www.3m.com/us http://www.vicon.com/applications/animal.html |
| Cheerios | General Mills | Cheerios | http://www.cheerios.com/ |
| Klej tkankowy | 3M | Można nabyć za pośrednictwem dystrybutora 3M http://solutions.3m.com/en_US/?WT.mc_id=www.3m.com/us |
Bibliografia
- Muir, G. D., Webb, A. A. Mini-review: assessment of behavioral recovery following spinal cord injury in rats. Eur. J. Neurosci. 12, 3079-3086 (2000).
- Costa, L. M. Chapter 7: Methods and protocols in peripheral nerve regeneration experimental research: part IV-kinematic gait analysis to quantify peripheral nerve regeneration in the rat. Int. Rev. Neurobiol. 87, 127-139 (2009).
- Webb, A. A., Muir, G. D. Sensorimotor behavior following incomplete cervical spinal cord injury in the rat. Behav. Brain Res. 165, 147-159 (2005).
- Cavagna, G. A., Heglund, N. C., Taylor, C. R. Mechanical work in terrestrial locomotion: two basic mechanisms for minimizing energy expenditure. Am. J. Physiol. 233, R243-R261 (1977).
- Biomechanics of the Musculo-skeletal System. Nigg, B. M., Herzog, W. , Wiley. New York, NY. (2007).
- Equine Locomotion. Back, W., Clayton, H. , W.B. Saunders. (2000).
- Alexander, R. M. Principles of Animal Locomotion. , Princeton University Press. Princeton, NJ. (2002).
- Webb, A. A., Gowribai, K., Muir, G. D. Fischer (F-344) rats have different morphology, sensorimotor and locomotor abilities compared to Lewis, Long-Evans, Sprague-Dawley and Wistar rats. Behav. Brain Res. 144, 143-156 (2003).
- Bauman, J. M., Chang, Y. H. High-speed X-ray video demonstrates significant skin movement errors with standard optical kinematics during rat locomotion. J. Neurosci. Methods. 186, 18-24 (2010).
- Boczek-Funcke, A. X-ray kinematic analysis of forelimb movements during target reaching and food taking in the cat. Eur. J. Neurosci. 12, 1817-1826 (2000).
- Boczek-Funcke, A., Kuhtz-Buschbeck, J. P., Illert, M. X-ray kinematic analysis of shoulder movements during target reaching and food taking in the cat. Eur. J. Neurosci. 11, 986-996 (1999).
- Boczek-Funcke, A. X-ray kinematography as a tool for investigations of distal limb movements of the cat. J. Neurosci. Methods. 52, 11-16 (1994).
- Alaverdashvili, M. Cineradiographic (video X-ray) analysis of skilled reaching in a single pellet reaching task provides insight into relative contribution of body, head, oral, and forelimb movement in rats. Behav. Brain Res. 192, 232-247 (2008).
- Sarver, J. J. Transient decreases in forelimb gait and ground reaction forces following rotator cuff injury and repair in a rat model. J. Biomech. 43, 778-782 (2010).
- Klaveren, N. J. van Force plate analysis before and after dorsal decompression for treatment of degenerative lumbosacral stenosis in dogs. Vet. Surg. 34, 450-456 (2005).
- Robinson, D. A. The effect of tibial plateau angle on ground reaction forces 4-17 months after tibial plateau leveling osteotomy in Labrador Retrievers. Vet. Surg. 35, 294-299 (2006).
- Conzemius, M. G. Effect of surgical technique on limb function after surgery for rupture of the cranial cruciate ligament in dogs. J. Am. Vet. Med. Assoc. 226, 232-236 (2005).
- Marsolais, G. S. Kinematic analysis of the hind limb during swimming and walking in healthy dogs and dogs with surgically corrected cranial cruciate ligament rupture. J. Am. Vet. Med. Assoc. 222, 739-743 (2003).
- Budsberg, S. C. Force plate analyses before and after stabilization of canine stifles for cruciate injury. Am. J. Vet. Res. 49, 1522-1524 (1988).
- Budsberg, S. C. Prospective evaluation of ground reaction forces in dogs undergoing unilateral total hip replacement. Am. J. Vet. Res. 57, 1781-1785 (1996).
- Romans, C. W. Use of pressure platform gait analysis in cats with and without bilateral onychectomy. Am. J. Vet. Res. 65, 1276-1278 (2004).
- Roush, J. K. Evaluation of the effects of dietary supplementation with fish oil omega-3 fatty acids on weight bearing in dogs with osteoarthritis. J. Am. Vet. Med. Assoc. 236, 67-73 (2010).
- Kemp, S. W. P. Behavioral and anatomical analysis of selective tibial nerve branch transfer to the deep peroneal nerve in the rat. Eur. J. Neurosci. 31, 1074-1090 (2010).
- Muir, G. D. Dorsolateral cervical spinal injury differentially affects forelimb and hindlimb action in rats. Eur. J. Neurosci. 25, 1501-1510 (2007).
- Webb, A. A., Muir, G. D. Course of motor recovery following ventrolateral spinal cord injury in the rat. Behav. Brain Res. 155, 55-65 (2004).
- Webb, A. A., Muir, G. D. Unilateral dorsal column and rubrospinal tract injuries affect overground locomotion in the unrestrained rat. Eur. J. Neurosci. 18, 412-422 (2003).
- Webb, A. A., Muir, G. D. Compensatory locomotor adjustments of rats with cervical or thoracic spinal cord hemisections. J. Neurotrauma. 19, 239-256 (2002).
- Miklyaeva, E. I. The ground reaction forces of postural adjustments during skilled reaching in unilateral dopamine-depleted hemiparkinson rats. Behav. Brain Res. 88, 143-152 (1997).
- Muir, G. D., Whishaw, I. Q. Red nucleus lesions impair overground locomotion in rats: a kinetic analysis. Eur. J. Neurosci. 12, 1113-1122 (2000).
- Muir, G. D., Whishaw, I. Q. Complete locomotor recovery following corticospinal tract lesions: measurement of ground reaction forces during overground locomotion in rats. Behav. Brain Res. 103, 45-53 (1999).
- Muir, G. D., Whishaw, I. Q. Ground reaction forces in locomoting hemi-parkinsonian rats: a definitive test for impairments and compensations. Exp. Brain Res. 126, 307-314 (1999).
- Muir, G. D., Steeves, J. D. Phasic cutaneous input facilitates locomotor recovery after incomplete spinal injury in the chick. J. Neurophysiol. 74, 358-368 (1995).
- Genin, J. J. Biomechanics of locomotion in Asian elephants. J. Exp. Biol. 213, 694-706 (2010).
- Ren, L. The movements of limb segments and joints during locomotion in African and Asian elephants. J. Exp. Biol. 211, 2735-2751 (2008).
- Hutchinson, J. R. The locomotor kinematics of Asian and African elephants: changes with speed and size. J. Exp. Biol. 209, 3812-3827 (2006).
- Tol, P. P. vander The vertical ground reaction force and the pressure distribution on the claws of dairy cows while walking on a flat substrate. J. Dairy Sci. 86, 2875-2883 (2003).
- Nauwelaerts, S., Clayton, H. M. Trunk deformation in the trotting horse. Equine Vet. J. 41, 203-206 (2009).
- Wickler, S. J. Energetic and kinematic consequences of weighting the distal limb. Equine Vet. J. 36, 772-777 (2004).
- Biknevicius, A. R., Mullineaux, D. R., Clayton, H. M. Ground reaction forces and limb function in tolting Icelandic horses. Equine Vet. J. 36, 743-747 (2004).
- Clayton, H. M. Instrumentation and techniques in locomotion and lameness. Vet. Clin. North Am. Equine Pract. 12, 337-350 (1996).
- Walter, R. M., Carrier, D. R. Rapid acceleration in dogs: ground forces and body posture dynamics. J. Exp. Biol. 212, 1930-1939 (2009).
- Lister, S. A. Ground reaction force analysis of unilateral coxofemoral denervation for the treatment of canine hip dysplasia. Vet. Comp Orthop. Traumatol. 22, 137-141 (2009).
- Williams, S. B. Exploring the mechanical basis for acceleration: pelvic limb locomotor function during accelerations in racing greyhounds (Canis familiaris. J. Exp. Biol. 212, 550-565 (2009).
- Gillette, R. L., Angle, T. C. Recent developments in canine locomotor analysis: a review. Vet. J. 178, 165-176 (2008).
- Jayes, A. S., Alexander, R. M. Mechanics of locomotion of dogs (Canis familiaris) and sheep (Ovis aries). J. Zool. 185 Pt 3, 289-308 (1978).
- Frigon, A. Asymmetric changes in cutaneous reflexes after a partial spinal lesion and retention following spinalization during locomotion in the cat. J. Neurophysiol. 102, 2667-2680 (2009).
- Vilensky, J. A., Cook, J. A. Do quadrupeds require a change in trunk posture to walk backward. J. Biomech. 33, 911-916 (2000).
- Belanger, M. A comparison of treadmill locomotion in adult cats before and after spinal transection. J. Neurophysiol. 76, 471-491 (1996).
- Belanger, M., Drew, T., Rossignol, S. Spinal locomotion: a comparison of the kinematics and the electromyographic activity in the same animal before and after spinalization. Acta Biol. Hung. 39, 151-154 (1988).
- Fischer, M. S. Basic limb kinematics of small therian mammals. J. Exp. Biol. 205, 1315-1338 (2002).
- Witte, H. Torque patterns of the limbs of small therian mammals during locomotion on flat ground. J. Exp. Biol. 205, 1339-1353 (2002).
- Muir, G. D., Gowri, K. S. Role of motor and visual experience during development of bipedal locomotion in chicks. J. Neurophysiol. 94, 3691-3697 (2005).
- Muir, G. D. Locomotor plasticity after spinal injury in the chick. J. Neurotrauma. 16, 705-711 (1999).
- Reiter, K., Bessei, W. Gait analysis in laying hens and broilers with and without leg disorders. Equine Vet. J. Suppl. , 110-112 (1997).
- Griffin, T. M., Kram, R. Penguin waddling is not wasteful. Nature. 408, 929-929 (2000).
- Donley, J. M. Convergent evolution in mechanical design of lamnid sharks and tunas. Nature. 429, 61-65 (2004).
- Katz, S. L., Syme, D. A., Shadwick, R. E. High-speed swimming. Enhanced power in yellowfin tuna. Nature. 410, 770-771 (2001).
- Leblond, H. Treadmill locomotion in the intact and spinal mouse. J. Neurosci. 23, 11411-11419 (2003).
Przedruki i uprawnienia
