W niniejszym artykule wideo opisujemy zastosowanie nowego modelu ex vivo ostrej infekcji nabłonka rogówki wirusem prostego typu I.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ex Vivo organotypowy model rogówki w ostrym zakażeniu nabłonka wirusem opryszczki prostym typu I
W tym artykule
Podsumowanie
Streszczenie
Zapalenie rogówki wywołane wirusem opryszczki jest jedną z najcięższych patologii związanych z wirusem opryszczki prostego typu 1 (HSV-1). Obecnie zapalenie rogówki wywołane opryszczką jest główną przyczyną ślepoty pochodzenia rogówkowego oraz ślepoty związanej z infekcjami w krajach rozwiniętych. Typowy obraz zapalenia rogówki wywołanego opryszczką obejmuje infekcję nabłonka rogówki, a niekiedy głębszych warstw zrazika i śródbłonka rogówki, co prowadzi do trwałych patologii rogówki, takich jak bliznowacenie, ścieńczenie i zmętnienie 1.
Zakażenia rogówki wirusem HSV-1 bada się tradycyjnie w dwóch typach modeli eksperymentalnych. Model in vitro, w którym hodowane monowarstwy komórek nabłonka rogówki są zakażane w szalce Petriego, zapewnia prostotę, wysoki stopień powtarzalności, krótki czas trwania eksperymentów oraz stosunkowo niskie koszty. Z kolei model in vivo, w którym zwierzęta, takie jak króliki lub myszy, są inokulowane bezpośrednio do rogówki, oferuje wysoce zaawansowany system fizjologiczny, ale wiąże się z wyższymi kosztami, dłuższym czasem trwania badań, koniecznością opieki nad zwierzętami oraz większym stopniem zmienności.
W niniejszym artykule wideo przedstawiamy szczegółową demonstrację nowego modelu ex vivo infekcji nabłonka rogówki wirusem HSV-1, który łączy zalety modeli in vitro oraz in vivo. Model ex vivo wykorzystuje nienaruszone rogówki utrzymywane w kulturze organotypowej i zainfekowane HSV-1. Zastosowanie modelu ex vivo pozwala na wyciąganie wniosków o wysokim stopniu zgodności fizjologicznej, a jednocześnie jest on stosunkowo tani i wymaga nakładów czasu porównywalnych z modelem in vitro.
Protokół
Wszystkie odczynniki i sprzęt zostały zakupione w formie sterylnej lub wysterylizowane przed przystąpieniem do procedury. Niniejszy artykuł opisuje etapy przygotowania modelu ex vivo, zaczynając od oczyszczonego z tkanek okołogałkowych oka. W naszych eksperymentach wykorzystujemy świeże całe gałki oczne młodych (8-12 tyg.) królików albinosów (Pel-Freez Biologicals, Rogers, AR). Ponadto stosujemy rogówki ludzkie pozyskane z lokalnego banku tkanek oka. W przypadku samodzielnego wykonywania enukleacji należy zadbać o to, aby podczas procedury nie uszkodzić rogówki ani limbusa. Protokoły enukleacji u królików można znaleźć w innej literaturze 2.
Część 1: Wycięcie guzika rogówkowo-twardówkowego
- Namocz wąski pasek gazy w PBS i owiń go wokół gałki ocznej, aby ułatwić jej trzymanie podczas procedury.
- Za pomocą ostrego skalpela wykonaj nacięcie styczne w twardówce, około 0.5 cm od limbusa.
- Użyj ostrych nożyczek, aby poszerzyć nacięcie i całkowicie wyciąć fragment rogówki i twardówki (tzw. guzik rogówkowo-twardówkowy).
- Po wyizolowaniu fragmentu rogówki i twardówki, delikatnie oddziel tęczówkę, trzymając krawędź twardówki pęsetą. Należy unikać uszkodzenia śródbłonka oraz wywierania nadmiernego nacisku na rogówkę.
Część 2: Wprowadzenie rogówki do hodowli organotypowej
- Wypreparowane rogówki hoduje się w podłożu Minimum Essential Medium (MEM) uzupełnionym o niezbędne aminokwasy (Non-Essential Amino Acids) (1X), L-glutaminę (2 mM), penicylinę (200 U/ml) oraz streptomycynę (200 μg/ml). W razie potrzeby można dodać środek przeciwgrzybiczy, np. amfoterycynę.
- Przygotować 1% roztwór agarozy w podłożu hodowlanym i utrzymywać go w temperaturze 55 °C.
- Dokładnie wypłukać rogówkę w sterylnym PBS zawierającym penicylinę (200 U/ml) i streptomycynę (200 μg/ml).
- Umieścić rogówkę stroną nabłonkową do dołu w dołku sterylnej płytki z dołkami.
- Dodać podłoże z agarozą do wklęsłości śródbłonkowej rogówki w ilości wystarczającej do jej całkowitego wypełnienia. Odczekać ok. 1 min, aż agaroza stężeje.
- Umieścić rogówkę wraz z podtrzymującym ją rusztowaniem żelowym stroną nabłonkową do góry w 35 mm naczyniu do hodowli tkanek i dodać podłoże hodowlane tak, aby pokryło powierzchnię nabłonkową.
- Rogówkę można w ten sposób hodować przez ponad tydzień, wymieniając podłoże co 48 hr.
Część 3: Zakażenie HSV-1 i leczenie eksperymentalnymi lekami
- Do szalki hodowlanej o średnicy 35 mm dodać 1 ml pożywki zawierającej pożądaną ilość wirusa. Zazwyczaj przeprowadzamy infekcję dawką 1x10⁴ PFU szczepu KOS HSV-1 na rogówkę. Miana naszych zapasów są określane poprzez wykonanie testów plackowych na monowarstwach komórek CV-1.
- Umieścić rogówkę wraz z rusztowaniem agarozowym stroną nabłonkową do dołu w pożywce zawierającej wirusa.
- Umieścić rogówkę w inkubatorze do hodowli tkanek w celu infekcji przez 1 hr, wykonując okresowe kołysanie co 10-15 min.
- Po 1 hr odessać pożywkę zawierającą wirusa i przepłukać 2-3 razy PBS w celu usunięcia pozostałych cząsteczek wirusa.
- Umieścić rogówkę z powrotem w poprzedniej pozycji i dodać świeżą pożywkę hodowlaną, aby pokryć powierzchnię nabłonka.
- Zabiegi eksperymentalne można rozpocząć przed lub po infekcji, w zależności od charakteru eksperymentu.
- Pożywkę hodowlaną wymieniać co 48 hr.
Część 4: Pobieranie próbek
- Pożywka do analizy testu plackowego. Dokładnie wymieszać pożywkę i użyć jej natychmiast do testu plackowego lub przechowywać w temperaturze -80 °C do późniejszego zastosowania w przypadku pobierania próbek w różnych punktach czasowych.
- DNA, RNA, białka lub komórki z nabłonka rogówki
- Usunąć rusztowanie agarowe i dokładnie wypłukać rogówkę za pomocą PBS.
- Wyciąć pierścień tkanki twardówki z rogówki, aby upewnić się, że pobrany zostanie wyłącznie materiał z nabłonka rogówki.
- Za pomocą skalpela zeskrobać komórki nabłonka rogówki do odpowiedniego buforu, zależnie od rodzaju izolowanego materiału. Do izolacji DNA i RNA stosujemy odpowiednio zestaw DNeasy Blood & Tissue Kit oraz RNeasy Mini Kit (QIAGEN, Hilden, Niemcy). Do zbierania lizatów białkowych stosujemy bufor Laemmli. Do analizy cytometrycznej komórek nabłonka rogówki wstępnie inkubujemy rogówki w niewielkiej ilości trypsyny w celu poluzowania komórek, a następnie oddzielamy je skalpelem do trypsyny. Ponieważ skrobactwo nabłonka rogówki nie daje jednakowej ilości tkanki, ważne jest uwzględnienie odpowiednich kontroli podczas analizy próbek. W badaniach qRT-PCR jako transkrypty referencyjne wykorzystujemy 18S rRNA, w qPCR gen GAPDH jako gen referencyjny, a w analizach Western blot nukleolinę jako kontrolę ilościową (loading control).
- Próbki tkankowe do immunohistochemii lub immunofluorescencji
- Usunąć rusztowanie agarowe i dokładnie wypłukać rogówkę za pomocą PBS.
- W zależności od celu eksperymentalnego, wykorzystać rogówkę do przygotowania bloku tkanki w parafinie lub bloku tkanki mrożonej, zgodnie z instrukcją w filmie. Przy przygotowywaniu przekrojów tkanki rogówki stosujemy standardowe procedury.
Reprezentatywne wyniki
Większość metod dostępnych do badania komórek w hodowlach tkankowych można łatwo dostosować do użytku w rogówkach zainfekowanych HSV-1 ex vivo. Przedstawiono tutaj reprezentatywne wyniki dla kilku najczęstszych technik stosowanych w badaniu infekcji HSV-1 – qPCR (Rysunek 1D), qRT-PCR (Rysunek 1B), Western blot (Rysunek 1F), test plackowy (Rysunek 1C) oraz immunofluorescencję tkankową (Rysunek 1E).
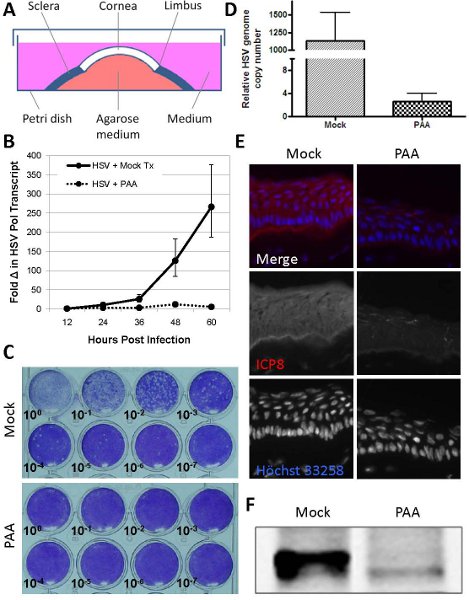
Rysunek 1. Analiza rogówek zainfekowanych HSV-1 ex vivo. (A) Schematyczny opis modelu ex vivo ostrej infekcji nabłonka rogówki HSV-1. (B-F) Analiza rogówek zainfekowanych metodą opisaną w niniejszym artykule wideo. Wypreparowane rogówki królicze zainfekowano dawką 1x10⁴ PFU/rogówkę szczepu KOS HSV-1 i hodowano w obecności (PAA) lub w przypadku kontroli (Mock) wobec braku kwasu fosfonooctowego (400 μg/ml), znanego inhibitora replikacji HSV. (B) Całkowite RNA pobrano w określonych punktach czasowych, a transkrypcję wirusową oceniono metodą qRT-PCR z użyciem starterów dla polimerazy HSV-1. Jako referencję zastosowano startery przeciwko 18S rRNA. n=3. Słupki błędów oznaczają ± SEM. (C) Po 48 hpi pobrano pożywkę hodowlaną, a produkcję cząsteczek zakaźnych oceniono za pomocą testu plackowego na monowarstwach CV-1. (D) Po 48 hpi pobrano całkowite DNA, a replikację genomu wirusa oceniono w teście qPCR z użyciem starterów dla genomu HSV-1. Jako referencję zastosowano startery przeciwko GAPDH. n=3. Słupki błędów oznaczają ± SEM. (E) Rogówki z grupy kontrolnej (Mock) zamrożono gwałtownie po 48 hpi, wykonano ich przekroje i przeanalizowano metodą pośredniej immunofluorescencji pod kątem obecności wczesnego białka wirusowego (ICP8) w zainfekowanym nabłonku. Jądra komórkowe wybarwiono Höchst 33258. (F) Lizaty białkowe pobrano po 48 hpi, a ekspresję białka wirusowego (ICP0) oceniono za pomocą metody Western blot. Do zapewnienia równego obciążenia próbek wykorzystano test BCA. hpi = godziny po infekcji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W niniejszym artykule wideo opisujemy metodę badania ostrej infekcji nabłonka rogówki przez HSV-1 w modelu ex vivo. Model ten stanowi przydatny etap pośredni między modelami in vitro a in vivo, ponieważ umożliwia fizjologicznie dokładną walidację wyników uzyskanych w hodowlach komórkowych, a tym samym ogranicza liczbę koniecznych eksperymentów na zwierzętach. Ponadto model ex vivo stwarza wyjątkową i nieocenioną okazję do badania infekcji herpesem nabłonka w nienaruszonych rogówkach
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie zadeklarowano żadnych konfliktów interesów.
Podziękowania
Wsparcie Lions Eye Bank of Delaware Valley było nieocenione dla realizacji tej pracy. Pierwotne przeciwciało monoklonalne mysie przeciwko ICP8 było uprzejmym darem od dr. Davida Knipe'a (Harvard Medical School). Dziękujemy również dr. Stephenowi Jenningsowi (Drexel University College of Medicine) oraz dr. Peterowi Laibsonowi (Wills Eye Institute) za pomocne dyskusje i wiedzę ekspercką.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Minimum Essential Medium (MEM) | Mediatech, Inc. | 10-010-CV | |
| Niezbędne aminokwasy niekluczowe (roztwór 100x) | Mediatech, Inc. | 25-025-CI | |
| L-Glutamina | Mediatech, Inc. | 25-005-CI | |
| Sód penicyliny G | Sigma-Aldrich | P3032 | |
| Siarczan streptomycyny | Sigma-Aldrich | S9137 | |
| Agaroza | Invitrogen | 15510-027 | |
| Bufor fosforanowo-solny (PBS) | Przygotowano w laboratorium | N/A | |
| Trypsyna EDTA (1x) | Mediatech, Inc. | 25-053-CI | |
| DNeasy Blood & Tissue Kit | Qiagen | 69504 | |
| RNeasy Mini Kit | Qiagen | 74104 | |
| Bufor Laemmliego | Przygotowano w laboratorium | N/A | |
| Optimal Cutting Temperature (OCT) Compound | Tissue-Tek | 4583 | |
| Całe oczy królika (młode) | Pel-Freez Biologicals | 41211-2 | |
| Ludzkie rogówki i całe oczy | Lokalny dostawca | N/A | |
| Porcelanowa płytka do nakraplania 12-dołkowa | Avogadro’s Lab Supply | 1877 | |
| Szalka do hodowli tkanek 35 mm | Falcon BD | 353001 | |
| 6-dołkowa płytka do hodowli komórek | Greiner Bio-One | 657160 | |
| Krioforma (Cryomold) Intermediate | Tissue-Tek | 4566 |
Bibliografia
- Kaye, S., Choudhary, A. Herpes simplex keratitis. Prog. Retin. Eye Res. 25, 355-380 (2006).
- Holmberg, B. J. Enucleation of exotic pets. Journal of Exotic Pet Medicine. 16, 88-94 (2007).
- Remeijer, L., Osterhaus, A., Verjans, G. Human herpes simplex virus keratitis: the pathogenesis revisited. Ocul. Immunol. Inflamm. 12, 255-285 (2004).
- Foreman, D. M., Pancholi, S., Jarvis-Evans, J., McLeod, D., Boulton, M. E. A simple organ culture model for assessing the effects of growth factors on corneal re-epithelialization. Exp. Eye Res. 62, 555-564 (1996).
- Xu, K. P., Li, X. F., Yu, F. S. Corneal organ culture model for assessing epithelial responses to surfactants. Toxicol. Sci. 58, 306-314 (2000).
- Klausner, E. A., Peer, D., Chapman, R. L., Multack, R. F., Andurkar, S. V. Corneal gene therapy. J. Control Release. 124, 107-133 (2007).
- Halford, W. P. ICP0 antagonizes Stat 1-dependent repression of herpes simplex virus: implications for the regulation of viral latency. Virol. J. 3, 44(2006).
- Bhattacharjee, P. S. Effective treatment of ocular HSK with a human apolipoprotein E mimetic peptide in a mouse eye model. Invest Ophthalmol Vis. Sci. 49, 4263-4268 (2008).
- Novitskaya, E. S. Difficulties imaging herpes simplex keratitis with fluorescein isothiocynate-labeled anti-HSV-1 antibodies in an ex vivo model. Cornea. 28, 421-425 (2009).
- Sharma, A., Shimeld, C. In vivo immunofluorescence to diagnose herpes simplex virus keratitis in mice. Br. J. Ophthalmol. 81, 785-788 (1997).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
