Walki zabawowe u szczurów obejmują ataki i obronę karku, który w przypadku kontaktu jest delikatnie szturchany pyszczkiem. Ponieważ ruchy jednego zwierzęcia są przeciwdziałane przez działania partnera, walka zabawowa stanowi złożoną, dynamiczną interakcję. Ta dynamiczna złożoność stwarza problemy metodologiczne w zakresie tego, jakie parametry należy oceniać w badaniach eksperymentalnych. Przedstawiamy schemat oceny, który jest uwrażliwiony na skorelowany charakter wykonywanych czynności. Dwa eksperymenty ilustrują, w jaki sposób pomiary te mogą być wykorzystane do wykrycia wpływu uszkodzenia mózgu na walki zabawowe, nawet gdy nie występuje wpływ na ogólną skłonność do zabawy. Oznacza to, że zaprezentowany tutaj schemat został zaprojektowany w celu wykrywania i oceny zmian w treści zabawy po zastosowaniu zabiegu eksperymentalnego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wgląd w dynamikę interakcji społecznych: pomiar walk zabawowych u szczurów
W tym artykule
Podsumowanie
Streszczenie
Walki zabawowe u szczurów obejmują ataki i obronę karku, który w przypadku kontaktu jest delikatnie szturchany pyszczkiem. Ponieważ ruchy jednego zwierzęcia są przeciwdziałane przez działania partnera, walki zabawowe stanowią złożoną, dynamiczną interakcję. Ta dynamiczna złożoność rodzi problemy metodologiczne w kwestii tego, co należy punktować w badaniach eksperymentalnych. Przedstawiamy schemat punktacji, który jest czuły na skorelowany charakter wykonywanych czynności. Częstotliwość walk zabawowych można zmierzyć, licząc liczbę zabawowych ataków na kark występujących w jednostce czasu. Jednak obrona zabawowa, ponieważ może wystąpić jedynie w odpowiedzi na atak, jest z konieczności miarą zależną, którą najlepiej mierzyć jako procent (#odpartych ataków/całkowita liczba ataków X 100%). Sposób, w jaki dany atak jest odpierany, może obejmować jedną z kilku taktyk, które są uwarunkowane samym faktem wystąpienia obrony; w związku z tym typ obrony również najlepiej wyrazić w sposób zależny, jako procent. Dwa eksperymenty ilustrują, jak pomiary te mogą być wykorzystane do wykrycia wpływu uszkodzeń mózgu na walki zabawowe, nawet gdy nie występuje wpływ na ogólną skłonność do zabawy. Oznacza to, że przedstawiony tutaj schemat został zaprojektowany w celu wykrywania i oceny zmian w treści zabawy po zastosowaniu zabiegu eksperymentalnego.
Wprowadzenie
Szczury są najintensywniej wykorzystywanymi zwierzętami laboratoryjnymi do badania zabaw10, 21, 41, a podjęto wiele prób opracowania schematów punktacji służących do pomiaru wpływu zabiegów eksperymentalnych na walki zabawowe8, 9, 37, 38, 39. Jednakże, choć schematy te odniosły pewne sukcesy w monitorowaniu częstotliwości zabaw, są one mniej odpowiednie do monitorowania zmian w treści zabawy ze względu na brak wrażliwości na dynamikę interakcji13. Głównym problemem jest to, że podczas walki stosowanie taktyk przez jednego partnera często zależy od wykonania konkretnych taktyk przez drugiego2, 15. Opracowaliśmy schemat punktacji, który uwzględnia dynamikę interakcji, dzięki czemu lepiej nadaje się on do wykrywania i charakteryzowania subtelnych zmian zachodzących podczas zabaw pod wpływem manipulacji eksperymentalnych16, 20, 26. W niniejszej pracy skupiamy się na pomiarze taktyk obronnych stosowanych przez odbiorcę zabawowego ataku.
Podczas poważnych walk zwierzęta atakują i bronią konkretnych obszarów ciała, wykorzystując typowe dla danego gatunku systemy broni5. U szczurów główną bronią są zęby, których używa się do gryzienia w boki i dolną część grzbietu2. Takie poważne walki są łatwo obserwowane w kontekście rezydent-intruz, w którym nieznany dorosły samiec zostaje wprowadzony do klatki dorosłego samca rezydenta2, 15. Podobnie jak w poważnych walkach, w walkach zabawowych zwierzęta również rywalizują o uzyskanie przewagi nad sobą1. Szczury na przykład atakują i bronią karku15, który po kontakcie jest delikatnie szturchany noskiem11, 32. Dlatego możliwe jest odróżnienie ataków zabawowych od agresywnych na podstawie nie tylko sposobu interakcji fizycznych (szturchanie vs. gryzienie), ale także atakowanych obszarów ciała (kark vs. boki i dolna część grzbietu). Ponadto takie zabawowe szturchanie nie powinno być mylone z badaniem społecznym lub allogroomingiem. Badanie społeczne polega na wąchaniu partnera, najczęściej w obrębie pyska i okolic anogenitalnych. Ponieważ zachowania te wydają się współwystępować z zachowaniami zabawowymi i w związku z tym mogą być uznane za aspekty interakcji zabawowych, wykazano, że te interakcje społeczne poprzedzają zachowania zabawowe. Ponadto zmiany w motywacji do podejmowania badania społecznego są niezależne od analogicznych zmian w zabawie9. Istnieje kilka cech odróżniających allogrooming od zabawy20. Po pierwsze, allogrooming zazwyczaj występuje, gdy szczury tulą się do siebie po dłuższym okresie zabawy. Po drugie, podczas gdy atak zabawowy koncentruje się na karku, allogrooming może obejmować kontakt z wieloma częściami ciała partnera, choć czasami również skupia się na karku. Po trzecie, pielęgnacja ta obejmuje delikatne podgryzanie i wyciąganie zębami futra partnera. Po czwarte, w przeciwieństwie do allogroomingu, większość ataków zabawowych w kark są odpierane przez odbiorcę, co prowadzi do złożonych sekwencji zapasów.
Głównym celem niniejszego opracowania jest pokazanie, co można z pożytkiem mierzyć podczas tych złożonych sekwencji zabaw, które mogą obejmować zapasy. Jak pokazano poniżej, różne taktyki stosowane przez obrońcę w celu ochrony karku prowadzą do różnych możliwych wyników. Wyniki te, takie jak zapasy na ziemi, boksowanie lub pościgi, w niektórych badaniach mierzone były jako niezależne wzorce zachowań, jednak odkryliśmy, że w większości przypadków wyniki te zależą od taktyki obronnej przyjętej przez odbiorcę ataku na kark15. Na przykład taktyki unikania często prowadzą do pościgów, a przetoczenie się na grzbiet prowadzi do zapasów. Zatem pomiary oparte na wynikach, takie jak boksowanie i zapasy, są w rzeczywistości kompozytami wynikającymi z działań obu uczestników. Stosując podejście dynamiczne, nasz schemat zapewnia sposób punktowania momentów w interakcji, w których mierzone działania można przypisać tylko jednemu z uczestników28 – podejście to stanie się dla czytelnika bardziej oczywiste po zaprezentowaniu przykładów wykorzystania schematu pomiarowego.
Jak pokazano na Rysunku 1, szczur po lewej stronie zbliża się do drugiego od tyłu (a), a następnie rzuca się w stronę karku przeciwnika (b). Jednak zanim dojdzie do kontaktu, osobnik broniący się obraca wokół osi podłużnej swojego ciała (c), aby stanąć twarzą do napastnika (d). Gdy napastnik przesuwa się do przodu, osobnik broniący się zostaje zepchnięty na bok (e), ale następnie przetacza się na grzbiet, podczas gdy napastnik nadal próbuje dosięgnąć jego karku (f-h). Z pozycji na plecach osobnik broniący się wyprowadza atak w stronę karku partnera (i), lecz zostaje zablokowany przez jego tylną stopę (j, k). Po kolejnej próbie dostania się do karku partnera, szczur znajdujący się na górze zostaje odepchnięty (l) tylnymi stopami zwierzęcia leżącego na plecach (m), co pozwala pierwotnie broniącemu się osobnikowi odzyskać równowagę (n) i gwałtownie zaatakować kark partnera (o).
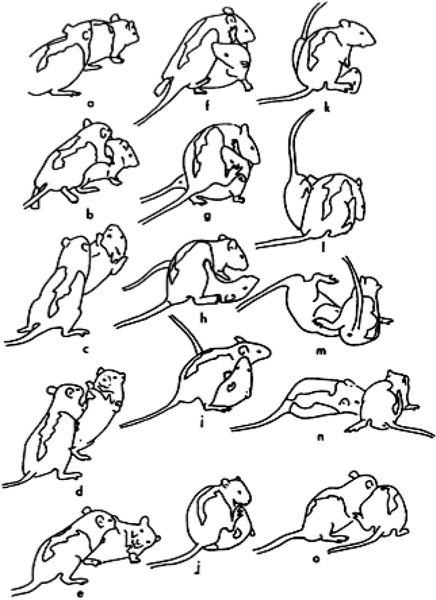
Rysunek 1. Przedstawiono parę młodych samców szczurów atakujących i broniących karku podczas walki zabawowej. Z Pellis & Pellis15; przedrukowano za zgodą John Wiley & Sons.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie sprzętu i pomieszczenia
- Aparat w postaci pudła do zabawy to przezroczyste pudełko z pleksiglasu o wymiarach 50 cm X 50 cm X 50 cm z 1-2 cm standardowej ściółki z kolb kukurydzy.
- Całe nagrywanie odbywa się w ciemności za pomocą przenośnej kamery w trybie nocnym.
- Kamera jest umieszczona na statywie pod kątem 45° i skierowana w dół w stronę pudła do zabawy. Wszystkie cztery narożniki muszą być widoczne w kadrze, aby uzyskać pełny widok aparatu.
2. Metodyka
- Zwierzęta są odsadzane między 21. a 23. dniem po urodzeniu. W zależności od planu eksperymentu, zwierzęta mogą być trzymane razem w grupach po 2-4 osobników w wymaganych kombinacjach samców i samic.
- Testy zabawy przeprowadzane są podczas cyklu świetlnego zwierząt, choć samo badanie odbywa się w ciemnym pomieszczeniu. Pomieszczenie testowe musi być zaciemnione przed wprowadzeniem zwierząt.
- Grupy trzymane razem są poddawane habituacji podczas trzech następujących po sobie 30-minutowych sesji bezpośrednio przed testami, zgodnie z tą samą sekwencją, co podczas właściwego badania (patrz 2.5).
- Po habituacji pary są izolowane indywidualnie na 24 h przed testami, aby zmaksymalizować interakcje zabawowe (patrz 2.5).
- Zwierzęta są przenoszone do ciemnego pomieszczenia testowego, a następnie pojedynczo umieszczane w aparaturze do zabaw i badane w parach przez 10 min. Następnie osobniki są wyjmowane i umieszczane razem w ich domowej klatce.
- Po każdej sesji zabaw ściółka jest wyrzucana, a aparatura do zabaw jest dokładnie czyszczona przy użyciu środka antyseptycznego Virkon (lub jego odpowiednika). Jest to skuteczniejszy środek do usuwania zapachów szczurów z poprzedniej pary, ponieważ nie pozostawia silnego i trwałego zapachu charakterystycznego dla chusteczek lub sprayów alkoholowych. Można również zastosować spray maskujący, aby zneutralizować zapachy wydzielane przez osobniki. Następnie dodawana jest nowa ściółka.
- Powtórzyć kroki (2.4-2.6) dla kolejnych prób.
3. Analiza behawioralna: ocena treści zabawy
Po pierwsze, charakterystyczne cele, o które rywalizują szczury zarówno podczas poważnych walk, jak i zabaw w walkę, sprawiają, że gatunek ten jest szczególnie wartościowym obiektem badawczym w studiach nad zabawą, ponieważ przejście od walki zabawowej do poważnej może zostać jednoznacznie wykryte poprzez zmianę celów ataków na ciele35. Po drugie, można zmierzyć liczbę ataków skierowanych w kark partnera. Po trzecie, biorąc pod uwagę, że obrona jest zależna od ataku, względną defensywność odbiorcy ataków można zmierzyć jako proporcję odpartych ataków. Po czwarte, broniąc się przed atakiem w kark, odbiorca może zastosować jedną z kilku taktyk, aby chronić kark lub uwolnić go z pyska partnera15, 25, 26. Taktyki te dzielą się na dwie główne kategorie.
- Podczas uniku obrońca może odejść pieszo, pobiec, podskoczyć lub uchylić się (Rysunek 2a), a robiąc to, nie tylko oddala kark od napastnika, ale także kończy w pozycji odwróconej tyłem do przeciwnika (Wideo z obrony ewazyjnej).
- W obronie frontalnej obrońca obraca się przodem do napastnika, przez co nie tylko oddala kark, ale także ustawia zęby pomiędzy karkiem a pyskiem napastnika. Obrona frontalna dzieli się na dwie główne kategorie: rotację wokół osi podłużnej ciała oraz rotację w płaszczyźnie poziomej wokół osi pionowej (zazwyczaj między zadkiem a środkiem ciała, choć może to różnić się w zależności od płci27). Ponadto rotacja wokół osi podłużnej ciała może przyjąć jedną z dwóch form.
- Pełny obrót polega na tym, że szczur obraca się z pozycji stojącej do pełnej pozycji na plecach (Rysunek 2B). Częściowy obrót polega na tym, że szczur obraca przednią częścią ciała, ale pozostawia jedną lub obie tylne łapy w kontakcie z podłożem (Rysunek 2C, Wideo pokazujące różnicę między pełnym a częściowym obrotem).

Rycina 2. Przedstawiono trzy rodzaje obrony w odpowiedzi na zabawowy atak w kark u 61-dniowych samców szczurów (A-C). A. Unik. Po wypadzie atakującego w stronę karku (a, b), osobnik broniący się odskakuje od napastnika (c). B. Pełna rotacja. Kontakt z karkiem z tyłu (a) prowadzi do rotacji osobnika broniącego się (b, c), aż do momentu, gdy znajdzie się on w pozycji na plecach i zablokuje atakującego rozpostartymi łapami (d). C. Częściowa rotacja. Wypad atakującego w kark partnera z boku (a, b) skutkuje rotacją głowy, szyi i barków osobnika broniącego się, co powoduje odsuniecie karku od pyska napastnika przy jednoczesnym zachowaniu podparcia tylnymi stopami o podłoże (c). Z Pellis et al. 26; przedrukowano za zgodą S. Karger AG, Basel.
- Horyzontalny obrót wokół osi pionowej wymaga od obrońcy odsunięcia tylnej części ciała od napastnika przy jednoczesnym przesunięciu głowy w stronę partnera (Rysunek 3, Wideo obrotu horyzontalnego).
- Po natychmiastowym obrocie wokół osi pionowej lub częściowym obrocie wokół osi podłużnej, obrońca może następnie podnieść przednią część ciała i naprzeć na partnera, co pokazuje, że wynik zastosowania obu tych taktyk może być podobny. Pomieszanie taktyk z ich wynikami może być jeszcze bardziej uderzające w przypadku obrotów pełnych i częściowych. Gdy obrońca wykonuje pełny obrót, ruch jest szybki i płynny – w przypadku nagrania standardowym sprzętem przy 30 fps, obrót do pozycji całkowicie grzbietowej zajmuje 2-3 klatki, a ruch jest ciągły (Wideo).
- Obrót częściowy również może zakończyć się w pozycji całkowicie grzbietowej, ale zazwyczaj wymaga to skoordynowanych działań napastnika. W tym przypadku obrońca może częściowo obrócić przednią część ciała, utrzymując tułów poziomo lub nawet w kontakcie z podłożem, lecz napastnik może wówczas docisnąć ciężarem swojego ciała obrońcę. Przy uporczywym nacisku i próbach uchwycenia karku przez napastnika, obrońca obraca się coraz bardziej, aż do pełnej pozycji grzbietowej. Taka „wymuszona” pozycja grzbietowa następuje w sposób rwany, z incrementalnym obrotem ciała i może zająć znacznie więcej niż 3 klatki wideo (Wideo pokazujące obrót częściowy prowadzący do przyjęcia przez obrońcę pozycji grzbietowej).
Biorąc pod uwagę, że większość badań koncentruje się na wpływie konkretnych manipulacji na badanych, najlepiej oceniać taktykę zastosowaną przez badanego, a nie ostateczny wynik, który może zostać wymuszony przez działania partnera. Ocena ta może zostać dokonana poprzez analizę ruchów obrońcy w ciągu pierwszych 2-3 klatek od rozpoczęcia działania obronnego (Wideo przedstawiające pierwsze 2-3 klatki, klatka po klatce).
- Ataki zabawowe można zmierzyć, gdy pysk jednego szczura styka się z karkiem partnera lub znajduje się w odległości 1-2 cm od niego (Film pokazujący atak zabawowy w porównaniu do ruchów niezwiązanych z zabawą w pobliżu szczura partnera).
- Jak wspomniano powyżej, taktykę obronną biorcy można sklasyfikować w pierwszych kilku klatkach po ataku. Nowa sekwencja rozpoczyna się wraz z nowym atakiem (Film pokazujący rozszerzone sesje zabaw w porównaniu do oddzielnych ataków zabawowych).
- Podczas rozszerzonych zapasów zabawowych, takich jak pokazano na Rysunku 1, szczury mogą wyprowadzić kontratak po skutecznej obronie, jednak tego typu ataki są trudniejsze do oceny, zwłaszcza w odniesieniu do reakcji obronnej partnera. Ponieważ kontrataki są silnie skorelowane z częstotliwością ataków inicjujących16, te bardziej złożone fazy interakcji nie muszą być punktowane, chyba że istnieje ku temu uzasadniony powód23. Ocena ataków inicjujących oraz taktyk stosowanych w obronie przed takimi atakami wystarcza do uchwycenia względnych różnic w zabawności i zachowaniu obronnym szczurów w różnych warunkach eksperymentalnych26, 29.
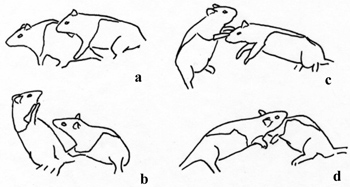
Rysunek 3. Obrona frontalna polega na tym, że osobnik broniący obraca się przodem do napastnika, obracając się na tylnych łapach w płaszczyźnie poziomej wokół osi pionowej (a, b). Z tej pozycji osobnik broniący może zablokować dostęp do karku (c) i przeprowadzić kontratak (d). Z Pellis et al.25; zaadaptowano i przedrukowano za zgodą APA.
Ponieważ większość interakcji zabawowych rozpoczyna się od zabawowego ataku, absolutną liczbę takich ataków można zmierzyć w czasie trwania próby testowej. Optymalny czas trwania próby w naszych badaniach wynosił 10 min po 24 hr izolacji społecznej15, 16. Krótkie okresy izolacji społecznej zwiększają motywację do podejmowania zabaw społecznych, nie wywierając podobnego wpływu na inne zachowania społeczne, takie jak badanie społeczne9. Chociaż każdy stopień izolacji wywołuje taki efekt, wpływ izolacji na zabawę osiąga asymptotę około 24 hr27. Choć próby trwające 5 min mogą wykryć takie zmiany indukowane izolacją, są one zbyt krótkie, aby wykryć subtelne różnice, np. między płciami, ze względu na efekt sufitowy – w tym przykładzie większa skłonność samców do zabawy ujawnia się głównie po pierwszych 5 min. Niemniej jednak po 15 min zwierzęta wydają się zmęczone intensywną zabawą, w związku z czym próby trwające 10 min stanowią dobry kompromis między ekonomią protokołu a możliwością wykrycia efektów eksperymentalnych15, 16, 27. Niezależnie od tego, czy testy przeprowadzano w fazie jasnej czy ciemnej cyklu dobowego szczurów, nasze doświadczenie wskazuje, że ilość zabawy wzrasta, jeśli szczury są badane w świetle czerwonym zamiast białego15, 16. Dzięki pojawieniu się kamer z funkcją trybu nocnego możliwe jest filmowanie w ciemności, co również zwiększa ilość zabaw wykazywanych w próbach testowych29.
- Biorąc pod uwagę, że reakcja obronna jest zależna od wystąpienia ataku, obronność powinna być obliczana jako proporcja ataków prowadzących do obrony. Podobnie, ponieważ wystąpienie konkretnego rodzaju obrony jest zależne od samego faktu podjęcia obrony, typy reakcji obronnych powinny być również oceniane w formie proporcji (np. spośród wszystkich wystąpionych reakcji obronnych X% stanowiły pełne rotacje). Ocena obrony jako miary bezwzględnej może być myląca. Na przykład niska częstotliwość pełnych rotacji może wynikać z niskiego wskaźnika ataków lub z tego, że osobniki w danej warunkach eksperymentalnych rzadko stosowały pełną rotację, nawet jeśli były atakowane tak samo często jak zwierzęta w grupie kontrolnej.
- W związku z tym, podczas oceny zachowań, przeprowadza się analizę sekwencyjną: ile ataków inicjują badane osobniki (liczba/jednostka czasu), ile ataków zostaje odpartych (tj. prawdopodobieństwo obrony) oraz, w przypadku obrony, jakie jest prawdopodobieństwo zastosowania poszczególnych taktyk obronnych (%taktyk).
4. Analiza behawioralna: wykorzystanie treści zabawy do oceny relacji między partnerami w zabawie
Wraz z nadejściem okresu dojrzewania następuje ogólny spadek ilości walk zabawowych8, 40. Wynika to z faktu, że zwierzęta rzadziej inicjują ataki na kark, lecz utrzymują tę samą, wysoką prawdopodobność obrony17. U samców szczurów wzorzec zabawy jest modyfikowany przez rozwój relacji dominacji, które krystalizują się około okresu dojrzewania37. Odzwierciedlone jest to w stosowanych rodzajach taktyk obronnych.
- U samców wraz z rozpoczęciem dojrzewania następuje względny spadek stosowania taktyki pełnego obrotu (Inny film obrazujący pełny obrót pokazany w poprzednich częściach) oraz wzrost stosowania taktyki częściowego obrotu (Inny film obrazujący częściowy obrót pokazany w poprzednich częściach), podczas gdy pozostałe taktyki utrzymują się na podobnym poziomie częstotliwości w każdym wieku16.
- Jednak u samców podporządkowanych wybór jednej z tych taktyk zależy od partnera. Podczas interakcji z innym samcem podporządkowanym lub z samicą, szczur podporządkowany najczęściej stosuje taktykę częściowego obrotu w odpowiedzi na atak, natomiast podczas interakcji z samcem dominującym w kolonii częściej stosuje taktykę pełnego obrotu w przypadku ataku18, 19, 24, 36. Zatem wraz z ustanowieniem się relacji dominacji, względne zastosowanie taktyk stanowi dobry wskaźnik do monitorowania zmian w relacjach społecznych eksperymentalnego szczura podporządkowanego12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Dwie badania ilustrują, w jaki sposób opracowany przez nas wieloaspektowy system punktacji może być wykorzystany do diagnozowania wpływu manipulacji eksperymentalnych na walki zabawowe szczurów. Pierwsze z nich wykazuje, że metoda ta pozwala precyzyjnie określić konkretny element zabawy zmieniony w wyniku manipulacji eksperymentalnej, a drugie pokazuje, jak metoda ta może służyć do pomiaru zmian w relacjach po przeprowadzeniu manipulacji eksperymentalnej.
(1) Efekty dekortykacji noworodkowej
...Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Walki zabawowe to złożone, dynamiczne interakcje, w których uczestnicy nieustannie wpływają na swoje zachowanie. W związku z tym niezbędny jest system punktacji wrażliwy na tę dynamikę oraz warunkowy charakter wykonywanych działań. Schemat opisany w niniejszej pracy sprawdził się w porównaniach między płciami, różnicach indywidualnych, analizach rozwoju, różnicach między szczepami oraz w przypadku zabiegów eksperymentalnych4, 14, 16, 20, 24, 29, 30, 31, 32, 32, 36. Co więcej, przedstawiony schemat może służyć ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie zadeklarowano żadnych konfliktów interesów.
Podziękowania
Dziękujemy fundacji Harry Frank Guggenheim Foundation oraz Natural Science and Engineering Research Council of Canada za granty przyznane SMP, które wsparły badania prowadzące do opracowania tych metod.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kamera Sony DCR-DVD103 | Zoom optyczny- 20x, tryb nocny *Patrz poniżej | ||
| Aparatura do zabawy | Pleksiglas 50 X 50 X 50 cm | ||
* Do nagrywania można użyć dowolnej kamery, choć dla uzyskania optymalnego przybliżenia zaleca się zoom optyczny 20x lub wyższy. |
Bibliografia
- Aldis, O. Play Fighting. , Academic Press. (1975).
- Blanchard, R. J., Blanchard, D. C., Takahashi, T., Kelley, M. J. Attack and defensive behaviour in the albino rat. Anim. Behav. 25, 622-634 (1977).
- Fagen, R. A. Animal Play Behavior. , Oxford University Press. (1981).
- Field, E. F., Watson, N. V., Whishaw, I. Q., Pellis, S. M. Play-fighting in androgen-insensitive tfm rats: Evidence that androgen receptors are critical for the development of adult playful defense but not playful attack. Dev. Psychobiol. 48, 111-120 (2006).
- Geist, V. On weapons, combat and ecology. Advances in the Study of Communication and Affect. Krames, L., Pliner, P., Alloway, T. 4, Plenum Press. 1-30 (1978).
- Kamitakahara, H., Monfils, M. -H., Forgie, M. L., Kolb, B., Pellis, S. M. The modulation of play fighting in rats: Role of the motor cortex. Behav. Neurosci. 121, 164-176 (2007).
- Kolb, B. Prefrontal cortex. The Cerebral Cortex of the Rat. Kolb, B., Tees, R. C. , MIT Press. 437-458 (1990).
- Meaney, M. J., Stewart, J. A descriptive study of social development in the rat (Rattus norvegicus. Anim. Behav. 29, 34-45 (1981).
- Panksepp, J. The ontogeny of play in rats. Dev. Psychobiol. 14, 327-332 (1981).
- Panksepp, J., Normansell, L., Cox, J. F., Siviy, S. M. Effects of neonatal decortication on the social play of juvenile rats. Physiology and Behavior. 56, 429-443 (1994).
- Pellis, S. M. Agonistic versus amicable targets of attack and defense: Consequences for the origin, function and descriptive classification of play-fighting. Aggress. Behav. 14, 85-104 (1988).
- Pellis, S. M. Keeping in touch: Play fighting and social knowledge. The Cognitive Animal: Empirical and Theoretical Perspectives on Animal Cognition. Bekoff, M., Allen, C., Burghardt, G. M. , MIT Press. 421-427 (2002).
- Pellis, S. M., Bell, H. C. Closing the circle between perceptions and behavior: A cybernetic view of behavior and its consequences for studying motivation and development. Dev. Cog. Neurosci. 1, 404-413 (2011).
- Pellis, S. M., McKenna, M. M. Intrinsic and extrinsic influences on play fighting in rats: Effects of dominance, partner's playfulness, temperament and neonatal exposure to testosterone propionate. Behav. Brain Res. 50, 135-145 (1992).
- Pellis, S. M., Pellis, V. C. Play-fighting differs from serious fighting in both target of attack and tactics of fighting in the laboratory rat Rattus norvegicus. Aggress. Behav. 13, 227-242 (1987).
- Pellis, S. M., Pellis, V. C. Differential rates of attack, defense and counterattack during the developmental decrease in play fighting by male and female rats. Dev. Psychobiol. 23, 215-231 (1990).
- Pellis, S. M., Pellis, V. C. Attack and defense during play fighting appear to be motivationally independent behaviors in muroid rodents. Psych. Rec. 41, 175-184 (1991).
- Pellis, S. M., Pellis, V. C. Role reversal changes during the ontogeny of play fighting in male rats: Attack versus defense. Aggress. Behav. 17, 179-189 (1991).
- Pellis, S. M., Pellis, V. C. Juvenilized play fighting in subordinate male rats. Aggress. Behav. 18, 449-457 (1992).
- Pellis, S. M., Pellis, V. C. The pre-juvenile onset of play fighting in rats (Rattus norvegicus. Dev. Psychobiol. 31, 193-205 (1997).
- Pellis, S. M., Pellis, V. C. The play fighting of rats in comparative perspective: A schema for neurobehavioral analyses. Neurosci. Biobehav. Rev. 23, 87-101 (1998).
- Pellis, S. M., Pellis, V. C. The Playful Brain. Venturing to the Limits of Neuroscience. , Oneworld Press. Oxford. (2009).
- Pellis, S. M., Pellis, V. C., Dewsbury, D. A. Different levels of complexity in the playfighting by muroid rodents appear to result from different levels of intensity of attack and defense. Aggress. Behav. 15, 297-310 (1989).
- Pellis, S. M., Pellis, V. C., McKenna, M. M. Some subordinates are more equal than others: Play fighting amongst adult subordinate male rats. Aggress. Behav. 19, 385-393 (1993).
- Pellis, S. M., Pellis, V. C., McKenna, M. M. A feminine dimension in the play fighting of rats (Rattus norvegicus) and its defeminization neonatally by androgens. J. Comp. Psych. 108, 68-73 (1994).
- Pellis, S. M., Pellis, V. C., Whishaw, I. Q. The role of the cortex in play fighting by rats: Developmental and evolutionary implications. Brain Behav. Evol. 39, 270-284 (1992).
- Pellis, S. M., Field, E. F., Smith, L. K., Pellis, V. C. Multiple differences in the play fighting of male and female rats. Implications for the causes and functions of play. Neurosci. Biobehav. Rev. 21, 105-120 (1997).
- Pellis, S. M., Pellis, V. C., Pierce, J. D., Dewsbury, D. A. Disentangling the contribution of the attacker from that of the defender in the differences in the intraspecific fighting of two species of voles. Aggress. Behav. 18, 425-435 (1992).
- Pellis, S. M., Hastings, E., Shimizu, T., Kamitakahara, H., Komorowska, J., Forgie, M. L., Kolb, B. The effects of orbital frontal cortex damage on the modulation of defensive responses by rats in playful and non-playful social contexts. Behav. Neurosci. 120, 72-84 (2006).
- Reinhart, C. J., Pellis, S. M., McIntyre, D. C. The development of play fighting in kindling-prone (FAST) and kindling-resistant (SLOW) rats: How does the retention of phenotypic juvenility affect the complexity of play. Dev. Psychobiol. 45, 83-92 (2004).
- Reinhart, C. J., Metz, G., Pellis, S. M., McIntyre, D. C. Play fighting between kindling-prone (FAST) and kindling-resistant (SLOW) rats. J. Comp. Psych. 120, 19-30 (2006).
- Siviy, S. M., Panksepp, J. Sensory modulation of juvenile play in rats. Dev. Psychobiol. 20, 39-55 (1987).
- Siviy, S. M., Baliko, C. N., Bowers, K. S. Rough-and-tumble play behavior in Fischer-344 and buffalo rats: Effects of social isolation. Physiol. Behav. 61, 597-602 (1997).
- Siviy, S. M., Love, N. J., DeCicco, B. M., Giordano, S. B., Seifert, T. L. The relative playfulness of juvenile Lewis and Fischer-344 rats. Physiol. Behav. 80, 385-394 (2003).
- Smith, L. K., Fantella, S. -L., Pellis, S. M. Playful defensive responses in adult male rats depend upon the status of the unfamiliar opponent. Aggress. Behav. 25, 141-152 (1999).
- Smith, L. K., Forgie, M. L., Pellis, S. M. Mechanisms underlying the absence of the pubertal shift in the playful defense of female rats. Dev. Psychobiol. 33, 147-156 (1998).
- Takahashi, L. K., Lore, R. K. Play fighting and the development of agonistic behavior in male and female rats. Aggress. Behav. 9, 217-227 (1983).
- Taylor, G. T. Fighting in juvenile rats and the ontogeny of agonistic behavior. J. Comp. Physiol. Psych. 94, 953-961 (1980).
- Thor, D. H., Holloway, W. R. Play solicitation behavior in juvenile male and female rats. Anim. Learn. Behav. 11, 173-178 (1983).
- Thor, D. H., Holloway, W. R. Developmental analysis of social play behavior in juvenile rats. Bull. Psychon. Soc. 22, 587-590 (1984).
- Vanderschuren, L. J. M. J., Niesink, R. J. M., van Ree, J. M. The neurobiology of play behavior in rats. Neurosci. Biobehav. Rev. 21, 309-326 (1997).
- Whishaw, I. Q. The decorticate rat. Cerebral cortex of the rat. Kolb, B., Tees, R. C. , MIT Press. 239-268 (1990).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
