Prezentujemy metody oceny, jak ryzyko drapieżnictwa może zmienić jakość chemiczną ofiar roślinożerców, wywołując zmiany w diecie, aby sprostać wymaganiom zwiększonego stresu, oraz jak rozkład zwłok tych zestresowanych roślinożerców spowalnia późniejszy rozkład ściółki roślinnej przez mikroby glebowe.
Artykuł metodologiczny
Powiązanie ryzyka drapieżnictwa, stresu fizjologicznego roślinożerców i mikrobiologicznego rozkładu ściółki roślinnej
W tym artykule
Podsumowanie
Streszczenie
Ilość i jakość detrytusu dostającego się do gleby określa tempo rozkładu przez społeczności mikrobiologiczne, jak również wskaźniki recyklingu sekwestracji azotu (N) i węgla (C)1,2. Ściółka roślinna składa się z większości detrytusu3, w związku z czym zakłada się, że na rozkład tylko w niewielkim stopniu wpływa biomasa pochodząca od zwierząt takich jak roślinożercy i mięsożercy4,5. Drapieżniki mogą jednak wpływać na rozkład mikrobiologiczny ściółki roślinnej poprzez łańcuch interakcji, w którym ryzyko drapieżnictwa zmienia fizjologię ich ofiar roślinożerców, co z kolei zmienia funkcjonowanie mikroorganizmów glebowych, gdy zwłoki roślinożerców ulegają rozkładowi6. Fizjologiczna reakcja roślinożerców na stres związany z ryzykiem drapieżnictwa może zmienić skład pierwiastkowy C:N biomasy roślinożerców7,8,9, ponieważ stres spowodowany ryzykiem drapieżnictwa zwiększa podstawowe zapotrzebowanie energetyczne roślinożerców, które w systemach o ograniczonej zawartości składników odżywczych zmusza roślinożerców do przeniesienia spożycia z zasobów bogatych w N, aby wspierać wzrost i reprodukcję, do zasobów węglowodanowych bogatych w C, aby wspierać zwiększony metabolizm6. Roślinożercy mają ograniczoną zdolność do magazynowania nadmiaru składników odżywczych, więc zestresowani roślinożercy wydalają N,zwiększając spożycie węglowodanów C. Ostatecznie ofiary zestresowane ryzykiem drapieżnictwa zwiększają stosunek C:N w organizmiedo 7,10, co czyni je gorszymi zasobami jakości dla puli mikrobiologicznej gleby, prawdopodobnie z powodu mniejszej dostępności labilnego azotu do produkcji enzymów mikrobiologicznych6. Tak więc rozkład zwłok zestresowanych roślinożerców ma wpływ pobudzający funkcjonowanie zbiorowisk drobnoustrojów, co zmniejsza późniejszą zdolność drobnoustrojów do rozkładu ściółki roślinnej6,10,11.
Przedstawiamy metodologię oceny powiązań między ryzykiem drapieżnictwa a rozkładem ściółki przez mikroorganizmy glebowe. Opisujemy, jak: wywołać stres u roślinożerców spowodowany ryzykiem drapieżnictwa; Zmierz te reakcje na stres i zmierz ich wpływ na rozkład mikrobiologiczny. Korzystamy z informacji pochodzących z modelowego ekosystemu trawiastego obejmującego polującego drapieżnika pająka (Pisuarina mira), dominującego roślinożercę konika polnego (Melanoplus femurrubrum) oraz różnych roślin trawiastych i trawiastych9.
Protokół
1. Hodowla koników polnych w warunkach stresowych i bezstresowych
- Użyć okrągłych, zamkniętych mezokosmosów o powierzchni 0,5 m2, aby zapobiec emigracji lub imigracji gatunków zwierząt (Rycina 1). Mezokosmosy należy zbudować, wykorzystując odcinki ogrodzenia aluminiowego z siatki o oczkach ¼", o długości 2,4 m i wysokości 1,5 m, jako stelaż. Ogrodzenie należy pokryć fragmentami aluminiowej siatki okiennej o długości 2,5 m i wysokości 1,75 m, zagiętej nad górną i dolną krawędzią ogrodzenia i zszytej zszywkami wzdłuż zagięcia. Końce ogrodzenia należy połączyć, tworząc zamknięty okrąg, a następnie zszyć nakładające się fragmenty siatki okiennej, aby zapewnić szczelność. Mezokosmos należy osadzić w glebie w terenie, wykopując wokół jego podstawy rów o głębokości 10 cm i szerokości 4 cm, umieścić w nim mezokosmos, a następnie ubić darń wokół zatopionej części. Do góry mezokosmu należy przymocować zszywkami okrągły kawałek siatki okiennej.
- Mezokosmosy należy rozmieścić w terenie zgodnie z powtórzonym, sparowanym schematem eksperymentalnym. Lokalizacje poletek powinny być dobrane tak, aby odpowiadały tożsamości gatunkowej roślin oraz ich względnemu pokryciu. Klatki należy wbić na głębokość 10 cm w grunt w miejscu poletki.
- Za pomocą siatki entomologicznej należy zebrać nimfy koników polnych we wczesnym (2.nd) stadium rozwojowym i wprowadzić je do mezokosmosów w naturalnych zagęszczeniach terenowych.
- Za pomocą siatki entomologicznej należy odłowić osobniki dominującego gatunku pająka drapieżnego polującego metodą „czekaj i atakuj” (nie tkającego sieci). Chelicery pająka (części gębowe służące do obezwładniania ofiar) należy zakleić szybko schnącym cementem, aby oddzielić efekty stresu od faktycznej selekcji przeżywalności faworyzującej osobniki koników polnych o lepszych zdolnościach unikania drapieżnictwa pająków. Pająki należy wprowadzić w zagęszczeniach terenowych do jednego mezokosmosu z każdej pary. Będzie to grupa traktowana stresem. Mezokosmosy bez pająków stanowić będą grupę kontrolną (bezstresową).
- Należy pozwolić nimfom koników polnych na rozwój do późnych (4.th i 5.th) stadiów rozwojowych. Wszystkie osobniki należy zebrać z klatek i losowo przydzielić osobniki z każdej klatki do jednej z trzech następujących grup badawczych: (1) walidacja fizjologicznego stanu stresu; (2) walidacja zmiany w stechiometrii pierwiastkowej organizmu; (3) rozkład mikrobiologiczny.
2. Walidacja stanu stresu konika polnego
- Zmierz standardową przemianę materii (SMR) konika polnego jako szybkość emisji dwutlenku węgla (
 ) w przepływowym systemie respirometrycznym z natężeniem przepływu powietrza 200 ml/min. Usuń parę wodną, przepuszczając przepływające powietrze przez środek osuszający.
- Po 16 h głodówki (woda powinna być dostępna), zważ poszczególne osobniki koników polnych (±0.1 mg) i umieść je w przezroczystych komorach respirometrycznych o pojemności 50 ml (9.2 cm L x 2.0 cm D), pozwalając im na regenerację po manipulacjach przez co najmniej 10 min przed rozpoczęciem pomiarów.
- Przy stałej średniej temperaturze otoczenia (wariancja temperatury ± 1% błędu standardowego) wewnątrz komory respirometrycznej, przeanalizuj powietrze wydechowe za pomocą analizatora CO2 na podczerwień (np. Qubit S151- 1 ppm rozdzielczości). Zmierz średnią minimalną wartość w stanie stacjonarnym przez 10 min.
- Analizator podaje ułamkowe stężenie CO2 (części na milion), jednak SMR należy raportować jako szybkość, zatem należy przekształcić zapisy zgodnie ze wzorem
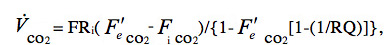 , gdzie
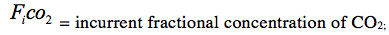
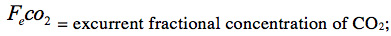
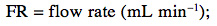
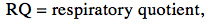 przyjęto jako równe 0.85 w przypadku zwierząt roślinożernych.
3. Walidacja przesunięcia w stechiometrii pierwiastkowej organizmu
- Oznaczyć zawartość węgla i azotu (C:N) w próbce koników polnych zebranych z mezokosmosów polowych.
- Zredukować zmienność stosunku C:N wynikającą z niedawnego spożycia pokarmu poprzez usunięcie zawartości jelit koników polnych pod mikroskopem stereoskopowym.
- Liofilizować opróżnione jelita oraz ciało przez 48 h, a następnie rozetrzeć poszczególne tułowia i jelita na jednorodny proszek.
- Zmierzyć zawartość C:N w proszku przy użyciu autoanalizatora CNH.
4. Rozkład mikrobiologiczny
- Umieść powtórzone pary obręczy z PVC (średnica 15,4 cm, wbitą na głębokość ok. 4 cm w glebę) na obszarze badawczym (Rysunek 3C). Usuń całą roślinność w ich wnętrzu poprzez przycięcie przy powierzchni gleby. Obręcze te są wykorzystywane do pomiarów rozkładu. Dodatkowo, rozmieść na obszarze badawczym zestaw obręczy z PVC, które będą służyć jako kontrole naturalnej zawartości 13C (patrz poniżej), do których nie dodaje się ani koników polnych, ani ściółki trawiastej.
- Do jednej obręczy z każdej pary dodaj 2 nienaruszone, liofilizowane zwłoki koników polnych (odnotuj dodaną biomasę) hodowanych z ryzykiem drapieżnictwa, zgodnie z powyższym opisem, przy użyciu klatek polowych. Do drugiej obręczy z każdej pary dodaj 2 nienaruszone liofilizowane zwłoki osobników hodowanych bez ryzyka drapieżnictwa.
- Przykryj obręcze z PVC siatką, aby zapobiec usuwaniu zwłok koników polnych z poletek przez padlinożerców, i pozostaw zwłoki koników polnych do rozkładu na 40 dni.
- Podczas rozkładu zwłok, oznakuj ściółkę trawiastą izotopem 13C.
- Zbuduj przezroczystą komorę z pleksiglasu (60 cm x 60 cm x 1,5 m) z zaworem wlotowym i wylotowym (Rysunek 3B).
- Wbij w ziemię na głębokość 5 cm kwadratową drewnianą ramę o wymiarach 60 cm x 60 cm z uszczelką gumową pokrytą smarem silikonowym (Rysunek 3B).
- Nasuń komorę na drewnianą ramę tak, aby komora została uszczelniona gumą (Rysunek 3B).
- Podłącz wloty komory do butli z gazem sprężonym zawierającym 99 atom% 13CO2. Rośliny wewnątrz komory zostaną oznakowane 13C, przy czym stężenia CO2 są utrzymywane na poziomach otoczenia (ponieważ podwyższenie stężeń zmienia podział węgla w roślinie). Poziomy otoczenia są utrzymywane poprzez podawanie oznakowanego CO2 jedynie w krótkich impulsach. Ponadto monitorowana jest temperatura wewnątrz komory, a komory są usuwane, jeśli temperatura wzrośnie o 5 °C powyżej temperatury otoczenia.
- Tydzień po oznakowaniu porównaj δ13C ściółki trawiastej z wartościami naturalnej zawartości pobranymi z losowej próbki tych samych gatunków traw za pomocą izotopowego spektrometru mas Thermo DeltaPlus (Thermo, San Jose, CA, USA).
- Po 40 dniach dodaj 10 g wysuszonej powietrzem, oznakowanej 13C ściółki trawiastej do każdej obręczy, do której wcześniej dodano zwłoki koników polnych.
- Monitoruj tempo mineralizacji ściółki trawiastej in situ przez 75 dni, zamykając każdą obręczy i śledząc zarówno całkowitą respirację gleby, jak i respirację 13CO2. Jest to realizowane przy użyciu techniki komory przepływowej, w której próbki gazu z każdej obręczy są monitorowane w czasie rzeczywistym przez 8 min każda, wykorzystując spektroskopię ring-down wnękowej (CRDS; Picarro Inc., Santa Clara, CA, USA; Model: G1101-i). CRDS umożliwia jednoczesne śledzenie całkowitej respiracji gleby oraz wartości δ13C.
- Oszacuj wkład oznakowanej 13C ściółki trawiastej do całkowitej respiracji gleby za pomocą równań mieszania izotopów. Ilość CO2 pochodzącego ze ściółki trawiastej oblicza się następująco: Cgrass-litter derived = Ctotal × (δ13Crespiration- δ13Cnat.abn.)/ (δ13Cgrass-litter- δ13Cnat.abn), gdzie Ctotal to całkowita ilość C wydzielonego podczas danego pomiaru, δ13Crespiration to δ13C wydzielonego węgla dla obręczy z dodatkiem oznakowanej ściółki trawiastej, δ13Cnat.abn. to średnie δ13C wydzielonego węgla w trzech obręczach o naturalnej zawartości (tzn. tych, do których nie dodano ściółki), a δ13Cgrass-litter to δ13C ściółki trawiastej dodanej do obręczy.
- Monitoruj temperaturę i wilgotność gleby w trakcie trwania eksperymentu za pomocą sond ręcznych, aby skorygować różnice w respiracji gleby wynikające z różnic w temperaturze i wilgotności.
- Mimo że instrument do spektroskopii ring-down wnękowej (Picarro Inc., Santa Clara, CA, USA; Model: G1101-i) jest przeznaczony do użytku polowego, jego odczyty są wrażliwe na ruchy. Dlatego należy ustawić główną stację pomiarową w centrum wszystkich poletek z obręczami z PVC i połączyć instrument z obręczami za pomocą rurek z PVC.
Wyniki
Przykładowy wykres standardowych wskaźników metabolicznych koników polnych w warunkach stresowych i bezstresowych przedstawiono na Rysunku 2. Ze względu na różnice w masie ciała poszczególnych koników polnych oraz fakt, że tempo metabolizmu zmienia się wraz z masą ciała, wykresy powinny przedstawiać wskaźniki metaboliczne w relacji do masy ciała konika polnego. Równoległe trendy dla różnych zabiegów wskazują, że tempo metabolizmu rośnie jako stała wielokrotność standardowego wskaźnika metabolicznego (t.j. brak interakcji między masą ciała a tempem metabolizmu) dla wszystkich osobników poddanych stresowi.
Zawartość pierwiastków C i N w organizmach koników polnych w warunkach ryzyka oraz braku ryzyka przedstawiono w Tabeli 1. Warto zauważyć, że różnica w stosunku C:N w organizmach między grupami badawczymi jest bardzo niewielka (4%). Niemniej jednak te małe różnice mogą przekładać się na duże różnice w rozkładzie ściółki trawiastej przez glebową pulę mikroorganizmów (Rysunek 3).
Dodanie ściółki trawowej do kołnierzy z PVC, które wcześniej zostały wzbogacone o koniki polne poddane stresowi lub pozbawione stresu, prowadzi do różnego stopnia rozkładu ściółki, co odzwierciedlają krzywe opisujące skumulowaną emisję CO2 z gleby w wyniku oddychania mikrobiologicznego (Rycina 3). Eksperymenty należy monitorować do momentu, aż krzywe skumulowane zaczną osiągać stan nasycenia.
| Stres | Bezstresowy | |
| Węgiel (%) | 48.44±0.32 | 44.73±0.46 |
| Azot (%) | 12.11±0.08 | 11.62±0.12 |
| Węgiel: Azot | 4.00±0.03 | 3.85±0.04 |
Tabela 1. Porównanie zawartości chemicznej trucheł koników polnych (roślinożerców) z warunków, w których występowało ryzyko drapieżnictwa (stres), oraz z warunków, w których ryzyko drapieżnictwa było nieobecne (brak stresu). Wartości przedstawiono jako średnia ± 1 błąd standardowy.

Rycina 1. Ilustracja projektu mezokosmosów terenowych użytych w eksperymencie oraz ogólny schemat eksperymentalnej oceny wpływu czynników ryzyka na rozkład ściółki.

Rycina 2. Wykres standardowego tempa metabolizmu roślinożerców w zależności od ich masy ciała. Dane zostały podzielone na dwie klasy zgodnie z zabiegiem eksperymentalnym: koniki polne z mezokosmosów zawierających drapieżniki (predacja) w celu wywołania stresu oraz mezokosmosów bez drapieżników (kontrola), a zatem bez wywołanego stresu. Dane pochodzą z nieopublikowanych prac D. Halweny i O.J. Schmitza z 2010 r.

Rysunek 3. Krzywe opisujące skumulowaną emisję CO2 przez pulę mikrobiologiczną podczas rozkładu eksperymentalnych wkładów z ściółki trawowej w kołnierzach z PVC. Wykres przedstawia wartości średnie ± 1 błąd standardowy. Wykres pokazuje, że gleby wzbogacone zwłokami zestresowanych koników polnych (drapieżnik) wykazują o 19% niższe (ANOVA F1,6 = 9,06, P < 0,05) tempo rozkładu ściółki roślinnej niż gleby wzbogacone zwłokami koników polnych bezstresowych (kontrola). Wstawka przedstawia aparat z kołnierzem z PVC w terenie. Rysunek powielono z Hawlena et al.6 Kliknij tutaj, aby wyświetlić większy rysunek.
Dyskusja
Przedstawiona tu sekwencja metod powinna pozwolić na systematyczny pomiar sposobu, w jaki stres u gatunków tworzących nadziemne sieci pokarmowe może pobudzać zbiorowiska mikroorganizmów glebowych w sposób, który prowadzi do zmiany późniejszego rozkładu ściółki roślinnej. Metody te są idealne do badania ekosystemów składających się z konsumentów stawonogów i roślin zielnych, ponieważ nienaruszone sieci pokarmowe mogą być ograniczone przestrzennie i zawarte w mezokosmosach.
Zmienność przestrzenna może występować ze względu na gradienty wilgotności tła gleby, temperatury gleby, zawartości składników odżywczych roślin itp. Projekt badania pozwala na ustawienie mescosmów i kołnierzy PVC w celu zablokowania wzdłuż przestrzennych gradientów środowiskowych, a tym samym uwzględnienia takiej zmienności środowiskowej podczas analizy efektów.
Chociaż przeznaczony do użytku w terenie, instrument do spektroskopii pierścieniowej (Picarro Inc., Santa Clara, CA, USA; Model: G1101-i) odczyty są wrażliwe na ruch. W związku z tym należy postawić centralną stację pomiarową na wszystkich działkach, na których znajdują się kołnierze z PCV i połączyć przyrząd z kołnierzami za pomocą odcinków rurek PVC.
Rozkład ściółki glebowej tradycyjnie mierzy się poprzez zamknięcie znanych ilości ściółki w workach z siatki z włókna szklanego, osadzenie worków na powierzchni gleby na polu i okresowe ponowne mierzenie worków w celu ilościowego określenia szybkości zanikania (rozkładu) ściółki. Ograniczeniem tej metody jest to, że nie można prześledzić losów rozłożonej materii ani określić udziału w mineralizacji CO2 dodatku do gleby (dodanej ściółki) z tła mineralizacji gleby CO2 . Przedstawiona tutaj metoda śledzenia wykorzystująca znakowany CO2 pomaga złagodzić to ograniczenie logistyczne.
Ekologia ekosystemów i biogeochemia funkcjonują w oparciu o paradygmat roboczy, zgodnie z którym ponieważ niezjedzona ściółka roślinna składa się z większości detrytusu, na podziemne procesy ekosystemowe tylko marginalny wpływ mają dopływy biomasy z wyższych poziomów troficznych w nadziemnych sieciach pokarmowych, takich jak same roślinożercy6. Istnieje jednak coraz więcej dowodów na to, że gatunki żyjące na wyższych poziomach troficznych ekosystemów mogą mieć głęboki wpływ na procesy zachodzące pod ziemią1,4,5. Przedstawiona tutaj metoda ma na celu poprawę kwantyfikacji wpływu wyższych poziomów troficznych, albo bezpośrednio poprzez biomasę z depozycji tuszy (np. 12, 13) lub wydalania i degestacji (np. 14, 15), albo pośrednio poprzez zmianę składu zbiorowisk roślinnych (np. 9) na obieg składników odżywczych w ekosystemie. Taka kwantyfikacja może pomóc w ujawnieniu mechanizmów, za pomocą których zwierzęta kontrolują dynamikę ekosystemu w ramach wspólnych wysiłków na rzecz ulepszenia i rewizji obecnego paradygmatu roboczego kontroli biotycznej nad funkcjonowaniem ekosystemu.
Oświadczenia
Nie mamy nic do ujawnienia.
Podziękowania
Te badania były wspierane przez fundusze z Instytutu Klimatu i Energii Yale oraz Narodowej Fundacji Nauki USA.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Spektroskop pierścieniowy z wnęką | Picarro Inc., Santa Clara, CA, USA | Model # G1101-i | |
| Respirometr CO2 | Qubit Systems, Kingston, ON, Kanada | Model # S151 | |
| 13C | Sigma-Aldrich | 372382 | |
| Spektrofotometr | Thermo, San Jose, CA, USA | Model: Spektrofotometr masowy Delta V Plus Isotope Ratio |
Bibliografia
- Wardle, D. A., et al. Ecological linkages between aboveground and belowground biota. Science. 304, 1629-1633 (2004).
- Hattenschwiler, S., Tiunov, A. V., Scheu, S. Biodiversity and litter decomposition in terrestrial ecosystems. Annu. Rev. Ecol. Syst. 36, 191-218 (2005).
- Cebrian, J. Role of first-order consumers in ecosystem carbon flow. Ecol. Lett. 7, 232-240 (2004).
- Aboveground-Belowground Linkages. Bardgett, R. D., Wardle, D. A. , Oxford University Press. Oxford. (2010).
- Schmitz, O. J., Hawlena, D., Trussell, G. C. Predator control of ecosystem nutrient dynamics. Ecol. Lett. 13, 1199-1209 (2010).
- Hawlena, D., Strickland, M. S., Bradford, M. A., Schmitz, O. J. Fear of predation slows plant litter decomposition. Science. 336, 1434-1438 (2012).
- Hawlena, D., Schmitz, O. J. Physiological stress as a fundamental mechanism linking predation to ecosystem functioning. Am. Nat. 176, 537-556 (2010).
- Stoks, R. D. eB. lock, M,, McPeek, M. A. Alternative growth and energy storage responses to mortality threats in damselflies. Ecol. Lett. 8, 1307-1316 (2005).
- Hawlena, D., Schmitz, O. J. Herbivore physiological response to predation risk and implications for ecosystem nutrient dynamics. Proc. Natl. Acad. Sci. U.S.A. 107, 15503-15507 (2010).
- Schimel, J. P., Weintraub, M. N. The implications of exoenzyme activity on microbial carbon and nitrogen limitation in soil: a theoretical model. Soil Biol. Biochem. 35, 1-15 (2003).
- Allison, S. D., et al. Low levels of nitrogen addition stimulate decomposition by boreal forest fungi. Soil Biol. Biochem. 41, 293-302 (2009).
- Bump, J. K., et al. Ungulate carcasses perforate ecological filters and create biogeochemical hotspots in forest herbaceous layers allowing trees a competitive advantage. Ecosystems. 12, 996-1007 (2009).
- Yang, L. H. Periodical cicadas and resource pulses in North American forests. Science. 306, 1565(2004).
- Belovsky, G. E., Slade, J. B. Insect herbivory accelerates nutrient cycling and increases plant production. Proc. Nat. Acad. Sci. U.S.A. 97, 14412(2000).
- Frost, C. J., Hunter, M. D. Recycling of nitrogen in herbivore feces: plant recovery, herbivore assimilation, soil retention, and leaching losses. Oecologia. 151, 42(2007).
Przedruki i uprawnienia
