Ten protokół demonstruje dwie metody inokulacji w celu wprowadzenia entomopatogenu grzyba Beauveria bassiana jako endofitu do fasoli zwyczajnej (Phaseolus vulgaris), w ramach przygotowań do kolejnych ocen endofitycznej kontroli biologicznej.
Artykuł metodologiczny
Ustanawianie entomopatogenów grzybów jako endofitów: w kierunku endofitycznej kontroli biologicznej
W tym artykule
Podsumowanie
Streszczenie
Beauveria bassiana to entomopatogen grzybów ze zdolnością do endofitycznej kolonizacji roślin. Jako endofit, B. bassiana może odgrywać rolę w ochronie roślin przed roślinożernością i chorobami. Protokół ten przedstawia dwie metody inokulacji w celu endofitycznego ustalenia B. bassiana w fasoli zwyczajnej (Phaseolus vulgaris), w ramach przygotowań do kolejnych ocen endofitycznej kontroli biologicznej. Rośliny są uprawiane z nasion sterylizowanych powierzchniowo przez dwa tygodnie przed otrzymaniem zabiegu B. bassiana 10,8 konidiów/ml (lub wody) stosowanego jako oprysk dolistny lub zraszanie gleby. Dwa tygodnie później rośliny są zbierane, a ich liście, łodygi i korzenie pobierane są w celu oceny endofitycznej kolonizacji grzybów. W tym celu próbki są indywidualnie sterylizowane powierzchniowo, cięte na wiele sekcji i inkubowane w pożywce z agoderem z dekstrozy ziemniaczanej przez 20 dni. Pożywka jest sprawdzana co 2-3 dni w celu zaobserwowania wzrostu grzybów związanych z sekcjami roślin i zarejestrowania występowania B. bassiana w celu oszacowania zakresu jego kolonizacji endofitycznej. Analizy skuteczności inokulacji porównują występowanie B. bassiana w danej części rośliny (tj. liściach, łodygach lub korzeniach) w różnych zabiegach i kontrolach. Oprócz metody inokulacji, konkretny wynik doświadczenia może zależeć od docelowego gatunku lub odmiany uprawy, użytego szczepu lub izolatu gatunku entomopatogenu grzyba oraz warunków wzrostu rośliny.
Wprowadzenie
Entomopatogeny grzybów są ważnymi regulatorami populacji owadów o znacznym potencjale jako mykopestycydy1. Dopiero niedawno wykazano jednak, że entomopatogeny grzybów występują jako endofity, zarówno naturalnie, jak i w odpowiedzi na różne metody inokulacji2. Funkcja ekologiczna entomopatogenów grzybów endofitycznych pozostaje w dużej mierze nieznana, ale niektóre badania wskazują na ich udział we wzroście roślin3,4, odporności roślinożerców5-8 i odporności na choroby9,10. Ogólnym celem przedstawionych tu metod jest wprowadzenie entomopatogenu grzyba jako endofitu, w ramach przygotowań do późniejszych ocen endofitycznej kontroli biologicznej.
Beauveria bassiana (Balsamo) Vullemin (Ascomycota: Hypocreales) jest najlepiej zbadanym entomopatogenem endofitycznego grzyba5-9,11-19 i jest dostępny jako komercyjny mykopestycyd. Metody inokulacji testowane w celu ustalenia B. bassiana jako endofitu obejmują zraszanie gleby14,17, otoczki nasienne18 i zanurzenia14, opatrunki korzonkowe13,15, zanurzenia korzeni i kłączy11,16,18, iniekcje łodyg17, opryski dolistne14,17,20 i opryski kwiatowe19. Korzystając z tych metod, naukowcy wprowadzili B. bassiana do bananów11, fasoli7, kakao13, kawy17, kukurydzy7, bawełny7, palmy daktylowej12, juty21, maku lekarskiego20, dyni7, sosny radiata18, sorgo14, pomidora7 i pszenicy7. Najnowsze dowody sugerują, że endofityczny B. bassiana może chronić rośliny nie tylko przed szkodnikami stawonogów5-7,22-27, ale także przed niektórymi patogenami roślin9.
Fasola zwyczajna (Phaseolus vulgaris) należy do upraw najbardziej narażonych na szkodniki i choroby. Może być dotknięty przez ponad 400 szkodników i 200 patogenów, których atak jest uważany za najbardziej ograniczający czynnik produkcji fasoli w regionach28. W związku z tym fasola zwyczajna może być doskonałą uprawą modelową do zbadania pełnego spektrum endofitycznej kontroli biologicznej przez B. bassiana. Jako pierwszy krok w tym kierunku, artykuł ten opisuje opryski dolistne i zraszanie gleby jako metody inokulacji w celu wprowadzenia B.bassiana jako endofitu do fasoli zwyczajnej.
Protokół
1. Rośliny
- Zdezynfekuj powierzchnię nasion fasoli (cv. Calima), zanurzając je na dwie minuty w 0,5% podchlorynie sodu i na dwie minuty w 70% etanolu. Przepłucz nasiona trzykrotnie w sterylnej wodzie destylowanej.
- Oceń skuteczność sterylizacji, wysiewając 100 μl wody z ostatniego płukania na podłoże PDA (potato dextrose agar) i inkubując płytkę przez 10 dni w temperaturze 25 °C. W przypadku stwierdzenia jakiegokolwiek wzrostu na płytce przerwij i rozpocznij eksperyment od nowa.
- Posadź nasiona w grupach po trzy w doniczkach zawierających sterylną mieszankę ziemi i piasku w stosunku 2:1. Przenieś doniczki do komory wzrostowej w temperaturze 25 °C, przy wilgotności względnej ok. 50% RH i 12-godzinnym fotoperiodzie. Tydzień po kiełkowaniu usuń dwie najsłabsze siewki. Podlewaj co 2-3 dni sterylną wodą destylowaną i nawoź w 10. oraz 20. dniu po posadzeniu wodnym roztworem nawozu NPK 15-15-15 o stężeniu 6 g/L.
2. Grzyb
- Należy pozyskać komercyjny preparat Beauveria bassiana szczep GHA (Mycotrol SE, Laverlam, Cali, Kolumbia).
- Aby wytworzyć kulturę wyjściową z pojedynczego zarodnika, należy zawiesić ok. jednej pętli szczepiącej konidiów w 1 ml 0,1% wodnego roztworu Triton-X 100 i mieszać w wirówce typu vortex przez 10 s. Następnie 100 μl zawiesiny należy wysiać na agar Noble 2,5% i inkubować przez 24 h w temperaturze 25 °C. Pojedyncze kiełkujące konidium należy przenieść na płytkę 100 mm zawierającą PDA i hodować do momentu pokrycia całej powierzchni płytki (ok. 3-4 tygodnie).
- W warunkach sterylnych należy zebrać wzrost grzyba z powierzchni podłoża i zawiesić go w 10 ml sterylnego 0,1% Triton-X 100. Mieszać w wirówce typu vortex przez jedną minutę. Następnie zawiesinę należy przefiltrować przez sterylną gazę w celu usunięcia strzępek i uzyskania zawiesiny wyjściowej.
- Do oszacowania stężenia konidiów w zawiesinie wyjściowej należy użyć hemocytometru. Aby ułatwić liczenie konidiów, należy przygotować 10 000-krotne rozcieńczenie seryjne roztworu wyjściowego, przenosząc za każdym razem 100 μl zawiesiny konidialnej do 900 μl 0,1% Triton-X 100 i mieszając w wirówce typu vortex przez 10 s przed kolejnym rozcieńczeniem.
- W celu przygotowania inokulum należy dostosować zawiesinę wyjściową do końcowego stężenia 108 konidia/ml, korzystając ze wzoru:
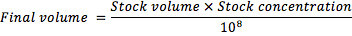
- Aby ocenić żywotność konidiów, należy wysiać 100 μl 10 000-krotnego rozcieńczenia na agar Noble 2,5% i inkubować przez 24 h w temperaturze 25 °C. Następnie należy zbadać trzy losowe grupy po 100 konidiów, aby oszacować procent kiełkowania. Konidium uznaje się za wykiełkowane, gdy wyrasta z niego widoczna rurka kiełkowa o długości przekraczającej połowę średnicy konidium. Zawiesiny należy używać tylko wtedy, gdy średni procent kiełkowania przekracza 90%.
3. Inokulacja
- Inokuluj rośliny, gdy osiągną stadium pierwszego prawdziwego liścia (ok. 14 dni po posadzeniu). Na 24 h przed inokulacją podlej rośliny sterylną wodą destylowaną do pełnej pojemności wodnej gleby.
- W metodzie oprysku liści użyj ręcznego atomizera, aby nanieść zawiesinę konidiów (próba) lub 0,1% Triton-X 100 (kontrola) na powierzchnię adaksjalną (górną) liści, aż do ich nasycenia. Przykryj górną część doniczki folią aluminiową, aby zapobiec spływaniu konidiów do gleby. Po oprysku przykryj rośliny plastikowym workiem na 24 h, aby utrzymać wysoką wilgotność sprzyjającą inwazji grzyba.
- W metodzie aplikacji doglebowej użyj cylindra miarowego, aby nanieść 10 ml zawiesiny konidiów (próba) lub 0,1% Triton-X 100 (kontrola) na powierzchnię gleby u podstawy rośliny.
- Po inokulacjach przenieś rośliny z powrotem do komór wzrostowych, rozmieszczając je zgodnie z randomizowanym układem blokowym. W tym samym eksperymencie należy utworzyć co najmniej cztery dodatkowe bloki eksperymentalne, aby umożliwić ocenę wzrostu roślin obok oceny kolonizacji endofitycznej.
4. Oceny
- Oceniaj eksperyment pojedynczo dla każdego bloku, wybierając bloki w losowej kolejności. Jest to szczególnie istotne w przypadku dużych eksperymentów, których nie można ocenić w ciągu jednego dnia.
- Przed przetworzeniem rośliny zmierz i zapisz jej wysokość od podstawy do merystemu wierzchołkowego. Następnie ostrożnie wyrwij roślinę i dokładnie wypłucz w bieżącej wodzie z kranu.
- Z każdej rośliny pobierz próbki dwóch listków, dwóch fragmentów korzenia i dwóch fragmentów łodygi. Próbki listków wybieraj losowo z pierwszego prawdziwego liścia rośliny. Następnie pobierz dwie próbki łodygi, każda o długości 3 cm, z części środkowej rośliny oraz z okolic powierzchni gleby. Na koniec pobierz dwie próbki korzenia palowego, również o długości 3 cm każda, z części środkowej korzenia oraz z odległości 1 cm od czubka korzenia. Umieść próbki w trzech oddzielnych papierowych torebkach i odpowiednio je opisz.
- Po umyciu i pobraniu próbek ze wszystkich roślin w bloku, rozpocznij od przetwarzania liści, następnie korzeni, a na końcu łodyg.
- Przeprowadź sterylizację powierzchni tkanek w sterylnej komorze z laminarnym przepływem powietrza, zgodnie z punktem 1.1 powyżej. Każdą próbkę wypłucz trzykrotnie poprzez zanurzenie w sterylnej wodzie destylowanej i pozostaw do wyschnięcia na sterylnym ręczniku papierowym. Następnie odetnij i odrzuć zewnętrzne krawędzie, gdzie endofity mogły zostać wyeliminowane w wyniku kontaktu z dezynfekcjami.
- Pokrój przyciętą próbkę na sześć sekcji, średnio 6x6 mm dla liści i 6 mm długości dla łodyg oraz korzeni. Wyłóż sześć sekcji na płytkę Petriego o średnicy 60 mm z podłożem PDA uzupełnionym antybiotykami: tetracykliną, streptomycyną i penicyliną w stężeniu 2 mg/L każdego z nich. Uszczelnij płytkę parafilmem i inkubuj w ciemności w temperaturze 25 °C. Z każdej rośliny otrzymuje się sześć płytek, po dwie na każdą część rośliny.
- Wymień wodę do płukania po przetworzeniu każdego bloku danej części rośliny. Przed wylaniem zużytej wody do płukania, wyłóż próbkę 100 μl na podłoże PDA i inkubuj przez 10 dni w temperaturze 25 °C, aby ocenić skuteczność sterylizacji. Jeśli pojawi się wzrost grzyba, nie uwzględniaj odpowiadających im próbek w analizach.
- Kontroluj płytki co 2-3 dni przez okres 20 dni, aby obserwować i zapisywać wzrost grzybów. Wycinaj i przenoś sekcje roślin wykazujące obecność endofitów grzybowych na płytki zawierające świeże podłoże PDA. Zapobiegnie to kontaminacji sąsiednich sekcji roślin na oryginalnej płytce.
- Zapisz wzrost B. bassiana z sekcji roślin. Beauveria bassiana można zidentyfikować po charakterystycznej, białej, gęstej grzybni, która na brzegach staje się kremowa lub bladożółta. W razie wątpliwości zamontuj preparat w kropli wody i obejrzyj pod mikroskopem, szukając kulistych konidiów i zygzakowatych konidioforów, charakterystycznych dla tego gatunku.
- Wykorzystaj dodatkowe bloki eksperymentalne do oceny wpływu zabiegów na biomasę roślin. Najpierw zmierz ich wysokość od podstawy do szczytu merystemu wierzchołkowego. Następnie ostrożnie wyrwij i umyj rośliny w wodzie z kranu, a potem pozostaw do wyschnięcia w temperaturze 45 °C przez trzy dni, aby określić ich suchą masę.
Wyniki
B. bassiana była w stanie kolonizować endofitycznie P. vulgaris w odpowiedzi na zastosowane zabiegi inokulacji (Rycina 1). Zarówno opryski liści, jak i aplikacje doglebowe doprowadziły do kolonizacji endofitycznej przez B. bassiana u ponad 80% traktowanych roślin (Rycina 2). Jednak zakres kolonizacji zależał od ocenianej części rośliny oraz zastosowanej metody inokulacji. Liście najlepiej reagowały na inokulację metodą oprysku. Z kolei korzenie reagowały wyłącznie na inokulację doglebową. Łodygi reagowały podobnie na obie metody inokulacji. B. bassiana nie została wykryta w żadnym z fragmentów roślin kontrolnych.
Niezależnie od zastosowanej kuracji, endofity inne niż B. bassiana wyrosły z 15% ocenianych fragmentów roślin, lecz zostały one usunięte z płytek z pożywką przed tym, jak zdołałyby zainfekować sąsiednie sekcje i wpłynąć na wyniki.
Rośliny traktowane i kontrolne były widocznie nieodróżnialne dwa tygodnie po inokulacjach. Nie stwierdzono różnic w ich suchej masie ani w ich wysokości.

Rycina 1. Reprezentatywne wyniki zabiegów inokulacji w celu kolonizacji endofitycznej roślin fasoli (Phaseolus vulgaris cv. Calima) przez Beauveria bassiana. Górny lewy róg: płytki kontrolne bez wzrostu. Górny prawy róg: endofit grzybowy z przekroju rośliny kontaminujący całą płytkę. Dolny lewy róg: B. bassiana rosnący z dwóch przekrojów rośliny. Dolny prawy róg: endofityczne konidia i konidiofory B. bassiana widoczne pod mikroskopem.

Rycina 2. Wpływ zabiegów inokulacji na kolonizację endofityczną roślin fasoli (Phaseolus vulgaris cv. Calima) przez Beauveria bassiana, dwa tygodnie po inokulacjach szczepem GHA. Procent kolonizacji reprezentuje liczbę skolonizowanych fragmentów roślin podzieloną przez liczbę fragmentów poddanych hodowli.
Dyskusja
Wiele czynników może wpływać na konkretny wynik eksperymentu mającego na celu ustalenie entomopatogenu grzyba jako endofitu. Nasze wyniki pokazują, że metoda inokulacji jest jedną z nich. Czynniki biologiczne, z którymi należy eksperymentować, obejmują wybrany gatunek rośliny uprawnej lub odmianę oraz zastosowany szczep lub izolat gatunku entomopatogenu grzyba. Inne czynniki, które należy wziąć pod uwagę, to stężenie inokulum, wiek rośliny podczas inokulacji oraz warunki wzrostu rośliny.
Idealnie byłoby, gdyby metoda inokulacji powodowała ogólnoustrojową kolonizację roślin przez entomopatogen grzyba14,17,18,21. Zamiast tego wydaje się, że metody inokulacji mają tendencję do faworyzowania określonego wzorca lokalnej kolonizacji. Na przykład w przypadku kawy opryski dolistne sprzyjają kolonizacji liści, podczas gdy zraszanie gleby sprzyja kolonizacji korzeni17. Znaleźliśmy ten sam wzór w przypadku fasoli zwyczajnej. Ostatecznie wybór metody inokulacji powinien być podyktowany zamierzoną lokalizacją endofitu w roślinie, przypuszczalnie pasującą do niszy docelowego roślinożercy lub patogenu roślinnego.
Chociaż jest to powszechnie stosowane, wykrywanie endofitów i oznaczanie ilościowe na podstawie kultur pożywek może być kosztowne, trudne i podatne na błędy. Na przykład, w sumie 10 800 sekcji roślin (posianych na 1 800 szalkach Petriego) zostało ocenionych w eksperymencie mającym na celu optymalizację inokulacji B. bassiana na bananie16. Spośród nich 4496 sekcji zostało skolonizowanych przez domniemanego B. bassiana, zidentyfikowanego głównie na podstawie morfologii kolonii. Oczywiste jest, że mikroskopijna weryfikacja gatunków dla każdej kolonii byłaby pożądanym, ale nieosiągalnym krokiem. Z drugiej strony, 1176 sekcji zostało skolonizowanych przez inne grzyby i zostało odrzuconych i potraktowanych jako brakujące dane16. Istnieje jednak prawdopodobieństwo, że B. bassiana był słabym konkurentem lub wolniej się rozwijał i mógł w końcu wyłonić się z tych sekcji, gdyby dano mu wystarczająco dużo czasu. W związku z tym metody wykrywania endofitów oparte na posiewach są podatne na wyniki fałszywie dodatnie i fałszywie ujemne. W związku z tym opracowanie bardziej wiarygodnych metod wykrywania i kwantyfikacji, na przykład opartych na testach reakcji łańcuchowej polimerazy (PCR)20,21,24, jest dobrze uzasadnione.
Ostatecznym celem eksperymentów z inokulacją powinno być opracowanie skutecznego leczenia, które zapewni trwałą ogólnoustrojową odporność na roślinożerność i/lub choroby. Prawdopodobna, ale jak dotąd nieprzetestowana, hipoteza głosi, że zakres kolonizacji endofitycznej powinien korelować dodatnio z zakresem oporności za pośrednictwem endofitów. Naturalnym kolejnym krokiem po udoskonaleniu metod inokulacji może być zatem zbadanie tej korelacji. Kilka protokołów wideo może pomóc naukowcom w zaprojektowaniu odpowiedniego testu odporności dla docelowego szkodnika lub patogenu29-31. Ostatecznie to właśnie ten test zadecyduje o powodzeniu metody inokulacji i związanym z nią potencjale endofitycznej kontroli biologicznej.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Produkcja i eksperymentalna praca przedstawiona tutaj odzwierciedlają oddaną i entuzjastyczną pomoc Reynaldo Pareja. Projekt został sfinansowany przez kolumbijski Departament Administracyjny ds. Nauki, Technologii i Innowacji (Colciencias) oraz z grantu Fundacji Billa i Melindy Gatesów w ramach inicjatywy Grand Challenges Explorations.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| ODCZYNNIKI | |||
| firmy | odczynnikiem/materiałem | Numer | |
| Mycotrol SE | Laverlam | 4167 | |
| Agar szlachetny | Sigma | A5431-250G | |
| Sól sodowa penicyliny G | szalka Petriego Sigma | P3032-25MU | |
| (100 x 15 mm) | Fisher | 08-757-12 | |
| Szalka Petriego (60 x 15 mm) | Fisher | 08-757-13A | |
| Agar z dekstrozą ziemniaczaną | Difco | 213400 | |
| Zwykły wybielacz (NaOCl) | CLOROX | N/A | |
| Sól siarczanu streptomycyny | Sigma | S6501-25G | |
| Tetracyklina | Sigma | T3258-25G | |
| Potrójna pigwa (NPK) | ABOCOL | N/A | |
| Triton X-100 | Sigma | X-100 | |
| EQUIPMENT | |||
| Szafa bezpieczeństwa biologicznego | NuAire | NU-425-600 | |
| Hemocytometr | Fisher | 02-671-10 | |
| Mikroskop Leica DM LB | Leica | N/A | |
Bibliografia
- Vega, F. E., Meyling, N. V., Luangsa-ard, J. J., Blackwell, M. Fungal entomopathogens in Insect Pathology. Vega, F. E., Kaya, H. K. , Elsevier. San Diego. 171-220 (2012).
- Vega, F. E. Insect pathology and fungal endophytes. Journal of invertebrate pathology. 98, 277-279 (2008).
- Sasan, R. K., Bidochka, M. J. The insect-pathogenic fungus Metarhizium robertsii (Clavicipitaceae) is also an endophyte that stimulates plant root development. American journal of botany. 99, 101-107 (2012).
- Elena, G. J., Beatriz, P. J., Alejandro, P. Metarhizium anisopliae (Metschnikoff) Sorokin promotes growth and has endophytic activity in tomato plants. Advances in biological research. 5, 22-27 (2011).
- Bing, L. A., Lewis, L. C. Suppression of Ostrinia nubilalis (Hübner)(Lepidoptera: Pyralidae) by endophytic Beauveria bassiana (Balsamo) Vuillemin. Environmental entomology. 20, 1207-1211 (1991).
- Akello, J., Dubois, T., Coyne, D., Kyamanywa, S. Endophytic Beauveria bassiana in banana (Musa spp.) reduces banana weevil (Cosmopolites sordidus) fitness and damage. Crop protection. 27, 1437-1441 (2008).
- Gurulingappa, P., Sword, G. A., Murdoch, G., McGee, P. A. Colonization of crop plants by fungal entomopathogens and their effects on two insect pests when in planta. Biological. 55, 34-41 (2010).
- Akello, J., Dubois, T., Coyne, D., Kyamanywa, S. Effect of endophytic Beauveria bassiana on populations of the banana weevil, Cosmopolites sordidus, and their damage in tissue-cultured banana plants. Entomologia experimentalis et applicata. 129, 157-165 (2008).
- Ownley, B. H., et al. Beauveria bassiana: Endophytic colonization and plant disease control. Journal of invertebrate pathology. 98, 267-270 (2008).
- Ownley, B. H., Gwinn, K. D., Vega, F. E. Endophytic fungal entomopathogens with activity against plant pathogens: ecology and evolution. BioControl. 55, 113-128 (2010).
- Akello, J., et al. Beauveria bassiana (Balsamo) Vuillemin as an endophyte in tissue culture banana (Musa spp.). Journal of invertebrate pathology. 96, 34-42 (2007).
- Gómez-Vidal, S., Lopez-Llorca, L. V., Jansson, H. B., Salinas, J. Endophytic colonization of date palm (Phoenix dactylifera L.) leaves by entomopathogenic fungi. Micron. 37, 624-632 (2006).
- Posada, F., Vega, F. E. Establishment of the fungal entomopathogen Beauveria bassiana (Ascomycota: Hypocreales) as an endophyte in cocoa seedlings (Theobroma cacao). Mycologia. 97, 1195-1200 (2005).
- Tefera, T., Vidal, S. Effect of inoculation method and plant growth medium on endophytic colonization of sorghum by the entomopathogenic fungus Beauveria bassiana. BioControl. 54, 663-669 (2009).
- Posada, F., Vega, F. E. Inoculation and colonization of coffee seedlings (Coffea arabica L.) with the fungal entomopathogen Beauveria bassiana (Ascomycota: Hypocreales. Mycoscience. 47, 284-289 (2006).
- Akello, J., Dubois, T., Coyne, D., Kyamanywa, S. The effects of Beauveria bassiana dose and exposure duration on colonization and growth of tissue cultured banana (Musa sp.) plants. Biological. 49, 6-10 (2009).
- Posada, F., Aime, M. C., Peterson, S. W., Rehner, S. A., Vega, F. E. Inoculation of coffee plants with the fungal entomopathogen Beauveria bassiana (Ascomycota: Hypocreales). Mycological research. 111, 748-757 (2007).
- Brownbridge, M., Reay, S. D., Nelson, T. L., Glare, T. R. Persistence of Beauveria bassiana (Ascomycota: Hypocreales) as an endophyte following inoculation of radiata pine seed and seedlings. Biological control. 61, 194-200 (2012).
- Posada, F. J., Chaves, F. C., Gianfagna, T. J., Pava-Ripoll, M., Hebbar, P. Establishment of the fungal entomopathogen Beauveria bassiana as an endophyte in cocoa pods (Theobroma cacao L.). Revista U.D.C.A. actualidad & divulgación científica. 13, 71-78 (2010).
- Quesada-Moraga, E., Landa, B. B., Muñoz-Ledesma, J., Jiménez-Díaz, R. M., Santiago-Alvarez, C. Endophytic colonisation of opium poppy, Papaver somniferum, by an entomopathogenic Beauveria bassiana strain. Mycopathologia. 161, 323-329 (2006).
- Biswas, C., Dey, P., Satpathy, S., Satya, P. Establishment of the fungal entomopathogen Beauveria bassiana as a season long endophyte in jute (Corchorus olitorius) and its rapid detection using SCAR marker. BioControl. , 1-7 (2011).
- Bing, L. A., Lewis, L. C. Occurrence of the entomopathogen Beauveria bassiana (Balsamo) Vuillemin in different tillage regimes and in Zea mays L. and virulence towards Ostrinia nubilalis (Hübner). Agriculture, ecosystems & environment. 45, 147-156 (1993).
- Akello, J., Sikora, R. Systemic acropedal influence of endophyte seed treatment on Acyrthosiphon pisum and Aphis fabae offspring development and reproductive fitness. Biological. 61, 215-221 (2012).
- Reddy, N. P., Ali Khan, A. P., Devi, U. K., Sharma, H. C., Reineke, A. Treatment of millet crop plant (Sorghum bicolor) with the entomopathogenic fungus (Beauveria bassiana) to combat infestation by the stem borer, Chilo partellus Swinhoe (Lepidoptera: Pyralidae. Journal of Asia Pacific. 12, 221(2009).
- Quesada-Moraga, E., Muñoz-Ledesma, F. J., Santiago-Alvarez, C. Systemic protection of Papaver somniferum L. against Iraella luteipes (Hymenoptera: Cynipidae) by an endophytic strain of Beauveria bassiana (Ascomycota: Hypocreales). Environmental entomology. 38, 723-730 (2009).
- Cherry, A. J., Banito, A., Djegui, D., Lomer, C. Suppression of the stem-borer Sesamia calamistis (Lepidoptera; Noctuidae) in maize following seed dressing, topical application and stem injection with African isolates of Beauveria bassiana. International journal of pest management. 50, 67-73 (2004).
- Gurulingappa, P., McGee, P. A., Sword, G. Endophytic Lecanicillium lecanii and Beauveria bassiana reduce the survival and fecundity of Aphis gossypii following contact with conidia and secondary metabolites. Crop protection. 30, 349-353 (2011).
- van Schoonhoven, A., Voysest, O. Common beans in Latin America and their constraints in Bean production problems in the tropics. Schwartz, H. F., Pastor-Corrales, M. A. , Second, CIAT. Cali. 33-57 (1989).
- De Vos, M., Jander, G. Choice and no-choice assays for testing the resistance of A. thaliana to chewing insects. J. Vis. Exp. (15), e683(2008).
- Parsa, S., Sotelo, G., Cardona, C. Characterizing herbivore resistance mechanisms: spittlebugs on Brachiaria spp. as an example. J. Vis. Exp. (52), e3047(2011).
- Atamian, H., Roberts, P., Kaloshian, I. High and low throughput screens with root-knot nematodes Meloidogyne spp. J. Vis. Exp. (61), e3629 (2012).
Przedruki i uprawnienia
