Melanina naskórkowa jest indukowana przez miejscowe stosowanie forskoliny w mysim modelu człowieka o jasnej karnacji, wrażliwego na promieniowanie UV. Farmakologiczna manipulacja poziomami cAMP w skórze i ciemnienie naskórka silnie chronią przed stanem zapalnym o podłożu UV (oparzenia słoneczne), mierzonym za pomocą testu minimalnej dawki rumieniowej (MED).
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Farmakologiczna indukcja melaniny naskórka i ochrona przed oparzeniami słonecznymi w humanizowanym modelu myszy
W tym artykule
Podsumowanie
Streszczenie
Czystość skóry, wrażliwość na promieniowanie UV i ryzyko raka skóry korelują z fizjologiczną funkcją receptora melanokortyny 1, białka sygnalizacyjnego sprzężonego z GS znajdującego się na powierzchni melanocytów. Mc1r stymuluje cyklazę adenylową i produkcję cAMP, co z kolei zwiększa produkcję melaniny w melanocytach w skórze. W celu zbadania mechanizmów, za pomocą których sygnalizacja Mc1r chroni skórę przed uszkodzeniem UV, badanie to opiera się na modelu mysim z "humanizowaną skórą" opartą na naskórkowej ekspresji czynnika komórek macierzystych (Scf). Transgeniczne myszy K14-Scf zatrzymują melanocyty w naskórku, a zatem mają zdolność odkładania melaniny w naskórku. W tym modelu zwierzęcym status MC1r typu dzikiego skutkuje silnym osadzaniem się czarnego pigmentu eumelaniny i fenotypem chronionym przed promieniowaniem UV. Natomiast zwierzęta K14-Scf z wadliwą zdolnością sygnalizacyjną Mc1r wykazują czerwono-blond pigmentację, bardzo mało eumelaniny w skórze i fenotyp wrażliwy na promieniowanie UV. Rozumując, że odkładanie się eumelaniny może być wzmocnione przez środki miejscowe, które naśladują sygnalizację Mc1r, stwierdziliśmy, że bezpośrednie zastosowanie ekstraktu z forskoliny na skórę myszy o jasnej karnacji z wadami Mc1r spowodowało silną indukcję eumelaniny i ochronę przed promieniowaniem UV 1. Tutaj opisujemy metodę przygotowania i stosowania naturalnego ekstraktu z korzenia zawierającego forskolinę u myszy o jasnej karnacji K14-Scf i przedstawiamy metodę pomiaru wrażliwości na promieniowanie UV poprzez określenie minimalnej dawki rumieniowej (MED). Korzystając z tego modelu zwierzęcego, można zbadać, w jaki sposób indukcja cAMP naskórka i melanizacja skóry wpływają na reakcje fizjologiczne na ekspozycję na promieniowanie UV.
Wprowadzenie
Częstość występowania czerniaka, najbardziej śmiertelnej formy raka skóry, dramatycznie wzrosła w ciągu ostatnich kilkudziesięciu lat w Stanach Zjednoczonych, szczególnie wśród osób o jasnej karnacji. Silne dowody molekularne i epidemiologiczne wskazują, że promieniowanie UV jest głównym czynnikiem sprawczym środowiskowym 2-5. Zwiększona ekspozycja na promieniowanie UV w postaci ekspozycji na słońce i korzystania z solarium może być odpowiedzialna za znaczny wzrost zachorowalności na czerniaka 6-7. Ryzyko czerniaka wydaje się być szczególnie związane z oparzeniami słonecznymi 8, zwłaszcza tymi we wczesnym okresie życia 9-10. Ryzyko oparzeń słonecznych jest związane nie tylko z dawką i intensywnością ekspozycji na promieniowanie UV, ale także z dziedzicznymi czynnikami wpływającymi na reakcję skóry na promieniowanie UV. Pigmentacja skóry jest jednym z najważniejszych czynników wpływających na wrażliwość na promieniowanie UV, ryzyko oparzeń słonecznych i ryzyko zachorowania na raka. Czerniak występuje około dwadzieścia razy częściej u osób o jasnej karnacji w porównaniu z osobami o ciemnej karnacji w wieku 11-13 lat.
Melanina, pigment wytwarzany przez melanocyty w naskórku, jest głównym wyznacznikiem cery. Melanina występuje w dwóch głównych odmianach: (1) eumelanina, ciemnobrązowy/pigment skutecznie pochłaniający energię promieniowania UV oraz (2) feomelanina, czerwonawy/blond pigment mniej skuteczny w zapobieganiu przenikaniu fotonów UV do skóry. Kolor skóry, wrażliwość na promieniowanie UV i ryzyko czerniaka są w dużej mierze determinowane przez zawartość eumelaniny w naskórku 14-15. Im więcej eumelaniny w naskórku, tym mniej fotonów UV może wniknąć w skórę. Ze względu na niski wrodzony poziom eumelaniny, osoby o jasnej karnacji są znacznie bardziej podatne na ostre i przewlekłe skutki promieniowania UV 16-18.
Pigmentacja skóry, ryzyko czerniaka i zdolność do "opalania" po ekspozycji na promieniowanie UV korelują ze zdolnością sygnalizacyjną receptora melanokortyny 1 (Mc1r), sprzężonego z Gs siedmioma transbłonowymi receptorami powierzchniowymi na melanocytach 19-22. Kiedy Mc1r wiąże swój pokrewny ligand o wysokim powinowactwie, hormon stymulujący α-melanocyty (α-MSH), następuje aktywacja cyklazy adenylowej i produkcja drugiego przekaźnika cAMP 23. Normalna reakcja fizjologiczna skóry po ekspozycji na promieniowanie UV obejmuje naskórkowe wytwarzanie α-MSH przez keratynocyty 24-29. My i inni stawiamy hipotezę, że α-MSH pochodzący z keratynocytów wiąże się z Mc1r na melanocytach naskórka, inicjując dalszą produkcję drugiego przekaźnika cAMP poprzez aktywację cyklazy adenylowej 30. Poziomy cAMP kontrolują wiele aspektów różnicowania melanocytów, w tym szlaki przeżycia, naprawę DNA i syntezę pigmentu. Sygnalizacja Mc1r i cAMP wyraźnie indukują poziom enzymów pigmentowych i produkcję eumelaniny. Gdy sygnalizacja Mc1r jest nienaruszona, a poziom melanocytarnego cAMP jest solidny, wytwarzana jest eumelanina, a skóra ciemnieje. Jeśli jednak sygnalizacja Mc1r jest uszkodzona, a poziomy cAMP w cytoplazmie pozostają niskie, zamiast tego wytwarzana jest feomelanina 1. Synteza eumelaniny może być stymulowana farmakologicznie przez środki podnoszące poziom cAMP 1,14,31-35.
Ponieważ białko Mc1r jest głównym regulatorem ryzyka czerniaka u ludzi 36-46, jesteśmy zainteresowani mechanizmami, dzięki którym Mc1r chroni melanocyty przed kancerogenezą wywołaną promieniowaniem UV. Jako podstawę naszych badań wygenerowaliśmy transgeniczny mysi model wariantu Mc1r na czystym tle genetycznym C57BL/6 1. W tym modelu czynnik komórek macierzystych (Scf) ulega konstytutywnej ekspresji w naskórku podstawnym, a melanocyty międzypęcherzykowe naskórka są zatrzymywane w skórze przez całe życie 47, w przeciwieństwie do myszy nietransgenicznych, u których melanocyty lokalizują się w skórze właściwej w mieszkach włosowych. Po włączeniu transgenu K14-Scf naskórek staje się pigmentowany szczególnymi pigmentami melaniny charakterystycznymi dla szczepu pigmentowego zwierzęcia 1. Myszy K14-Scf na tle genetycznym C57BL / 6 z sygnalizacją MC1r typu dzikiego mają kruczoczarną skórę charakteryzującą się bardzo wysokim poziomem pigmentu eumelaniny. Nic dziwnego, że zwierzęta te są bardzo odporne na promieniowanie UV. W przeciwieństwie do tego, genetycznie dopasowane zwierzęta K14-Scf C57BL/6, które są nosicielami zmutowanego nieaktywnego Mc1r, prawie nie mają eumelaniny w naskórku. Zamiast tego te zwierzęta "przedłużające" (Mc1re / e) mają jasną karnację skóry spowodowaną odkładaniem się pigmentu feomelaniny (ryc. 1A) i są znacznie bardziej wrażliwe na promieniowanie UV 48-49.
<>jove_contentWykazano, że związki farmakologiczne o właściwościach chemicznych umożliwiających przenikanie do skóry silnie indukują eumelaninę w modelu zwierzęcym K14-Scf przedłużającym (Mc1re/e) poprzez bezpośrednie manipulowanie poziomem cAMP w melanocytach naskórka w skórze. Regulacja w górę melaniny w tym modelu została zgłoszona przez aktywację cyklazy adenylowej 1, a także hamowanie fosfodiesterazy 4 35. W tym artykule pokazujemy przygotowanie i miejscowe stosowanie forskoliny w rozszerzeniu (Mc1re/e) K14-Scf zwierząt, które modelują człowieka o jasnej karnacji wrażliwego na promieniowanie UV. Wykazaliśmy, że stosowanie leku dwa razy dziennie sprzyja przyspieszonej melanizacji, że ciemnienie skóry jest spowodowane naskórkowym odkładaniem się pigmentu melaniny i że indukowana melanina naskórka chroni przed oparzeniami słonecznymi wywołanymi promieniowaniem UV poprzez pomiar "minimalnej dawki rumieniowej" (MED) 48.Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie forskoliny do podania miejscowego z surowego ekstraktu z korzenia rośliny Plectranthus barbatus (Coleus forskohlii)
- Protokoły dla eksperymentów na myszach były zgodne z wytycznymi dotyczącymi etycznego postępowania w opiece nad zwierzętami i ich wykorzystywania oraz zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Korzystania ze Zwierząt na Uniwersytecie w Kentucky (Protokół nr 00768M2004). Ekstrakt z korzenia przygotowano w stężeniu 40% masa/objętość w standardowej bazie dermatologicznej składającej się z 70% etanolu i 30% glikolu propylenowego.
- Odważyć 200 g surowego ekstraktu z korzenia forskolinii i przenieść go do zlewki. Aby przygotować 500 ml 40% (m/v) roztworu, resuspender 200 g surowego ekstraktu z korzenia forskolinii, dodając większość, ale nie całość objętości nośnika (70% etanolu, 30% glikolu propylenowego), tak aby objętość roztworu wyniosła około 450 ml.
- Mieszać przez godzinę w temperaturze pokojowej. Roztwór będzie dość lepki i może wymagać ręcznego wytrząsania, aby „wprowadzić” ekstrakt do roztworu, zanim mieszadło magnetyczne będzie mogło przejąć proces.
- Po godzinie mieszania przelać mieszaninę do cylindra miarowego i uzupełnić objętość do 500 ml, używając nośnika do „wypłukania” zlewki, w której mieszano zawiesinę (aby zmaksymalizować odzysk forskoliny ze zlewki).
- Przenieść zawiesinę do polipropylenowych probówek wiriówek o pojemności 50 ml. Wirować (1,500 ×g, temperatura pokojowa, 15 min) przy użyciu wirówki stołowej. Na tym etapie materiał nierozpuszczalny zostanie mocno zagęszczony, co pozwoli na łatwe odlanie supernatantu.
- Przefiltrować roztwór przez membranę z octanu celulozy o wielkości porów 0,22 μm, aby usunąć wszelkie pozostałości nierozpuszczalnego materiału z ekstraktu. Stosujemy system filtracji na butelkę przeznaczony do hodowli komórkowych, korzystając z dołączonych do urządzenia filtrów wstępnych, aby zapobiec przedwczesnemu zapychaniu membrany przez nierozpuszczalne składniki ekstraktu z korzenia. Przy przygotowywaniu dużych objętości ekstraktu filtrować około 100 ml na raz, wymieniając filtr wstępny po każdej dodanej objętości.
- Przechowywany w temperaturze pokojowej ekstrakt zachowuje aktywność biologiczną przez okres do jednego roku.
2. Przygotowanie myszy C57Bl/6 K14-Scf do zabiegów miejscowych
- Usuń sierść z grzbietu zwierząt za pomocą strzyżarki elektrycznej. Podaj zwierzętom krótkotrwałe znieczulenie wziewne izofluranem, aby ułatwić strzyżenie grzbietu strzyżarką elektryczną wyposażoną w głowicę chirurgiczną 0,25 mm (Fisher Scientific). W celu zminimalizowania ryzyka przedawkowania środków znieczulających zaleca się stosowanie tylko jednego rodzaju anestezji (np. ketamina/ksylazyna). Nasycona komora inhalacyjna stwarza ryzyko zawodowe przy użytkowaniu poza wyciągiem i dostarcza zwierzętom nieznane ilości środka znieczulającego. W idealnym przypadku należy użyć precyzyjnego parownika.
- Aby usunąć pozostałe kikutowe włosy, poddaj zwierzęta działaniu chemicznego depilatora. Podaj zwierzęciu znieczulenie poprzez wtryskiwanie d.o. ketaminy w dawce 40 mg/kg oraz ksylazyny w dawce 4 mg/kg.
- Gdy zwierzęta zostaną odpowiednio znieczulone (co należy ocenić za pomocą testu uszczypnięcia palca), nałóż ilość kremu do depilacji wielkości opuszka palca na ostrzyżoną skórę grzbietu, używając palca w rękawiczce. Wcieraj krem w skórę przez 30-60 s lub do momentu, gdy włosy staną się wyraźnie widoczne w kremie podczas jego rozprowadzania. Pozostaw krem na skórze tylko przez minimalny czas wymagany do usunięcia włosów, ponieważ przedłużona ekspozycja prowadzi do oparzeń chemicznych skóry, uszkodzenia naskórka i śmierci w wyniku utraty ciągłości bariery naskórkowej.
- Wycieraj skórę grzbietu namoczonymi w wodzie gazikami wielokrotnie, aż do całkowitego usunięcia kremu. Osusz zwierzęta za pomocą miękkich ręczników papierowych i pozwól im dojść do siebie w ciepłym, oddzielnym miejscu (np. w czystych klatkach umieszczonych na macie grzewczej). Depiluj zwierzęta pojedynczo i ściśle monitoruj je przez cały czas trwania procedury.
3. Miejscowe podanie forskoliny lub kontroli nośnika
- Zwierzęta należy traktować pojedynczo. Krótko znieczulić wdychaniem izofluranu, umieszczając mysz na dopasowanym nylonowym filtrze przepuszczającym powietrze, pod którym w zamkniętym szklanym słoiku w dygestorium umieszczono nasączony izofluranem ręcznik papierowy. Narażać mysz na działanie izofluranu przez czas wystarczający do zahamowania ruchów mięśniowych, ale przy zachowaniu spontanicznego oddychania (zazwyczaj 10-20 sec). Zbyt długie przebywanie zwierzęcia w izofluranie doprowadzi do depresji oddechowej i śmierci. Lepiej zastosować dawkę mniejszą i w razie potrzeby krótko ponownie podać izofluran, niż przedawkować lek i ryzykować śmierć zwierzęcia.
- Wyjąć zwierzę z komory z izofluranem i położyć na czystej, chłonnej podkładce laboratoryjnej.
- Używając mikropipety 1 000 μl z jednorazową końcówką z polipropylenu, pobrać 400 μl 40% surowego ekstraktu z forskoliny (zwierzęta z grupy kontrolnej otrzymają samą mieszaninę 70% etanolu i 30% glikolu propylenowego).
- Nanieść ekstrakt na grzbiet zwierzęcia, kapiąc go na skórę, a następnie, używając boku końcówki pipety, rozprowadzić ekstrakt po skórze grzbietowej, aż zostanie ona całkowicie pokryta. Po aplikacji nie ma potrzeby osuszania skóry.
- Wrócić mysz do klatki i uważnie obserwować ją aż do momentu wybudzenia z narkozy.
- Aby efekty działania cAMP niezwiązane z pigmentem nie zakłócały eksperymentów nad wrażliwością na UV, należy przerwać wszystkie zabiegi miejscowe 2 dni przed ekspozycją na UV (efekt pigmentacyjny utrzymuje się przez kilka dni po ostatnim zabiegu miejscowym).
4. Pomiar koloru skóry metodą kolorymetrii refleksyjnej
- Krótkotrwale znieczul mysz za pomocą wziewnego izofluranu (patrz powyżej).
- Skalibruj kolorymetr Minolta, umieszczając przenośną głowicę na zestandaryzowanej białej powierzchni dostarczonej wraz z urządzeniem.
- Przyłóż przenośną głowicę pomiarową kolorymetru bezpośrednio do skóry grzbietowej zwierzęcia, upewniając się, że okrągły otwór o powierzchni 1 cm2 jest całkowicie dociśnięty do skóry. Wykonaj co najmniej trzy oddzielne pomiary w różnych obszarach skóry grzbietowej.
- Oblicz średnią wartość L* ± SD dla każdego zwierzęcia oraz dla każdej grupy badawczej. Kolorymetria refleksyjna może być przeprowadzana na dowolnym etapie eksperymentu.
5. Określanie wrażliwości na promieniowanie UV poprzez obliczenie „minimalnej dawki rumieniotwórczej” (MED)
- Użyć zwierząt, które zostały uprzednio poddane działaniu nośnika lub forskoliny, zgodnie z powyższym opisem. Znieczulić zwierzęta poprzez dostrzyczynowe wstrzyknięcie standardowej mieszaniny ketaminy i ksylazyny (patrz wyżej).
- Przygotować fragment taśmy blokującej promieniowanie UV do testów MED. Aby wykonać otwory w taśmie, należy użyć wzmocnionego dziurkacza z okrągłym wycięciem o powierzchni 1 cm2 (Rysunki 2A i B). Otwory o określonej wielkości i symetrycznym rozmieszczeniu w taśmie ułatwiają rozpoznawanie zmian skórnych po napromieniowaniu. Nad każdym otworem w taśmie należy nakleić mały, ale łatwo odczepialny kawałek taśmy, który można usunąć w określonych momentach podczas ekspozycji na UV, aby umożliwić podanie różnych dawek UV.
- Po odpowiednim uspokojeniu zwierząt, nałożyć taśmę na powierzchnię grzbietową. Podczas znieczulenia należy zawsze stosować środek nawilżający do oczu.
- Włączyć źródło UV składające się z dwóch lamp Westinghouse F15T8UV-B z szczytową emisją przy 313 nm i zakresem 280-370 nm. Pozostawić lampę do czasu ustabilizowania stałej mocy wyjściowej UV, mierzonej fotometrem UV z czujnikiem UVB (rozgrzanie się lamp zazwyczaj zajmuje kilka minut).
- Na podstawie szybkości transmisji UV zmierzonej fotometrem UV obliczyć czas ekspozycji na UV dla każdej pożądanej dawki. Na przykład, moc wyjściowa UVB naszej lampy wynosi 2,4 mW/cm2. Zatem, aby podać dawkę 5 kJ/m2, skóra musiałaby być wystawiona na promieniowanie UVB przez 208 s (co stanowi 3 min i 28 s), zgodnie z obliczeniami poniżej:
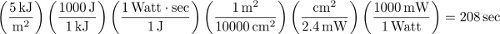
- Umieścić znieczulone zwierzęta (każde z nałożoną taśmą blokującą) stroną brzuszną do dołu, aby zapewnić równomierną ekspozycję na UV. Aby podać wybrane dawki promieniowania UV, należy sekwencyjnie usuwać małe taśmy blokujące zakrywające otwory, odsłaniając obszary skóry o powierzchni 1 cm2 na odpowiednie dawki promieniowania. Korzystając z powyższego przykładu, jeśli 40 kJ/m2 jest największą dawką w eksperymencie, zwierzę przebywałoby pod lampą łącznie przez 27 min i 47 s, a skóra w warunkach 40 kJ/m2 nie byłaby przykryta taśmą przez cały ten czas. Natomiast taśma przykrywająca obszar dla dawki 5 kJ/m2 powinna zostać usunięta, gdy do końca ekspozycji pozostanie 208 s. Moment usuwania taśm należy zaplanować tak, aby każda z warunków zakończyła się jednocześnie.
- Po ekspozycji na UV ostrożnie odkleić taśmę ze skóry grzbietowej, uważając, aby nie przerwać skóry gwałtownymi lub zbyt silnymi ruchami. Umieścić zwierzęta w ciepłym, cichym miejscu, aby umożliwić wybudzenie z narkozy.
- Monitorować myszy przez 24-48 h w celu wykrycia wyraźnych obszarów rumienia (zaczerwienienia) lub obrzęku w miejscach anatomicznych wystawionych na konkretną dawkę napromieniowania UV. Dokumentować znaleziska skórne fotograficznie.
- Wartość MED odpowiada minimalnej dawce UV, która wywołuje stan zapalny definiowany jako rumień i/lub obrzęk całego wystawionego na działanie promieniowania koła skóry. Należy pamiętać, że pigmentacja skóry może utrudniać wyznaczenie MED, jednak rumień i obrzęk zazwyczaj nadal można dokładnie ocenić, częściowo dzięki zdefiniowanemu kształtowi otworów w taśmie podczas ekspozycji na UV.
6. Analiza statystyczna
Analizę danych między grupami myszy wykonano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem post-hoc Bonferroniego (Graph Pad PRISM). Wartości p <0.05 uznano za istotne statystycznie.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Myszy C57BL/6 z genem K14-Scf uzyskano na tłach eumelanistycznych, feomelanistycznych lub amelanistycznych, zgodnie z opisem (Rysunek 1A). Kohorty myszy o jasnej skórze (rozszerzenie Mc1re/e, Tyr+/+) poddawano miejscowemu leczeniu, stosując dwukrotne dawki dobowe nośnika (70% etanol, 30% glikolu propylenowego) lub 40% surowego ekstraktu z korzenia Coleus forskohlii (80 μM na dawkę) przez 5 dni (Rysunek 2B). Wpływ leczenia miejscowego na pigmentację...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Korzystając ze zwierzęcego modelu człowieka o jasnej karnacji, stwierdzamy, że miejscowe stosowanie surowego ekstraktu z korzenia bogatego w forskolinę silnie przyciemnia naskórek poprzez stymulację produkcji melaniny w skórze. Melanizacja naskórka zależy od ekspresji czynnika komórek macierzystych w naskórku podstawnym, co ma miejsce w skórze ludzkiej, ale nie w genetycznie niezmodyfikowanej skórze myszy. Skóra grzbietowa niezmodyfikowanych genetycznie myszy nie ma wystarczającej liczby melanocytów międzypęcherzykowych,...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Autorzy pragną podziękować Malindzie Spry za pomoc techniczną. Wymieniamy również obecne i przeszłe źródła finansowania: National Cancer Institute (R01 CA131075, R01 CA131075-02S1), Wendy Will Case Cancer Research Fund, Markey Cancer Foundation, Children's Miracle Network oraz Jennifer and David Dickens Melanoma Research Foundation.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Reodczynniki | |||
| Coleus Forskoli ekstrakt 20% | Buckton Scott USA Inc. | nie dotyczy | Princeton, NJ |
| Isothesia, Isofluran , USP | Butler Schein | NCD 11695-6776-1 | Dublin, OH, USA |
| Ksylazyna | Anazyna do wstrzykiwań | LA04612 | Shenandoah, Iowa, USA |
| Ketamina HCl, USP | Putney | NDC 26637-411-01 | St. Joseph, MO, USA |
| Etanol | Decon Labs. | 2705 | |
| Glikol propylenowy | Adesco | 05751L | Solon, OH, Stany Zjednoczone |
| Krem do depilacji, Nair | Church Dwight | JF-11 4381322 | Priceton, NJ |
| EQUIPMENT | |||
| Bakteriobójcza lampa Hg UV-B | Westinghouse | F15T8UV-B | |
| Radiometr fotometr | Światło międzynarodowe | 1LT400A | Peabody, MA, Stany Zjednoczone |
| Chromametr | Konica Minolta | CR-400 | Ramsey, NJ, USA |
| Procesor danych dla chromametru CR-400 | Konica Monilta | DR-400 | Ramsey, NJ, USA |
Bibliografia
- D'Orazio, J. A., et al. Topical drug rescue strategy and skin protection based on the role of Mc1r in UV-induced tanning. Nature. 443, 340-344 (2006).
- Gallagher, R. P., et al. Suntan, sunburn, and pigmentation factors and the frequency of acquired melanocytic nevi in children. Similarities to melanoma: the Vancouver Mole Study. Arch Dermatol. , 126-770 (1990).
- Kraemer, K. H., Lee, M. M., Andrews, A. D., Lambert, W. C. The role of sunlight and DNA repair in melanoma and nonmelanoma skin cancer. The xeroderma pigmentosum paradigm. Arch Dermatol. 130, 1018-1021 (1994).
- Wang, Y., et al. Evidence of ultraviolet type mutations in xeroderma pigmentosum melanomas. Proc. Natl. Acad. Sci. U.S.A. 106, 6279-6284 (2009).
- Pleasance, E. D., et al. A comprehensive catalogue of somatic mutations from a human cancer genome. Nature. 463, 191-196 (2009).
- Weinstock, M. A., Fisher, D. E. Indoor ultraviolet tanning: what the data do and do not show regarding risk of melanoma and keratinocyte malignancies. J. Natl. Compr. Canc. Netw. 8, 867-873 (2010).
- Fisher, D. E., James, W. D. Indoor tanning--science, behavior, and policy. N. Engl. J. Med. 363, 901-903 (2010).
- Pfahlberg, A., Kolmel, K. F., Gefeller, O. Timing of excessive ultraviolet radiation and melanoma: epidemiology does not support the existence of a critical period of high susceptibility to solar ultraviolet radiation- induced melanoma. Br. J. Dermatol. 144, 471-475 (2001).
- Lew, R. A., Sober, A. J., Cook, N., Marvell, R., Fitzpatrick, T. B. Sun exposure habits in patients with cutaneous melanoma: a case control study. J. Dermatol. Surg. Oncol. 9, 981-986 (1983).
- Autier, P., Dore, J. F. Influence of sun exposures during childhood and during adulthood on melanoma risk. EPIMEL and EORTC Melanoma Cooperative Group. European Organisation for Research and Treatment of Cancer. Int. J. Cancer. 77, 533-537 (1998).
- Udayakumar, D., Mahato, B., Gabree, M., Tsao, H. Genetic determinants of cutaneous melanoma predisposition. Semin. Cutan. Med. Surg. 29, 190-195 (2010).
- Psaty, E. L., Scope, A., Halpern, A. C., Marghoob, A. A. Defining the patient at high risk for melanoma. Int. J. Dermatol. 49, 362-376 (2010).
- Tucker, M. A. Melanoma epidemiology. Hematol. Oncol. Clin. North Am. 23, 383-395 (2009).
- Abdel-Malek, Z. A., Knittel, J., Kadekaro, A. L., Swope, V. B., Starner, R. The melanocortin 1 receptor and the UV response of human melanocytes--a shift in paradigm. Photochem. Photobiol. 84, 501-508 (2008).
- Suzuki, I., et al. Participation of the melanocortin-1 receptor in the UV control of pigmentation. J. Investig. Dermatol. Symp. Proc. 4, 29-34 (1999).
- Gibson, G. E., Codd, M. B., Murphy, G. M. Skin type distribution and skin disease in Ireland. Ir. J. Med. Sci. 166, 72-74 (1997).
- Evans, R. D., et al. Risk factors for the development of malignant melanoma--I: Review of case-control studies. J. Dermatol. Surg. Oncol. 14, 393-408 (1988).
- Pack, G. T., Davis, J., Oppenheim, A. The relation of race and complexion to the incidence of moles and melanomas. Ann. N.Y. Acad. Sci. 100, 719-742 (1963).
- Valverde, P., Healy, E., Jackson, I., Rees, J. L., Thody, A. J. Variants of the melanocyte-stimulating hormone receptor gene are associated with red hair and fair skin in humans. Nat. Genet. 11, 328-330 (1995).
- Rees, J. L., Healy, E. Melanocortin receptors, red hair, and skin cancer. J. Investig. Dermatol. Symp. Proc. 2, 94-98 (1997).
- Beaumont, K. A., et al. Melanocortin MC(1) receptor in human genetics and model systems. Eur. J. Pharmacol. 660, 103-110 (2011).
- Palmer, J. S., et al. Melanocortin-1 receptor polymorphisms and risk of melanoma: is the association explained solely by pigmentation phenotype? Am. J. Hum. Genet. 66, 176-186 (2000).
- Haskell-Luevano, C., et al. Compounds that activate the mouse melanocortin-1 receptor identified by screening a small molecule library based upon the beta-turn. J. Med. Chem. 42, 4380-4387 (1999).
- Yamaguchi, Y., Hearing, V. J. Physiological factors that regulate skin pigmentation. Biofactors. 35, 193-199 (2009).
- Eves, P. C., MacNeil, S., Haycock, J. W. alpha-Melanocyte stimulating hormone, inflammation and human melanoma. Peptides. 27, 444-452 (2006).
- Slominski, A., Wortsman, J., Luger, T., Paus, R., Solomon, S. Corticotropin releasing hormone and proopiomelanocortin involvement in the cutaneous response to stress. Physiol. Rev. 80, 979-1020 (2000).
- Slominski, A., Wortsman, J. Neuroendocrinology of the skin. Endocr. Rev. 21, 457-487 (2000).
- Luger, T. A., et al. Role of epidermal cell-derived alpha-melanocyte stimulating hormone in ultraviolet light mediated local immunosuppression. Ann. N.Y. Acad. Sci. 885, 209-216 (1999).
- Chakraborty, A. K., et al. UV light and MSH receptors. Ann. N.Y. Acad. Sci. 885, 100-116 (1999).
- Cui, R., et al. Central Role of p53 in the Suntan Response and Pathologic Hyperpigmentation. Cell. 128, 853-864 (2007).
- Imokawa, G., Yada, Y., Hori, Y. Induction of melanization within hair bulb melanocytes in chinchilla mutant by melanogenic stimulants. J Invest Dermatol. 91, 106-113 (1988).
- Siegrist, W., et al. Interactions of alpha-melanotropin and agouti on B16 melanoma cells: evidence for inverse agonism of agouti. J. Recept. Signal Transduct Res. 17, 75-98 (1997).
- Abdel-Malek, Z., et al. The melanocortin-1 receptor is a key regulator of human cutaneous pigmentation. Pigment Cell Res. 13, Suppl 8. 156-162 (2000).
- Wood, J. M., Gibbons, N. C., Schallreuter, K. U. Melanocortins in human melanocytes. Cell Mol Biol (Noisy-le-grand). 52, 75-78 (2006).
- Khaled, M., Levy, C., Fisher, D. E. Control of melanocyte differentiation by a MITF-PDE4D3 homeostatic circuit. Genes Dev. 24, 2276-2281 (2010).
- Ghiorzo, P., et al. MC1R variation and melanoma risk in relation to host/clinical and environmental factors in CDKN2A positive and negative melanoma patients. Exp. Dermatol. , (2012).
- Cust, A. E., et al. MC1R genotypes and risk of melanoma before age 40 years: a population-based case-control-family study. Int. J. Cancer. 131, E269-E281 (2012).
- Ibarrola-Villava, M., et al. Genetic analysis of three important genes in pigmentation and melanoma susceptibility: CDKN2A, MC1R and HERC2/OCA2. Exp Dermatol. 19, 836-844 (2010).
- Scherer, D., et al. Melanocortin receptor 1 variants and melanoma risk: A study of 2 European populations. Int. J. Cancer. , (2009).
- Hoiom, V., et al. MC1R variation and melanoma risk in the Swedish population in relation to clinical and pathological parameters. Pigment Cell Melanoma Res. 22, 196-204 (2009).
- Galore-Haskel, G., et al. MC1R variant alleles and malignant melanoma risk in Israel. Eur. J. Cancer. 45, 2015-2022 (2009).
- Sturm, R. A. Skin colour and skin cancer - MC1R, the genetic link. Melanoma Res. 12, 405-416 (2002).
- Kennedy, C., et al. Melanocortin 1 receptor (MC1R) gene variants are associated with an increased risk for cutaneous melanoma which is largely independent of skin type and hair color. J. Invest. Dermatol. 117, 294-300 (2001).
- Box, N. F., et al. MC1R genotype modifies risk of melanoma in families segregating CDKN2A mutations. Am. J. Hum. Genet. 69, 765-773 (2001).
- Rees, J. L. The melanocortin 1 receptor (MC1R): more than just red hair. Pigment Cell Res. 13, 135-140 (2000).
- Valverde, P., et al. The Asp84Glu variant of the melanocortin 1 receptor (MC1R) is associated with melanoma. Hum. Mol. Genet. 5, 1663-1666 (1996).
- Kunisada, T., et al. Transgene expression of steel factor in the basal layer of epidermis promotes survival, proliferation, differentiation and migration of melanocyte precursors. Development. 125, 2915-2923 (1998).
- Vanover, J. C., et al. Stem cell factor rescues tyrosinase expression and pigmentation in discreet anatomic locations in albino mice. Pigment Cell Melanoma Res. 22, 827-838 (2009).
- Spry, M. L., et al. Prolonged treatment of fair-skinned mice with topical forskolin causes persistent tanning and UV protection. Pigment Cell Melanoma Res. 22, 219-229 (2009).
- Takayama, H., La Rochelle, W. J., Anver, M., Bockman, D. E., Merlino, G. Scatter factor/hepatocyte growth factor as a regulator of skeletal muscle and neural crest development. Proc. Natl. Acad. Sci. U.S.A. 93, 5866-5871 (1996).
- Kunisada, T., et al. Murine cutaneous mastocytosis and epidermal melanocytosis induced by keratinocyte expression of transgenic stem cell factor. J. Exp. Med. , 187-1565 (1998).
- Takeuchi, T., Kobunai, T., Yamamoto, H. Genetic control of signal transduction in mouse melanocytes. J. Invest. Dermatol. 92, 239S-242S (1989).
- Ozeki, H., Ito, S., Wakamatsu, K., Hirobe, T. Chemical characterization of hair melanins in various coat-color mutants of mice. J. Invest. Dermatol. 105, 361-366 (1995).
- Lamoreux, M. L., Wakamatsu, K., Ito, S. Interaction of major coat color gene functions in mice as studied by chemical analysis of eumelanin and pheomelanin. Pigment Cell Res. 14, 23-31 (2001).
- Barbini, P., et al. Instrumental measurement of skin colour and skin type as risk factors for melanoma: a statistical classification procedure. Melanoma Res. 8, 439-447 (1998).
- Takiwaki, H. Measurement of skin color: practical application and theoretical considerations. J. Med. Invest. 44, 121-126 (1998).
- Anderson, R. R., Parrish, J. A. The optics of human skin. J. Invest. Dermatol. 77, 13-19 (1981).
- Rubegni, P., et al. Relationship between skin color and sun exposure history: a statistical classification approach. Photochem. Photobiol. 65, 347-351 (1997).
- Chen, J., Hammell, D. C., Spry, M., D'Orazio, J. A., Stinchcomb, A. L. In vitro skin diffusion study of pure forskolin versus a forskolin-containing Plectranthus barbatus root extract. J. Nat. Prod. 72, 769-771 (2009).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
