Agroinfiltracja i agroinfekcja PVX to rutynowe testy funkcjonalne dla przejściowej ektopowej ekspresji genów w roślinach. Metody te są skutecznymi testami w strategiach efektoromicznych (szybkie odkrywanie genów oporności i wirulencji) i mają kluczowe znaczenie dla nowoczesnych badań w zakresie molekularnej patologii roślin. Spełniają one zapotrzebowanie na solidną, wysokowydajną analizę funkcjonalną w zakładach.
Artykuł metodologiczny
Agroinfiltracja i agroinfekcja PVX u ziemniaka i Nicotiana benthamiana
W tym artykule
Podsumowanie
Streszczenie
Agroinfiltracja i agroinfekcja PVX to dwa skuteczne testy ekspresji przejściowej do funkcjonalnej analizy genów kandydujących w roślinach. Najczęściej stosowanym środkiem do agroinfiltracji jest Agrobacterium tumefaciens, patogen wielu gatunków roślin dwuliściennych. Oznacza to, że agroinfiltrację można zastosować do wielu gatunków roślin. Poniżej przedstawiamy nasze protokoły i oczekiwane wyniki przy stosowaniu tych metod do ziemniaka (Solanum tuberosum), pokrewnych dzikich gatunków bulw Solanum (Solanum sekcja Petota) oraz rośliny modelowej Nicotiana benthamiana. Oprócz analizy funkcjonalnej pojedynczych genów, takich jak geny oporności (R) lub wirulencji (Avr), test agroinfiltracji jest bardzo odpowiedni do rekapitulacji interakcji R-AVR związanych ze specyficznymi interakcjami patogenów gospodarza poprzez proste dostarczenie transgenów R i Avr do tej samej komórki. Jednak niektóre genotypy roślin mogą wywoływać niespecyficzne reakcje obronne na Agrobacterium, co zaobserwowaliśmy na przykład dla kilku genotypów ziemniaka. W porównaniu z agroinfiltracją, wykrywanie aktywności AVR za pomocą agroinfekcji PVX jest bardziej czułe, ma większą przepustowość w funkcjonalnych badaniach przesiewowych i jest mniej wrażliwe na niespecyficzne odpowiedzi obronne na Agrobacterium. Może jednak wystąpić niespecyficzna obrona przed PVX i istnieje ryzyko braku odpowiedzi z powodu ekstremalnej odporności wywołanej przez wirusa. Pomimo takich ograniczeń, z naszego doświadczenia wynika, że agroinfiltracja i agroinfekcja PVX są zarówno odpowiednimi, jak i uzupełniającymi się testami, które mogą być stosowane jednocześnie w celu wzajemnego potwierdzania swoich wyników.
Wprowadzenie
Effectoromics, wysokowydajne podejście do genomiki funkcjonalnej, pojawiło się ostatnio jako potężne narzędzie do identyfikacji genów oporności (R) u roślin uprawnych i pasujących genów awirulencji (Avr) patogenów1-4. W przeciwieństwie do bardziej czasochłonnej stabilnej transformacji z genami R, strategia efektoromiki opiera się na przejściowych testach sekwencji genów patogenów.
Od czasów genomiki, genomy patogenów roślinnych są szeroko badane. Na przykład w przypadku lęgniowców, które zawierają najbardziej niszczycielskie patogeny roślin, wygenerowano duże zbiory sekwencji i przeanalizowano je pod kątem genów, które odgrywają rolę podczas interakcji z rośliną5-10. Jedna klasa białek patogenów reprezentuje efektory, które manipulują strukturą i funkcją komórki gospodarza w celu ułatwienia infekcji (czynniki wirulencji) lub wyzwalania odpowiedzi obronnych (czynniki wirulencji)11-13. Ekspresja genów Avr w komórkach roślinnych zawierających geny R zwykle powoduje nadwrażliwą odpowiedź na śmierć komórki (HR)14,15. W roślinie ekspresja genów R i Avr może być osiągnięta za pomocą przejściowych systemów ekspresji, takich jak przejściowa transformacja (agroinfiltracja) oparta na Agrobacterium tumefaciens16. Ta przejściowa transformacja może być również stosowana w połączeniu z systemami ekspresji wirusa (agroinfekcja)17,18.
Do agroinfiltracji najczęściej stosowanym środkiem jest A. tumefaciens, patogen o szerokim zakresie żywicieli roślin dwuliściennych. A . tumefaciens zawiera plazmid indukujący nowotwór (Ti). Przeniesienie DNA (T-DNA) z plazmidu Ti spowoduje translokację do komórek roślinnych po aktywacji maszynerii wirulencji bakterii. Może to być wywołane w zranionych komórkach roślinnych przez uwolnione związki fenolowe o niskiej masie cząsteczkowej i monosacharydy w lekko kwaśnym środowisku19. Gen wirulencji jest aktywowany po infiltracji zawiesin Agrobacterium do paneli liściowych zdefiniowanych przez główne nerwy. Następnie komórki roślinne w panelach liściowych zostaną przekształcone i wyrażą transgen (geny) zawarty w regionie T-DNA.
Agroinfekcja opiera się na zaszczepionym ranami Agrobacterium, które pośredniczy w translokacji wirusa do komórek roślinnych. Wirus następnie rozprzestrzenia się dalej na sąsiednie tkanki roślinne, pod nieobecność Agrobacterium. Do agroinfekcji można użyć kilku wirusów roślinnych. Wirusy RNA są idealnymi wektorami ekspresji genów, ponieważ mogą namnażać się do bardzo wysokich poziomów w zakażonych roślinach. Wśród wirusów roślinnego RNA, wirus ziemniaka X (PVX) jest szeroko stosowany w badaniach przesiewowych efektoromicznych. Aby ułatwić testy funkcjonalne dla wstawionego genu, wektory binarne, które zawierają genom PVX otoczony promotorem 35S wirusa mozaiki kalafiora i terminatorem syntazy nopaliny, zostały sklonowane do T-DNA A. tumefaciens20. Po przeniesieniu T-DNA do komórek roślinnych, genom PVX zawarty w T-DNA jest transkrybowany z promotora 35S. Następnie cząsteczki wirusa rozprzestrzeniają się ogólnoustrojowo w zakażonych roślinach, powodując ekspresję wprowadzonego genu. Ta metoda oparta zarówno na Agrobacterium, jak i PVX nazywana jest agroinfekcją PVX.
Tutaj pokazujemy przykłady zarówno dla testów agroinfiltracji, jak i agroinfekcji PVX. Jako rośliny żywicielskie używamy plazmy zarodkowej ziemniaka (Solanum sekcja Petota), dla której metody efektoromiki zostały zapoczątkowane i okazały się skuteczne3,4. Używamy również Nicotiana benthamiana, która jest znana jako roślina modelowa wśród roślin psiankowatych 14,21,22.
Protokół
1. Warunki uprawy i testowania roślin
- Uprawiaj i utrzymuj rośliny w kontrolowanych szklarniach lub komorach klimatycznych w zakresie temperatur 18-22 °C i w warunkach naturalnego oświetlenia lub w reżimie 16 godzin/8 godzin dzień/noc. Usuń gałęzie pachowe, aby rośliny były łatwiejsze w obsłudze.
- W przypadku ziemniaków należy przechowywać sadzonki in vitro w sterylnych plastikowych słoikach zawierających pożywkę Murashige-Skoog (MS) (20 g/l sacharozy, 5 g/l soli MS z witaminami, 8 g/l agar, pH 5,8) w kontrolowanych warunkach w komorach klimatycznych w temperaturze 18 °C w reżimie 16 godzin/8 godzin dzień/noc przez dwa tygodnie, a następnie przenieść je do doniczek ze sterylizowaną glebą w regulowanych komorach szklarniowych.
2. Agroinfiltracja
- Materiał roślinny:
W przypadku Nicotiana benthamiana należy użyć około 4-5 tygodniowych roślin wyhodowanych z nasion. W przypadku ziemniaków należy użyć około 4-5 tygodniowych przeszczepów z in vitro. Wybierz młode, zdrowe i w pełni rozwinięte liście do nacieków. - Kultura Agrobacterium:
- Przygotuj wcześniej podłoże YEB (tabela 1). Napełnić probówki o pojemności 50 ml 10 ml pożywki YEB uzupełnionej 1 μl acetosyringonu (200 mM), 100 μl buforu MES (kwas 2-(N-morfolino)-etanosulfonowy, 1 M) i odpowiednimi antybiotykami. Pobrać pipetą 20 μl glicerolu z pożądanych szczepów (Tabela 2) (zawierających interesujący gen) do YEB. Inicjuj hodowle dla wszystkich szczepów Agrobacterium w tym teście w tym samym czasie. Inkubować komórki, wytrząsając je przez 1-2 dni w temperaturze 28 °C i 200 obr./min do OD600 około 1,0.
- Zebrać komórki przez odwirowanie przy 3 000 x g przez 10 minut. Odlewać supernatant i ponownie zawiesić osad w świeżo przygotowanym podłożu MMA (Tabela 3) do OD600 0,3. Delikatnie odwiruj komórki, aby je ponownie zawiesić. W celu jednoczesnej filtracji dwóch szczepów bakterii należy wymieszać kulturę w stosunku 1:1.
- Pozostaw kulturę na stole w temperaturze pokojowej na 1-6 godzin przed infiltracją. W międzyczasie oznacz rośliny, które mają być infiltrowane, oraz datę eksperymentu.
- Infiltracje:
Użyć strzykawki bezigłowej o pojemności 1 ml do infiltracji zawiesiny Agrobacterium. Ostrożnie i powoli wstrzykiwać w panele liściowe zawiesiny ze strzykawki (ze względów zdrowotnych i bezpieczeństwa podczas tego procesu należy nosić okulary ochronne). Naciekaj co najmniej trzy rośliny dla każdego szczepu. Użyj trzech liści na roślinę, aby służyły jako triolicates.
Uwaga: Zwykle 1 ml zawiesiny Agrobacterium może wystarczyć dla 3 roślin N. benthamiana. W przypadku ziemniaków potrzebna jest większa zawiesina, ponieważ liście gatunków Solanum są trudniejsze do infiltracji. Wymagane objętości zawiesin zależą od gatunku Solanum. Należy unikać zanieczyszczenia krzyżowego poprzez zmianę rękawic lub sterylizację rękawic etanolem między infiltracjami oraz poprzez niepodlewanie roślin aż do następnego dnia po inokulacji. - Punktacja:
Oceń odpowiedzi makroskopowe około 3 dni po infiltracji, gdy fenotyp śmierci komórki jest czysty (ryc. 1). Jeśli fenotyp śmierci komórki jest ilościowy, użyj podanych kryteriów (ryc. 2). Krótko mówiąc, skale makroskopowej oceny śmierci komórki zależą głównie od procentu śmierci komórki w infiltrowanym obszarze. Procenty śmierci komórki są przedstawione w skali od 0% (brak objawów) do 100% (zlewająca się śmierć komórki). Odpowiedzi pośrednie wahają się od słabych reakcji, takich jak chloroza, do rosnących poziomów śmierci komórki. W razie potrzeby punktacja makroskopowa może być również oceniona ilościowo za pomocą nowoczesnego sprzętu do obrazowania fotograficznego.
3. Agroinfekcja PVX
- Materiał roślinny:
W przypadku N. benthamiana należy użyć około 2-3 tygodniowych roślin wyhodowanych z nasion. W przypadku ziemniaków należy użyć około 2-3 tygodniowych przeszczepów z in vitro. Do testów na dużą skalę należy używać nieco starszych (4-5 tygodni) roślin, ponieważ rośliny te mają więcej i większe liście, aby pomieścić większą liczbę miejsc inokulacji Agrobacterium. - Hodowla Agrobacterium:
- Przygotuj wcześniej podłoże YEB. Napełnić probówkę o pojemności 10 ml 3 ml YEB uzupełnionym odpowiednimi antybiotykami. Pobrać pipetą 20 μl glicerolu z pożądanych szczepów (Tabela 2) (zawierających interesujący gen) do YEB. Inicjuj hodowle dla wszystkich szczepów Agrobacterium w tym teście w tym samym czasie. Inkubować komórki, wytrząsając je przez 1-2 dni w temperaturze 28 °C i 200 obr./min do OD600 około 1,0.
- Pobrać pipetą około 300 μl każdego szczepu Agrobacterium i rozprowadzić je na płytkach LB ze stałym agarem uzupełnionym odpowiednimi antybiotykami i inkubować komórki w temperaturze 28 °C przez 1-2 dni.
- Zakażenia:
Użyj szpatułki, aby zebrać kulturę Agrobacterium na płytce. Zanurz drewnianą wykałaczkę w kulturze Agrobacterium na szpatułce i przebij liście, aby zaszczepić dużą ilość bakterii. Zaszczep co najmniej trzy rośliny dla każdego szczepu. Użyj trzech liści na roślinę, aby służyły jako potrójne liście. W każdym liściu należy wykonać wiele miejsc inokulacji dla każdego szczepu. - Punktacja:
Oceń odpowiedzi makroskopowe około dwa tygodnie po inokulacji (ryc. 3). W przypadku badań przesiewowych o wysokiej przepustowości należy zarejestrować odpowiedzi jakościowe (tak/nie) dla każdego miejsca inokulacji. Następnie oblicz procent odpowiadających witryn i porównaj je z kontrolami.
Wyniki
Rysunek 1 przedstawia reprezentatywny eksperyment agroinfiltracji z użyciem 7 różnych efektorów (E1-E7) u ziemniaka oraz N. benthamiana. Śmierć komórek pojawia się w zainfiltrowanych polach liściowych około 3 dni po infiltracji. Zakres fenotypu śmierci komórek należy porównać z kontrolami. Jako kontrolę pozytywną24,25 zastosowano mieszaninę szczepu Agrobacterium AGL1(pVirG)23 zawierającego pBINplus-R3a oraz pK7WG2-AVR3a, natomiast jako kontrolę negatywną wykorzystano AGL1(pVirG) . Rysunki 1A oraz 1B pokazują dobre przykłady agroinfiltracji odpowiednio w genotypie ziemniaka MaR8 (Mastenbroek R8)26 oraz N. benthamiana, które są bardzo podatne na agroinfiltrację. W polu liściowym koinfiltrowanym z kontrolą pozytywną występuje zlewająca się śmierć komórek, podczas gdy w przypadku kontroli negatywnej lub pBINplus-R3a nie występuje reakcja śmierci komórek. W MaR8 dwa efektory AVR3a (E2) i AVR4 (E3) indukują śmierć komórek, podczas gdy pozostałe efektory (E1 i E4-E7) jej nie wywołują. W N. benthamiana żaden z testowanych efektorów nie indukuje reakcji śmierci komórek. Rysunki 1C oraz 1D pokazują przykłady agroinfiltracji u dzikiego ziemniaka Solanum berthaultii 483-1 oraz Solanum rechei 210-5, które nie są szczególnie podatne na technikę agroinfiltracji. W S. berthaultii 483-1 tkanka liścia wykazuje nieswoistą nekrozę w odpowiedzi na kontrole negatywne, jak i na wszystkie testowane efektory. W S. rechei 210-5 zainfiltrowane pola liściowe wykazują bardzo słabą reakcję śmierci komórek na kontrolę pozytywną.
Rycina 2 przedstawia zestaw skal ocen, które mogą być wykorzystane do ilościowego określenia odpowiedzi na agroinfiltrację Agrobacterium. Procenty śmierci komórek przedstawiono w skali 0-100%. Obserwowane fenotypy obejmują zakres od symptomów niewidocznych makroskopowo (0%), poprzez szereg odpowiedzi pośrednich wykazujących chlorozę i zwiększający się poziom śmierci komórek, aż po zlewne obumieranie komórek (100%).
Rysunek 3 przedstawia reprezentatywny eksperyment po agroinfekcji PVX u ziemniaka. Zazwyczaj rozprzestrzeniająca się śmierć komórek jest widoczna w miejscach inokulacji wymazów po około dwóch tygodniach. Jak pokazano na obu panelach rysunku, rozprzestrzeniająca się śmierć komórek występuje w miejscach inokulowanych wymazami pGR106-CRN2 (kontrola pozytywna z wykorzystaniem efektora crinkler Crn2), który jest ogólnym genem indukującym śmierć komórek z P. infestans27. Poza niewielką odpowiedzią na zranienie, nie odnotowano rozprzestrzeniającej się śmierci komórek w miejscach inokulowanych wymazami pGR106-empty (kontrola negatywna). Na Rysunku 3A, reprezentującym genotyp ziemniaka MaR3 (Mastenbroek R3), dwa efektory pGR106 (E1 i E2) nie wywołały śmierci komórek. Na Rysunku 3B przedstawiono pozytywny wynik przesiewania efektorów u dzikiego Solanum huancabambense 354-1; odpowiedź w postaci śmierci komórek zaobserwowano dla dwóch efektorów pGR106 (E1-E3, reprezentujących elicityny)28.

Rysunek 1. Przykłady agroinfiltracji w ziemniaku i N. benthamiana. Rośliny, w tym (A) genotyp ziemniaka MaR8 (Mastenbroek R8), (B) N. benthamiana, (C) Solanum berthaultii 483-1 oraz (D) Solanum rechei 210-5, poddano infiltracji mieszaniną szczepu Agrobacterium AGL1(pVirG) 23 zawierającego pBINplus-R3a i pK7WG2-AVR3a (kontrola pozytywna), AGL1(pvirG) (kontrola negatywna), pBINplus-R3a oraz siedmiu efektorów (E1-E7). Kliknij tutaj, aby wyświetlić większy obraz.

Rycina 2. Ilościowa ocena odpowiedzi po agroinfiltracji.Fotografia przedstawia reprezentatywne skale oceny śmierci komórkowej, od 0% (brak objawów) do 100% (zlewne obumieranie komórek). Odpowiedzi pośrednie obejmują reakcje słabe, takie jak chloroza, aż po zwiększony stopień śmierci komórek. Kliknij tutaj, aby wyświetlić powiększony obraz.
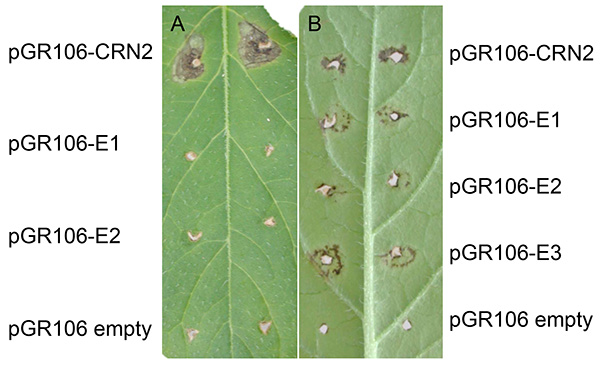
Rysunek 3. Przykłady agroinfekcji PVX u ziemniaka. Genotyp ziemniaka MaR3 (Mastenbroek R3) (A) oraz Solanum huancabambense 354-1 (B) inokulowane metodą wykałaczkową odpowiednio pGR106-CRN2 (kontrola pozytywna), pGR106-empty (kontrola negatywna) i pGR106-E1-2 (efektory) lub pGR106-E1-E3. Kliknij tutaj, aby wyświetlić większy obraz.
Tabela 1. Pożywka YEB
| 1 l | woda destylowana2O |
| 5 g | sacharoza |
| 5 g | ekstrakt wołowy |
| 5 g | pepton bakteriologiczny |
| 1 g | ekstrakt drożdżowy |
| 2 ml | MgSO₄4 (1 M) |
Tabela 2. Wektory i szczepy użyte do agroinfiltracji i agroinfekcji PVX. Można zastosować kilka wektorów binarnych. Wektory wymienione na poniższej liście zapewniają wysoką ekspresję genów kandydackich i sprawdziły się w naszych badaniach. W przypadku N. benthamiana preferujemy stosowanie szczepu Agrobacterium GV3101(pMP90)29, natomiast w ziemniaku31 za bardziej odpowiedni uważamy AGL130 zawierający plazmid pomocniczy pVirG (pBBR1MCS-5.virGN54D)23. Dodatkowe szczepy zostały przeanalizowane przez inne grupy na różnych roślinach modelowych, w tym na N. benthamiana, ale nie na ziemniaku32.

GW: wersja bramki36
Tabela 3. Pożywka MMA.

Dostosuj pH do wartości 5.6.
Dyskusja
Testy przejściowe, takie jak agroinfiltracja i agroinfekcja, są skutecznymi metodami, które są niezbędne w nowoczesnych badaniach molekularnych patologii roślin. Pomimo pewnych ograniczeń, metody te spełniają zapotrzebowanie na wydajną i solidną analizę funkcjonalną o wysokiej przepustowości w zakładach.
System agroinfiltracji jest szeroko stosowanym testem funkcjonalnym u wielu gatunków roślin. Agroinfiltracja ułatwia dostarczenie kilku transgenów do tej samej komórki z jednoczesną ekspresją oddziałujących białek. Jest to korzystne dla rekapitulacji relacji R-AVR poprzez jednoczesną infiltrację szczepów Agrobacterium , które wyrażają geny Avr , ze szczepami, które wyrażają pasujące geny R . Ponadto, w przypadku znanych par R-AVR, takie filtracje monet mogą być stosowane jako kontrole pozytywne. Uwzględnienie takich kontroli jest ważne, ponieważ w niektórych genotypach roślin wydajność transformacji może być poniżej progu umożliwiającego wykrycie reakcji. Uwzględnienie kontroli ujemnych, np. szczepu Agrobacterium zawierającego wektor bez wstawki genu, jest również niezbędne do określenia, czy określony genotyp rośliny wywołuje nieswoiste odpowiedzi obronne wobec Agrobacterium. Ta cecha występuje z określoną częstotliwością w plazmie zarodkowej ziemniaka i nie wszystkie gatunki Solanum dobrze nadają się do tego systemu ekspresji opartego na Agrobacterium. Ogólnie rzecz biorąc, test agroinfiltracji działa bardzo dobrze w przypadku N. benthamiana i większości genotypów ziemniaka. Oprócz efektoromiki istnieje wiele innych potencjalnych zastosowań techniki agroinfiltracji, takich jak produkcja białek z transgenów i lokalizacja białek w komórkach roślinnych za pomocą mikroskopii konfokalnej.
Agroinfekcja PVX jest bardzo czułym systemem przesiewowym i zazwyczaj bardziej nadaje się do badań przesiewowych o dużej przepustowości. Ponieważ Agrobacterium jest obecnie obecne tylko lokalnie, niespecyficzne reakcje na tę bakterię nie są teraz bardzo niepokojące, ponieważ wirus PVX przejmuje dalsze rozprzestrzenianie się transgenu. Jednak rośliny mogą być odporne na PVX lub wykazywać reakcje ekstremalnej odporności (ER) i w takim przypadku metoda agroinfekcji nie jest odpowiednia. Kolejnym ograniczeniem metody agroinfekcji PVX jest wielkość wstawki genu będącego przedmiotem zainteresowania. Obserwowane fenotypy reakcji mogą wahać się od intensywnej czarnej martwicy otaczającej ranę do słabej martwicy w pobliżu miejsca inokulacji. Zarówno u gatunków N. benthamiana , jak i Solanum , agroinfekcja PVX jest uznawana za bardziej wrażliwą niż agroinfiltracja.
Biorąc pod uwagę, że podłoże genetyczne różnych badanych genotypów roślin może mieć pewne ograniczenia (patrz wyżej), na ogół uzyskujemy podobne wnioski na podstawie agroinfekcji PVX i agroinfiltracji. Wyniki te są również porównywalne z wynikami uzyskanymi w innych testach, takich jak nacieki białkowe29 i ELISA3. Biorąc pod uwagę zalety i ograniczenia obu systemów, zalecamy stosowanie obu metod, aby wzajemnie się uzupełniały lub potwierdzały niezależne wyniki.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Praca jest częściowo wspierana przez Wageningen University Fund (WUF), Program Chińskiej Rady Stypendialnej dla Absolwentów oraz grant NWO-VIDI 12378.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ekstrakt z wołowiny | Sigma-Aldrich | B4888 | |
| Pepton bakteriologiczny | Oxoid | LP0037 | |
| Ekstrakt drożdżowy | Oxoid | LP0021 | |
| MgSO4 | Sole 208094 Sigma-Aldrich | ||
| (bez witamin) | Duchefa Biochemie | M0221 | |
| MES | Duchefa Biochemie | M1503 | |
| LB bulion w proszku | Sigma-Aldrich | L3022 | |
| Acetosyringone | Sigma-Aldrich | D134406 | |
| strzykawka (1 ml) | Inkubator BD Plastipak | 300013 | |
| Infors Wirówka HT | Multitron II | ||
| Heraeus | Multifuge 3S-R | ||
| Biofotometr Eppendorf | 6131 |
Bibliografia
- Vleeshouwers, V. G. A. A., et al. Understanding and exploiting late blight resistance in the age of effectors. Ann. Rev. Phytopathol. 49, 507-531 (2011).
- Ellis, J. G., Rafiqi, M., Gan, P., Chakrabarti, A., Dodds, P. N. Recent progress in discovery and functional analysis of effector proteins of fungal and oomycete plant pathogens. Curr. Opin. Plant Biol. 12, 399-405 (2009).
- Vleeshouwers, V. G. A. A., et al. Effector genomics accelerates discovery and functional profiling of potato disease resistance and Phytophthora infestans avirulence genes. Plos One. 3, 1-10 (2008).
- Oh, S. K., et al. In planta expression screens of Phytophthora infestans RXLR effectors reveal diverse phenotypes, including activation of the Solanum bulbocastanum disease resistance protein Rpi-blb2. Plant Cell. 21, 2928-2947 (2009).
- Tyler, B. M., et al. Phytophthora genome sequences uncover evolutionary origins and mechanisms of pathogenesis. Science. 313, 1261-1266 (2006).
- Haas, B. J., et al. Genome sequence and analysis of the Irish potato famine pathogen Phytophthora infestans. Nature. 461, 393-398 (2009).
- Levesque, C. A., et al. Genome sequence of the necrotrophic plant pathogen Pythium ultimum reveals original pathogenicity mechanisms and effector repertoire. Genome Biol. 11, 1-22 (2010).
- Lamour, K. H., Win, J., Kamoun, S. Oomycete genomics: new insights and future directions. FEMS Microbiol. Lett. 274, 1-8 (2007).
- Stassen, J. H. M., et al. Effector identification in the lettuce downy mildew Bremia lactucae by massively parallel transcriptome sequencing. Mol. Plant Pathol. 13, 719-731 (2012).
- Kemen, E., et al. Gene gain and loss during evolution of obligate parasitism in the white rust pathogen of Arabidopsis thaliana. PLoS Biol. 9, 1-21 (2011).
- Win, J., et al. Effector biology of plant-associated organisms: concepts and perspectives. , Cold Spring Harbor. 1-13 (2012).
- Hogenhout, S. A., van der Hoorn, R. A. L., Terauchi, R., Kamoun, S. Emerging concepts in effector biology of plant-associated organisms. Mol. Plant Microbe Interact. 22, 115-122 (2009).
- Kamoun, S. A catalogue of the effector secretome of plant pathogenic oomycetes. Ann. Rev. Phytopathol. 44, 41-60 (2006).
- van der Hoorn, R. A. L., Laurent, F., Roth, R., De Wit, P. J. G. M. Agroinfiltration is a versatile tool that facilitates comparative analyses of Avr9/Cf-9-induced and Avr4/Cf-4-induced necrosis. Mol. Plant Microbe Interact. 13, 439-446 (2000).
- Dangl, J. L., Jones, J. D. G. Plant pathogens and integrated defence responses to infection. Nature. 411, 826-833 (2001).
- Kapila, J., de Rycke, R., van Montagu, M., Angenon, G. An Agrobacterium-mediated transient gene expression system for intact leaves. Plant Sci. 122, 101-108 (1997).
- Kanneganti, T. D., Huitema, E., Kamoun, S. In planta expression of oomycete and fungal genes. Methods Mol. Biol. 354, 35-43 (2007).
- Vleeshouwers, V. G. G. A., Rietman, H. In planta expression systems. Oomycete Genetics and Genomics. Diversity, Interactions, and Research Tools. Lamour, K., Kamoun, S. 23, 455-475 (2009).
- Peng, W. T., Lee, Y. W., Nester, E. W. The phenolic recognition profiles of the Agrobacterium tumefaciens VirA protein are broadened by a high level of the sugar binding protein ChvE. J. Bacteriol. 180, 5632-5638 (1998).
- Lu, R., et al. High throughput virus-induced gene silencing implicates heat shock protein 90 in plant disease resistance. EMBO J. 22, 5690-5699 (2003).
- Ma, L., Lukasik, E., Gawehns, F., Takken, F. L. W. The use of agroinfiltration for transient expression of plant resistance and fungal effector proteins in Nicotiana benthamiana leaves. Methods Mol. Biol. 835, 61-74 (2012).
- Bhaskar, P. B., Venkateshwaran, M., Wu, L., Ané, J. M., Jiang, J. Agrobacterium-mediated transient gene expression and silencing: A rapid tool for functional gene assay in potato. Plos One. 4, 1-8 (2009).
- van der Fits, L., Deakin, E. A., Hoge, J. H. C., Memelink, J. The ternary transformation system: constitutive virG on a compatible plasmid dramatically increases Agrobacterium-mediated plant transformation. Plant Mol. Biol. 43, 495-502 (2000).
- Huang, S., et al. Comparative genomics enabled the isolation of the R3a late blight resistance gene in potato. Plant J. 42, 251-261 (2005).
- Armstrong, M. R., et al. An ancestral oomycete locus contains late blight avirulence gene Avr3a, encoding a protein that is recognized in the host cytoplasm. Proc. Natl. Acad. Sci. U.S.A. 102, 7766-7771 (2005).
- Kim, H. J., et al. Broad spectrum late blight resistance in potato differential set plants MaR8 and MaR9 is conferred by multiple stacked R genes. Theor. Appl. Genet. 124, 923-935 (2012).
- Torto, T. A., et al. EST mining and functional expression assays identify extracellular effector proteins from the plant pathogen Phytophthora. Genome Res. 13, 1675-1685 (2003).
- Vleeshouwers, V. G. A. A., et al. Agroinfection-based high-throughput screening reveals specific recognition of INF elicitins in Solanum. Mol. Plant Pathol. 7, 499-510 (2006).
- Koncz, C., Schell, J. The promoter of TL-DNA gene 5 controls the tissue-specific expression of chimeric genes carried by a novel type of agrobacterium binary. Mol. Gen. Genet. 204, 383-396 (1986).
- Lazo, G. R., Stein, P. A., Ludwig, R. A. A DNA transformation-competent Arabidopsis genomic library in Agrobacterium. Bio-Technol. 9, 963-967 (1991).
- Rietman, H. Putting the Phytophthora infestans genome sequence at work; multiple novel avirulence and potato resistance gene candidates revealed [PhD thesis]. , Wageningen University. (2011).
- Wroblewski, T., Tomczak, A., Michelmore, R. Optimization of Agrobacterium-mediated transient assays of gene expression in lettuce, tomato and Arabidopsis. Plant Biotechnol. J. 3, 259-273 (2005).
- van engelen, F. A., et al. pBINPLUS - an improved plant transformation vector based on pBIN19. Transgenic Res. 4, 288-290 (1995).
- Karimi, M., Inze, D., Depicker, A. GATEWAYTM vectors for Agrobacterium-mediated plant transformation. Trends Plant Sci. 7, 193-195 (2002).
- Xiang, C. B., Han, P., Lutziger, I., Wang, K., Oliver, D. J. A mini binary vector series for plant transformation. Plant Mol. Biol. 40, 711-717 (1999).
- Curtis, M. D., Grossniklaus, U. A gateway cloning vector set for high-throughput functional analysis of genes in planta. Plant Physiol. 133, 462-469 (2003).
Przedruki i uprawnienia
