Perfuzja mózgowa jest utrzymywana w różnych ciśnieniach poprzez autoregulację mózgu. Jednak scharakteryzowanie autoregulacji wymaga znacznych wahań ciśnienia przy regulowanych częstotliwościach. Opisany protokół pokaże, w jaki sposób oscylacyjne podciśnienie dolnej części ciała może generować wahania ciśnienia, aby dostarczyć danych do regresji dążenia do projekcji w celu ilościowego określenia krzywej autoregulacyjnej.
Artykuł metodologiczny
Ocena autoregulacji mózgu poprzez oscylacyjne podciśnienie dolnej części ciała i regresję pogoni za projekcją
W tym artykule
Podsumowanie
Streszczenie
Proces, dzięki któremu perfuzja mózgowa jest utrzymywana na stałym poziomie w szerokim zakresie ciśnień systemowych, jest znany jako "autoregulacja mózgowa". Skuteczne tłumienie przepływu przy zmianach ciśnienia występuje w okresach tak krótkich jak ~15 sekund i staje się stopniowo większe w dłuższych okresach czasu. W ten sposób wolniejsze zmiany ciśnienia krwi są skutecznie tępione, a szybsze zmiany lub wahania przechodzą do przepływu krwi w mózgu stosunkowo niezakłócone. Podstawową trudnością w scharakteryzowaniu zależności częstotliwości autoregulacji mózgowej jest brak wyraźnych spontanicznych wahań ciśnienia tętniczego wokół interesujących nas częstotliwości (mniej niż ~0,07 Hz lub ~15 sekund). Oscylacyjne podciśnienie dolnej części ciała (OLBNP) może być wykorzystane do generowania oscylacji w centralnym powrocie żylnym, które powodują wahania ciśnienia tętniczego z częstotliwością OLBNP. Co więcej, regresja dążenia do projekcji (PPR) zapewnia nieparametryczną metodę charakteryzowania relacji nieliniowych nieodłącznie związanych z systemem bez założeń a priori i ujawnia charakterystyczną nieliniowość autoregulacji mózgu. OLBNP generuje większe wahania ciśnienia tętniczego, ponieważ częstotliwość oscylacji podciśnienia staje się wolniejsza; Jednak wahania w przepływie krwi w mózgu stają się stopniowo mniejsze. W związku z tym PPR wykazuje coraz bardziej wyraźny obszar autoregulacyjny przy częstotliwościach OLBNP 0,05 Hz i niższych (cykle 20 sekund). Celem tego podejścia jest umożliwienie laboratoryjnego określenia charakterystycznej nieliniowej zależności między ciśnieniem a przepływem mózgowym i może dostarczyć unikalnych informacji na temat zintegrowanej kontroli naczyń mózgowych, a także zmian fizjologicznych leżących u podstaw upośledzonej autoregulacji mózgu (np. po urazowym uszkodzeniu mózgu, udarze itp.).
Wprowadzenie
Proces, w którym perfuzja mózgowa jest utrzymywana na stałym poziomie w szerokim zakresie ciśnień systemowych, jest znany jako "autoregulacja mózgu." Pierwotne obserwacje reakcji przepływu mózgowego1 wspierały przeciwregulację przeciwko zmianom ciśnienia tętniczego, która ma ogromne znaczenie dla codziennej regulacji perfuzji mózgowej. Chociaż charakterystyka autoregulacji opierała się na badaniach nad utrzymującym się, kontrolowanym niedociśnieniem i nadciśnieniem,2,3 uznano, że zmiany oporu wywołane ciśnieniem są "procesem oscylacyjnym"3 obejmującym zmiany od 10 do 90 sekund.4 Co więcej, w ciągu ostatnich dwóch dekad pomiar prędkości przepływu krwi w mózguna podstawie uderzenia po uderzeniu5 wykazał, że przepływ mózgowy jest regulowany w okresach tak krótkich, jak zaledwie kilka uderzeń serca. 6,7 Te dane sugerują, że skuteczne tłumienie przepływu przy zmianach ciśnienia występuje w okresach tak krótkich, jak ~15 sekund i staje się stopniowo większe w dłuższych okresach czasu. 8 Tak więc związek między ciśnieniem a przepływem działa jak filtr górnoprzepustowy7,9-12, w którym wolniejsze zmiany ciśnienia krwi są skutecznie tępione, a szybsze oscylacje przechodzą stosunkowo niezakłócone.
Podstawową trudnością w scharakteryzowaniu zależności od częstotliwości autoregulacji mózgu jest brak wyraźnych spontanicznych wahań ciśnienia tętniczego wokół interesujących nas częstotliwości (mniej niż ~0,07 Hz lub ~15 sekund). Bez wystarczająco dużych oscylacji ciśnienia nie można dokładnie określić ilościowo odpowiedzi przepływu krwi w mózgu. Nasze laboratorium poradziło sobie z tym ograniczeniem, stosując technikę znaną jako oscylacyjne podciśnienie dolnej części ciała (OLBNP). Powoduje to przesunięcia objętości krwi żylnej ogonowej proporcjonalne do poziomu podciśnienia w zbiorniku z powodu zmniejszonego ciśnienia przezściennego żylnego. Gdy podciśnienie jest stosowane w określonych odstępach czasu, oscylacje w centralnym powrocie żylnym powodują wahania ciśnienia tętniczego z częstotliwością OLBNP. Podejście to zostało wykorzystane w kilku badaniach w różnych laboratoriach. 8,14-17 Powoduje to przesunięcia objętości krwi w żyłach ogonowych proporcjonalne do poziomu podciśnienia w zbiorniku z powodu zmniejszonego ciśnienia przezściennego żylnego. Gdy podciśnienie jest stosowane w określonych odstępach czasu, oscylacje w centralnym powrocie żylnym powodują wahania ciśnienia tętniczego z częstotliwością OLBNP. Podejście to zostało wykorzystane w kilku badaniach w różnych laboratoriach. 8,15-18
Nawet przy podejściu, które może generować wyraźne wahania ciśnienia tętniczego wokół interesujących nas częstotliwości, istnieje czynnik komplikujący: istnieją znaczące dowody na nieliniowość w autoregulacji mózgu, zwłaszcza przy najniższych częstotliwościach. 8 Co więcej, nie ma solidnych teoretycznych wytycznych co do natury nieliniowości obecnych w autoregulacji mózgu. W związku z tym w naszej analizie używamy teoretycznej, opartej na danych metody znanej jako regresja dążenia do projekcji (PPR). 19 PPR jest nieparametryczną metodą charakteryzowania relacji nieliniowych właściwych dla układu bez żadnych założeń a priori co do natury tych nieliniowości. Jest to zdecydowana zaleta dla uchwycenia układu, którego fizjologia nie jest jeszcze zdefiniowana przez jawne modele nieliniowe. PPR ujawnia, że charakterystyczna nieliniowość autoregulacji mózgu przypomina "klasyczną krzywą autoregulacyjną" opisaną po raz pierwszy przez Lassena w 1959 roku (ryc. 1). Oznacza to, że przepływ krwi w mózgu pozostaje względnie stały w pewnym zakresie ciśnienia tętniczego, ale biernie podąża w sposób liniowy poza tym zakresem. Ten kształt staje się bardziej widoczny, gdy wahania ciśnienia tętniczego stają się wolniejsze. W związku z tym analiza liniowa jest niewystarczająca, aby w pełni zbadać autoregulację mózgu, a poleganie na technikach liniowych prawdopodobnie pomija ważne informacje.
W tym artykule szczegółowo opisujemy podejście zarówno do pozyskiwania danych (laboratoryjne użycie OLBNP), jak i analizy (PPR), których używamy do scharakteryzowania autoregulacji mózgu w zdrowiu i chorobie.
Protokół
1. Oscylacyjne ujemne ciśnienie dolnej części ciała (OLBNP)
- Konfiguracja sprzętu
- Elektrokardiogram odprowadzenie II (EKG): Przymocuj trzy (lub więcej) elektrody do tułowia badanego w celu monitorowania częstości akcji serca podczas całego badania.
- Neoprenowa spódnica: Użyj wykonanej na zamówienie neoprenowej spódnicy, która uszczelnia badanego w komorze ujemnego ciśnienia dolnej części ciała do wysokości grzebienia biodrowego. Załóż ją na klatkę piersiową badanego przed ułożeniem go w pozycji leżącej na plecach w zbiorniku i upewnij się, że sygnał EKG jest nadal odpowiedni. Upewnij się, że spódnica przylega ściśle, ale nie na tyle mocno, by ograniczać oddychanie.
- Komora ujemnego ciśnienia dolnej części ciała: Poproś badanego o położenie się na plecach na łóżku i wprowadź komorę LBNP pod niego. Jeśli komora LBNP posiada regulowane siedzisko rowerowe (aby zminimalizować artefakty ruchowe bez niwelowania efektu ssania), upewnij się, że badany siedzi na nim wygodnie. Użyj wykonanego na zamówienie dystansera z Pleksiglasu, dociętego do obwodu talii badanego, aby pomóc w uszczelnieniu komory. Uszczelnij neoprenową spódnicę wokół komory LBNP za pomocą taśmy klejącej.
- Ciśnienie w komorze LBNP: Podłącz komorę LBNP do standardowego przetwornika ciśnienia. Skalibruj przetwornik ciśnienia do mmHg.
- Timer cyklu powtórzeń podłączony do zaworu mechanicznego: Podłącz wykonany na zamówienie zawór mechaniczny oraz timer cyklu powtórzeń do komory LBNP.
UWAGA: Przekaźnik czasowy podłączony do dwóch silników sterujących zaworem mechanicznym służy do przełączania między ciśnieniem ujemnym a ciśnieniem otoczenia. Przekaźnik czasowy przełącza napięcie silników w stałych odstępach czasu, aby otwierać i zamykać zawór między komorą a pompą próżniową. Tworzy to przebieg ciśnienia w komorze LBNP o kształcie zbliżonym do fali prostokątnej. Dostosuj czas cyklu do pożądanej częstotliwości OLBNP. - Transformator regulowany i pompa próżniowa: Podłącz standardowy odkurzacz domowy do zaworu mechanicznego. Podłącz odkurzacz do transformatora regulowanego, który umożliwia sterowanie napięciem zasilającym odkurzacz. Włącz odkurzacz i reguluj transformator, aż zostanie osiągnięte docelowe ciśnienie LBNP (np. 30 mmHg).
- Tętnicze ciśnienie krwi: Przymocuj nieinwazyjne mankiety fotopletyzmograficzne do pomiaru ciśnienia tętniczego (np. Portapres, Finapres) do palca lub palców jednej dłoni. Zweryfikuj dokładność, porównując ciśnienie z pomiarami oscylometrycznymi z tętnicy ramiennej przeciwnej ręki.
- Doppler transkranialny 2 MHz i urządzenie do mocowania głowicy
- Użyj dopplerowskiej głowicy fali impulsowej 2 MHz do naświetlania segmentu M1 tętnicy środkowej mózgu w okolicy skroni (tzn. przez okno skroniowe).
- Zmieniaj kąt głowicy, głębokość naświetlania (~55 mm), wzmocnienie i moc nadawczą, aby zmaksymalizować intensywność widmową sygnału.
- Ustabilizuj głowicę dopplerowską za pomocą urządzenia mocującego bez tylnej części (tzn. nie będącej opaską na głowę), aby artefakty ruchowe nie przenikały do sygnału podczas poruszania się ochotnika w rytm oscylacji ujemnego ciśnienia.
UWAGA: Przepływ krwi mózgowej można mierzyć jednostronnie lub obustronnie, jednak nie oczekuje się różnic w autoregulacji mózgowej między półkulami, chyba że występuje miejscowe uszkodzenie, takie jak udar lub urazowe uszkodzenie mózgu.20
- Wydychany CO2: Użyj kaniuli nosowej podłączonej do podczerwonego analizatora CO2 w celu monitorowania wydychanego CO2 i poinstruuj badanego, aby oddychał wyłącznie przez nos. Biorąc pod uwagę głęboki wpływ tętniczego CO2 na przepływ krwi mózgowej,21 monitoruj poziom CO2 podczas każdego badania.
- Akwizycja danych
- Skonfiguruj analogowo-cyfrową konwersję ciśnienia tętniczego, przepływu krwi mózgowej, ciśnienia w komorze LBNP oraz wydychanego CO2, aby rejestracja odbywała się z częstotliwością co najmniej 50 Hz na kanał. Rejestruj EKG z częstotliwością 1 kHz.
UWAGA: Chociaż późniejsza analiza dotyczy informacji o znacznie niższej częstotliwości (≤0,07 Hz), kluczowe jest monitorowanie jakości sygnałów pozyskiwanych podczas badania. Częstotliwość próbkowania 50 Hz pozwoli na dokładną wizualizację ciśnienia krwi i przepływu krwi mózgowej w celu wykrycia artefaktów.
- Skonfiguruj analogowo-cyfrową konwersję ciśnienia tętniczego, przepływu krwi mózgowej, ciśnienia w komorze LBNP oraz wydychanego CO2, aby rejestracja odbywała się z częstotliwością co najmniej 50 Hz na kanał. Rejestruj EKG z częstotliwością 1 kHz.
- Protokół oscylacyjnego LBNP
- Włącz pompę próżniową i upewnij się, że ciśnienie w zbiorniku jest stabilne na poziomie –30 mmHg.
- Ustaw timer cyklu powtórzeń na 33 s dla OLBNP o częstotliwości 0,03 Hz.
- Dostosuj głowicę lub głowice dopplerowskie, aby zapewnić optymalny sygnał.
- Rejestruj dane przez co najmniej 15 cykli (500 s przy 0,03 Hz), aby zapewnić wystarczającą pewność szacunków PPR. Jeśli czas na to pozwala, zbierz więcej danych, co dodatkowo poprawi stosunek sygnału do szumu.
- Powtórz powyższe kroki dla wszystkich częstotliwości w zakresie od 0,03 Hz do 0,08 Hz, zmieniając czas trwania cyklu powtórzeń.
UWAGA: Stosuj częstotliwości w kolejności, ale losowo zmieniaj częstotliwość początkową dla poszczególnych badanych.
2. Regresja z poszukiwaniem projekcji (PPR)
- Wstępne przetwarzanie danych
- Decymacja i filtrowanie dolnoprzepustowe
- Otwórz program Matlab. Wpisz polecenie „data = resample(data, 1, SR/5)” (gdzie SR to pierwotna częstotliwość próbkowania), aby przeprowadzić decymację ciśnienia tętniczego oraz przepływu krwi w mózgu do 5 Hz.
UWAGA: Opcjonalnie można zastosować filtr dolnoprzepustowy (19th (filtr Czebyszewa typu II) z częstotliwością odcięcia 0,4 Hz. Filtrowanie jest nadmiarowe, biorąc pod uwagę późniejszą obróbkę, ale pozwala na uzyskanie średnich przebiegów falowych, które nie opierają się na detekcji szczytów w czasami zaszumionych sygnałach ciśnienia tętniczego i przepływu krwi w mózgu.
- Otwórz program Matlab. Wpisz polecenie „data = resample(data, 1, SR/5)” (gdzie SR to pierwotna częstotliwość próbkowania), aby przeprowadzić decymację ciśnienia tętniczego oraz przepływu krwi w mózgu do 5 Hz.
- Usuwanie artefaktów
- Kierując się oryginalnymi, niedecymowanymi przebiegami fal, należy usunąć z sygnałów wszelkie fragmenty zawierające artefakty i przeprowadzić interpolację liniową. Jeśli fragmenty te stanowią więcej niż 10% okresu rejestracji, należy całkowicie odrzucić dane nagranie.
UWAGA: Na tym etapie przebiegi fal są odpowiednio przetworzone do zastosowania tradycyjnych podejść liniowych, takich jak analiza funkcji przejścia.
- Kierując się oryginalnymi, niedecymowanymi przebiegami fal, należy usunąć z sygnałów wszelkie fragmenty zawierające artefakty i przeprowadzić interpolację liniową. Jeśli fragmenty te stanowią więcej niż 10% okresu rejestracji, należy całkowicie odrzucić dane nagranie.
- Filtrowanie pasmowo-przepustowe
- W programie Matlab wpisz: [B, A] = cheby1(1,1, [F – 0.005 F+0.005]/(SRd/2)) data = filtfilt(B, A, detrend(data, ‘linear’), aby zastosować filtr pasmowo-przepustowy dla ciśnienia i przepływu w pasmie ± 0,005 Hz (1Proszę podać tekst źródłowy do tłumaczenia. filtr Czebyszewa typu I z tętnieniem w pasmie przepustczania wynoszącym 1 dB) wokół częstotliwości OLBNP (Rycina 2) gdzie F to dominująca częstotliwość OLBNP, SRd to zdecymowana częstotliwość próbkowania (5 Hz po kroku 2.1.1), a „data” to zdecymowany sygnał (ciśnienie tętnicze lub przepływ).
UWAGA: Minimalizuje to potencjalne zakłócenia i zwiększa stosunek sygnału do szumu w późniejszej analizie PPR. Chociaż dominujące fluktuacje ciśnienia tętniczego występują z częstotliwością oscylacji ujemnego ciśnienia w dolnych partiach ciała, szum losowy w sygnałach może zakłócać wyznaczanie zależności między ciśnieniem a przepływem. Wyniki uzyskane bez filtrowania pasmowo-przepustowego będą jakościowo podobne, jednak procent wyjaśnionej wariancji (t. j., R2) będzie niższe.19
- W programie Matlab wpisz: [B, A] = cheby1(1,1, [F – 0.005 F+0.005]/(SRd/2)) data = filtfilt(B, A, detrend(data, ‘linear’), aby zastosować filtr pasmowo-przepustowy dla ciśnienia i przepływu w pasmie ± 0,005 Hz (1Proszę podać tekst źródłowy do tłumaczenia. filtr Czebyszewa typu I z tętnieniem w pasmie przepustczania wynoszącym 1 dB) wokół częstotliwości OLBNP (Rycina 2) gdzie F to dominująca częstotliwość OLBNP, SRd to zdecymowana częstotliwość próbkowania (5 Hz po kroku 2.1.1), a „data” to zdecymowany sygnał (ciśnienie tętnicze lub przepływ).
- Decymacja i filtrowanie dolnoprzepustowe
- Estymacja regresji metodą projekcyjnego poszukiwania (Projection Pursuit Regression)
UWAGA: Korzystając z wbudowanej funkcji „ppr” w języku i środowisku obliczeń statystycznych R i/lub za pomocą funkcji napisanych samodzielnie na innych platformach, wygeneruj pojedynczą funkcję grzbietową (M=1) dla zależności między ciśnieniem tętniczym a przepływem mózgowym.- W programie Matlab wpisz polecenie „CVLabPPR(pressure,flow)”. Wprowadź identyfikator badania (Study ID) jako XXXYYY, gdzie XXX to 3-literowy kod badania, a YYY to trzy cyfry identyfikatora badanego. Wprowadź datę badania w następującym formacie: RRRR-MM-DD. Wprowadź numer pomiaru (np. „1” dla dnia 1).
- Wprowadź APM (wprowadź FP dla finapress lub AL dla art-line). Wprowadź naczynie (MCA, ACA lub PCA). Wpisz „y” lub „n” w odpowiedzi na pytanie „Do you have right MCA measurements?”. Wpisz „y” lub „n” w odpowiedzi na pytanie „Do you have left MCA measurements?”.
UWAGA:
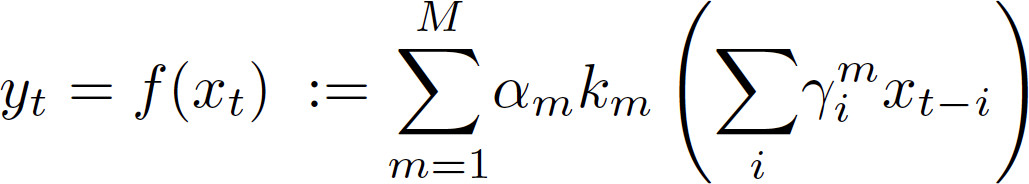
Dla każdego wejścia (Proszę podać tekst źródłowy do przetłumaczenia.t — ciśnienie tętnicze) oraz rzut serca (yt — przepływ krwi w mózgu) liniowa funkcja przejścia autoregresyjnego (Równanie 1 — człon w nawiasie) jest przekazywana przez nieparametryczne funkcje jądra (km; zwane „funkcjami grzbietowymi”), które są wyznaczane poprzez minimalizację średnio kwadratowego błędu. Regresja metodą pogoni za projekcją może obejmować więcej niż jedną funkcję grzbietową (t. j., M > 1). Jednakże, mimo że zmniejszy to średni błąd kwadratowy, może to utrudnić interpretację funkcji grzbietowych ze względu na potencjalne interakcje między nimi. Ponieważ głównym celem jest uzyskanie zależności między ciśnieniem tętniczym a mózgowym przepływem krwi, która może być interpretowana fizjologicznie, PPR należy ograniczyć tylko do jednej funkcji grzbietowej (M = 1). - Kawałkami liniowa parametryzacja. Parametryzacja funkcji grzbietowej jako funkcji kawałkami liniowej w celu przeprowadzenia dalszej analizy statystycznej (Rycina 3). W przypadku programu Matlab należy zastosować metodę aproksymacji splajnami z wolnymi węzłami (Free-knot spline approximation) autorstwa Bruno Luonga. Należy wprowadzić polecenie „BSFK(x, y, k, nknots)”, gdzie k=2 dla dopasowania liniowego, a nknots=3 dla trzech obszarów.
UWAGA: Pozwala to zidentyfikować punkty, w których zmienia się relacja między ciśnieniem tętniczym a przepływem mózgowym, oraz zakresy, w których relacja ta jest w przybliżeniu liniowa. Rysunek 3 przedstawia schemat wyników. Wzmocnienie (t. j.nachylenie liniowe) zależności między ciśnieniem a przepływem w każdym z obszarów stanowi miarę skuteczności autoregulacji mózgowej w tym obszarze. Niższa wartość wzmocnienia wskazuje na skuteczniejszą przeciwregulację wahań ciśnienia, natomiast wyższe wartości wzmocnienia wskazują na bardziej pasywne odpowiedzi przepływu na zmiany ciśnienia.
Wyniki
Amplitudy OLBNP od 10 mmHg22 do 120 mmHg17 były wykorzystywane do zwiększania fluktuacji ciśnienia tętniczego, jednak OLBNP na poziomie 30 mmHg jest wystarczające23,24 i nie przekracza zdolności regulacyjnych naczyń mózgowych.17 Ten poziom OLBNP skutkuje oscylacjami ciśnienia krwi o amplitudzie około 15-20 mmHg przy 0,03 Hz, co nie jest wartością większą niż zmiany ciśnienia krwi występujące podczas przejścia z pozycji siedzącej do stojącej.25 Istnieją pewne ograniczenia zakresu, w którym OLBNP może generować fluktuacje ciśnienia tętniczego. Autoregulacja jest aktywna jedynie przy ~0,07 Hz i wolniej, więc górna granica nie stanowi problemu. Jednak trudność w generowaniu oscylacji o niskiej częstotliwości poniżej 0,03 Hz polega na tym, że układ sercowo-naczyniowy przeciwdziała indukowanym przez LBNP zmianom ciśnienia tętniczego, zanim cykl zostanie zakończony. Jak pokazuje Rycina 4, przy OLBNP 0,025 Hz w rzeczywistości obserwujemy największy szczyt oscylacji ciśnienia tętniczego przy 0,05 Hz. Chociaż odpowiedź częstotliwościowa autoregulacji mózgowej może być charakteryzowana w zakresie od 0,03 Hz do 0,08 Hz w celu określenia skal czasowych, w których autoregulacja jest aktywna,23,24 wartości OLBNP 0,03 Hz oraz 0,08 Hz są wystarczające, ponieważ reprezentują one zakres funkcji autoregulacyjnej (t.j. od wyraźnego obszaru autoregulacyjnego do obszaru o niewielkiej aktywności lub jej braku).
OLBNP generuje większe fluktuacje ciśnienia tętniczego wraz ze zmniejszaniem się częstotliwości oscylacji ciśnienia ujemnego. Rycina 5 przedstawia fluktuacje ciśnienia tętniczego i wynikające z nich fluktuacje mózgowego przepływu krwi podczas OLBNP w zakresie od 0,08 Hz (cykle 12,5 s) do 0,03 Hz (cykle 33 s). Przy wyższych częstotliwościach mózgowy przepływ krwi fluktuuje w zgodzie z ciśnieniem tętniczym. Wykazuje to PPR; przy wyższych częstotliwościach 0,08 Hz, 0,07 Hz (cykle 14 s) i 0,06 Hz (cykle 16,6 s) występuje proporcjonalna zależność liniowa między ciśnieniem tętniczym a mózgowym przepływem krwi. Przy niższych częstotliwościach OLBNP, mimo że fluktuacje ciśnienia tętniczego stają się większe, fluktuacje mózgowego przepływu krwi są progresywnie skuteczniej tłumione. W związku z tym PPR wykazuje coraz bardziej wyraźny obszar autoregulacyjny przy częstotliwościach OLBNP od 0,05 Hz (cykle 20 s), przez 0,04 Hz (cykle 25 s), aż do 0,03 Hz. W przedstawionym przykładzie, przy 0,03 Hz, krzywa PPR wyraźnie przypomina „klasyczną krzywą autoregulacyjną” opisaną przez Lassena (Rycina 1). Wykazaliśmy wcześniej, że obserwacji tej nie można wyjaśnić jedynie wzrostem amplitudy fluktuacji ciśnienia tętniczego wraz ze zmniejszaniem się częstotliwości oscylacji. Zastosowaliśmy wcześniej PPR do danych od 48 osób przy różnych amplitudach OLBNP (a zatem przy różnej amplitudzie fluktuacji ciśnienia).19 Chociaż nie badaliśmy wprost potencjalnej zależności między zakresem autoregulacji a amplitudą fluktuacji ciśnienia, poinformowaliśmy, że zmienność zakresu autoregulacji wynosiła jedynie ok. 6%. Zatem nasze wcześniejsze wyniki wyraźnie pokazują, że zmiana krzywej PPR wraz z częstotliwością nie może być w pełni wyjaśniona zmianą amplitudy fluktuacji ciśnienia. W tym samym badaniu oceniliśmy, czy charakterystyka autoregulacji wyznaczona za pomocą PPR jest powtarzalna w oddzielnych sesjach. Analiza ta wykazała, że nachylenie zakresu autoregulacyjnego podczas OLBNP 0,03 Hz nie uległo zmianie (współczynnik zgodności Lin’a = 0,96, p < 0,001), a zatem nieliniowa zależność ciśnienie-przepływ jest spójna w różnych dniach badania.
Chociaż łożysko naczyniowe mózgu jest dobrze unerwione przez włókna nerwów współczulnych, ich rola w autoregulacji nie została szeroko zaakceptowana.26 W związku z tym, w części naszych poprzednich prac badano potencjalną rolę układu współczulnego w autoregulacji naczyniowej mózgu.24 Stwierdziliśmy wyraźną rolę układu współczulnego w regulacji przepływu mózgowego, jednak ze względu na ograniczenia metod liniowych w charakterystyce autoregulacji, nie byliśmy w stanie określić, jak zmienia się ta zależność po usunięciu efektów współczulnych. Rysunek 6 przedstawia wyniki zastosowania PPR do danych przed (poziom podstawowy) i po blokadzie współczulnej przy 0.05 Hz. Krzywa ogólna staje się wyraźnie bardziej liniowa. Ponadto analiza PPR danych dla 0.03 Hz, gdzie autoregulacja jest najbardziej widoczna, wykazała, że zakres obszaru autoregulacyjnego pozostaje niezmieniony, ale nachylenie w tym obszarze wzrasta, co odzwierciedla mniej efektywną autoregulację (Rysunek 7).
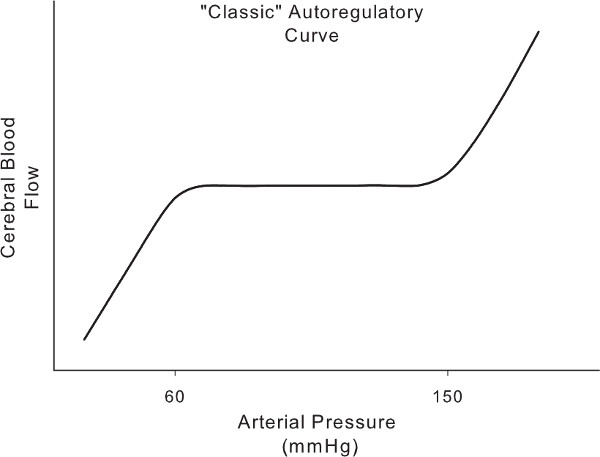
Rysunek 1. „Klasyczna” krzywa autoregulacji wynikająca z zależności między statycznymi wzrostami i spadkami ciśnienia a stacjonarnym przepływem krwi mózgowej. Obszar niezmiennego przepływu mimo zmieniającego się ciśnienia (t.j. nachylenie = 0) jest ograniczony obszarami, w których wzrosty i spadki ciśnienia powodują proporcjonalne zmiany przepływu krwi mózgowej.
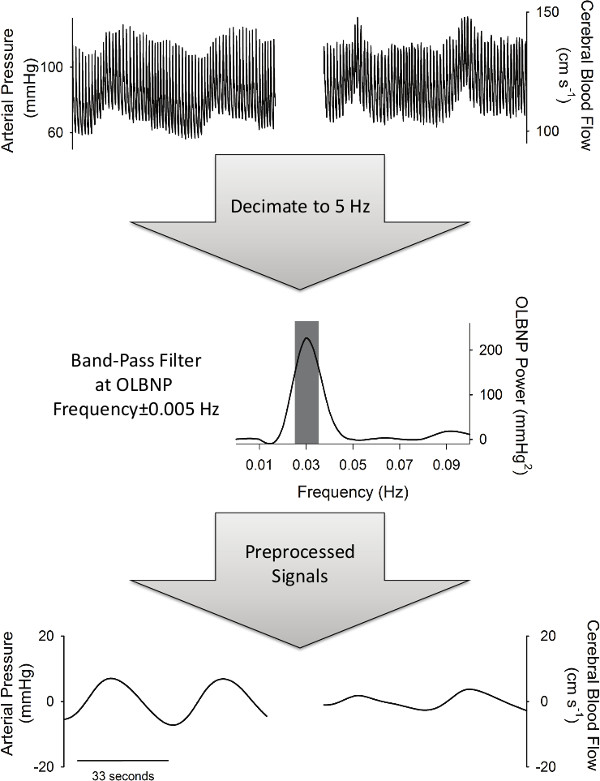
Rycina 2. Wstępne przetwarzanie niezbędne do przeprowadzenia analizy PPR. Sygnały są najpierw decymowane do 5 Hz, a następnie filtrowane pasmowo-przepustowo z częstotliwością OLBNP (±0,005 Hz).
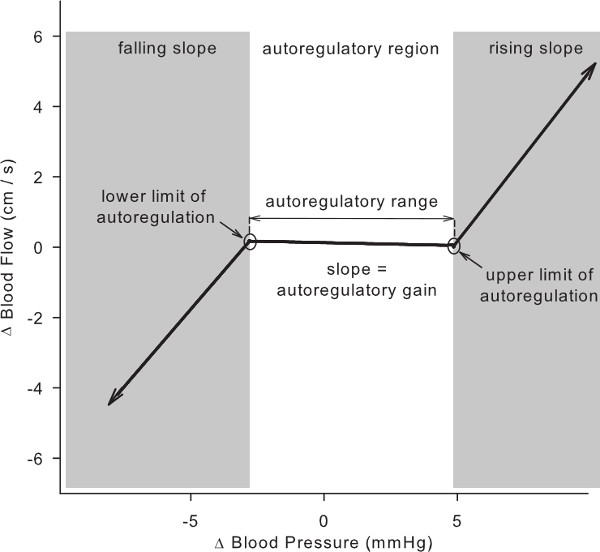
Rycina 3. Parametry krzywej autoregulacji mózgowej wyprowadzone z analizy PPR ciśnienia tętniczego i przepływu krwi w mózgu podczas 0,03 Hz OLBNP.
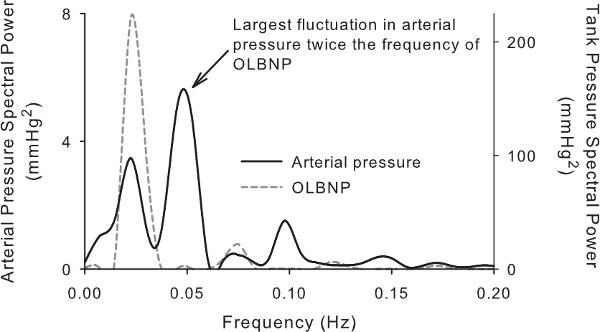
Rycina 4. Widmo mocy pokazuje amplitudę fluktuacji ciśnienia tętniczego, gdy częstotliwość OLBNP jest poniżej 0.03 Hz (cykl 33-sekundowy). Należy zauważyć, że w gęstości widmowej mocy ciśnienia tętniczego występują dwa duże piki przy 0.025 i 0.05 Hz (cykle 40 i 20 s), natomiast w widmie mocy LBNP występuje tylko jeden pik przy 0.025 Hz. Co więcej, największa fluktuacja ciśnienia występuje przy 0.05 Hz, co mogłoby zakłócić interpretację odpowiedzi przepływu krwi w mózgu.
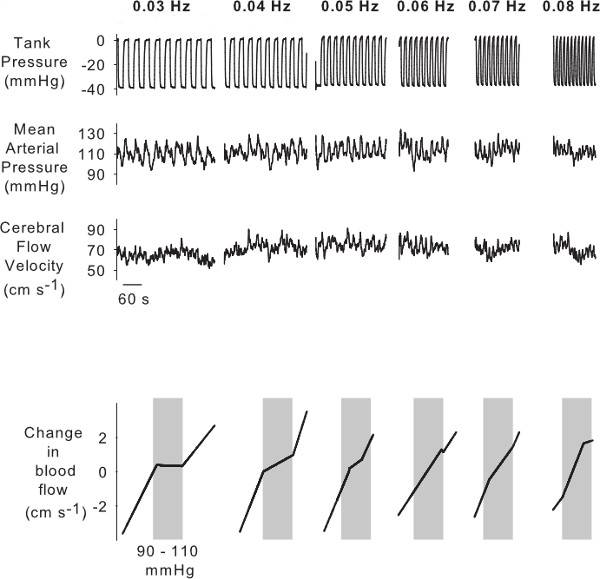
Rycina 5. Przykład wpływu OLBNP w zakresie od 0,08 do 0,03 Hz na ciśnienie tętnicze i mózgowy przepływ krwi. Fluktuacje ciśnienia tętniczego stają się większe przy wolniejszym OLBNP, podczas gdy fluktuacje mózgowego przepływu krwi stają się mniejsze. Funkcja autoregulacyjna ta jest opisana przez wyniki analizy PPR przedstawione w dolnych panelach. Obszar autoregulacji mózgowego przepływu krwi staje się stopniowo bardziej wyraźny przy wolniejszym OLBNP.
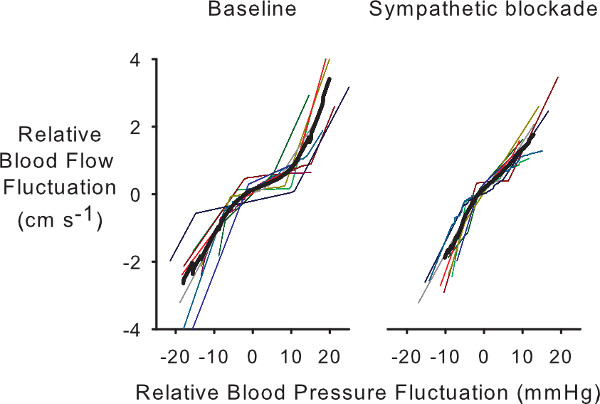
Rysunek 6. Indywidualne i uśrednione krzywe autoregulacji PPR z danych OLBNP 0,05 Hz u badanych przed (baseline) i po blokadzie współczulnej. Zauważalny jest zanik wąskiego obszaru autoregulacji po blokadzie współczulnej.
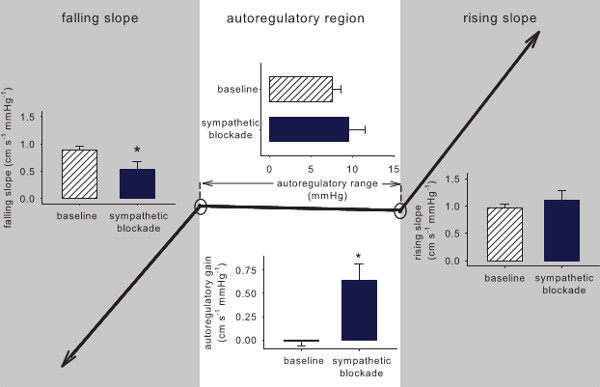
Rycina 7. Średnie parametry PPR z danych OLBNP 0,03 Hz przed i po blokadzie współczulnej. Blokada współczulna miała wyraźny wpływ na krzywą autoregulacji mózgowej w zakresie autoregulacyjnym, znacznie zwiększając nachylenie (i.e., zmiany przepływu mózgowego stały się bardziej proporcjonalne do zmian ciśnienia).
Dyskusja
Precyzyjne zdefiniowanie relacji wejścia-wyjścia może wymagać, aby wejście (w tym przypadku ciśnienie) aktywnie zmieniało się w wystarczająco szerokim zakresie, aby zaobserwować odpowiedź wyjściową. Jednak spontanicznie występujące wahania ciśnienia są wyjątkowo niespójne i mają małą amplitudę w zakresie częstotliwości autoregulacji mózgu. 27 Jest to powód, dla którego spontaniczne zmiany ciśnienia i przepływu wykazują związek z okresami wysokiej korelacji i okresami skrajnie niskiej korelacji oraz że oscylacje w przepływie krwi w mózgu wydają się pojawiać bez widocznego napędu ciśnienia tętniczego. 28 OLBNP22 zapewnia kluczową technikę tworzenia spójnych oscylacji ciśnienia tętniczego o różnej częstotliwości i amplitudzie w celu oceny reakcji przepływu krwi w mózgu. Chociaż mogą istnieć inne podejścia, które mogą zapewnić podobną sondę, to podejście pozwala na rygorystyczne testowanie zależnej od częstotliwości i/lub amplitudy zależności między ciśnieniem tętniczym a prędkością przepływu krwi w mózgu.
Wcześniejsze badania nad potencjalnymi narzędziami pomiarowymi dla autoregulacji mózgu wykorzystywały liniowe modele związku między ciśnieniem tętniczym a przepływem krwi w mózgu (np. analiza funkcji przenoszenia). Ścisłą liniową zależność między zmianami ciśnienia a przepływem bez tłumienia obserwuje się, gdy oscylacje ciśnienia są stosunkowo szybkie, tj. > ~10 sek. Jednak wolniejsze oscylacje (> ~20 sekund) powodują zależność między ciśnieniem a przepływem, która staje się coraz mniej liniowo powiązana. 8,24 Jeśli zależność nie jest silnie związana liniowo (niskie R2, niska koherencja spektralna krzyżowa), nie można mieć żadnej pewności co do dokładności miar liniowych, takich jak funkcja przenoszenia, wzmocnienie i faza. Brak zależności liniowej wskazuje na obecność ważnych nieliniowości, które są charakterystyczne dla autoregulacji mózgu. W rzeczywistości, ze względu na swoją naturę, autoregulacja nie jest podatna na charakterystykę za pomocą podejść liniowych; Podejścia liniowe mogą wskazywać na obecność lub brak autoregulacji, ale nie mogą opisywać jej cech i skuteczności.
Istnieją metody, które w swojej prostocie są porównywalne z metodami liniowymi, ale mogą oceniać nieliniowe zależności między zmiennymi wejściowymi (ciśnienie) i wyjściowymi (przepływ). Regresja dążenia do projekcji jest po prostu nieparametryczną, teoretyczną metodą regresji wielorakiej29,30 , która nie zakłada modelu a priori ani nie zakłada liniowości w relacji wejścia-wyjścia. Są to wyraźne korzyści pozwalające scharakteryzować system, który nie jest w pełni zrozumiały. Należy jednak zauważyć, że użycie więcej niż jednej funkcji grzbietu zwiększy wyjaśnioną wariancję procentową, ale kosztem zaciemnienia fizjologicznej interpretacji zależności charakterystycznych. Dlatego zaleca się, aby regresja dążenia do projekcji była ograniczona tylko do jednej funkcji grzbietu. Niemniej jednak podejście PPR nakreślone za pomocą funkcji pojedynczego grzbietu może wyjaśnić znaczną część wariancji w związku między ciśnieniem tętniczym a przepływem krwi w mózgu i ujawnić charakterystyczną nieliniową zależność, która jest spójna u różnych osób.
Ograniczenia i możliwe modyfikacje
Oscylacyjne podciśnienie w dolnej części ciała wymaga specjalnego i natrętnego sprzętu i procedur, dlatego nie nadaje się do ocen klinicznych. Możliwe, że nagrania spoczynkowe o wystarczającej długości mogą dostarczyć odpowiednich danych do analizy PPR autoregulacji mózgu. Wcześniejsze prace wykazały jednak, że regresja projekcyjna danych spoczynkowych wypada znacznie gorzej niż analiza danych OLBNP 0,03 Hz. Chociaż zależności ciśnienie-przepływ określone ilościowo w spoczynku i podczas 0,03 Hz OLBNP są powiązane,19 skromna zgodność sugeruje po prostu, że zależności ciśnienie-przepływ oszacowane w spoczynku mogą nie odzwierciedlać wiarygodnie tych wyprowadzonych z 0,03 Hz OLBNP. Jednym z rozwiązań może być generowanie stałych i większych wahań ciśnienia amplitudy w zakresie częstotliwości autoregulacji poprzez powolne, głębokie oddychanie eukapniczne lub powtarzające się manewry w przysiadzie. Wykazano, że metody te generują niezawodnie duże wahania ciśnienia, które mogą powodować zmiany w wystarczająco szerokim zakresie, aby zaobserwować reakcje przepływu krwi w mózgu. 31,32 TGL
Chociaż średnio regresja pościgu projekcyjnego może wyjaśnić znaczną część związku między ciśnieniem tętniczym a fluktuacjami przepływu w mózgu, wyjaśniona wariancja może być w niektórych przypadkach niska (~6%19). Niska wydajność może wynikać na przykład z wzorców oddychania, jeśli częstotliwość i objętość oddechowa nie są kontrolowane. Jednak każdy test fizjologiczny ma pewne nieprawidłowe obserwacje, a to podejście nie jest wyjątkiem. Słabe pomiary w ~1 z 20 obserwacji nie powinny podważać potencjalnej użyteczności tego podejścia.
Przyszłe zastosowania / Wnioski
Charakterystyczna zależność ciśnienie-przepływ może być zmieniona w niektórych stanach patofizjologicznych, takich jak udar33 i urazowe uszkodzenie mózgu. 34 Gdyby udało się uzyskać dokładne zależności w warunkach klinicznych, regresja projekcyjna autoregulacji mózgu może mieć szersze zastosowanie i być przydatna jako narzędzie oceny, gdy OLBNP nie jest dostępne. Możliwe jest, że proste manewry (np. głębokie oddychanie, mankiet udowy, praca w pozycji siedzącej) i/lub dłuższe nagrania spoczynkowe mogą skutkować zależnością ciśnienie-przepływ, którą można wykorzystać do uzyskania autoregulacji mózgu porównywalnej z danymi OLBNP. Niemniej jednak laboratoryjne określenie różnych systemów regulacyjnych i ich wkładu w nieliniowość autoregulacji może dostarczyć unikalnych informacji na temat kontroli naczyń mózgowych i umożliwić diagnozę patofizjologicznych zmian w autoregulacji mózgu (np. po urazowym uszkodzeniu mózgu).
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
To badanie było wspierane przez National Heart, Lung, and Blood Institute Grant HL-093113.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Przezczaszkowe USG Dopplerowskie | Compumedics DWL | Multi-Dop X digital | Sonda 2 MHz |
| EKG i ramienne BP | GE | Dash 2000 | |
| LBNP Zbiornik | U. of Iowa Bioengineering | Niestandardowy | |
| zawór mechaniczny | U. of Iowa Bioengineering | Niestandardowy | |
| zegar powtarzania cyklu | Makromatyka | TR-50826-07 | |
| Przetwornik ciśnienia | Gould | ||
| Fotopletyzmograficzny monitor ciśnienia na palcu | Finapres Medical Systems | Finometer PRO | |
| Analizator gazów CO2 | VacuMed | #17515 Analizator CO2, Gold Edition | |
| System akwizycji danych | AD Instruments | Systemy akwizycji danych - PowerLab |
Bibliografia
- Strandgaard, S., Paulson, O. B. Cerebral autoregulation. Stroke. 15, 413-416 (1984).
- Lassen, N. A. Cerebral blood flow and oxygen consumption in man. Physiol. Rev. 39, 183-238 (1959).
- Symon, L., Held, K., Dorsch, N. W. A study of regional autoregulation in the cerebral circulation to increased perfusion pressure in normocapnia and hypercapnia. Stroke. 4, 139-147 (1973).
- Rapela, C. E., Green, H. D. Autoregulation of Canine Cerebral Blood Flow. Circ. Res. 15, 205-212 (1964).
- Aaslid, R., Markwalder, T. M., Nornes, H. Noninvasive transcranial Doppler ultrasound recording of flow velocity in basal cerebral arteries. J. Neurosurg. 57, 769-774 (1982).
- Aaslid, R., Lindegaard, K. F., Sorteberg, W., Nornes, H. Cerebral autoregulation dynamics in humans. Stroke. 20, 45-52 (1989).
- Newell, D. W., Grady, M. S., Sirotta, P., Winn, H. R. Evaluation of brain death using transcranial Doppler. Neurosurgery. 24, 509-513 (1989).
- Hamner, J. W., Cohen, M. A., Mukai, S., Lipsitz, L. A., Taylor, J. A. Spectral indices of human cerebral blood flow control: responses to augmented blood pressure oscillations. J. Physiol. 559, 965-973 (2004).
- Blaber, A. P., et al. Complexity of middle cerebral artery blood flow velocity: effects of tilt and autonomic failure. Am J Physiol. 273, 2209-2216 (1997).
- Diehl, R. R., Linden, D., Lucke, D., Berlit, P. Spontaneous blood pressure oscillations and cerebral. 8, 7-12 (1998).
- Panerai, R. B., Rennie, J. M., Kelsall, A. W., Evans, D. H. Frequency-domain analysis of cerebral autoregulation from spontaneous fluctuations in arterial blood pressure. Med. Biol. Eng. Comput. 36, 315-322 (1998).
- Zhang, R., Zuckerman, J. H., Levine, B. D. Deterioration of cerebral autoregulation during orthostatic stress: insights from the frequency domain. J. Appl. Physiol. 85, 1113-1122 (1998).
- Wolthuis, R. A., Bergman, S. A., Nicogossian, A. E. Physiological effects of locally applied reduced pressure in. 54, 566-595 (1974).
- Esch, B. T., Scott, J. M., Warburton, D. E. Construction of a lower body negative pressure chamber. Adv. Physiol. Educ. 31, 76-81 (2007).
- Brown, C. M., Dutsch, M., Ohring, S., Neundorfer, B., Hilz, M. J. Cerebral autoregulation is compromised during simulated fluctuations in gravitational stress. Eur. J. Appl. Physiol. 91, 279-286 (2004).
- Hidaka, I., et al. Noise-enhanced heart rate and sympathetic nerve responses to oscillatory lower body negative pressure in humans. J. Neurophysiol. 86, 559-564 (2001).
- Tzeng, Y. C., Chan, G. S., Willie, C. K., Ainslie, P. N. Determinants of human cerebral pressure-flow velocity relationships: new insights from vascular modelling and Ca(2)(+) channel blockade. J. Physiol. 589, 3263-3274 (2011).
- Zhang, R., et al. Autonomic neural control of dynamic cerebral autoregulation in humans. Circulation. 106, 1814-1820 (2002).
- Tan, C. O. Defining the characteristic relationship between arterial pressure and cerebral flow. J. Appl. Physiol. 113, 1194-1200 (2012).
- Schmidt, E. A., et al. Symmetry of cerebral hemodynamic indices derived from bilateral transcranial Doppler. J. Neuroimaging. 13, 248-254 (2003).
- Paulson, O. B., Strandgaard, S., Edvinsson, L. Cerebral autoregulation. Cerebrovasc. Brain. Metab. Rev. 2, 161-192 (1990).
- Hamner, J. W., Morin, R. J., Rudolph, J. L., Taylor, J. A. Inconsistent link between low-frequency oscillations: R-R interval responses to augmented Mayer waves. J. Appl. Physiol. 90, 1559-1564 (2001).
- Hamner, J. W., Tan, C. O., Tzeng, Y. C., Taylor, J. A. Cholinergic control of the cerebral vasculature in humans. J. Physiol. 590, 6343-6352 (2012).
- Hamner, J. W., Tan, C. O., Lee, K., Cohen, M. A., Taylor, J. A. Sympathetic control of the cerebral vasculature in humans. Stroke. 41, 102-109 (2010).
- Narayanan, K., Collins, J. J., Hamner, J., Mukai, S., Lipsitz, L. A. Predicting cerebral blood flow response to orthostatic stress from resting dynamics: effects of healthy aging. Am. J. Physiol. Regul. Integr. Comp. Physiol. 281, 716-722 (2001).
- Lieshout, J. J., Secher, N. H. Point:Counterpoint: Sympathetic activity does/does not influence cerebral blood flow. Point: Sympathetic activity does influence cerebral blood flow. J. Appl. Physiol. 105, 1364-1366 (2008).
- Taylor, J. A., Carr, D. L., Myers, C. W., Eckberg, D. L. Mechanisms underlying very-low-frequency RR-interval oscillations in humans. Circulation. 98, 547-555 (1998).
- Giller, C. A., Mueller, M. Linearity and non-linearity in cerebral hemodynamics. Med. Eng. Phys. 25, 633-646 (2003).
- Friedman, J. H., Stuetzle, W. Projection pursuit regression. Am. Stat. Assoc. 76, 817-823 (1981).
- Friedman, J. H., Tukey, J. W. A projection pursuit algorithm for exploratory data analysis. IEEE Trans. Comp. 23, 881-889 (1974).
- Claassen, J. A., Levine, B. D., Zhang, R. Dynamic cerebral autoregulation during repeated squat-stand maneuvers. J. Appl. Physiol (1985). 106, 153-160 (2009).
- Taylor, J. A., Myers, C. W., Halliwill, J. R., Seidel, H., Eckberg, D. L. Sympathetic restraint of respiratory sinus arrhythmia: implications for vagal-cardiac tone assessment in humans. Am. J. Physiol. Heart Circ. Physiol. 280, 2804-2814 (2001).
- Aries, M. J., Elting, J. W., De Keyser, J., Kremer, B. P., Vroomen, P. C. Cerebral autoregulation in stroke: a review of transcranial Doppler studies. Stroke. 41, 2697-2704 (2010).
- Rangel-Castilla, L., Gasco, J., Nauta, H. J., Okonkwo, D. O., Robertson, C. S. Cerebral pressure autoregulation in traumatic brain injury. Neurosurg. Focus. 25, 7(2008).
Przedruki i uprawnienia
