W przeciwieństwie do bezkomórkowych cząsteczek HIV-1, zakażone limfocyty T CD4+ są skutecznie wykrywane przez plazmocytoidalne komórki dendrytyczne (pDC). Niniejszy manuskrypt opisuje metodę, w której jednojądrzaste komórki krwi obwodowej (PBMC) lub izolowane pDC są hodowane wspólnie z limfocytami T zakażonymi wirusem HIV-1 w celu oceny wrodzonego wykrywania przez pDC, oceniane przez uwalnianie IFN typu I.
Artykuł metodologiczny
Ocena wrodzonego wyczuwania limfocytów T CD4 + zakażonych wirusem HIV-1 przez plazmocytoidalne komórki dendrytyczne przy użyciu systemu kohodowli ex vivo.
W tym artykule
Podsumowanie
Streszczenie
Wrodzone wykrywanie HIV-1 wymaga bezpośredniego kontaktu zakażonych limfocytów T CD4+ z plazmocytoidalnymi komórkami dendrytycznymi (pDC). Aby zbadać ten proces, opisane tutaj protokoły wykorzystują świeżo izolowane ludzkie komórki jednojądrzaste krwi obwodowej (PBMC) lub plazmocytoidalne komórki dendrytyczne (pDC) do wykrywania infekcji w linii komórek T (MT4) lub heterologicznych pierwotnych limfocytach T CD4 +. Aby zapewnić prawidłowe wykrywanie, konieczne jest, aby PBMC zostały wyizolowane natychmiast po pobraniu krwi i aby zastosowano optymalny odsetek zakażonych limfocytów T. Ponadto można zastosować wieloparametryczne barwienie cytometryczne przepływowe w celu potwierdzenia, że próbki PBMC zawierają różne linie komórkowe w fizjologicznych proporcjach. Można również uwzględnić szereg kontroli w celu oceny żywotności i funkcjonalności pDC. Obejmują one obecność specyficznych markerów powierzchniowych, ocenę odpowiedzi komórkowych na znanego agonistę szlaków receptorów Toll-Like (TLR) oraz potwierdzenie braku spontanicznej produkcji interferonu typu I (IFN). W tym systemie świeżo wyizolowane PBMC lub pDC są hodowane wspólnie z komórkami zakażonymi wirusem HIV-1 na 96-dołkowych płytkach przez 18-22 godziny. Supernatanty z tych kokultur są następnie wykorzystywane do oznaczania poziomów bioaktywnych IFN typu I poprzez monitorowanie aktywacji szlaku ISGF3 w komórkach HEK-Blue IFN-α/β. Przed i w trakcie warunków wspólnej hodowli komórki docelowe można poddać analizie cytometrii przepływowej w celu określenia szeregu parametrów, w tym odsetka zakażonych komórek, poziomów specyficznych markerów powierzchniowych i różnicowego zabijania zakażonych komórek. Chociaż protokoły te zostały początkowo opracowane w celu śledzenia produkcji IFN typu I, mogą być potencjalnie wykorzystane do badania innych cząsteczek imunomodulacyjnych uwalnianych z pDC i uzyskania dalszego wglądu w mechanizmy molekularne rządzące wykrywaniem wrodzonym HIV-1.
Wprowadzenie
Typy I wytwarzające IFN pDC stanowią pierwszą linię obrony przed infekcjami wirusowymi i jako takie służą jako istotne ogniwo między odpornością wrodzoną a nabytą 1. Podczas gdy bezkomórkowe cząsteczki HIV-1 są słabo wykrywane przez wrodzony układ odpornościowy, limfocyty T CD4 + zakażone HIV-1 są skutecznie wykrywane przez pDCs 2. Mechanizm wykrywania wymaga początkowego kontaktu między glikoproteiną otoczki wirusa (gp120) na powierzchni zakażonego limfocytu T a cząsteczkami CD4 na pDC, po czym następuje wychwycenie i internalizacja wirusa przez pDC. Późniejsze rozpoznanie przeniesionego RNA HIV-1 przez TLR7 wyzwala aktywację szlaku Myd88/IRF7 i ostatecznie prowadzi do produkcji IFN typu I3. Co ważne, drugi szlak wykrywania obecny w pDC, w którym pośredniczy TLR9, jest hamowany przez interakcję wirusowej glikoproteiny gp120 z markerem powierzchniowym specyficznym dla pDC BDCA2 4.
Szlaki wykrywania TLR7 i TLR9 pDC mogą być potencjalnie negatywnie modulowane przez zaangażowanie BST2 (również oznaczanego jako Tetherin lub CD317) z innym specyficznym dla pDC receptorem hamującym powierzchnię o nazwie ILT7 5. BST2 ulega ekspresji na wysokich poziomach na powierzchni pDC i niektórych komórek nowotworowych, ale na stosunkowo niższych poziomach w innych typach komórek, takich jak limfocyty B, makrofagi i limfocyty T. Co ważne, BST2 może być indukowany przez IFN typu I w wielu transformowanych liniach komórkowych, a także w pierwotnych hodowlach komórkowych pochodzenia ludzkiego i mysiego 6. Oprócz funkcji immunoregulacyjnej, niedawno odkryto, że BST2 hamuje uwalnianie HIV-1 i innych otoczkowych cząstek wirusa poprzez sieciowanie powstających cząstek wirusa na powierzchni zakażonej komórki 7. W przypadku HIV-1 wykazano, że kodowane przez wirusa białko dodatkowe U (Vpu) działa jako antagonista BST2. Uważa się, że Vpu obniża poziom BST2 z powierzchni komórek zakażonych wirusem HIV-1, miejsca jego aktywności wiążącej, a w rezultacie zwiększa uwalnianie i rozprzestrzenianie się wirusa 7, chociaż pogląd ten został zakwestionowany 8,9. W przypadku braku Vpu duża liczba w pełni ukształtowanych i dojrzałych cząstek potomstwa HIV-1 jest zatrzymywana na powierzchni komórki. To, czy te uwięzione cząstki mogą stanowić skuteczne cele dla wykrywania immunologicznego, nadal pozostaje kwestią otwartą. Ponadto nie jest jasne, czy Vpu może rozregulować produkcję IFN typu I z pDC poprzez modulację powierzchniowych poziomów BST2.
Wczesne badania mające na celu ocenę wykrywania HIV-1 były prowadzone przy użyciu bezkomórkowych cząsteczek HIV-1, które są ogólnie uważane za słabe induktory IFN typu I 3,10-12. Biorąc pod uwagę, że ostatnie badania sugerują, że PBMC i pDC skutecznie wykrywają limfocyty T CD4 + zakażone wirusem HIV 2,13,14, opisujemy tutaj prostą metodę pomiaru wrodzonych odpowiedzi wywołanych przez pDC po rozpoznaniu komórek zakażonych HIV-1 in vitro.
Protokół
Uwagi ogólne
Ważne jest, aby utrzymywać komórki w hodowli bez żadnego antybiotyku, ponieważ nawet kontrolowane infekcje bakteryjne mogą być wykryte przez PBMCs. Takie wykrywanie składników bakteryjnych wywoła produkcję interferonu tła, której nie można odróżnić od tej wyzwalanej przez specyficzne wykrywanie HIV-1. Ponadto wszystkie komórki muszą być rutynowo badane pod kątem braku zanieczyszczenia mykoplazmą.
Zawsze używaj roztworów wolnych od endotoksyn, kiedy tylko jest to możliwe.
Charakterystyka cytometryczna przepływowa różnych komórek, które mają być użyte w kokulturach (PBMCs, pDCs, MT4 i limfocyty T CD4+) jest opcjonalnym krokiem, ale wysoce zalecanym, ponieważ może dostarczyć cennych informacji wymaganych do prawidłowej interpretacji danego eksperymentu.
1. Przygotowanie zainfekowanych komórek docelowych
- Utrzymuj ludzką linię komórek T CD4 + MT4 w pożywce RPMI 1640 uzupełnionej 10% płodową surowicą bydlęcą (FBS), określaną od teraz jako kompletna pożywka RPMI-1640.
- Izolacja pierwotnych limfocytów T CD4 +.
- Wyizolować komórki jednojądrzaste z ludzkiej krwi obwodowej przez wirowanie w gradifikacji gęstości.
- Wyizoluj limfocyty T CD4 + za pomocą zestawu do negatywnej selekcji limfocytów T CD4 +, postępując zgodnie z zaleceniami producenta.
- Aktywuj limfocyty T CD4 + za pomocą PHA-L (5 μg / ml) przez 48 godzin, a następnie utrzymuj komórki w kompletnej pożywce RPMI-1640 uzupełnionej rekombinowaną IL-2 (100 U/ml). Infekować pierwotne limfocyty T 5 dni po izolacji.
- Zakażenie komórek docelowych (linia komórek T MT4 lub heterologiczne pierwotne limfocyty T CD4 +).
- Dwa dni przed wspólną hodowlą należy zainfekować limfocyty T wirusem HIV-1. W opisanym tutaj konkretnym przykładzie wykorzystano wirusy pNL4.3-GFP_ires_Nef typu dzikiego (WT) lub pNL4.3-GFP_ires_Nef delta Vpu (dVpu). Te szczepy wirusowe reprezentują izogeniczne zakaźne klony molekularne oznaczone zielonym białkiem fluorescencyjnym (GFP), które różnią się jedynie zdolnością do ekspresji Vpu.
- Używaj różnych wielokrotności infekcji (MOI) i wybieraj kultury o podobnym poziomie infekcji dla kokultur. W dniu kohodowli należy określić procent komórek GFP+ za pomocą cytometrii przepływowej jako markera infekcji. Do kohodowli należy używać tylko kultur o zakresie 20-50% zakażonych komórek.
Opcjonalne kroki: Wykonaj barwienie cytometryczne przepływowe w tym momencie, aby ocenić ekspresję powierzchniową interesujących molekuł/ligandów, takich jak BST2 i CD4. W przypadku barwienia powierzchni komórek ponownie zawiesić 0,5 x 10⁶ limfocytów T w 100 μl roztworu myjącego, dodać 1 μl anty-CD4_PerCP/Cy5,5 i 1 μl anty-BST2_A660. Inkubować probówki przez 45 minut w temperaturze 4°C, a następnie przemyć roztworem do przemywania metodą cytometrii przepływowej. Jeśli badania mają na celu ocenę roli antagonizmu BST2 za pośrednictwem Vpu, należy w tym czasie przeprowadzić test uwalniania cząstek HIV-1, jak opisano wcześniej 15.
2. Izolacja i wzbogacanie komórek czujnikowych (całe PBMC lub wzbogacone pDC)
Uwaga: Gdy PBMC są używane do wykrywania, rozpocznij izolację w ciągu pół godziny po pobraniu krwi i przeprowadź ją w odpowiednim czasie. Natychmiast użyj PBMC do kokultur lub wzbogacenia pDC.
- Wyizoluj komórki jednojądrzaste z ludzkiej krwi obwodowej przez wirowanie w gradionym gradifikacji gęstości.
Opcjonalny krok: Wykonaj barwienie wieloparametryczną cytometrią przepływową, aby potwierdzić, że świeżo wyizolowane PBMC zawierają różne linie komórkowe w fizjologicznych proporcjach. W przypadku barwienia powierzchni komórek należy ponownie zawiesić 106 PBMC w 100 μl roztworu blokującego Fc i inkubować przez 15 minut w temperaturze 4 °C. Po zablokowaniu dodać 1 μl anty-CD3_Pacific Blue (dla limfocytów T), 1 μl anty-CD14-PE_Texas Red (dla komórek szpikowych), 4 μl anty-BDCA2_APC i 1 μl anty-ILT7_PE (dla pDC). Inkubować probówki przez 45 minut w temperaturze 4 °C, a następnie przemyć roztworem do przemywania metodą cytometrii przepływowej. - Wzbogać pDC za pomocą zestawu do ujemnego wyboru pDC, postępując zgodnie z zaleceniami producenta. Zaleca się szybką pracę, utrzymywanie ogniw w niskiej temperaturze i stosowanie wstępnie schłodzonych roztworów. Zapobiegnie to ograniczaniu przeciwciał na powierzchni komórki i niespecyficznemu znakowaniu komórek, a także zapewni maksymalną aktywność pDC.
- Wykonaj wieloparametryczną analizę cytometryczną przepływową świeżo wyizolowanych pDC, aby potwierdzić czystość, procent wzbogacenia i względne ilości markerów powierzchniowych specyficznych dla pDC (takich jak ILT7 i BDCA2). W przypadku barwienia powierzchni komórek ponownie zawiesić 104 pDC w 100 μl roztworu blokującego Fc i inkubować przez 15 minut w temperaturze 4 °C. Po zablokowaniu dodać 1 μl anty-CD3_Pacific niebieskiego, 1 μl anty-CD14_PE_Texas czerwonego , 4 μl anty-BDCA2_APC i 1 μl anty-ILT7_PE. Inkubować probówki przez 45 minut w temperaturze 4 °C, a następnie przemyć roztworem do przemywania metodą cytometrii przepływowej (PBS, 5 mM EDTA, 5% FBS). Zalecana jest czystość co najmniej 40% pDC (jeśli materiał wyjściowy ma 0,4% pDC, byłoby to równoznaczne ze 100-krotnym wzbogaceniem).
3. Jednoczesna hodowla zakażonych limfocytów T CD4+ i komórek czujnikowych (całe PBMC lub wzbogacone pDC)
- Zmieszać 220 μl PBMC (rozcieńczonych w 850 000 komórek/ml) lub 220 μl pDC (w stężeniu w zakresie od 100 000 do 500 000 komórek/ml) z 30 μl zakażonych limfocytów T (rozcieńczonych w 106 komórek/ml) na basenik w 96-dołkowej płytce z dnem U.
- Jako kontrole, płytka PBMC lub pDC i same limfocyty T. Dostosuj głośność do 250 μl za pomocą kompletnego medium RPMI 1640.
- Oceń odpowiedzi komórkowe na znanego agonistę szlaków TLR7 i TLR9. W tym celu umieścić 220 μl PBMC (rozcieńczonych w 850 000 komórek/ml) lub 200 μl pDC (w stężeniu w zakresie od 100 000 do 500 000 komórek/ml) na basenik w 96-dołkowej płytce z dnem U i dodać agonistę TLR7 (imikwimod, stężenie końcowe: 2,5 μg/ml) lub agonistę TLR9 (ODN 2216 CpG-A, stężenie końcowe: 5 μM). Inkubować komórki w temperaturze 37 °C i 5% CO2 przez 18–22 godzin i przetwarzać je w sposób podobny do kokultur opisanych poniżej.
- Inkubować kokultury w temperaturze 37 °C i 5% CO2 przez 18-22 godzin, a następnie przenieść je na 96-dołkową płytkę z dnem w kształcie litery V. Wirować przez 5 minut przy 400 x g.
- Przenieść supernatanty na płaskodenną płytkę 96-dołkową. Supernatanty mogą być przechowywane w temperaturze -80 °C lub natychmiast używane do wykrywania IFN typu I.
- Ponownie zawiesić współhodowane komórki w 2% paraformaldehydzie i przeanalizować je za pomocą cytometrii przepływowej. Ze względu na różnice w wielkości i granulacji, komórki MT4 można łatwo odróżnić od PBMC lub pDC na podstawie ich profili rozpraszania bocznego (SS) i rozproszenia do przodu (FS). Jeśli pierwotne limfocyty T są używane jako docelowe zakażone komórki, można je wybarwić dowolnym barwnikiem śledzącym komórki, takim jak CSFE, przed wspólną hodowlą.
- Pomiar bioaktywnego IFN typu I za pomocą komórek reporterowych HEK-Blue IFN-α/β.
Uwaga: Komórki te zostały wygenerowane przez stabilną transfekcję komórek HEK293 z ludzkimi genami STAT2 i IRF9 w celu uzyskania w pełni aktywnego szlaku sygnałowego IFN typu I. Zawierają one również gen reporterowy wydzielanej fosfatazy alkalicznej (SEAP) pod kontrolą indukowanego przez IFN-α/β promotora ISG54. Stymulacja tych komórek IFN typu I aktywuje szlak JAK/STAT/ISGF3 i indukuje produkcję SEAP.- Utrzymuj komórki HEK-Blue IFN-α/β w DMEM uzupełnione 10% FBS. Płytkować je z gęstością 50 000 komórek na studzienkę na płaskiej płytce 96-dołkowej, w końcowej objętości 180 μl.
- Dodać 20 μl supernatantu do każdej studzienki w dwóch egzemplarzach. Każda płytka wymaga również zestawu wewnętrznych wzorców kontrolnych (ludzki IFNα, stężenie końcowe od 100 U/ml do 2 500 U/ml). Inkubować płytki w temperaturze 37 °C i 5% CO2 przez 18-22 godzin.
- Oznaczyć poziomy aktywności fosfatazy alkalicznej za pomocą roztworu QUANTI-Blue, który zmienia kolor z różowego na fioletowy/niebieski w obecności enzymu. Przygotuj QUANTI-Blue zgodnie z zaleceniami producenta. Dodać 180 μl tego roztworu do każdego dołka płaskodennej płytki 96-dołkowej. Do każdej studzienki dodać również 20 μl indukowanych supernatantów komórek HEK-Blue IFN-α/β i inkubować płytkę w inkubatorze o temperaturze 37 °C, aż w standardowych studzienkach kontrolnych IFN pojawi się kolor.
- Ocenić poziomy SEAP za pomocą spektrofotometru przy 620-655 nm i określić stężenie IFN typu I przez ekstrapolację z liniowej części krzywej wzorcowej IFN.
Wyniki
System współhodowli opisany na Rysunku 1 pozwala na kontrolowaną analizę wrodzonego rozpoznawania HIV-1. Ze względu na zmienną naturę komórek pierwotnych istotne jest, aby zachowano prawidłowe proporcje komórek mieloidalnych i limfocytów T (odpowiednio CD14+ i CD3+), tak jak w przykładzie przedstawionym na Rysunku 2A. Ponadto w świeżo wyizolowanych kulturach PBMC pożądana jest tylko niewielka liczba aktywowanych limfocytów T (wyższy FS i wyższy poziom CD3 w porównaniu z limfocytami T nieaktywowanymi). PBMC o nieprawidłowych proporcjach między poszczególnymi typami komórek często nie są w stanie wywołać prawidłowej wrodzonej odpowiedzi immunologicznej in vitro, co prawdopodobnie wynika z już aktywnego fenotypu będącego konsekwencją trwającej infekcji. Co najważniejsze, należy ocenić względny procent pDC, jak pokazano na Rysunku 2B. Chociaż wartość ta może wahać się od 0,2 do 1,2%, nieprawidłowy fenotyp rozpoznawania obserwuje się również przy obu ekstremach tego zakresu. Wzbogacanie pDC za pomocą selekcji negatywnej często pozwala uzyskać czystość pDC na poziomie 50-95%, co widać na dwóch przykładach na Rysunku 2B (92% i 72%). Prototypowy przykład dla całego eksperymentu przedstawiono na Rysunkach 3 i 4. W tym przykładzie komórki MT4 zainfekowano szczepem pNL4.3-GFP_ires_Nef WT lub delta Vpu, aby osiągnąć 30% infekcji w momencie rozpoczęcia współhodowli (Rysunek 3A). Jak opisano wcześniej, tylko infekcje wirusem WT doprowadziły do znaczącejy downregulation BST2 na powierzchni komórek (Rysunek 3B). Ze względu na różnice w wielkości i ziarnistości, komórki MT4 można łatwo odróżnić od PBMC za pomocą cytometrii przepływowej (Rysunek 4A). Po inkubacji w układzie współhodowli tylko PBMC w kontakcie ze znanym agonistą TLR7 lub TLR9 oraz PBMC w kontakcie z komórkami zainfekowanymi HIV-1 wydzieliły znaczące ilości IFN typu I (Rysunek 4B). Nie wykryto IFN w samych PBMC, w PBMC w współhodowli z MT4 zainfekowanymi pozornie (mock-infected) ani w samych zainfekowanych komórkach MT4 (Rysunek 4B). W przedstawionym tutaj przykładzie stwierdzono, że wrodzone rozpoznawanie zainfekowanych HIV-1 komórek MT4 przez PBMC było znacząco zredukowane w obecności Vpu.
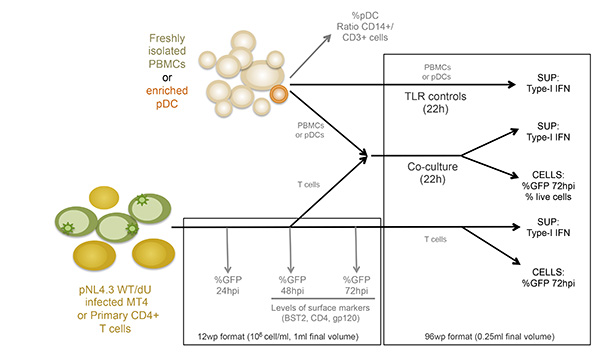
Rysunek 1: Schematyczny przegląd projektu eksperymentalnego. SUP: nadnadlew Kliknij tutaj, aby zobaczyć powiększony obraz.
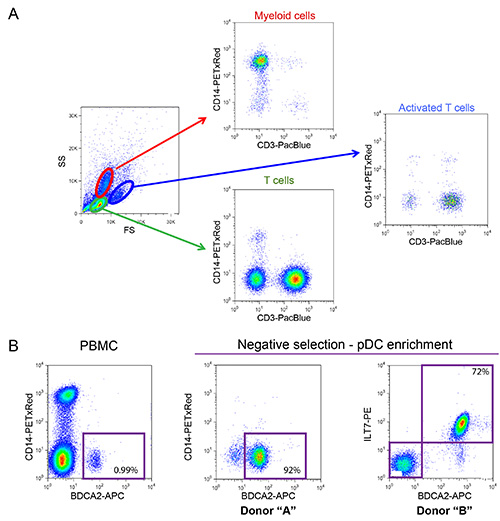
Rysunek 2: Charakterystyka fenotypowa świeżo wyizolowanych PBMC oraz wzbogaconych pDC. (A) Normalny rozkład komórek mieloidalnych i limfocytów T obserwowany w PBMC wyizolowanych od zdrowego dawcy (procent komórek mieloidalnych powinien mieścić się w przedziale 10-20%, a limfocytów T w przedziale 55-65%). Próbki PBMC barwiono przeciwciałami sprzężonymi z fluoroforami, które rozpoznają powierzchniowe CD14 (marker linii mieloidalnej) i CD3 (marker limfocytów T). (B) Charakterystyka fenotypowa pDC. Przed wzbogaceniem pDC stanowią od 0,2-1,2% całkowitej liczby komórek w PBMC (0,99% w pokazanym przykładzie). Komórki te można zidentyfikować na podstawie ekspresji specyficznych markerów obecnych na powierzchni komórki, takich jak BDCA2 i ILT7. Selekcję negatywną można wykorzystać do znacznego zwiększenia liczby pDC i wyeliminowania potencjalnie szkodliwych zanieczyszczeń, takich jak komórki mieloidalne CD14+ (wzbogacenie osiągnęło 92% i 72% w dwóch pokazanych przykładach). Kliknij tutaj, aby wyświetlić powiększony obraz.
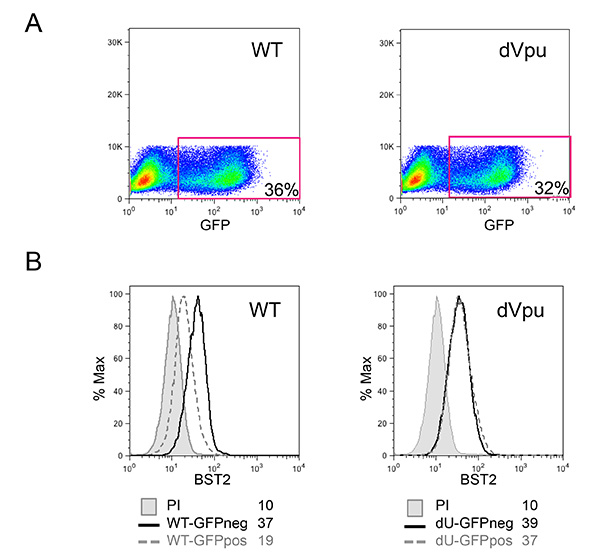
Rycina 3: Charakterystyka zainfekowanych HIV-1 docelowych komórek MT4. (A) Procent zainfekowanych komórek w kulturach MT4 zainfekowanych pNL4.3-GFP_ires_Nef WT lub dVpu, wyznaczony na podstawie odsetka komórek GFP-dodatnich. (B) Ekspresję BST2 na powierzchni komórek zainfekowanych oceniono po barwieniu powierzchniowym. Szare wypełnione histogramy reprezentują komórki pozornie zainfekowane, barwione przedimmunologicznym surowicą królika (kontrola niebarwiona); pozostałe histogramy reprezentują komórki barwione poliklonalną surowicą króliczą anty-BST2. Histogramy z liniami ciągłymi reprezentują kontrolne komórki GFP-ujemne (neg), natomiast histogramy z liniami przerywanymi odpowiadają zainfekowanym komórkom GFP-dodatnim (pos). Dla każdej próbki podano wartości średniej intensywności fluorescencji (MFI). Cytometrię przepływową przeprowadzono i przeanalizowano zgodnie z opisem w Rycini 2. Kliknij tutaj, aby wyświetlić powiększony obraz.
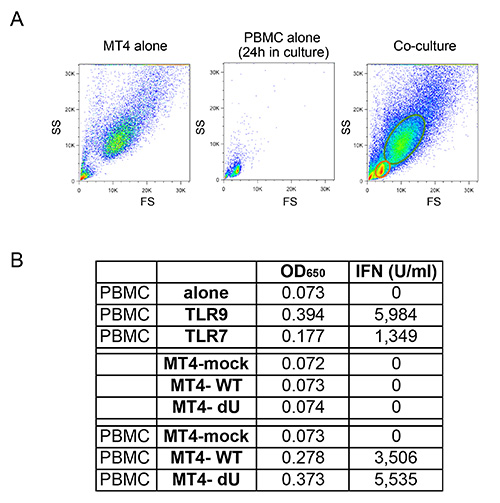
Rycina 4: Kokultura świeżo wyizolowanych PBMC i zainfekowanych limfocytów T MT4. (A) Porównanie profili FS/SS w cytometrii przepływowej obserwowanych dla samych limfocytów T MT4, samych PBMC lub kokultur PBMC i limfocytów T MT4. Ze względu na różnice w wielkości i ziarnistości, limfocyty T MT4 można łatwo odróżnić od PBMC w kokulturach za pomocą cytometrii przepływowej. (B) Reprezentatywny przykład ilości uwalnianego IFN typu I po stymulacji PBMC agonistą TLR7 lub TLR9 (ago), lub po kokulturze z kontrolnymi (mock) lub wskazanymi komórkami MT4 zainfekowanymi pNL4.3-GFP_ires_Nef WT lub dVpu. Surowe dane przedstawione jako wartości OD650 oraz ich odpowiadająca konwersja na stężenie IFN typu I wyrażone w U/ml. Kliknij tutaj, aby wyświetlić większy obraz.
Dyskusja
Opisane tutaj protokoły mierzą wykrywanie limfocytów T zakażonych wirusami HIV-1 znakowanymi GFP, które różnią się jedynie zdolnością do ekspresji Vpu, jak opisano w naszym ostatnim raporcie 18. Jednak metody te można łatwo zmodyfikować w celu zbadania wykrywania nieoznakowanych wirusów, a także wirusów pozbawionych innych genów wirusowych, które mogłyby potencjalnie modulować wykrywanie wrodzone. Jeżeli stosowane wirusy nie wykazują ekspresji GFP, odsetek zakażonych komórek docelowych należy określić za pomocą innych metod przed wspólną hodowlą, takich jak barwienie wewnątrzkomórkowe p24 (kapsyd) i cytometria przepływowa lub za pomocą testu p24 ELISA. Co więcej, protokoły te mogą być stosowane z różnymi docelowymi limfocytami T, w tym z różnymi dostępnymi liniami komórkowymi i komórkami pierwotnymi.
Metody opisane w tym manuskrypcie mają wiele zalet w porównaniu z wczesnymi metodologiami stosowanymi do badania wykrywania HIV-1. Po pierwsze i najważniejsze, wiele grup ustaliło, że bezkomórkowe cząsteczki HIV-1 są słabymi induktorami IFN typu I 2,13,14. Co więcej, wczesne badania opierały się na starszych metodach opartych na IFNα ELISA w celu ilościowego określenia ilości wyprodukowanego IFN typu I. Ograniczeniem tej techniki wykrywania jest to, że większość starszych zestawów IFNα ELISA mierzy tylko jeden typ IFNα, pomijając inne typy IFNα i IFNβ. Zastosowanie opisanych linii komórek reporterowych pozwala przezwyciężyć to ograniczenie, ponieważ stężenie wszystkich bioaktywnych form ludzkich IFN typu I może być mierzone jednocześnie. Technika ta jest bardzo czuła, tańsza niż nowa generacja zestawu IFN ELISA, a dla wielu dawców można łatwo wykryć duże ilości IFN typu I. Niemniej jednak protokół ten można łatwo dostosować do użytku z innymi metodami odczytu IFN typu I, takimi jak ELISA.
Kroki krytyczne: Ważne jest, aby jakość wszystkich składników komórkowych (zarówno tarcz, jak i efektorów) była ściśle kontrolowana. Potencjalne zakażenie, nawet bezobjawowe, musi być monitorowane i kontrolowane. Jak wspomnieliśmy wcześniej, kontrolowane antybiotykami bezobjawowe zakażenie bakteryjne i potencjalnie inne patogeny wewnątrzkomórkowe, takie jak mykoplazma, mogą generować podobne odpowiedzi immunologiczne do tych obserwowanych po zakażeniu HIV-1, a mianowicie produkcję IFN typu I. Co więcej, wszystkie odczynniki muszą być wolne od LPS lub innych potencjalnych endotoksyn. Podobnie, monitorowanie PBMC i pDC jest również ważne, ponieważ próbki ludzkie mogą być często zagruntowane przez trwające infekcje, które mogą wpływać na normalne wykrywanie. Zalecamy, aby zawsze uwzględniać proponowane kontrole ujemne, takie jak brak komórek docelowych, jak również kohodowle z pozorowanymi zakażonymi komórkami. Żywotność zakażonych komórek jest również ważna dla prawidłowego wykrywania pDC, ponieważ IFN typu I nie jest wytwarzany w wyniku jednoczesnej hodowli z komórkami apoptozy 2,14.
Jednym z istotnych ograniczeń tej techniki jest potrzeba świeżo wyizolowanych komórek pierwotnych. Procedura ta nie została przetestowana przy użyciu PBMC lub pDC, które były wcześniej zamrożone lub trzymane w hodowli. Izolacja PBMC jest pracochłonna, a komórki te mają bardzo ograniczoną żywotność. Ponadto podczas pracy z ludzką krwią należy stosować standardowe protokoły ochrony przed patogenami przenoszonymi przez krew. Często istnieje kilka źródeł zmienności związanych z pracą z udziałem świeżo wyizolowanych komórek ludzkich. Wśród nich znajdują się różne procedury stosowane w celu wyizolowania tych komórek oraz dziedziczna zmienność występująca w zależności od dawcy. Chociaż niemożliwe jest uniknięcie zmienności wśród dawców, zastosowanie sugerowanych kontroli pozytywnych, takich jak pomiar odpowiedzi na znanych agonistów szlaków TLR7 i TLR9, zapewniłoby ważną kontrolę wewnętrzną dla tych eksperymentów. Zaobserwowaliśmy, że silna odpowiedź na agonistów szlaku TLR9 może być skorelowana ze zdrową odpowiedzią pDC, podczas gdy responsywny szlak TLR7 jest wymagany do prawidłowej odpowiedzi przeciwko HIV-1 3.
Na podstawie obserwacji poczynionych przez nas i innych 2 można stwierdzić, że wzbogacanie pDC z PBMC często nie jest potrzebne. Jeśli jednak wymaga tego projekt eksperymentalny (na przykład w kontekście, w którym potrzebne jest zubożenie określonych markerów powierzchniowych pDC), selekcja negatywna jest lepsza niż selekcja pozytywna, ponieważ komórki pozostają wolne od przeciwciał po procesie selekcji. Izolowane pDC ulegają szybkiej apoptozie w hodowli. W przypadku eksperymentów, które wymagają hodowli tych komórek przez dłuższy czas, pożywki hodowlane można uzupełnić IL-3. Cytokina ta indukuje proliferację pDC i hamuje ich apoptozę 16. Jednak użycie IL-3 musi być ściśle kontrolowane, ponieważ może prowadzić do dojrzewania lub różnicowania pDC.
Opisana tutaj metoda łączy docelowe komórki zakażone wirusem HIV-1 ze świeżo wyizolowanymi PBMC lub pDC w celu odtworzenia początkowych etapów związanych z wykrywaniem wrodzonym. Metoda ta będzie niewątpliwie przydatna do badania wczesnych wrodzonych zdarzeń immunologicznych związanych z zakażeniem wirusem HIV. Chociaż powiązane protokoły mają na celu pomiar IFN typu I, można je łatwo zmodyfikować w celu pomiaru innych bioaktywnych cząsteczek uwalnianych z pDC po rozpoznaniu zakażonych komórek. Mogą to być: IFN typu III (IFN-λ), cytokiny prozapalne (takie jak TNF-α i IL-6) oraz chemokiny CXCL10, CCL4 i CCL5 17.
Podziękowania
Dziękujemy E. Massicotte i J. Lordowi za fachową pomoc techniczną podczas eksperymentów z cytometrią przepływową i sortowaniem komórek. Serdecznie dziękujemy również personelowi kliniki IRCM oraz wszystkim dawcom za udostępnienie próbek krwi. Próbki krwi obwodowej pobrano od zdrowych dorosłych dawców, którzy wyrazili pisemną świadomą zgodę zgodnie z Deklaracją Helsińską na podstawie protokołów badawczych zatwierdzonych przez komisję ds. oceny etyki badań naukowych Institut de Recherches Cliniques de Montréal (IRCM). Następujące odczynniki uzyskano za pośrednictwem NIH AIDS Reagent Program, Division of AIDS, NIAID, NIH: komórki MT4 od dr Douglasa Richmana; oraz Human rIL-2 od Dr. Maurice Gately, Hoffmann - La Roche Inc.
Dr Cohen jest laureatem Kanadyjskiej Katedry Badań nad Retrowirusologią Człowieka. Prace te były wspierane przez granty z CIHR (CIHR 111226) dla dr Cohena oraz z sieci Fonds de recherche du Québec-Santé (FRQ-S) AIDS dla dr Bego i dr Cohena.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Komórki MT4 | NIH AIDS Reagent Program | 120 | Ten odczynnik został uzyskany za pośrednictwem NIH AIDS Reagent Program, Division of AIDS, NIAID, NIH: MT-4 od dr Douglasa Richmana. |
| Ogniwa reporterowe HEK-Blu IFN-α/&beta | Invivogen | HKB-IFNAB | |
| RPMI | Żubr | 350-000-CL& | nbsp; |
| DMEM | Żubr | 319-005-CL | |
| FBS | Żubr | 080-150 | |
| Ficoll-Pâ que Plus | Myltenyi | 17-1440-03 | |
| Zestaw do izolacji limfocytów T CD4+ II | Myltenyi | 130-091-155 | |
| Diamentowy zestaw do izolacji komórek dendrytycznych plazmocytoidowych II | Myltenyi | 130-097-240 | |
| PHA-L | Sigma-Aldrich | O2769 | |
| Human rIL-2 | NIH AIDS Reagent Program | 136 | Ten odczynnik został uzyskany za pośrednictwem NIH AIDS Reagent Program, Division of AIDS, NIAID, NIH: Human rIL-2 od dr Maurice'a Gately'ego, Hoffmann - La Roche Inc. |
| Imikwimod | Invivogen | TLRL-IMQS | |
| ODN 2216 CpG-A | Hycult Biotec | HC4037 | |
| Ludzki IFN&alfa; | PBL Źródło interferonu | 11100-1 | |
| QUANTI-Niebieski | Cedran | REP-QB2 | |
| Cytometria przepływowa (przeciwciała/odczynniki) | |||
| Roztwór blokujący Fc (skład poniżej): | Uwaga: przygotować w roztworze myjącym (PBS, 5mM EDTA, 5% FBS) | ||
| 10% Kozia surowica | Sigma-Aldrich | G 9023 | |
| 10% Serum królicze | Sigma-Aldrich | R 9133 | |
| 10% Serum dla myszy | Sigma-Aldrich | M 5909 | |
| 2,5 mg/ml ludzka IgG | Sigma-Aldrich | I 4506 | |
| anty-CD3_Pacific Blue | Biolegend | 300417 | |
| anty-CD14_PE-TxRed | Life Technologie | MHCD1417 | |
| anty-BDCA2_APC | Myltenyi | 130-090-905 | |
| anty-ILT7_PE | Biolegend | 326408 | |
| anty-CD4_PerCP/Cy5.5 | Biolegend | 317427 | |
| anty-BST2_Alexa 660 | eBioscience | 50-3179 | |
| Paraformaldehyd | Sigma-Aldrich | P 6148 | |
| Sitko do komórek | BD Falcon | 352340 | |
| Cyjanowy instrument ADP | Beckman Coulter | CY20030 |
Bibliografia
- Colonna, M., Trinchieri, G., Liu, Y. J. Plasmacytoid dendritic cells in immunity. Nature immunology. 5, 1219-1226 (2004).
- Lepelley, A., et al. Innate sensing of HIV-infected cells. PLoS pathogens. 7, e1001284(2011).
- Beignon, A. S., et al. Endocytosis of HIV-1 activates plasmacytoid dendritic cells via Toll-like receptor-viral RNA interactions. The Journal of clinical investigation. 115, 3265-3275 (2005).
- Martinelli, E., et al. HIV-1 gp120 inhibits TLR9-mediated activation and IFN-{alpha} secretion in plasmacytoid dendritic cells. Proceedings of the National Academy of Sciences of the United States of America. 104, 3396-3401 (2007).
- Cao, W., et al. Regulation of TLR7/9 responses in plasmacytoid dendritic cells by BST2 and ILT7 receptor interaction. The Journal of experimental medicine. 206, 1603-1614 (2009).
- Bego, M. G., Mercier, J., Cohen, E. A. Virus-activated interferon regulatory factor 7 upregulates expression of the interferon-regulated BST2 gene independently of interferon signaling. Journal of virology. 86, 3513-3527 (2012).
- Neil, S. J., Zang, T., Bieniasz, P. D. Tetherin inhibits retrovirus release and is antagonized by HIV-1 Vpu. Nature. 451, 425-430 (2008).
- Miyagi, E., Andrew, A. J., Kao, S., Strebel, K. Vpu enhances HIV-1 virus release in the absence of Bst-2 cell surface down-modulation and intracellular depletion. Proceedings of the National Academy of Sciences of the United States of America. 106, 2868-2873 (2009).
- McNatt, M. W., Zang, T., Bieniasz, P. D. Vpu binds directly to tetherin and displaces it from nascent virions. PLoS pathogens. 9, e1003299(2013).
- Manel, N., et al. A cryptic sensor for HIV-1 activates antiviral innate immunity in dendritic cells. Nature. 467, 214-217 (2010).
- Yan, N., Regalado-Magdos, A. D., Stiggelbout, B., Lee-Kirsch, M. A., Lieberman, J. The cytosolic exonuclease TREX1 inhibits the innate immune response to human immunodeficiency virus type 1. Nature immunology. 11, 1005-1013 (2010).
- Fonteneau, J. F., et al. Human immunodeficiency virus type 1 activates plasmacytoid dendritic cells and concomitantly induces the bystander maturation of myeloid dendritic cells. Journal of virology. 78, 5223-5232 (2004).
- Ankel, H., Capobianchi, M. R., Frezza, F., Castilletti, C., Dianzani, F. Interferon induction by HIV-1-infected cells: a possible role of sulfatides or related glycolipids. Virology. 221, 113-119 (1996).
- Schmidt, B., Ashlock, B. M., Foster, H., Fujimura, S. H., Levy, J. A. HIV-infected cells are major inducers of plasmacytoid dendritic cell interferon production, maturation, and migration. Virology. 343, 256-266 (2005).
- Bego, M. G., Dube, M., Mercier, J., Cohen, E. A. Effect of calcium-modulating cyclophilin ligand on human immunodeficiency virus type 1 particle release and cell surface expression of tetherin. Journal of virology. 83, 13032-13036 (2009).
- Grouard, G., et al. The enigmatic plasmacytoid T cells develop into dendritic cells with interleukin (IL)-3 and CD40-ligand. The Journal of experimental medicine. 185, 1101-1111 (1997).
- Fitzgerald-Bocarsly, P., Jacobs, E. S. Plasmacytoid dendritic cells in HIV infection: striking a delicate balance. Journal of leukocyte biology. 87, 609-620 (2010).
- Bego MG,, Côté, É, Aschman, N., Mercier, J., Weissenhorn, W. Cohen ÉA. Exploits the Cross-Talk between BST2 and the ILT7 Receptor to Suppress Anti-HIV-1 Responses by Plasmacytoid Dendritic Cells. PLoS Pathog. 11 (7), e1005024(2015).
Przedruki i uprawnienia
