Ten protokół opisuje zewnątrzkomórkowy zapis odpowiedzi potencjału czynnościowego wyzwalanych przez neurony smaku etykietowego u Drosophila.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Zapis elektrofizjologiczny z Drosophila labellar Taste Sensilla
W tym artykule
Podsumowanie
Streszczenie
Obwodowa reakcja smakowa owadów może być dogłębnie zbadana za pomocą technik elektrofizjologicznych. Opisana tutaj metoda pozwala badaczowi mierzyć reakcje smakowe bezpośrednio i ilościowo, odzwierciedlając bodźce sensoryczne, które układ nerwowy owadów otrzymuje od bodźców smakowych w swoim otoczeniu. Protokół ten określa wszystkie kluczowe kroki w wykonywaniu tej techniki. Przedstawiono kluczowe etapy montażu stanowiska do elektrofizjologii, takie jak wybór niezbędnego sprzętu i odpowiedniego środowiska do nagrywania. Opisujemy również, jak przygotować się do nagrania poprzez wykonanie odpowiednich elektrod referencyjnych i rejestrujących oraz roztworów degustacyjnych. Szczegółowo opisujemy metodę zastosowaną do przygotowania owada poprzez wprowadzenie szklanej elektrody referencyjnej do muchy w celu unieruchomienia trąbki. Pokazujemy ślady impulsów elektrycznych wystrzeliwanych przez neurony smakowe w odpowiedzi na cukier i gorzki związek. Aspekty protokołu są trudne pod względem technicznym i dołączamy obszerny opis niektórych typowych wyzwań technicznych, które można napotkać, takich jak brak sygnału lub nadmierne zakłócenia w systemie, oraz potencjalnych rozwiązań. Technika ta ma ograniczenia, takie jak niezdolność do dostarczania czasowo złożonych bodźców, obserwowanie odpalania tła bezpośrednio przed dostarczeniem bodźca lub wygodne stosowanie nierozpuszczalnych w wodzie związków smakowych. Pomimo tych ograniczeń, technika ta (w tym niewielkie zmiany, o których mowa w protokole) jest standardową, szeroko akceptowaną procedurą rejestrowania odpowiedzi neuronalnych Drosophila na związki smakowe.
Wprowadzenie
Zmysł smaku pozwala owadowi wykryć szeroki zakres rozpuszczalnych substancji chemicznych i odgrywa ważną rolę w akceptacji substancji odżywczej lub odrzuceniu szkodliwej lub toksycznej. Uważa się również, że smak odgrywa rolę w doborze partnera, poprzez wykrywanie feromonów1-5. Te ważne i różnorodne funkcje sprawiły, że system smaku owadów stał się fascynującym celem badań nad tym, w jaki sposób systemy sensoryczne przekładają sygnały środowiskowe na odpowiednie wyniki behawioralne.
Podstawową jednostką systemu smakowego Drosophila melanogaster jest smak włosów, czyli sensillum. Cząsteczki dostają się do sensillum przez por na jego końcu2,6. Sensilla znajduje się na labellum, nogach, brzegu skrzydła i gardle6. Na labellum liczba i lokalizacja sensilla jest stereotypowa. Istnieją trzy klasy morfologiczne sensilla oparte na długości: długa (L), pośrednia (I) i krótka (S) sensilla7,8. Każda sensyllum zawiera dwa (typ I) lub cztery (typ L i S) neurony receptora smakowego (GRN)9. Różne GRN reagują na różne kategorie bodźców smakowych: gorzki, cukier, sól i osmolarność7,10 oraz wyrażają różne podzbiory receptorów smakowych8,11-13. Tylko sensilla typu I i S zawiera gorzko reagujące GRN8,10. GRN rzutują do zwoju podprzełykowego (SOG), a ich aktywacja przez cząsteczki smaku jest przekazywana do wyższego ośrodkowego układu nerwowego w celu dekodowania, co powoduje reakcję behawioralną6. Stosunkowo niewielka liczba neuronów oraz podatność na analizę molekularną i behawioralną sprawiają, że system smakowy Drosophila jest doskonałym modelem do badania układów smakowych w ogóle. Względna łatwość, z jaką można manipulować systemem za pomocą mutacji genetycznej lub systemu ekspresji GAL4-UAS, również służy jako cenne narzędzie14,15.
Ponieważ te sensille wystają z powierzchni labellum, są doskonałymi celami dla elektrofizjologii. Wypalanie GRN można monitorować za pomocą nagrywania zewnątrzkomórkowego. Historycznie rzecz biorąc, stosowano metodę zapisu na ścianie bocznej, która wykorzystuje szklaną elektrodę umieszczoną w czujniku do rejestrowania aktywności neuronalnej26. Jednak ta metoda jest technicznie trudna do wykonania i trudno jest nagrywać przez długi czas z każdego przygotowania. Metoda rejestracji końcówki, która mierzy odpowiedź neuronów za pomocą elektrody, która jednocześnie dostarcza degustant, stała się od tego czasu metodą z wyboru9,16. Został wykorzystany do zbadania systemu smakowego Drosophila melanogaster8,10,17,18, a także wielu innych gatunków owadów19-23. Zostało to znacznie ułatwione dzięki opracowaniu wzmacniacza tastePROBE, który przezwyciężył jedną z głównych wad metody zapisu końcówki poprzez kompensację dużej różnicy potencjałów między elektrodą odniesienia a czujnikiem owadów, umożliwiając rejestrację potencjałów czynnościowych GRN bez nadmiernego wzmacniania lub filtrowania24. Innym ważnym osiągnięciem było zastosowanie cytrynianu tricholiny jako elektrolitu rejestrującego25. TCC tłumi odpowiedzi z GRN wrażliwego na osmolarność i nie stymuluje wrażliwego na sól GRN, dzięki czemu odpowiedzi generowane przez degustatory gorzkie i cukrowe są znacznie łatwiejsze do analizy25.
Tutaj opisujemy, jak obecnie odbywa się rejestracja końcówek Drosophila labellar sensilla w laboratorium Carlsona. Protokół ten wyjaśni, jak założyć odpowiedni zestaw do elektrofizjologii, jak przygotować muchę i jak wykonać nagrania smaku. Przedstawiamy również kilka reprezentatywnych danych uzyskanych przez rejestrację z podzbiorów Drosophila sensilla, a także niektóre typowe problemy i potencjalne rozwiązania, które można napotkać podczas korzystania z tej techniki.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Poniższy protokół jest zgodny ze wszystkimi wytycznymi Yale University dotyczącymi opieki nad zwierzętami.
1. Przygotowanie odczynników i sprzętu
- Konfiguracja sprzętu rejestracyjnego (Rysunek 1A).
- Wybierz pomieszczenie do ustawienia zestawu, które jest wolne od dużych wahań temperatury lub wilgotności oraz odizolowane od źródeł zakłóceń elektrycznych i mechanicznych, takich jak lodówki i wirówki.
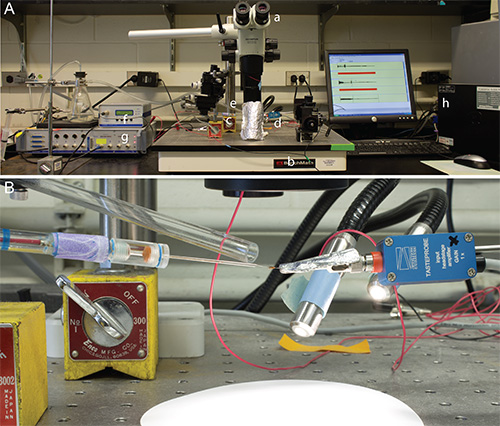
Rysunek 1. (A) Przegląd konfiguracji zestawu rejestracyjnego. Stereomikroskop (a) jest zamontowany na platformie antywibracyjnej (b). Uchwyt elektrody odniesienia (c) jest zamontowany na platformie naprzeciwko wzmacniacza przedwzmacniaczowego (d) za pomocą mikromanipulatorów. Na platformie zamontowano również plastikową rurkę wylotową (e) dostarczającą strumień nawilżonego powietrza skierowany na preparat muchy. Wzmacniacz przedwzmacniaczowy jest połączony ze wzmacniaczem (f), który jest połączony z cyfrowym systemem akwizycji danych (DAS) (g), połączonym z komputerem PC (h). (B) Konfiguracja elektrod i rurki wylotowej: elektroda odniesienia po lewej stronie, elektroda rejestrująca po prawej stronie, a wylotowa rurka strumienia powietrza skierowana na preparat muchy. Kliknij tutaj, aby wyświetlić większy obraz. - Zamontuj stereomikroskop w centrum stołu lub platformy antywibracyjnej.
- Przymocuj mikromanipulatory dla elektrody odniesienia/preparatu owada oraz wzmacniacza przedwzmacniaczowego/elektrody rejestrującej odpowiednio po lewej i prawej stronie mikroskopu, używając podstaw magnetycznych.
- Zamontuj plastikową rurkę wylotową w trzecim mikromanipulatorze z tyłu mikroskopu, orientując ją tak, aby otwór rurki był skierowany w stronę miejsca umieszczenia preparatu muchy (patrz Rysunek 1B).
- Za pomocą elastycznej plastikowej rurki połącz rurkę wylotową z kolbą próżniową częściowo wypełnioną wodą. Podłącz małą pompkę akwariową, aby napowietrzać wodę w kolbie, generując strumień nawilżonego powietrza przez plastikową rurkę wylotową w kierunku muchy.
- Zamontuj światłowodowe źródło światła poza stołem wibracyjnym, kierując wyjścia tak, aby oświetlić preparat poprzez odbicie światła od białego kartonika umieszczonego bezpośrednio pod preparatem. Upewnij się, że źródło światła nie spoczywa na stole. Uwaga: odbicie źródła światła od papierowej tarczy daje podwójną korzyść: poprawia kontrast, ułatwiając wizualizację sensilli, oraz zapobiega nagrzewaniu preparatu, które wystąpiłoby przy bezpośrednim oświetleniu.
- Podłącz wzmacniacz tastePROBE do cyfrowego systemu akwizycji danych (DAS), a DAS do komputera osobistego zgodnie z instrukcją dostawcy. Podłącz wyzwalacz nożny i umieść go pod stanowiskiem pracy. Uwaga: Bardzo pożądane jest zastosowanie elektrycznie izolowanych gniazdek ściennych dla wzmacniacza i systemu DAS.
- Uziem elektrycznie mikroskop, mikromanipulatory i źródło światła, łącząc metalowe elementy ze stołem za pomocą klipsów typu krokodylko, odcinków izolowanego przewodu elektrycznego i taśmy izolacyjnej. Uziem elektrycznie metalową platformę, łącząc ją z uziemieniem budynku lub systemem DAS, który jest uziemiony przez wtyczkę zasilacza.
- Zainstaluj odpowiednie oprogramowanie do akwizycji danych dla wybranego systemu DAS na komputerze osobistym. Uwaga: Upewnij się, że sterowniki cyfrowej akwizycji są kompatybilne z systemem operacyjnym komputera PC.
- Skonfiguruj wzmocnienie programowe (10-100x), filtrowanie sygnału (zazwyczaj filtr pasmowo-przepustowy Bessela ustawiony w zakresie 100 Hz-3 000 Hz) oraz częstotliwość próbkowania (co najmniej 10 KHz). Uwaga: Amplitudy sygnałów z neuronów smakowych mieszczą się zazwyczaj w zakresie 0,5-2 mV, dlatego skala wyświetlania jest ustawiona tak, aby ułatwić ich wizualizację. Uwaga: Filtr 100 Hz pomaga wyeliminować zewnętrzne zakłócenia elektryczne; jednak zmienia on kształt impulsów (spikes) i może utrudnić zaawansowaną segregację impulsów (spike sorting). Alternatywnie można zastosować filtr 1 Hz.
- Opcjonalnie, wokół całego stołu wibracyjnego można ustawić klatkę Faradaya. Jednak małe arkusze folii aluminiowej są zazwyczaj wystarczające do zredukowania szumów generowanych przez środowisko zewnętrzne lub badacza.
- Wybierz pomieszczenie do ustawienia zestawu, które jest wolne od dużych wahań temperatury lub wilgotności oraz odizolowane od źródeł zakłóceń elektrycznych i mechanicznych, takich jak lodówki i wirówki.
- Przygotowanie elektrod szklanych

Rysunek 2. Elektrody odniesienia i rejestrujące. Zdjęcie powiększone kapilar szklanych wyciągniętych do formy elektrody odniesienia, z (A) i bez (B) odłamanej końcówki, oraz elektrody rejestrującej (C). Biały pasek oznacza 2 mm. Kliknij tutaj, aby wyświetlić większy obraz.- Wyciągnij elektrodę odniesienia z kapilary szklanej za pomocą urządzenia do wyciągania pipet (pipette puller). Uwaga: Dokładne ustawienia programu wyciągarki będą się różnić w zależności od urządzenia. Staraj się uzyskać bardzo długi, stopniowy stożek. Wielkość otworu na końcówce nie jest kluczowa, ponieważ końcówka zostanie odłamana przed przygotowaniem muchy (Rysunki 2A i 2B); upewnij się jednak, że średnica stożkowej części elektrody nie jest ani zbyt cienka, co uniemożliwiłoby wystarczającą immobilizację labellum, ani zbyt duża, co mogłoby uszkodzić neurony smakowe lub rozerwać gruczoły ślinowe.
- Wyciągnij elektrodę rejestrującą z kapilary ze szkła borokrzemowego z włóknem za pomocą wyciągarki do pipet. Staraj się uzyskać stożek o mniejszym nachyleniu niż w przypadku elektrody odniesienia i średnicę otworu około 10-15 μm (Rysunek 2C)28.
- Przygotowanie roztworów substancji smakowych
- Użyj roztworu Ringera Beadle-Ephrussi (B&E) jako elektrolitu dla elektrody odniesienia. Aby przygotować jeden litr roztworu B&E, rozpuść 7,5 g NaCl, 0,35 g KCl i 0,279 g CaCl2∙2H2O w jednym litrze wody ultrapure. Przechowuj mniejsze aliquoty w temperaturze -20 °C.
- Użyj 30 mM roztworu cytrynianu tricholiny (TCC) jako elektrolitu dla elektrody rejestrującej i rozpuszczalnika dla roztworów substancji smakowych25, jeśli mierzone są odpowiedzi GRN na smaki gorzkie lub cukry. Alternatywnie można zastosować 1-3 mM roztwór chlorku potasu, jeśli mierzone są odpowiedzi komórki wodnej.
- Aby przygotować roztwory smakowe, odważ odpowiednią ilość substancji smakowej w formie proszku i dodaj ją do TCC, aby uzyskać początkowe stężenie roztworu macierzystego. Wykorzystaj go do przygotowania rozcieńczeń seryjnych z tego roztworu macierzystego, aby uzyskać pożądane stężenie do testów. Uwaga: Jeśli substancje smakowe nie rozpuszczają się łatwo w wodzie, do przygotowania początkowego stężenia macierzystego można użyć innego rozpuszczalnika, np. etanolu. W takim przypadku należy zastosować odpowiedni roztwór kontrolny TCC i rozpuszczalnika bez substancji smakowej.
- Przechowuj aliquoty długoterminowo w temperaturze -20 °C. Przechowuj jeden roboczy alikwot roztworu smakowego w temperaturze 4 °C do użytku podczas rejestracji przez maksymalnie tydzień, w zależności od właściwości chemicznych substancji smakowej.
2. Przygotowanie Drosophila

Rycina 3. Przygotowanie muchy do rejestracji. (A) Pozycja wprowadzenia elektrody referencyjnej do grzbietnej części klatki piersiowej muchy. Biała strzałka wskazuje elektrodę referencyjną. (B) Pozycja pośrednia elektrody referencyjnej: przesunięta przez szyję i głowę, trąba jeszcze nie jest wysunięta. (C,D) Mucha z elektrodą referencyjną w pozycji końcowej, z końcówką elektrody wewnątrz labellum i całkowicie wysuniętą trąbą. Kliknij tutaj, aby wyświetlić powiększony obraz.
- Zdobądź nowo wyklute muchy do rejestracji z dobrze utrzymanych kultur much, hodowanych w kontrolowanych warunkach temperatury i wilgotności, i pozostaw je na 5-10 dni w świeżych probówkach hodowlanych przed rozpoczęciem rejestracji.
- Schładzaj płytkę mikroskopową na lodzie przez 15-30 min przed przygotowaniem muchy.
- Napełnij szklaną elektrodę odniesienia roztworem B&E, używając długiej, cienkiej plastikowej igły o średnicy 0,5 mm (np. igły spinalnej i strzykawki 1 ml), a następnie delikatnie wystukaj wszelkie pęcherzyki powietrza. Odłam niewielki fragment końcówki za pomocą pęsety i wykorzystaj zjawisko kapilarne, aby wyciągnąć pozostałe pęcherzyki za pomocą chusteczki, obserwując proces pod mikroskopem stereoskopowym.
- Wsuń napełnioną roztworem B&E elektrodę odniesienia na drut uchwytu elektrody odniesienia, uważając, aby nie wprowadzić pęcherzyków powietrza.
- Wciągnij muchę do końcówki pipety P200, używając aspiratora do much zbudowanego z rurki, siatki i końcówki pipety;29 umieść ją w wiaderku z lodem i schładzaj przez 30-60 s.
- Wyjmij płytkę mikroskopową z lodu, wytrzyj wilgoć i umieść pod mikroskopem. Delikatnie wystukaj muchę z końcówki pipety na płytkę mikroskopową.
Uwaga: mucha powinna być wystarczająco unieruchomiona, aby można było nią łatwo manipulować. - Pod niskim powiększeniem delikatnie usuń przednie odnóża jedną pęsetą, stabilizując klatkę piersiową drugą pęsetą. Ułóż muchę na stronie brzusznej, tak aby strona grzbietowa była skierowana do góry. Uwaga: Przez cały proces przygotowania należy uważać, aby nie dotknąć pęsetą labellum, aby zminimalizować uszkodzenia mechaniczne.
- Trzymając muchę w miejscu jedną pęsetą, wprowadź elektrodę odniesienia w linii środkowej tylnej części grzbietowej klatki piersiowej. Sugerowany kąt wprowadzenia wynosi około 45 stopni w kierunku głowy (Rysunek 3A).
- Zabezpiecz uchwyt elektrody odniesienia plasteliną w taki sposób, aby mucha była widoczna pod mikroskopem przy dużym powiększeniu. Manewruj i kieruj szklaną elektrodą przez szyję i głowę, przesuwając muchę w stronę uchwytu elektrody odniesienia za pomocą dwóch pęset. Uwaga: Pracuj szybko, ale płynnie; ten etap jest łatwiejszy do wykonania, gdy mucha jest wciąż unieruchomiona przez zimno (Rysunek 3B).
- Delikatnie rozciągnij proboscis jedną pęsetą, przesuwając muchę dalej wzdłuż szklanej elektrody odniesienia, aż końcówka elektrody znajdzie się wewnątrz labellum, a proboscis zostanie w pełni wysunięty (Rysunki 3C oraz 3D). Uwaga: Należy uważać, aby nie przebić żadnej części tkanki proboscis ani nie rozciągnąć krawędzi labellum elektrodą odniesienia, ponieważ może to uszkodzić muchę i/lub neurony smakowe oraz wpłynąć na jakość rejestracji.
3. Rejestracja sygnałów z sensilli labralnych

Rycina 4. Rejestracja sygnałów z muchy. (A) preparat labellum muchy po lewej stronie oraz elektroda rejestrująca ustawiona do kontaktu po prawej stronie, w dużym powiększeniu. (B) elektroda rejestrująca w kontakcie z pojedynczym sensillum na labellum, w dużym powiększeniu. Kliknij tutaj, aby wyświetlić większy obraz.
- Zawsze uziemiaj się, dotykając metalowej powierzchni stołu lub platformy antywibracyjnej przed dotknięciem jakiegokolwiek urządzenia podczas procesu rejestracji! Uwaga: Jest niezwykle ważne, aby nie dopuścić do przekazania ładunku statycznego na przedwzmacniacz głowicowy (headstage), ponieważ może to uszkodzić układ elektroniczny.
- Zamocuj uchwyt elektrody referencyjnej do mikromanipulatora zamontowanego na stole pneumatycznym zestawu rejestracyjnego. Ustaw jeden płat labellum w polu widzenia mikroskopu, przy dużym powiększeniu (zazwyczaj co najmniej 140X), w linii strumienia nawilżonego powietrza.
- Włącz strumień nawilżonego powietrza, komputer, system DAS oraz wzmacniacz. Otwórz oprogramowanie do akwizycji danych.
- Wypłucz i napełnij szklaną elektrodę rejestrującą wybranym substancją smakową (tastantem).
- Wypłucz szklaną elektrodę rejestrującą wodą ultrapure, używając strzykawki i plastikowej rurki28, aby przeciągnąć niewielkie ilości wody przez rurkę co najmniej dziesięć razy.
- Wypłucz elektrodę rejestrującą tastantem co najmniej pięć razy. Napełnij elektrodę rejestrującą tastantem mniej więcej od jednej trzeciej do połowy i odłącz ją od rurki. Jeśli pojawią się pęcherzyki powietrza, ostukać elektrodę, aby je usunąć, lub po prostu napełnić ją ponownie.
- Szybko i płynnie nasuń elektrodę na srebrny drut przedwzmacniacza głowicowego, aby nie wprowadzić pęcherzyków powietrza.
- Stymuluj pojedynczy sensillum elektrodą rejestrującą wypełnioną tastantem.
- Użyj mikromanipulatora, aby ustawić elektrodę rejestrującą w osi wybranego sensillum.
- Naciśnij pedał nożny, aby uruchomić tryb akwizycji wzmacniacza.
- Ostrożnie przesuwaj elektrodę rejestrującą za pomocą pokrętła precyzyjnego mikromanipulatora, aż nawiąże ona kontakt z końcówką sensillum i rozpocznie się rejestracja.
- Usuń elektrodę po 1-2 sec.
- W razie potrzeby powtórz krok 3.5 z innymi sensillami. Uwaga: Odczekaj co najmniej 1 min między prezentacjami dla tego samego sensillum. Podczas długotrwałej rejestracji z użyciem pojedynczego tastantu, roztwór tastantu może wyschnąć, a roztwór w końcówce może stać się bardziej skoncentrowany. Można temu zaradzić, delikatnie dotykając końcówki szklanej elektrody gładkim papierem, aby usunąć niewielką ilość cieczy siłami kapilarnymi.
- Aby zarejestrować odpowiedzi na inny tastant, wypłucz i napełnij elektrodę rejestrującą nowym tastantem, a następnie powtórz krok 3.4. Uwaga: Dokładne wypłukanie elektrody pomiędzy tastantami jest absolutnie kluczowe, aby uniknąć zanieczyszczeń krzyżowych.
- Okresowo zapisuj pliki danych wraz z informacjami identyfikacyjnymi, takimi jak data, genotyp i użyte tastanty. Uwaga: Dla celów analizy danych ważne jest prowadzenie pisemnej dokumentacji tożsamości tastantu i sensillum dla każdej prezentacji podczas sesji rejestracyjnej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rysunek 5A przedstawia odpowiedź sensillum typu L na cukier, sacharozę. To samo sensillum nie reaguje na związek o gorzkim smaku, berberynę. Rysunek 5B pokazuje, że sensillum typu I, które zawiera neuron reagujący na smak gorzki, wykazuje kolce o większej amplitudzie w odpowiedzi na berberynę oraz kolce o mniejszej amplitudzie w odpowiedzi na sacharozę. Sensilla typu L wykazują minimalną odpowiedź tła na kontrolę rozpuszczalnika, TCC, podczas gdy sensilla typu I praktycznie nie reagują n...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Labellar sensilla różnią się łatwością zapisu ze względu na różnice w morfologii i organizacji anatomicznej. Czasami sensillum nie reaguje na żadne degustacje, nawet takie, o których wiadomo, że wywołują pozytywną reakcję. Częstotliwość, z jaką to następuje, różni się w zależności od typu sensillum. L sensilla jest najbardziej konsekwentnie responsywna i jest stosunkowo łatwo dostępna ze względu na swoją długość. Ogólnie rzecz biorąc, S sensilla są konsekwentnie responsywne, ale ich krótka długość i pozycja na labellum s...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez grant przeddoktorski NRSA 1F31DC012985 (dla R.D.) oraz przez granty NIH dla J.C.
Chcielibyśmy podziękować dr Linnei Weiss za pomocne komentarze do manuskryptu, dr Ryanowi Josephowi za pomoc w kompilacji danych liczbowych oraz dr Fredericowi Marion-Pollowi za pomocne porady techniczne. Chcielibyśmy również podziękować za pomocne uwagi czterech recenzentów.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Mikroskop stereo zoom | Olympus | SZX12 DFPLFL1,6x Okulary PF: WHN10x-H/22 | z ~150-krotnym powiększeniem z dużą odległością roboczą Stojak do montażu na stole |
| Stół antywibracyjny | Systemy kinetyczne | BenchMate2210 | |
| Mikromanipulatory | Narishige | NMN-21 | |
| Statywy magnetyczne | ENCO | Model #625-0930 | |
| Numer Referencyjny Uchwyt elektrody | Aparat Harvard | ESP/W-F10N | Może być zamontowany na pipecie serologicznej 5 ml o rozszerzonym zasięgu |
| Silver Wire | World Precision Instruments | AGW1510 | Stojak |
| retortę | o | ||
| Wylot Plastikowa rurka | ogólna, średnica 1 cm | ||
| Elastyczny plastikowy rurka | Nalgene | 8000-0060 | VI klasa 1/4 o średnicy wewnętrznej |
| stożkowa 500 ml | ogólna, z bocznym ramieniem | ||
| Pompa akwariowa | Aquatic Gardens | Airpump 2000 | |
| Światłowodowe źródło światła | Dolan-Jenner Industries | Fiber-Lite 2100 | |
| Biała karta/papier | Whatman | 1001-110 | |
| Cyfrowy system akwizycji | Syntech | IDAC-4 | Alternatywa: National Instruments NI-6251 |
| Headstage | Syntech | DTP-1 | Tasteprobe |
| Wzmacniacz Tasteprobe | Syntech | DTP-1 | Tasteprobe |
| Zaciski krokodylkowe | Grainger | 1XWN7 | Każda marka jest w porządku |
| Izolowany przewód | Ogólne | ||
| złote złącze Piny | World Precision Instruments | 5482 | |
| Komputer osobisty | Dell | Vostro | Sprawdź zgodność z cyfrowym systemem akwizycji i oprogramowaniem |
| Oprogramowanie do akwizycji | Syntech | Autospike Autospike współpracuje z IDAC-4; alternatywnie można użyć LabView z NI-6251 | |
| Folia aluminiowa i/lub klatka | Ekranowanie szumów elektromagnetycznych | ||
| Kapilary ze szkła borokrzemianowego | Świat Instrumenty precyzyjne | 1B100F-4 | |
| Ściągacz do pipet | Sutter Instrument Company | Model P-87 Flaming/Brown Ściągacz | |
| Beadle i Ephrussi Ringer Solution | Zobacz przepis w sekcji protokołu | ||
| Cytrynian tricholiny, 65% | Sigma | T0252-100G | |
| Mikroskop stereoskopowy | Olympus | VMZ 1x-4x | Możliwość powiększenia 10-40x |
| Wiadro | Ogólne | ||
| końcówki | Ogólna | ||
| igła rdzeniowa | Terumo | SN * 2590 | |
| Strzykawka 1 ml | Beckton-Dickenson | 301025 | |
| Muchowy aspirator | Składa się z końcówek do pipet P1000, elastycznej plastikowej rurki i siatki | ||
| Plastelina | do | ||
| Ogólne kleszcze | Narzędzia do nauki Przez Dumont | 11252-00 | #5SF (bardzo cienkie końcówki) |
| 10 ml Strzykawka | Beckton-Dickinson | 301029 | |
| Plastikowa rurka | Tygon | R-3603 |
Bibliografia
- Glendinning, J. I., Jerud, A., Reinherz, A. T. The hungry caterpillar: an analysis of how carbohydrates stimulate feeding in Manduca sexta. The Journal of experimental biology. 210, 3054-3067 (2007).
- Yarmolinsky, D. A., Zuker, C. S., Ryba, N. J. Common sense about taste: from mammals to insects. Cell. 139, 234-244 (2009).
- Thistle, R., Cameron, P., Ghorayshi, A., Dennison, L., Scott, K. Contact chemoreceptors mediate male-male repulsion and male-female attraction during Drosophila courtship. Cell. 149, 1140-1151 (2012).
- Toda, H., Zhao, X., Dickson, B. J. The Drosophila female aphrodisiac pheromone activates ppk23(+) sensory neurons to elicit male courtship behavior. Cell reports. 1, 599-607 (2012).
- Lu, B., LaMora, A., Sun, Y., Welsh, M. J., Ben-Shahar, Y. ppk23-Dependent chemosensory functions contribute to courtship behavior in Drosophila melanogaster. PLoS Genet. 8, e1002587(2012).
- Stocker, R. F. The organization of the chemosensory system in Drosophila melanogaster: a review. Cell and tissue research. 275, 3-26 (1994).
- Hiroi, M., Marion-Poll, F., Tanimura, T. Differentiated response to sugars among labellar chemosensilla in Drosophila. Zoological Science. 19, 1009-1018 (2002).
- Weiss, L. A., Dahanukar, A., Kwon, J. Y., Banerjee, D., Carlson, J. R. The Molecular and Cellular Basis of Bitter Taste in Drosophila. Neuron. 69, 258-272 (2011).
- Falk, R., Bleiser-Avivi, N., Atidia, J. Labellar taste organs of Drosophila melanogaster. Journal of Morphology. 150, 327-341 (1976).
- Hiroi, M., Meunier, N., Marion-Poll, F., Tanimura, T. Two antagonistic gustatory receptor neurons responding to sweet-salty and bitter taste in Drosophila. Journal of neurobiology. 61, 333-342 (2004).
- Clyne, P. J., Warr, C. G., Carlson, J. R. Candidate taste receptors in Drosophila. Science (New York, N.Y.). 287, 1830-1834 (2000).
- Cameron, P., Hiroi, M., Ngai, J., Scott, K. The molecular basis for water taste in Drosophila. Nature. 465, 91-95 (2010).
- Croset, V., et al. Ancient protostome origin of chemosensory ionotropic glutamate receptors and the evolution of insect taste and olfaction. PLoS Genet. 6, e1001064(2010).
- Brand, A. H., Perrimon, N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development (Cambridge, England). 118, 401-415 (1993).
- Parks, A. L., et al. Systematic generation of high-resolution deletion coverage of the Drosophila melanogaster genome. Nature genetics. 36, 288-292 (2004).
- Hodgson, E. S., Lettvin, J. Y., Roeder, K. D. Physiology of a primary chemoreceptor unit. Science (New York, N.Y.). 122, 417-418 (1955).
- Dahanukar, A., Lei, Y. T., Kwon, J. Y., Carlson, J. R. Two Gr genes underlie sugar reception in Drosophila. Neuron. 56, 503-516 (2007).
- Lee, Y., Kim, S. H., Montell, C. Avoiding DEET through insect gustatory receptors. Neuron. 67, 555-561 (2010).
- Descoins, C., Marion-Poll, F. Electrophysiological responses of gustatory sensilla of Mamestra brassicae (Lepidoptera, Noctuidae) larvae to three ecdysteroids: ecdysone, 20-hydroxyecdysone and ponasterone. A. J Insect Physiol. 45, 871-876 (1999).
- Glendinning, J. I., Davis, A., Ramaswamy, S. Contribution of different taste cells and signaling pathways to the discrimination of "bitter" taste stimuli by an insect. The Journal of neuroscience : the official journal of the Society for Neuroscience. 22, 7281-7287 (2002).
- Sanford, J. L., Shields, V. D., Dickens, J. C. Gustatory receptor neuron responds to DEET and other insect repellents in the yellow-fever mosquito, Aedes aegypti. Die Naturwissenschaften. 100, 269-273 (2013).
- Merivee, E., Must, A., Milius, M., Luik, A. Electrophysiological identification of the sugar cell in antennal taste sensilla of the predatory ground beetle Pterostichus aethiops. J Insect Physiol. 53, 377-384 (2007).
- Popescu, A., et al. Function and central projections of gustatory receptor neurons on the antenna of the noctuid moth Spodoptera littoralis. Journal of comparative physiology. A, Neuroethology. 199, 403-416 (2013).
- Marion-Poll, F., Der Pers, J. V. an Un-filtered recordings from insect taste sensilla. Entomologia Experimentalis et Applicata. 80, 113-115 (1996).
- Wieczorek, H., Wolff, G. The labellar sugar receptor of Drosophila. J. Comp. Physiol. A. Neuroethol Sens. Neural Behav. Physiol. 164, 825-834 (1989).
- Morita, H. Initiation of spike potentials in contact chemosensory hairs of insects. III. D.C. stimulation and generator potential of labellar chemoreceptor of calliphora. Journal of cellular and comparative physiology. 54, 189-204 (1959).
- Lacaille, F., et al. An inhibitory sex pheromone tastes bitter for Drosophila males. PLoS One. 2, e661(2007).
- Benton, R., Dahanukar, A. Electrophysiological recording from Drosophila taste sensilla. Cold Spring Harbor protocols. 2011, 839-850 (2011).
- Pellegrino, M., Nakagawa, T., Vosshall, L. B. Single sensillum recordings in the insects Drosophila melanogaster and Anopheles gambiae. J. Vis. Exp. , e1725(2010).
- Axon Instruments. The Axon Guide for Electrophysiology & Biophysics Laboratory Techniques. , (1993).
- Fujishiro, N., Kijima, H., Morita, H. Impulse frequency and action potential amplitude in labellar chemosensory neurones of Drosophila melanogaster. Journal of insect physiology. 30, 317-325 (1984).
- Marion-Poll, F., Tobin, T. R. Software filter for detecting spikes superimposed on a fluctuating baseline. Journal of neuroscience. 37, 1-6 (1991).
- Meunier, N., Marion-Poll, F., Lansky, P., Rospars, J. P. Estimation of the individual firing frequencies of two neurons recorded with a single electrode. Chem Senses. 28, 671-679 (2003).
- Marion-Poll Lab Website. , Available from: http://taste.versailles.inra.fr/fred (2013).
- Meunier, N., Marion-Poll, F., Rospars, J. P., Tanimura, T. Peripheral coding of bitter taste in Drosophila. Journal of neurobiology. 56, 139-152 (2003).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
