Heterologiczna ekspresja i oczyszczanie transbłonowego regulatora przewodnictwa mukowiscydozy (CFTR) są znaczącymi wyzwaniami i czynnikami ograniczającymi rozwój terapii lekowych mukowiscydozy. Protokół ten opisuje dwie metody izolacji miligramowych ilości CFTR odpowiednie do badań funkcjonalnych i strukturalnych.
Artykuł metodologiczny
Oczyszczanie białka transbłonowego regulatora przewodnictwa mukowiscydozy ulegającego ekspresji w Saccharomyces cerevisiae
W tym artykule
Podsumowanie
Streszczenie
Defekty w białku CFTR (transmembrane conductance regulator) mukowiscydozy powodują mukowiscydozę (CF), chorobę dziedziczoną autosomalnie recesywnie, która obecnie ogranicza średnią długość życia chorych do <40 lat. Opracowanie nowych cząsteczek leków w celu przywrócenia aktywności CFTR jest ważnym celem w leczeniu mukowiscydozy, a wyizolowanie funkcjonalnie aktywnego CFTR jest użytecznym krokiem w kierunku osiągnięcia tego celu.
Opisujemy dwie metody oczyszczania CFTR z eukariotycznego heterologicznego systemu ekspresji, S. cerevisiae. Podobnie jak systemy prokariotyczne, S. cerevisiae może być szybko hodowany w laboratorium przy niskich kosztach, ale może również transportować i modyfikować potranslacyjnie duże białka błonowe. Wybór detergentów do solubilizacji i oczyszczania jest krytycznym krokiem w oczyszczaniu każdego białka błonowego. Po przeprowadzeniu badań przesiewowych pod kątem rozpuszczalności CFTR w kilku detergentach, wybraliśmy dwa kontrastujące detergenty do stosowania w oczyszczaniu, które pozwalają na dostosowanie końcowego preparatu CFTR do planowanych następnie eksperymentów.
W tej metodzie zapewniamy porównanie oczyszczania CFTR w dodecylo-β-D-maltozydzie (DDM) i 1-tetradekanoilo-sn-glicero-3-fosfo-(1'-rac-glicerol) (LPG-14). Białko oczyszczone w DDM tą metodą wykazuje aktywność ATPazy w testach funkcjonalnych. Białko oczyszczone w LPG-14 wykazuje wysoką czystość i wydajność, może być wykorzystywane do badania modyfikacji potranslacyjnych i może być wykorzystywane do metod strukturalnych, takich jak rozpraszanie promieniowania rentgenowskiego pod małymi kątami i mikroskopia elektronowa. Wykazuje jednak znacznie niższą aktywność ATPazy.
Wprowadzenie
Mukowiscydoza (CF) jest najczęstszą chorobą genetyczną w Europie i Ameryce Północnej, z częstością występowania około 1 na 2,500 żywych urodzeń. Mukowiscydoza występuje, gdy mutacje w białku transbłonowego regulatora przewodnictwa (CFTR) mukowiscydozy powodują utratę jego funkcji w błonie komórkowej komórek nabłonkowych1. Najpoważniejszą konsekwencją tej wady jest nieodwracalne uszkodzenie płuc, które skraca oczekiwaną długość życia chorych do <40 lat2,3.
CFTR to transporter kasetowy wiążący ATP (ABC), który ewoluował, aby stać się kanałem jonowym1,4. Pomimo dość zmienionej funkcji w błonie komórkowej komórek, nadal zachowuje znaczną homologię sekwencji z innymi transporterami ABC. Co ciekawe, wyspecjalizowane części CFTR (tj. jego region regulatorowy oraz jego końce N i C) nie mają znaczącego podobieństwa sekwencji z innymi transporterami ABC metazoan, stąd nie ma wskazówek co do pochodzenia tych sekwencji w CFTR. Na podstawie swojej pierwotnej struktury, CFTR jest klasyfikowany jako członek rodziny C rodziny transporterów ABC, Nie ma jednak mocnych dowodów na szczątkowe powiązanie funkcjonalne z tą podrodziną. Istnieją pewne doniesienia o aktywności transportu glutationu dla CFTR5-7, co byłoby zgodne z rolami innych członków rodziny C8,9, chociaż inne doniesienia sugerują, że zredukowany glutation może hamować aktywność ATPazy CFTR, zamiast wykazywać stymulację wywołaną przez substrat, która charakteryzuje transportery ABC10. Pomiar przewodnictwa jonów jest wystarczająco czuły, aby umożliwić badanie aktywności kanałowej pojedynczych cząsteczek CFTR1 i właściwości kanału CFTR były monitorowane w funkcji czasu, temperatury, stężenia ATP, potencjału błonowego i stanu fosforylacji, a także w obecności wielu małocząsteczkowych inhibitorów, wzmacniaczy i modyfikatorów. Badania te znacznie poszerzyły również naszą wiedzę na temat funkcjonowania transporterów ABC. Niemniej jednak ekspresja CFTR w znacznych ilościach i jego późniejsze oczyszczanie okazało się szczególnie trudne, a sukces ograniczył się do kilku laboratoriów10-13.
Potrzeba opracowania bardziej skutecznych leków jest paląca, jednak proces ten został utrudniony przez brak oczyszczonego CFTR do badań przesiewowych małych cząsteczek. Rozwiązanie problemu ekspresji i oczyszczania CFTR umożliwiłoby wysokoprzepustowe badania przesiewowe leków mające na celu skorygowanie pierwotnej wady mukowiscydozy, a także otworzyłoby drogę do badań strukturalnych o wysokiej rozdzielczości w celu uzyskania informacji na temat racjonalnego projektowania leków. Co więcej, nawet stosunkowo podstawowe cechy biochemiczne białka, takie jak jego funkcjonalny stan oligomeryczny, oddziałujące białka i aktywność ATPazy, pozostają słabo scharakteryzowane. Wcześniej opisywaliśmy protokół ekspresji na dużą skalę mysiego CFTR znakowanego GFP i His u S. cerevisiae14, a teraz dalej opisujemy protokoły oczyszczania CFTR. Użyliśmy tych metod do oczyszczenia pięciu ortologów CFTR i jako przykład przedstawiliśmy dane dotyczące oczyszczania CFTR kurczaka. Wybór detergentów do solubilizacji i oczyszczania jest krytycznym krokiem w oczyszczaniu każdego białka błonowego. Po przeprowadzeniu badań przesiewowych pod kątem rozpuszczalności CFTR w kilku detergentach, wybraliśmy dwa kontrastujące detergenty do stosowania w oczyszczaniu. Dodecyl-β-D-maltozyd (DDM) jest niejonowym detergentem, który jest szeroko stosowany zarówno do badań strukturalnych, jak i funkcjonalnych białek błonowych15-21. Jonowy detergent 1-tetradekanoilo-sn-glicero-3-fosfo-(1'-rac-glicerol) (LPG-14) jest wysoce wydajny w solubilizacji CFTR i był wcześniej stosowany do oczyszczania funkcjonalnych białek błonowych10,22,23, w tym do oczyszczania CFTR z S. cerevisiae24.
Protokół
1. Przygotowanie
- Aby przygotować 100-krotny zapas koktajlu inhibitorów proteazy (PI), rozpuść 96 mg AEBSF, 3,5 mg chymostatyny, 10 mg E64, 16,5 mg leupeptyny, 16,5 mg pepstatyny, 348 mg PMSF i 4 mg bestatyny w 20 ml DMSO. Przygotować 1 ml porcji i przechowywać w temperaturze -20 °C. Aby przygotować 100-krotny zapas benzamidyny, rozpuść 720 mg w 20 ml ultraczystej wody (ddH2O) i przechowuj w 1 ml porcji w temperaturze -20 °C. Ta ilość wystarcza na jedno oczyszczenie. We wszystkich stosuje się zapasy PI i benzamidyny w rozcieńczeniu 1:100.
- Przygotować "mPIB" (0,3 M Tris pH 8, 0,3 M sacharozy, 2 mM DTT) i "CFTR" (50 mM Tris pH 8, 20% (v/v) glicerolu, 1 mM DTT) i schłodzić do temperatury 4 °C. Przed użyciem należy dodać 1:100 koktajlu inhibitorów proteazy i 1:100 benzamidyny w zależności od objętości mPIB użytej do ponownego wytworzenia osadu komórkowego (np. użyć 3,5 ml PI i 3,5 ml benzamidyny w łącznej objętości 350 ml mPIB).
- Przygotować do solubilizacji. Bufor solubilizacyjny lizofosfatydyloglicerol-14 (LPG) (50 mM Tris pH 8, 10% (v/v) glicerol, 50 mM NaCl, 1 mM DTT, inhibitory proteazy (PI) i 4% (w/v) LPG) i bufor solubilizacyjny dodecylmaltozydu (DDM) (50 mM Tris pH 8, 20% (v/v) glicerol, 1 M NaCl, 1 mM DTT, inhibitory proteazy, 4% (w/v) DDM). Bufor może być sonikowany w kąpieli sonikatora (35 W, 40 kHz), aby pomóc w rozproszeniu detergentu, ale należy unikać wirowania mieszaniny, ponieważ tworzy to pęcherzyki. Przed użyciem schłodzić do 4 °C.
- Bufor oczyszczający CFTR do oczyszczania LPG to 50 mM Tris, 10% (v/v) glicerol, 50 mM NaCl, 1 mM DTT, 0,1% (w/v) LPG-14 i inhibitory proteazy. Przygotować 350 ml tego buforu i 150 ml tego samego buforu plus 1 M imidazol. Dostosować pH obu do 8.
- Bufor do oczyszczania w DDM składa się z 50 mM Tris pH 8, 20% (v/v) glicerolu, 1 M NaCl, 1 mM DTT, 0,1% (w/v) DDM. Przygotować 350 ml tego buforu i 150 ml tego samego buforu plus 1 M imidazol. Dostosować pH obu do 8.
- Dla buforu do chromatografii żelowej (GPC) zawierającego LPG należy przygotować 50 mM Tris pH 8, 10% (v/v) glicerolu, 50 mM NaCl, 1 mM DTT, 0,05% (w/v) LPG-14. Dla GPC przy użyciu DDM przygotuj bufor 50 mM Tris pH 8, 20% (v/v) glicerolu, 1 M NaCl, 1 mM DTT, 0,1% (w/v) DDM. Wszystkie i ddH2O użyte w kolumnie GPC powinny być przefiltrowane (filtr 0,2 μm) i odgazowane przed użyciem.
- Bufor do próbek SDS-PAGE (2x stężenie robocze): 50 mM Tris-HCl pH 7,6, 5% (v/v) glicerol, 5 mM EDTA, 0,02% (w/v) błękit bromofenolowy. Przygotować 700 μl porcji i przechowywać w temperaturze -20 °C. Przed użyciem dodać 200 μl 20% (w/v) dodecylosiarczanu sodu (SDS) i 100 μl świeżej 0,5 M DTT. Inkubować przez co najmniej 10 minut z próbką w temperaturze pokojowej przed załadowaniem na żel. Nie podgrzewać; spowoduje to denaturację zwykłej praktyki rolniczej i może spowodować agregację CFTR.
- Aby wytworzyć zapasy lipidów do rozpuszczenia, należy rozpuścić mieszaninę lipidów E. coli i cholesterolu w stosunku 4:1 (m/m) w chloroformie i metanolu (2:1 v/v) i wysuszyć w szklanej fiolce pod gazemN2 przez 2 godziny, aby utworzyć film lipidowy. Dodać bufor GPC (bez NaCl) do stężenia lipidów 40 mg/ml i zastosować wielokrotne wirowanie i sonikację (35 W, 40 kHz) w celu wyjaśnienia roztworu.
- Do testu ATPazy należy przygotować 100-krotne zapasy inhibitorów ATPazy, rozpuszczając SCH28080 do 1 mM w DMSO, NaSCN do 1 M w ddH2O i oligomycynę do 2,5 mM w 100% (v / v) etanolu. Przechowywać w podwielokrotnościach w temperaturze -20 °C. Przygotować 100 ml buforu ATPazy z 50 mM Tris pH 7,4, 150 mM NH4Cl, 5 mMMgSO4 i 0,02% (w/v) NaN3. Można go przechowywać w temperaturze pokojowej i wykorzystywać do kilku testów. Bezpośrednio przed użyciem należy przygotować zapas ATP o pojemności 5 mM i przechowywać go na lodzie. (Uwaga: Użyj Na2ATP, aby zapobiec nadmiernemu sygnałowi tła z fosforanu w teście). Przygotować roztwór zatrzymujący SDS (12% (w/v) SDS w ddH2O).
- Do wykrywania szyflet należy przygotować bufor A (3% (w/v) askorbinian, 0,5% (w/v) molibdenian amonu, 0,5 M HCl) bezpośrednio przed użyciem i bufor B (2% (w/v) cytrynian sodu, 2% (w/v) metaarsenin sodu, 2% (v/v) kwas octowy).
2. Izolacja mikrosomów drożdży
- S. cerevisiae wykazujące ekspresję CFTR kurczaka są hodowane zgodnie z opisem w O'Ryan i in. (2012)14. Materiał z fermentacji o objętości 20 l należy przechowywać w dwóch porcjach w temperaturze -80 °C przez okres do 6 miesięcy.
- Szybko rozmrozić jedną porcję komórek i ponownie zawiesić w 3 ml schłodzonego mPIB na gram komórek.
- Rozbij komórki w młynie perełkowym za pomocą szklanych kulek o średnicy 425-600 μm. Użyj pięciu 1-minutowych okresów rozerwania komórek, oddzielonych 1-minutowymi okresami odpoczynku. (Okresy odpoczynku są niezbędne, aby zapewnić, że ogniwa nie zostaną nagrzane podczas zakłóceń).
- Monitorować rozbijanie komórek przez odwirowanie 1 ml próbki lizatu komórkowego z młyna perełkowego. Wirówka (12 000 x g, 4 °C, 5 min) w wirówce stołowej. Rozcieńczyć supernatant do 1:50 za pomocą mPIB w kuwecie i zmierzyć A380. Jeśli A380 > 0,1 lub przestał rosnąć pomimo kilku powtarzających się cykli uderzania koralikami, przejdź do następnego kroku. Jeśli nie, powtórz 2.3-2.4.
- Odwirować całkowity lizat komórkowy (12 000 x g, 4 °C, 20 min). Zachować supernatant. Odrzucić osad (zawierający nieuszkodzone komórki i mitochondria), ale jeśli istnieją jakiekolwiek wątpliwości co do skuteczności rozbijania komórek (patrz ppkt 2.4), należy również zachować osad.
- Odwirować supernatant z poprzedniego etapu (200 000 x g, 4 °C, 1,5 godz.). Odrzucić supernatant i ponownie zawiesić granulowane błony mikrosomalne w buforze CFTR. Jeżeli mikrosomy są przeznaczone do oczyszczania za pomocą DDM, należy uzupełnić bufor CFTR o 1 M NaCl.
- Powtórzyć odwirowanie zawieszonej frakcji membranowej (100 000 x g, 4 °C, 1 godz.) i odrzucić supernatant.
- Zawiesić granulowane mikrosomy w minimalnej objętości buforu CFTR (końcowa objętość 5-15 ml, całkowite białko mikrosomalne 70-200 mg). Test Bradforda może być stosowany do określenia całkowitego stężenia białek mikrosomalnych25. Ponadto należy zmierzyć widmo emisji fluorescencji membran (wzbudzenie = 485 nm, emisja = 500-600 nm) i powinno mieć wyraźny pik fluorescencji GFP (maksimum przy 512 nm). CFTR można wykryć specyficznie na żelu SDS-PAGE, zeskanowanym w warunkach fluorescencji GFP (ryc. 1).
- Zawiesiny mikrosomów należy błyskawicznie zamrozić, zanurzając je w ciekłym azocie i przechowywać w temperaturze -80 °C lub przejść do kroku 3.
3. Solubilizacja mikrosomów
- W przypadku zamrożenia mikrosomy należy rozmrozić bezpośrednio przed użyciem w łaźni wodnej o temperaturze 10 °C.
- W celu rozpuszczania błon należy rozcieńczyć mikrosomy równą objętością odpowiedniego buforu do rozpuszczania (etap 1.3), aby uzyskać końcowe stężenie detergentu 2% (w/v) i stężenie białka mikrosomalnego 5 mg/ml. Inkubować tę mieszaninę przez 1 godzinę w temperaturze 4 °C z mieszaniem (rotator probówkowy). Zachowaj 200 μl do analizy.
- Odwirować mieszaninę (100 000 x g, 4 °C, 45 min). Usunąć sklarowany sklarat zawierający rozpuszczone białka błonowe, przepuścić go przez filtr strzykawkowy 0,45 μm i przechowywać na lodzie. Zmierzyć fluorescencję supernatantu (jak w kroku 2.8).
- Zawiesić frakcję nierozpuszczalną w 1% (w/v) roztworze SDS do objętości równej frakcji rozpuszczalnej. Zmierzyć fluorescencję w tej frakcji i zachować podwielokrotność 50 μl do analizy SDS-PAGE.
4. Oczyszczanie CFTR z powinowactwem do niklu
- Połączyć szeregowo dwie kolumny sefarozy niklu o pojemności 5 ml. Przemyć 20% (v/v) etanolem o objętości 2 litrów (CV), a następnie 2 CV ddH2O, a następnie przepłukać kolumnę 2 CV buforu do rozpuszczania (etap 1.4-1.5), zawierającego 1 M imidazol. Powtórzyć z 2 CV buforu solubilizacyjnego pozbawionego imidazolu.
- Dodać imidazol do końcowego stężenia 5 mM do rozpuszczonego materiału (krok 2.8) i ręcznie załadować materiał do kolumny lub do pętli próbki, jeśli używa się automatycznego urządzenia do chromatografii cieczowej.
- Załadować rozpuszczony materiał na kolumnę z natężeniem przepływu 0,5 ml/min i przemyć 2 CV buforu pozbawionego imidazolu przy tym samym natężeniu przepływu w celu usunięcia niezwiązanego materiału. Zbierz frakcje w 50 ml probówkach Falcon.
- Do pierwszego przemywania należy użyć 3 CV buforu oczyszczającego z 40 mM imidazolem o natężeniu przepływu 1 ml/min. Zebrać 2 ml frakcji.
- Do drugiego płukania należy użyć 3 CV buforu oczyszczającego ze 100 mM imidazolem. Zebrać 2 ml frakcji.
- Eluować CFTR z kolumny HisTrap za pomocą 3 CV buforu oczyszczającego z 400 mM imidazolem. Zebrać 2 ml frakcji.
- Monitorować fluorescencję we frakcjach eluowanych (krok 2.8).
- Zachowaj podwielokrotności ułamków pików do analizy SDS-PAGE. Pozostałe próbki frakcji pikowej należy błyskawicznie zamrozić i przechowywać w temperaturze -80 °C lub przejść do następnego etapu oczyszczania.
5. Chromatografia żelowa (GPC) Oczyszczanie CFTR
- Zrównoważyć kolumnę (Superose 6 10/300 GL) z buforem 1.2 CV ddH2O, a następnie buforem GPC 1.2 CV.
- W kroku 5.1 należy skoncentrować oczyszczone frakcje o powinowactwie do niklu o najwyższej fluorescencji GFP za pomocą filtra odśrodkowego o mocy 100 000 MWCO w temperaturze 4 °C. W przypadku oczyszczania w DDM należy unikać zagęszczania próbki powyżej stężenia białka 0,3 mg/ml białka, ponieważ spowoduje to znaczną utratę próbki. Wyjąć retentat z koncentratora i odwirować przy 100 000 x g przez 30 minut w temperaturze 4 °C w celu uzyskania granulek dużych cząstek.
- Wstrzyknąć tę próbkę do kolumny i eluować za pomocą gradientu izokratycznego buforu 1,2 CV GPC. Zebrać frakcje o pojemności 0,5 ml.
- Zmierzyć fluorescencję GFP jak w sekcji 2.8 w celu zidentyfikowania frakcji zawierających CFTR. Zachowaj niewielką objętość (np. 50 μl) każdego z nich do analizy za pomocą SDS-PAGE.
- Frakcje zamrozić w ciekłym azocie i przechowywać w temperaturze -80 °C.
6. Rekonstrukcja CFTR
- Dodać lipidy (etap 1.8) do oczyszczonego CFTR w stosunku lipidów do białka 100:1 (w/w) i inkubować w temperaturze 4 °C przez 1 godzinę. Podobnie ustaw kontrolę tylko lipidów, zastępując oczyszczone białko tą samą objętością buforu GPC.
- Usuń detergent z mieszaniny białkowo-lipidowej za pomocą hydrofobowych kulek adsorbcyjnych. Umyj kulki adsorbentu w 5 CV ddH2O, 5 CV 70% (v/v) etanolu, 5 CV ddH2O i 5 CV buforze GPC bez detergentu. Dodać 200 mg przemytych kulek adsorbentu na ml oczyszczonego białka i inkubować w temperaturze 4 °C przez noc, delikatnie mieszając.
- Pobrać próbkę rozpuszczoną z kulek adsorpcyjnych do świeżej probówki za pomocą cienkiej końcówki do pipety.
7. Pomiar aktywności ATPazy
- Określ szybkość aktywności ATPazy specyficznej dla CFTR za pomocą zmodyfikowanego testu Chifflet26,27 w formacie płytki 96-dołkowej. Z roztworem podstawowym fosforanu sodu (0,65 mM) przygotować 0-20 nmol fosforanu w końcowej objętości 50 μl jako wzorce. Użyj mieszaniny 1:1 buforu CFTR i buforu ATPazy, aby rozcieńczyć zapas fosforanów.
- Inkubować zarówno rozpuszczony CFTR, jak i liposomy ślepej próby z inhibitorami ATPazy w skali 1:100 (v/v) (krok 1.9) na lodzie przez 10 minut. Użyć co najmniej 5 μg odtworzonego CFTR.
- Dodać ATP (etap 1.9) do końcowego stężenia 2 mM i inkubować w temperaturze 25 °C przez 1 godzinę. Zatrzymać reakcję przez dodanie 40 μl 10% (w/v) SDS (krok 1.9) do każdego dołka (łącznie z wzorcami).
- Dodać 100 μl buforu A (krok 1.10) i inkubować przez 10 minut. Dodać 100 μl buforu B (1.10) do każdej studzienki i zmierzyć absorbancję przy długości fali 800 nm w 96-dołkowym spektrofotometrze UV/Vis kompatybilnym z płytką.
- Przeliczyć absorbancję przy 800 nm na ilość uwolnionego fosforanu, używając wzorców fosforanowych. Oblicz szybkość hydrolizy ATP po odjęciu sygnału tła (studnie tylko liposomowe).
- W przypadku nieodtworzonego CFTR postępuj zgodnie z tym samym protokołem, używając bufora CFTR do odczytów tła.
Wyniki
Opisany powyżej protokół stanowi wydajny sposób izolacji mikrosomów wzbogaconych w CFTR, przy niemal całkowitym odzysku CFTR podczas rozbijania komórek i przygotowania surowych mikrosomów (Rysunek 1). Można również skutecznie zastosować inne metody rozbijania komórek. Wykorzystywaliśmy prasę francuską oraz inne urządzenia wysokociśnieniowe/kawitacyjne (również w połączeniu z uderzaniem w cel rubinowy) z jednakową wydajnością. Ze względu na wygodę i niskie koszty początkowe sprzętu, za najlepszą uznajemy metodę homogenizacji za pomocą kulek (bead-beating).
Zastosowanie LPG do solubilizacji i oczyszczania CFTR pozwoliło na uzyskanie 80 μg białka/L hodowli przy czystości >90% (Rycina 2). Wysoka wydajność wynikała z efektywnej solubilizacji CFTR przez LPG (porównać Rycynę 2b, ścieżki 2 i 4). Ponadto, wydajne i silne wiązanie z kolumną skutkowało minimalną utratą CFTR we frakcji nieprzypisanej oraz brakiem CFTR we frakcjach płukania (Rycina 2, ścieżki 3, 5 i 6). Eluowane białko miało czystość >90%, oszacowaną na podstawie żeli SDS-PAGE barwionych Coomassie oraz przy użyciu densytometrii prążków CFTR i zanieczyszczeń. Chromatografia żelowa (GPC) oddzieliła oczyszczone za pomocą LPG białko CFTR od zanieczyszczeń o niskiej masie cząsteczkowej (Rycina 4, panel dolny).
Protokół oczyszczania CFTR z wykorzystaniem DDM zapewnia czystość na poziomie około 60% i wydajność wynoszącą w przybliżeniu 50 μg/L (Rysunek 3). Mikroskopia elektronowa (EM) frakcji barwionych negatywnie z GPC, wymytych przy objętości około 10 ml (Rysunek 4), wykazała, że CFTR oczyszczony za pomocą DDM zawiera agregaty o średnicy 20-30 nm oraz mniejsze cząstki o średnicy 10 nm (dane niepokazane). Możliwe jest, że małe agregaty mogą odwracalnie asocjować i dysocjować, ponieważ ultrafiltracja z filtrem o progu odcięcia 1 MDa nie usunęła agregatów wykrywalnych w EM. Materiał oczyszczony za pomocą LPG nie adsorbował się do siatki poddanej wyładowaniom żarowym, dlatego zbadano go metodą cryo-EM frakcji niebarwionych. Wykazało to bardzo jednorodną populację cząstek o stosunkowo niewielkim rozmiarze (średnica 6-8 nm, dane niepokazane).
Na koniec zmierzono aktywność ATPase oczyszczonych białek (Rysunek 5). Jako przedstawiciel rodziny białek ABC, CFTR posiada dwie domeny wiążące nukleotydy (NBD), zdolne do wiązania i/lub hydrolizy ATP. Dane wskazują, że oczyszczone białko nie było zdolne do hydrolizy ATP w stanie solubilizowanym przez LPG i wykazywało słabą aktywność ATPase w obecności DDM (Rysunek 5, niezabarwione słupki). Po dodaniu lipidów i usunięciu detergentu aktywność ATPase była 4-krotnie wyższa w przypadku próbek oczyszczonych w DDM (13 nmol ATP/min/mg białka). Dodanie lipidów i usunięcie LPG w podobny sposób przywróciło aktywność CFTR izolowanego przy użyciu LPG, jednak z końcową szybkością (1,5 nmol ATP/min/mg białka) niższą niż w przypadku materiału oczyszczonego i rekonstytuowanego w DDM.
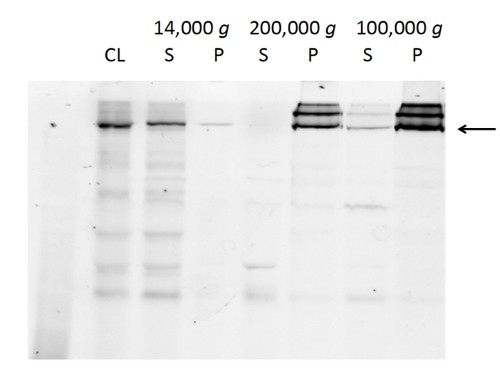
Rysunek 1. Monitoring poziomów kurzego CFTR w lizacie komórkowym (CL), supernatantach (S) i osadach (P) podczas różnych etapów wirowania stosowanych do izolacji i przemywania mikrosomów. Żele SDS-PAGE wizualizowano za pomocą fluorescencji w żelu znacznika GFP. Supernatant po rozbiciu komórek i wirowaniu przy 14,000 x g zawiera praktycznie cały CFTR (w tym produkty degradacji). Ultrawirowanie przy 200,000 x g powoduje osadzanie całego pełnowymiarowego CFTR, pozostawiając niektóre fragmenty w supernatancie. Ultrawirowanie przy 100,000 x g mikrosomów przemytych solą powoduje osadzenie prawie całego CFTR przy jednoczesnym usunięciu kolejnych fragmentów.
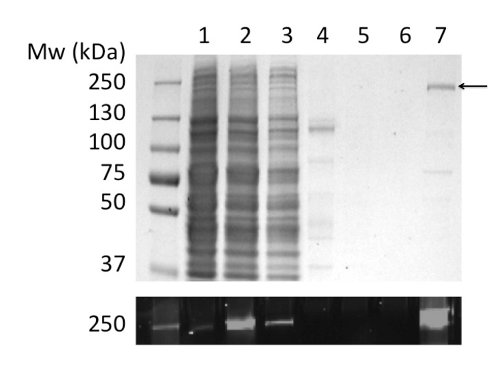
Rysunek 2. Oczyszczanie kurczego białka CFTR w LPG za pomocą chromatografii powinowactwa do zimmobilizowanych jonów metali. Frakcje analizowano za pomocą SDS-PAGE z późniejszym barwieniem Coomassie (panel górny) oraz detekcją fluorescencyjną znacznika GFP (panel dolny). Ścieżki: (1) Mikrosomy. (2) Mikrosomy solubilizowane w LPG. (3) Materiał nie związany. (4) Materiał nierozpuszczalny. (5) i (6) Płukania 40 i 100 mM imidazolem. (7) Materiał elowany 400 mM imidazolem.
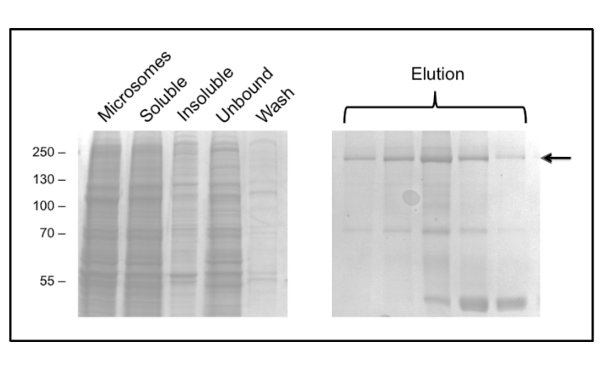
Rycina 3. Oczyszczanie kurczego CFTR w DDM za pomocą chromatografii powinowactwa do zimmobilizowanych jonów metali. Frakcje analizowano metodą SDS-PAGE, a następnie barwiono błękitem Coomassie. Panel po lewej stronie przedstawia frakcje przed elucją. Na panelu po prawej stronie pokazano kilka kolejnych frakcji elucji, gdzie CFTR wskazano strzałką. Późniejsze frakcje są wzbogacone o zanieczyszczenie o masie 40 kDa, które zostało zidentyfikowane za pomocą spektrometrii mas jako białko rybosomalne L3.
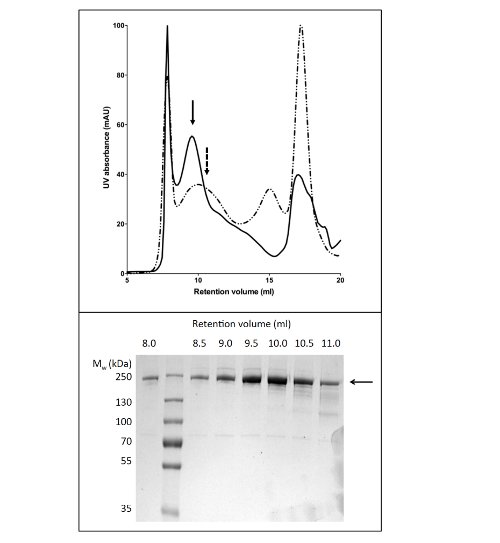
Rysunek 4. Oczyszczanie kurzego białka CFTR za pomocą chromatografii żelowej. CFTR oczyszczone metodą chromatografii powinowactwa do Ni skoncentrowano i nałożono na kolumnę GPC. Nałożono na siebie profile elucji CFTR (panel górny) oczyszczonego w buforze zawierającym LPG-14 (linia ciągła) lub DDM (linia przerywana). SDS-PAGE (panel dolny) wykazało, że CFTR eluował w zakresie od 8 do 11 ml.
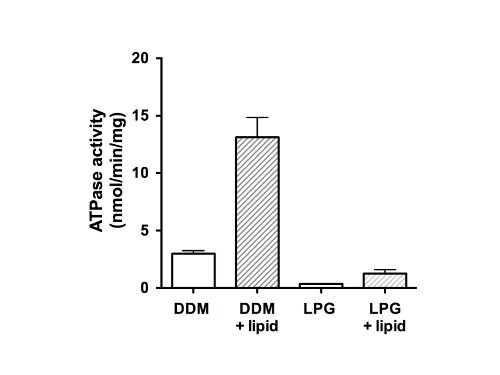
Rysunek 5. Aktywność ATPase oczyszczonych frakcji CFTR z kurczaka. Białko oczyszczone w DDM lub LPG poddano analizie przy użyciu zmodyfikowanego testu Chiffleta26 w obecności koktajlu inhibitorów ATPase w celu wyeliminowania aktywności tła ATPase typu F, P i V (słupki niezamalowane). Szybkość hydrolizy ATP zmierzono również po usunięciu detergentu i dodaniu lipidów (słupki zamalowane). Wykres przedstawia średnią i odchylenie standardowe (n=3). Różnice między wartościami średnimi dla aktywności ATPase w obecności i przy braku lipidów, a także różnica między aktywnością w DDM i LPG są istotne przy p<0,05.
Dyskusja
Wcześniej opisaliśmy metodę nadekspresji mysiego CFTR14. Od czasu opublikowania tego protokołu wyraziliśmy i oczyściliśmy kilka różnych ortologów CFTR przy użyciu tego samego systemu. Wszystkie testowane do tej pory ortologi dobrze oczyściły się w detergencie LPG, podczas gdy oczyszczanie DDM wykazało większą zmienność między różnymi ortologami (dane nie pokazane). Ta elastyczność ilustruje siłę podejścia drożdżowego: możliwe jest przesiewanie wielu konstruktów ze względną szybkością, aby wybrać jeden do określonego celu.
Mycie mikrosomów drożdży buforem zawierającym 1 M NaCl przed solubilizacją DDM daje czystszy preparat mikrosomowy i redukuje zanieczyszczenia na późniejszych etapach. Ten krok nie jest potrzebny w protokole LPG, ponieważ końcowa próbka CFTR ma czystość >90% bez mycia mikrosomamicznego. Ponadto oczyszczanie w DDM wymaga kilku zmian w do rozpuszczania i oczyszczania, a mianowicie dodania dodatkowego glicerolu i soli. Razem te dodatki znacznie zwiększyły wiązanie białka rozpuszczonego przez DDM z kolumną.
Metodyka oczyszczania DDM wymaga udoskonaleń, w szczególności w zakresie usuwania głównego zanieczyszczenia o masie 40 kDa, które, oceniając za pomocą spektrometrii mas, jest spowodowane przez podjednostkę rybosomalną L3 drożdży, która wydaje się mieć nieodłączne powinowactwo do żywicy niklowej. W białku L3 nie ma oczywistej sekwencji polyHis, ale badanie jej struktury 3D po związaniu z rybosomem (PDB = 1FFK) pokazuje, że sfałdowana podjednostka L3 ma potencjalny klaster polyHis. To, że ta opaska jest mniej problematyczna w materiale oczyszczonym LPG, może wynikać z ostrzejszego detergentu LPG.
Chociaż oczyszczanie w DDM wydaje się być gorsze niż w LPG, łagodniejsze detergenty, takie jak DDM, mogą być bardziej kompatybilne z analizami funkcjonalnymi i strukturalnymi i były już stosowane w kilku krystalograficznych badaniach rentgenowskich białek błonowych15-21. Ponadto nasze wyniki wskazują, że stosowanie LPG prowadzi do utraty funkcji ATPazy w CFTR w porównaniu z oczyszczaniem w DDM. W związku z tym zalecamy protokół oczyszczania oparty na LPG do wytwarzania CFTR, w którym czystość ma kluczowe znaczenie, na przykład w zastosowaniach takich jak charakterystyka modyfikacji potranslacyjnych lub w wytwarzaniu przeciwciał, wybrany byłby protokół oparty na LPG. Z drugiej strony w zastosowaniach, w których niezbędna jest aktywność i w pełni natywny stan białka, zaproponowalibyśmy protokół oparty na DDM jako lepszą opcję.
Podsumowując, protokół ten opisuje powtarzalną metodę izolacji CFTR w obojuczniczojonowym detergencie LPG-14 lub niejonowym detergencie DDM. W związku z tym wskazuje na większy zakres warunków oczyszczania CFTR niż wcześniej zgłaszano10-13. Ponadto za pomocą tych procedur można uzyskać miligramowe ilości oczyszczonego CFTR w połączeniu z systemem wzrostu drożdży o dużej objętości, takim jak fermentor o pojemności 20 litrów, oraz systemem zbierania komórek o dużej wydajności, takim jak wirnik wolnoobrotowy o pojemności 6 litrów. Otrzymany CFTR posiada rozszczepialny znacznik GFP, który umożliwia łatwe monitorowanie białka w różnych testach biochemicznych i biofizycznych.
Odczynnik opisany w tym manuskrypcie (plazmid zawierający CFTR kurczaka lub zamrożone komórki drożdży) można uzyskać za pośrednictwem Fundacji Mukowiscydozy (USA).
Oświadczenia
Autorzy nie mają konkurencyjnych interesów finansowych ani innych sprzecznych interesów w odniesieniu do tej pracy.
Podziękowania
Ta praca została sfinansowana przez Amerykańską Fundację Mukowiscydozy (CFF) poprzez jej Konsorcjum CFTR 3D Structure. TR był finansowany przez brytyjskie stypendium CF Trust, a NC przez brytyjskie stypendium BBSRC. Dziękujemy naszym kolegom z konsorcjum CFF CFTR 3D Structure za ich pomoc i porady oraz za projektowanie zoptymalizowanej pod kątem kodonów sekwencji CFTR kurczaka i znaczników oczyszczania.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 μ m Filtr strzykawkowy | Koncentrator odśrodkowy Sartorius | FC121 | |
| 100 kDa MWCO (membrana PES) | Vivaspin | VS0641 | |
| ml probówki do mikrofug | Sarstedt | 72.695 | |
| 40Ti rotor | Beckman Coulter | 337901 | |
| 50 ml sterylne probówki Falcon | Sarstedt | 62.547.254 | |
| Sól disodowa adenozynotrifosforanu (Na2ATP) | Sigma-Aldrich | A26209 | |
| System chromatografii cieczowej | GE Healthcare | 28-4062-64 | |
| Fluorek aminoetylobenzenesulfonylu (AEBSF) | Sigma-Aldrich | A8456 | |
| Zakłócacz komórek do bicia kulkami szklanymi | BioSpec | 1107900 | |
| Wirówka stołowa | HERMLE | Z300 | |
| Eppendorf | 5417R | ||
| Mikrofuga stołowa | Fisher | 13-100-511 | |
| Chlorowodorek benzamidyny | Sigma-Aldrich | 434760 | |
| Kulki hydrofobowe SM-2 Adsorbent | BioRad | 152-3920 | |
| Błękit bromofenolowy | Sigma-Aldrich | 114391 | |
| Probówki wirówkowe | Beckman Coulter | 357000 | |
| System obrazowania żelu | BioRad | 170-808 | |
| Cholesterol | Sigma-Aldrich | C8667 | |
| Chymostatin | Sigma-Aldrich | C7268 | |
| Dimetylosulfotlenek (DMSO) | Sigma-Aldrich | D8418 | |
| Ditiothreitol (DTT) | Sigma-Aldrich | 43815 | |
| E. coli całkowity ekstrakt lipidowy | Avanti lipids | 100500 | |
| Epoksysukcynylo-leucyloamido-butan (E-64) | Sigma-Aldrich | E3132 | |
| Kulki szklane, kwasowe myte | Sigma | G8772 | |
| Glycerol | Fisher | 65017 | |
| HisTrap HP kolumny (5 ml) | GE Healthcare | 17-5247-05 | |
| Rapid Coomassie Stain | Novexin | ISB1L | |
| Wirówka JA-17 | Beckman Coulter | 369691 | |
| Leupeptin | Merck | 108975 | |
| Lizofosfatydyloglicerol-14 (LPG) | Avanti lipidy | 858120 | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| Zbiornik żelowy System SDS-PAGE | BioRad | 165-8006 | |
| n-Dodecyl-β-D-maltopyranozyd (DDM) | Affymetrix | D310S | |
| NaCl | Sigma-Aldrich | S6191 | |
| NaN3 | Sigma-Aldrich | S2002 | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| Oligomycyna | Sigma-Aldrich | 75351 | |
| Ultrawirówka | Beckman Coulter | 392050 | |
| Wstępnie barwione wzorce białkowe | Fermentas | SM1811 | |
| Kolumny odsalające (Sephadex G-25) | GE Healthcare | 17-0851-01 | |
| Pepstatyna A | Sigma-Aldrich | P4265 | |
| Fluorek fenylometanosulfonylu (PMSF) | Sigma-Aldrich | P7626 | |
| SCH28080 | Sigma-Aldrich | S4443 | |
| Dodecylosiarczan sodu (SDS) | Sigma-Aldrich | L37771 | |
| Tiocyjanian sodu (NaSCN) | Sigma-Aldrich | 251410 | |
| Filtracja żelowa Kolumna 10/300 GL | GE Healthcare | 17-5172-01 | |
| Tris-base | Formedium | TRIS01 | |
| Probówki do ultrawirówek | Beckman Coulter | 355618 | |
| Mieszalnik Vortex | Star Labs | N2400-0001 | |
| Ultradźwiękowa łaźnia wodna | Ultrawave | F0002202 | |
| Wielomodowy czytnik płytek | BioTek | BTH1MF |
Bibliografia
- Aleksandrov, A. A., Aleksandrov, L. A., Riordan, J. R. CFTR (ABCC7) is a hydrolyzable-ligand-gated channel. Pflugers Arch. 453, 693-702 (2007).
- Dodge, J. A., Lewis, P. A., Stanton, M., Wilsher, J. Cystic fibrosis mortality and survival in the UK: 1947-2003. EUR RESPIR J. 29, 522-526 (2007).
- O'Sullivan, B. P., Freedman, S. D. Cystic fibrosis. Lancet. 373, 1891-1904 (2009).
- Rommens, J. M., et al. Identification of the cystic fibrosis gene: chromosome walking and jumping. Science. 245, 1059-1065 (1989).
- Kariya, C., et al. A role for CFTR in the elevation of glutathione levels in the lung by oral glutathione administration. Am J Physiol Lung Cell Mol Physiol. 292, (2007).
- Gould, N. S., Min, E., Martin, R. J., Day, B. J. CFTR is the primary known apical glutathione transporter involved in cigarette smoke-induced adaptive responses in the lung. Free Radic Biol Med. 52, 1201-1206 (2012).
- Childers, M., Eckel, G., Himmel, A., Caldwell, J. A new model of cystic fibrosis pathology: lack of transport of glutathione and its thiocyanate conjugates. Med Hypotheses. 68, 101-112 (2007).
- Cole, S. P., et al. Overexpression of a transporter gene in a multidrug-resistant human lung cancer cell line. Science. 258, 1650-1654 (1992).
- Conseil, G., Deeley, R. G., Cole, S. P. Polymorphisms of MRP1 (ABCC1) and related ATP-dependent drug transporters. Pharmacogenet Genomics. 15, 523-533 (2005).
- Ketchum, C. J., Rajendrakumar, G. V., Maloney, P. C. Characterization of the adenosinetriphosphatase and transport activities of purified cystic fibrosis transmembrane conductance regulator. Biochemistry. 43, 1045-1053 (2004).
- Ramjeesingh, M., et al. A novel procedure for the efficient purification of the cystic fibrosis transmembrane conductance regulator (CFTR). Biochem J. 327 (Pt 1), 17-21 (1997).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Rosenberg, M. F., Kamis, A. B., Aleksandrov, L. A., Ford, R. C., Riordan, J. R. Purification and crystallization of the cystic fibrosis transmembrane conductance regulator (CFTR). J Biol Chem. 279, 39051-39057 (2004).
- O'Ryan, L., Rimington, T., Cant, N., Ford, R. C. Expression and purification of the cystic fibrosis transmembrane conductance regulator protein in Saccharomyces cerevisiae. J Vis Exp. , (2012).
- Oldham, M. L., Chen, J. Snapshots of the maltose transporter during ATP hydrolysis. Proc Natl Acad Sci USA. 108, 15152-15156 (2011).
- Pinkett, H. W., Lee, A. T., Lum, P., Locher, K. P., Rees, D. C. An inward-facing conformation of a putative metal-chelate-type ABC transporter. Science. 315, 373-377 (2007).
- Dawson, R. J. P., Locher, K. P. Structure of a bacterial multidrug ABC transporter. Nature. 443, 180-185 (2006).
- Gerber, S., Comellas-Bigler, M., Goetz, B. A., Locher, K. P. Structural basis of trans-inhibition in a molybdate/tungstate ABC transporter. Science. 321, 246-250 (2008).
- Ward, A., Reyes, C. L., Yu, J., Roth, C. B., Chang, G. Flexibility in the ABC transporter MsbA: Alternating access with a twist. Proc Natl Acad Sci USA. 104, 19005-19010 (2007).
- Kadaba, N. S., Kaiser, J. T., Johnson, E., Lee, A., Rees, D. C. The high-affinity E. coli methionine ABC transporter: structure and allosteric regulation. Science. 321, 250-253 (2008).
- Aller, S. G., et al. Structure of P-Glycoprotein Reveals a Molecular Basis for Poly-Specific Drug Binding. Science. 323, 1718-1722 (2009).
- Koehler, J., et al. Lysophospholipid micelles sustain the stability and catalytic activity of diacylglycerol kinase in the absence of lipids. Biochemistry. 49, 7089-7099 (2010).
- Tian, C., et al. Preparation, functional characterization, and NMR studies of human KCNE1, a voltage-gated potassium channel accessory subunit associated with deafness and long QT syndrome. Biochemistry. 46, 11459-11472 (2007).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal Biochem. 72, 248-254 (1976).
- Chifflet, S., Torriglia, A., Chiesa, R., Tolosa, S. A method for the determination of inorganic phosphate in the presence of labile organic phosphate and high concentrations of protein: Application to lens ATPases. Analytical Biochemistry. 168, 1-4 (1988).
- Rothnie, A., et al. The importance of cholesterol in maintenance of P-glycoprotein activity and its membrane perturbing influence. Eur Biophys J. 30, 430-442 (2001).
Przedruki i uprawnienia
