ScanLag to wysokoprzepustowa metoda pomiaru opóźnienia wzrostu, a mianowicie czasu opóźnienia, a także tempa wzrostu kolonii dla tysięcy komórek równolegle. Badania przesiewowe za pomocą ScanLag umożliwiają rozróżnienie między długim czasem opóźnienia a powolnym wzrostem na poziomie pojedynczego wariantu.
Artykuł metodologiczny
ScanLag: Wysokoprzepustowa kwantyfikacja wzrostu kolonii i czasu opóźnienia
W tym artykule
Podsumowanie
Streszczenie
Dynamika wzrostu to podstawowe cechy mikroorganizmów. Precyzyjne określenie ilościowe wzrostu jest ważnym celem w mikrobiologii. Na dynamikę wzrostu wpływa zarówno czas podwojenia mikroorganizmu, jak i wszelkie opóźnienia we wzroście po przejściu z jednego stanu do drugiego, opóźnienie. Metoda ScanLag umożliwia scharakteryzowanie tych dwóch niezależnych właściwości na poziomie kolonii pochodzących z pojedynczej komórki, generując dwuwymiarowy rozkład czasu opóźnienia i czasu wzrostu. W oprogramowaniu ScanLag pomiar czasu potrzebnego do wykrycia kolonii na konwencjonalnych płytkach agarowych z pożywką jest zautomatyzowany na szeregu komercyjnych skanerów sterowanych przez wewnętrzną aplikację. Szalki Petriego są umieszczane na skanerach, a aplikacja okresowo pozyskuje obrazy. Zautomatyzowana analiza wzrostu kolonii jest następnie wykonywana przez aplikację, która zwraca czas pojawienia się i tempo wzrostu każdej kolonii. Inne parametry, takie jak kształt, tekstura i kolor kolonii, można wyodrębnić w celu wielowymiarowego mapowania subpopulacji komórek. Wreszcie, metoda umożliwia pozyskanie rzadkich wariantów o określonych fenotypach wzrostu w celu dalszej charakterystyki. Technika ta może być stosowana w bakteriologii do identyfikacji długich opóźnień, które mogą powodować utrzymywanie się antybiotyków, a także jako ogólnie tania technika do fenotypowych badań przesiewowych.
Wprowadzenie
Bakterie ewoluowały, aby reagować na wiele stresujących warunków. Ogólną cechą adaptacji do stresu jest zmiana dynamiki wzrostu1,2. Dynamika wzrostu charakteryzuje się przede wszystkim dwoma parametrami: wykładniczym tempem wzrostu i czasem opóźnienia, czyli czasem potrzebnym na dostosowanie się do nowych warunków. Podczas gdy wiele metod wysokoprzepustowych koncentruje się na pomiarach tempa wzrostu, czas opóźnienia jest często pomijanym parametrem, chociaż jest to parametr kluczowy dla charakterystyki adaptacji do nowych warunków. Kwantyfikacja adaptacji do zmieniających się warunków była tradycyjnie przeprowadzana przy użyciu pracochłonnych metod ręcznych3,4. Niedawno opracowano zaawansowane techniki analizy pojedynczych komórek5,6. Nadal jednak trudno jest odróżnić normalny wzrost wynikający z opóźnienia wzrostu (tj. czasu opóźnienia)2,3 od powolnego wzrostu. Stworzono zautomatyzowaną metodę, ScanLag7, w celu rozróżnienia tych dwóch podobnych fenotypów.
Uderzający przykład znaczenia badania rozkładu opóźnień ujawnia się w przypadku leczenia antybiotykami. Wiele antybiotyków i innych stresów zabija tylko aktywnie rosnące komórki, a zatem komórki, które są "opóźnione",są chronione8. Aby monitorować czas opóźnienia, można obserwować pojedyncze komórki pod mikroskopem i monitorować czas do pierwszego podziału. Główną wadą tej metody jest to, że dynamiczny zakres czasu jest ograniczony; Te komórki, które rosną wcześnie, pokrywają powierzchnię w tempie wykładniczym, skutecznie zmniejszając wzrost komórek z dłuższym opóźnieniem. Stosowanie komór przepływowych w pewnym stopniu omija ten5, ale można śledzić ograniczoną liczbę komórek i nie można zaobserwować frakcji bakterii, które wychodzą z fazy opóźnienia po tym, jak większość populacji zaczęła rosnąć. Pomimo tych ograniczeń, w kilku badaniach oceniano wpływ poziomu różnych naprężeń na rozkład opóźnień w czasie za pomocą mikroskopii pojedynczej komórki9-12. Innym sposobem monitorowania rozkładu opóźnień w czasie są pomiary zmętnienia13,14. Wiele równoległych kultur, z których każda rozpoczęła się od pojedynczej komórki, jest hodowanych w czytniku gęstości optycznej, który mierzy liczbę bakterii w kulturze w czasie. Metoda ta jest ograniczona precyzją ekstrapolacji i liczbą dołków w płytce.
Opracowano zautomatyzowaną metodę, zwaną ScanLag, która umożliwia ocenę czasów opóźnienia i rozkładów czasu wzrostu, nawet dla niewielkiego procentu bakterii w populacji, która ma bardzo długie czasy opóźnienia. Metoda opiera się na wykrywaniu kolonii na konwencjonalnych płytkach agarowych z pożywką15 (ryc. 1). Aby zautomatyzować wykrywanie16,17, zaprojektowano szereg skanerów komercyjnych18, które są kierowane przez wewnętrzne oprogramowanie do okresowego pozyskiwania obrazów płyt. Oprogramowanie zostało zaprojektowane do automatycznej analizy obrazów i wyodrębniania parametrów ilościowych19,20, takich jak czas pojawienia się każdej kolonii i czas wzrostu każdej kolonii, który jest tutaj zdefiniowany jako czas wzrostu od 20 pikseli do 80 pikseli. W tym miejscu szczegółowo przedstawiamy metodę, w tym konfigurację systemu i korzystanie z oprogramowania do automatycznej analizy obrazu, które zostało ulepszone dzięki lepszemu interfejsowi użytkownika.
Ta metoda może być dostosowana do pomiaru innych cech kolonii, takich jak morfologia i kolor. Pomiar tego typu parametrów pozwoli na zastosowanie systemu w wielowymiarowej fenomice. Ponieważ metoda wykrywa kolonie z pojedynczych komórek, system może ujawnić nowe fenotypy, których nie można zmierzyć za pomocą pomiarów na poziomie populacji. Technika ta umożliwia wykrywanie i odzyskiwanie rzadkich wariantów oraz ułatwia badania przesiewowe pod kątem pożądanych cech.
Protokół
1. Zbuduj konfigurację
- Wybierz skaner płaski o rozdzielczości optycznej: 4 800 dpi; Rozdzielczość sprzętowa: 4 800 x 9 600 dpi; Głębia bitowa koloru: 48 bitów, która może działać przy odpowiednich poziomach temperatury i wilgotności.
- Szalki Petriego mają znaczną objętość, w przeciwieństwie do papieru zwykle używanego w komercyjnych skanerach. Kolonie leżą na wierzchu warstwy agaru, około 5 mm nad powierzchnią skanera. Uwaga: W przypadku większości skanerów kolonie będą ostre.
- Niektóre firmy produkujące skanery nie zezwalają na podłączenie więcej niż jednej instancji skanera tego samego typu do tego samego komputera. Upewnij się, że można podłączyć więcej niż jeden skaner i jednoznacznie go zidentyfikować.
- Przygotuj akcesoria zgodnie z poniższymi opisami:
- Przygotuj kawałki sterylnej czarnej filcowej szmatki do przykrycia płytek (Rysunek 1, krok 2).
- Aby utrzymać szalki Petriego na miejscu, przygotuj białe uchwyty na talerze (Materiały i metody), które pasują do skanerów i mają 6 otworów wielkości szalek (Rysunek 1, krok 3).
- Jeśli jest to konieczne do rozwoju mikroorganizmu, umieść skanery w środowisku o kontrolowanej temperaturze. Podłącz skanery do komputera.
- Opcjonalnie: Podłącz przekaźnik do komputera i omiń włącznik/wyłącznik skanera, aby pokonać gradient temperatury.
UWAGA: Jednostka przekaźnikowa jest przeznaczona do mikroorganizmów bardzo wrażliwych na temperaturę. Wyłącza skaner, dzięki czemu elektronika nie nagrzewa się nierównomiernie powierzchni. Użycie tylko części powierzchni skanera może przynieść podobne rezultaty.
2. Zainstaluj Menedżera Skanowania
- Skopiuj wszystkie pliki aplikacji "Scanning Manager" do wyznaczonego katalogu z http://www.phys.huji.ac.il/bio_physics/nathalie/publications.html.
- Skonfiguruj plik ScanningManager.exe.config zgodnie z nazwami skanerów wyświetlanymi w temacie Zarządzanie komputerem->Menedżer urządzeń->Urządzenia do obrazowania (Rysunek 2).
- Aby uzyskać informacje na temat rozwiązywania problemów z aplikacją "Scanning Manager", zobacz plik readme.
- Więcej informacji na temat aplikacji "Scanning Manager" można znaleźć w Documentation.html.
3. Przeprowadź eksperyment
- Przygotuj szalki Petriego (Rysunek 1):
- Rozcieńczyć kulturę do około 2 000 jtk/ml. Umieścić 0,1 ml kultury równomiernie na powierzchni płytki.
- Aby uzyskać dobry kontrast między koloniami a naczyniem i wchłonąć wilgoć, przykryj talerz kawałkiem sterylnej czarnej filcowej szmatki. Przykryj talerz pokrywką.
- Umieść płytki w uchwytach na skanerach.
- Uruchom Menedżera skanowania (Rysunek 3): Wybierz uczestniczące skanery z listy podłączonych skanerów. Wybierz liczbę zdjęć do zrobienia (Powtórzenia), odstęp czasu między kolejnymi obrazami (Przerwa czasowa) oraz opóźnienie czasu przed rozpoczęciem eksperymentu (Rozpocznij po).
4. Analiza obrazów
UWAGA: Zarys metod obliczeniowych jest dostępny do analizy obrazów w MATLAB za pomocą "ScanLag", który jest dostępny do niekomercyjnego użytku na http://www.phys.huji.ac.il/bio_physics/nathalie/publications.html. Dalsze dostępne funkcje są szczegółowo opisane w instrukcji obsługi oprogramowania, a przykładowy kod jest uzupełniony.
- Posortuj obrazy z każdego skanera do osobnych folderów.
- Korzystając z okna poleceń Matlaba, uruchom następujące procedury. Parametry wymagane do uruchomienia tych procedur są zdefiniowane w instrukcji oprogramowania.
- Uruchom polecenie PreparePictures, aby przeprowadzić przetwarzanie wstępne: W procesie przetwarzania wstępnego obrazy ze skanera są wyrównywane. Każda szalka Petriego jest przycinana z każdej sekwencji obrazów. Czas, w którym każdy obraz został zebrany, jest pobierany ze znacznika czasu.
- Uruchom TLAllPlates, aby przeprowadzić wykrywanie i śledzenie Na każdej szalce Petriego osobno wykrywane są kolonie i przypisywany im numer identyfikacyjny.
- Analiza wyodrębnionych danych: Rozmiary każdej wykrytej kolonii są mierzone w funkcji czasu. Aby wyodrębnić rozkład wyglądu kolonii, użyj następujących funkcji w oknie poleceń Matlaba (więcej informacji jest dostępnych w instrukcji oprogramowania):
- Uruchom aplikację ScanLagApp, aby wyświetlić analizę określonej szalki Petriego wraz z wykresem wielkości kolonii w funkcji czasu (rysunek 4).
- Użyj suwaka, aby zmienić aktualny czas płyty. Czas będzie również wskazywany przez pasującą pionową linię na wykresie obszaru kolonii.
- Kliknij kolonię, aby zobaczyć powiązaną z nią krzywą, i odwrotnie, kliknij krzywą, aby znaleźć powiązaną z nią kolonię. Po zidentyfikowaniu kolonii, fenotyp można odzyskać, wybierając kolonię ze zidentyfikowanej szalki Petriego.
- Filtruj defekty w automatycznej analizie, wybierając kolonię i klikając przycisk wykluczania. Po kliknięciu przycisku wyklucz numer kolonii zmieni kolor na żółty.
- Po zapoznaniu się z wynikami analizy każdej płytki, zsumuj wyniki:
- Uruchom polecenie AddHistograms, aby utworzyć histogram czasów pojawienia się.
- Uruchom polecenie plotDeathCurve, aby utworzyć reprezentację rozkładu krzywej przeżycia.
- Uruchom GetAppearanceTimes, aby uzyskać czas pojawienia się wszystkich kolonii w eksperymencie.
- Uruchom aplikację ScanLagApp, aby wyświetlić analizę określonej szalki Petriego wraz z wykresem wielkości kolonii w funkcji czasu (rysunek 4).
Wyniki
Jako przykład wyodrębniania rozkładu czasu opóźnienia, Rysunek 5 przedstawia zdolność programu ScanLag do identyfikacji i śledzenia każdej kolonii o określonych charakterystykach na jednej płytce w czasie, w taki sposób, w jaki wykonuje się to w badaniu przesiewowym.
W przypadku niejednorodnej kultury mikroorganizmu, podczas testu mogą ujawnić się różne subpopulacje. Na przykład Rysunek 6 przedstawia kwantyfikację wyglądu, wykazując tym samym bimodalny rozkład czasu lag w szczepie mutanta E. coli.
Szybkość wzrostu komórek wpływa na czas pojawienia się kolonii. Gdy kolonie rosną w tym samym tempie, późniejsze pojawienie się można przypisać fazie adaptacji (Rycina 7).
Aby potwierdzić, że metoda ta rzeczywiście mierzy czas lag pojedynczych komórek, porównano wyniki ScanLag z wynikami uzyskanymi za pomocą mikroskopii pojedynczych komórek; walidacja ta została szczegółowo opisana w poprzedniej publikacji7. Metoda ta umożliwia monitorowanie znacznie większej liczby komórek niż można ocenić za pomocą mikroskopii. Rozkłady uzyskane za pomocą mikroskopii i za pomocą ScanLag w dużej mierze się pokrywają. Rozkład ScanLag jest nieco szerszy; analizy teoretyczne przewidują, że poszerzenie to jest rzędu odchylenia standardowego czasu podziału. Jeśli czas wzrostu różni się dla każdego szczepu, przyczynę opóźnienia w pojawieniu się należy dodatkowo zbadać przy użyciu innych metod.
Zbadano wpływ kolonii pojawiających się wcześniej na pojawienie się późniejszych kolonii. Eksperymenty kontrolne7 potwierdziły, że późniejsza pojawka nie była zaburzona, dopóki całkowita liczba kolonii na płytce nie przekroczyła 200 (Rysunek 8). Inny eksperyment kontrolny potwierdził, że lokalizacja kolonii na płytce nie wpływała na czas jej pojawienia się 7.
Analiza płytek jest skalibrowana do określonych progów, które mogą wymagać modyfikacji w zależności od składników odżywczych obecnych w pożywce lub rodzaju mikroorganizmu. Niemniej jednak analiza jest dość odporna na szeroki zakres progów, co pokazano na Rysunku 9.
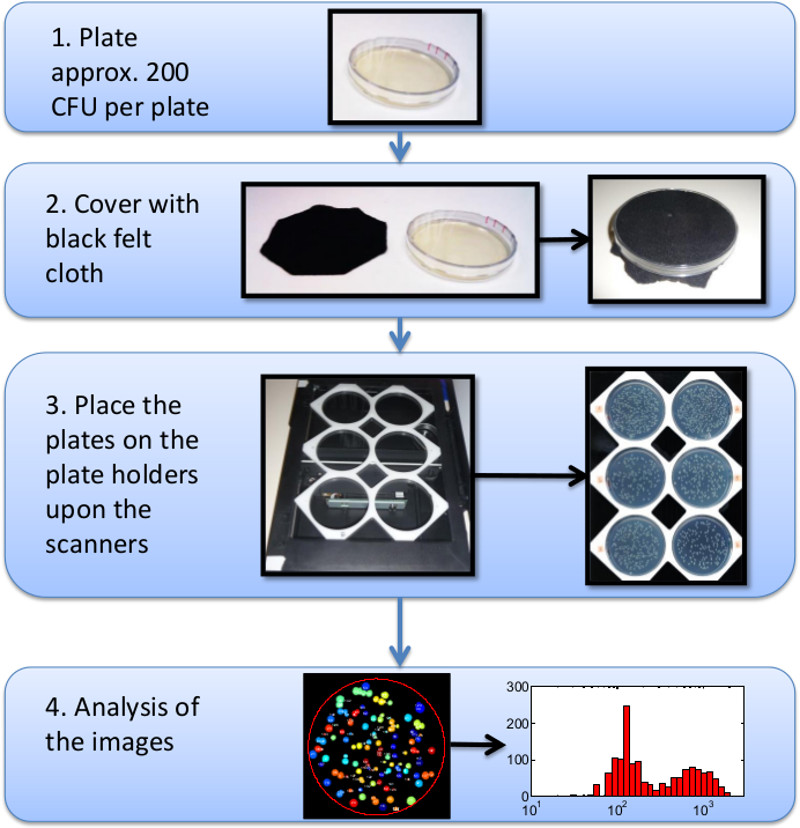
Rycina 1. Schemat kroków niezbędnych do stworzenia rozkładu wyglądu kolonii.
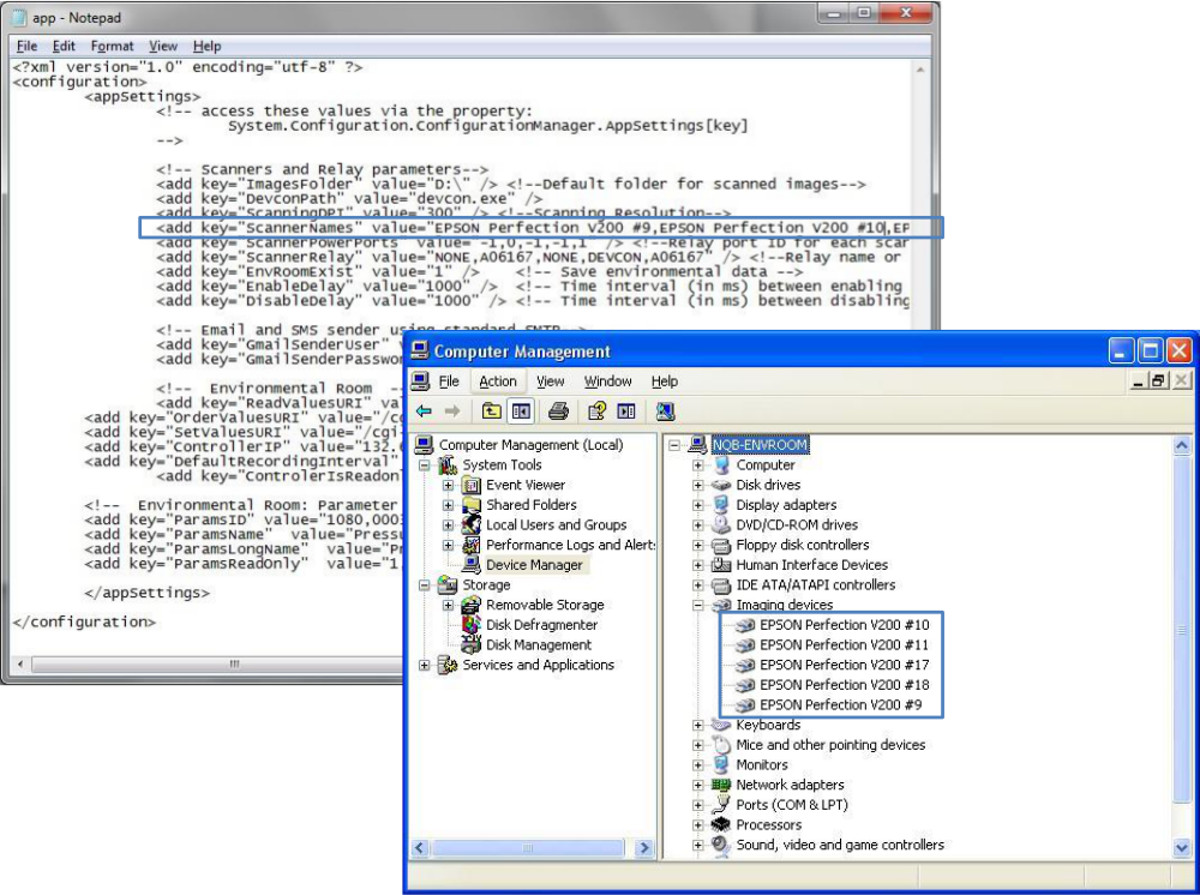
Rycina 2. Zrzut ekranu z Menedżera urządzeń pokazujący nazwy podłączonych skanerów oraz plik konfiguracyjny. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
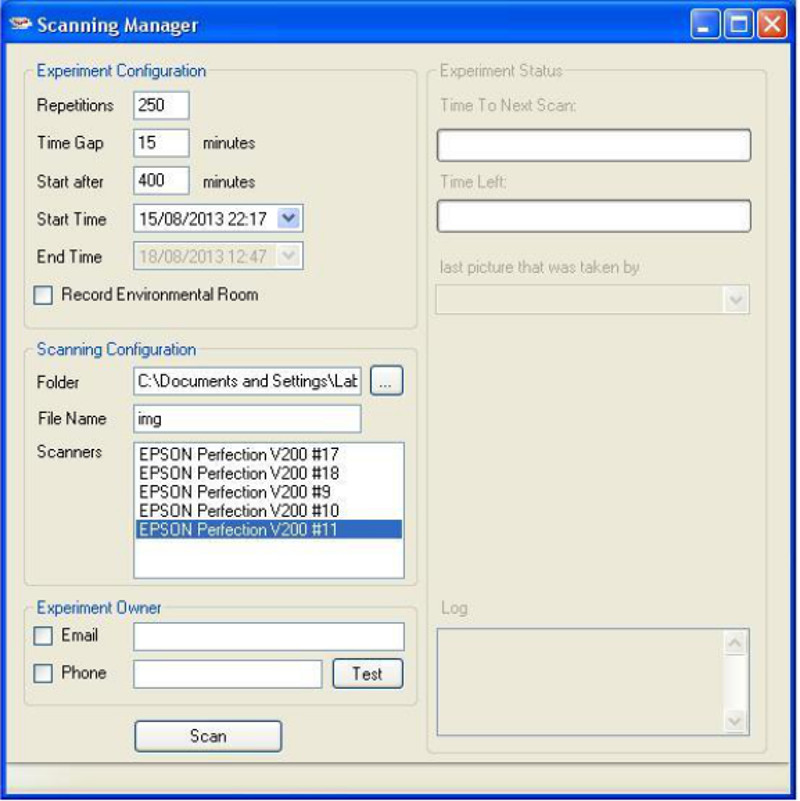
Rycina 3. Zrzut ekranu programu Scanning Manager.

Rysunek 4. Zrzut ekranu aplikacji ScanLagApp. Obraz szalki znajduje się w lewym panelu, a krzywe wzrostu każdej kolonii w prawym panelu, zgodnie z opisem w instrukcji. Skoki na krzywych powierzchni niektórych kolonii występują w momencie połączenia się dwóch lub więcej kolonii. W przypadku zlania się kolonii ich powierzchnia jest traktowana jako obszar wspólny.
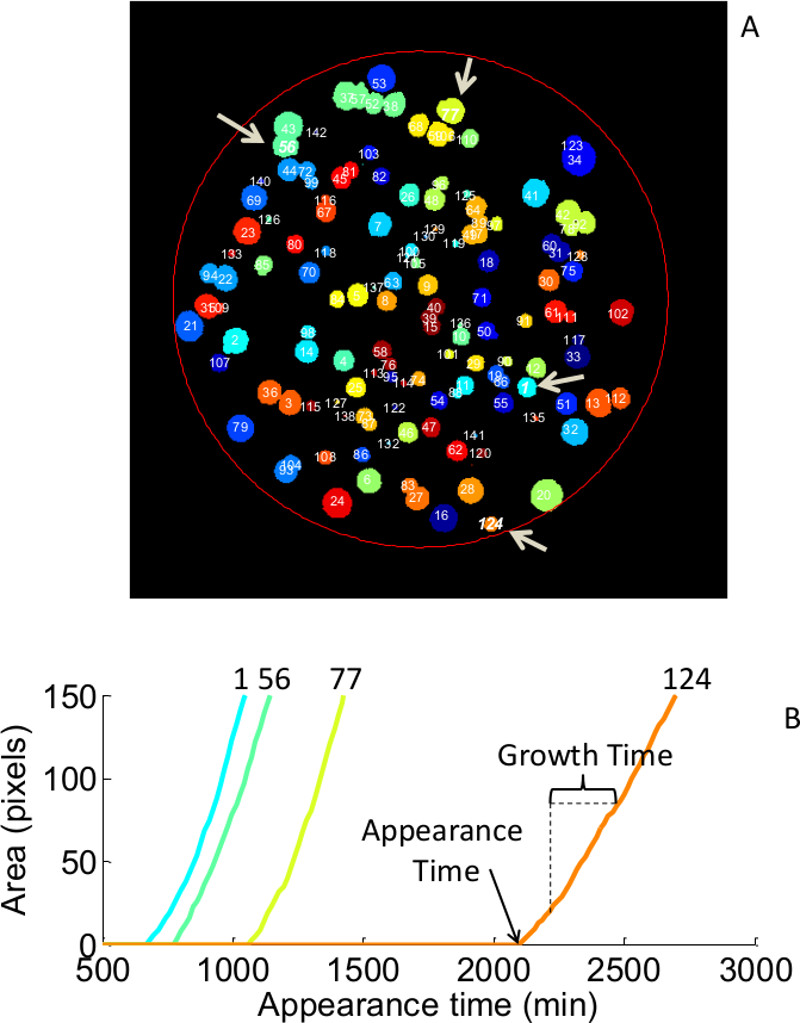
Rysunek 5. Reprezentatywny wynik analizy jednej płytki. (A) Obraz z aplikacji detekcyjnej na koniec eksperymentu. Każdy obszar kolonii jest zidentyfikowany, pokolorowany i przypisany do unikalnego numeru ID. Strzałki wskazują reprezentatywne kolonie zmierzone w B. Kolonia jest wykrywana na podstawie progu intensywności (dla kolonii E. coli na agarze LB lub M9 próg ten wynosi 0,03. Dla innych podłoży lub bakterii próg ten można dostosować w funkcji ProcessPictures). Liczone są tylko obiekty o powierzchni powyżej 10 pikseli (ten próg można zmodyfikować w funkcji MatchColonies). Detekcja kolonii rozpoczyna się przy około 105 bakterii. (B) Wykresy powierzchni w pikselach względem czasu dla czterech reprezentatywnych kolonii na tej płytce. „Czas pojawienia się” każdej kolonii to moment, w którym kolonia została wykryta. „Czas wzrostu” każdej kolonii jest tutaj zdefiniowany jako czas wzrostu od 20 pikseli do 80 pikseli (te granice można dostosować za pomocą funkcji getAppearanceGrowthByVec). Oprogramowanie wyklucza kolonie, które zlały się przed osiągnięciem górnej granicy. Identyfikacja konkretnej kolonii na podstawie jej charakterystyki jest łatwa dzięki numerowi identyfikacyjnemu i kolorowi przypisanemu do każdej kolonii. Na przykład kolonie nr 1, 56, 77 i 124 są wyróżnione na obu wykresach.
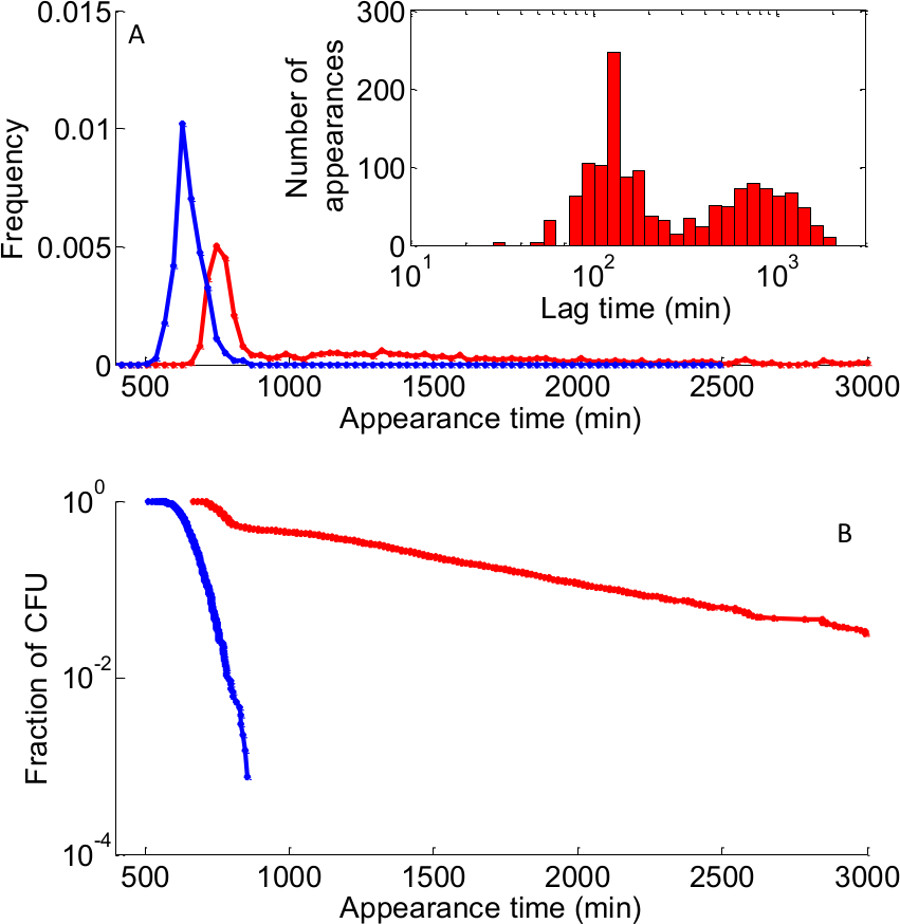
Rysunek 6. Kwantyfikacja pojawienia się może ujawnić bimodalny rozkład czasu lag. Porównanie histogramów analizy ScanLag dla czasów pojawienia się dwóch różnych szczepów. Linia niebieska: szczep typu dzikiego rosnący wykładniczo (Suma: 1 320 kolonii); linia czerwona – mutant o wysokiej persistencji wzbogacony o bakterie w fazie lag (Suma: 1 529 kolonii). (A) Znormalizowane histogramy pojawienia się. Szczyt pojawienia się komórek rosnących wykładniczo odpowiada typowemu czasowi wzrostu do rozmiarów wykrywalnej kolonii. Wstawka: ten sam histogram szczepu mutanta po odjęciu czasu szczytu kultury wykładniczej w celu uzyskania rzeczywistego czasu lag na przedziałach logarytmicznych, wykazujący bimodalny rozkład czasu lag. (B) Funkcja przeżycia tych samych danych co w (A) w skali logarytmicznej. Ta reprezentacja uwydatnia ogon późnego pojawienia się w przypadku szczepu mutanta.
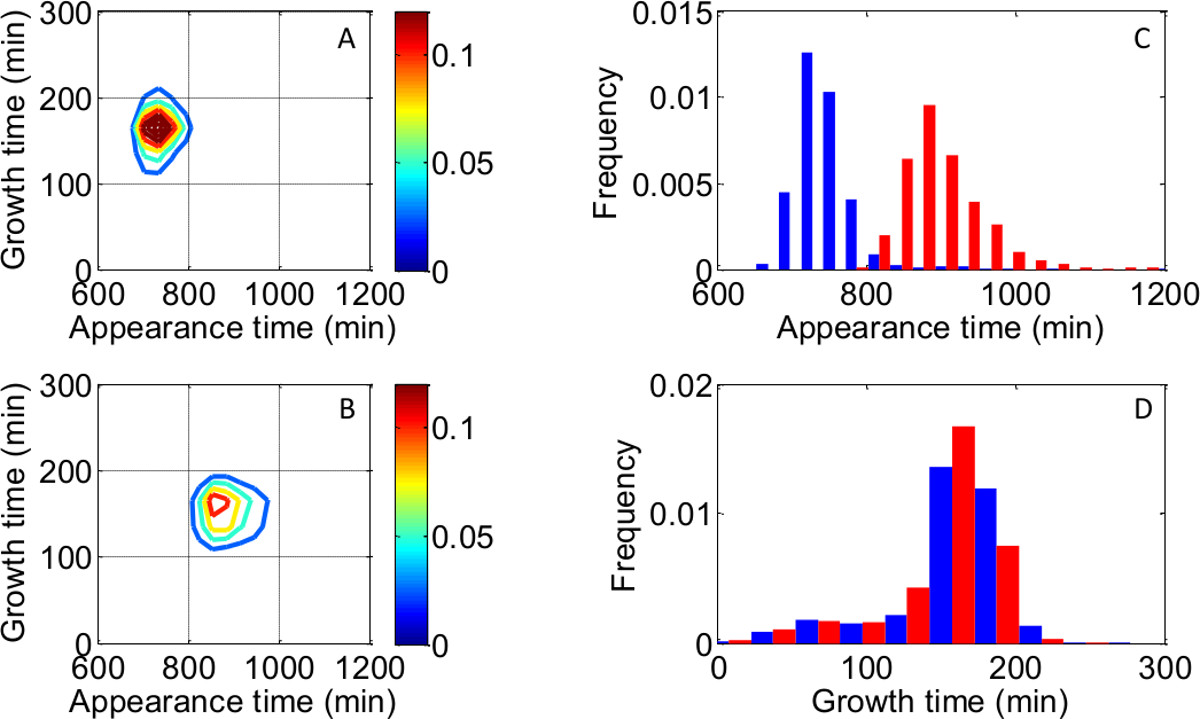
Rysunek 7. Rozkład czasu pojawienia się i rozkład czasu wzrostu. (A) oraz (B) przedstawiają dwuwymiarowe histogramy czasu pojawienia się oraz czasu wzrostu dla dwóch różnych warunków (oprogramowanie pomija kolonie, które zlały się przed osiągnięciem górnej granicy). (C) Porównanie histogramów obu szczepów wykazuje różnicę w czasie pojawienia się, podczas gdy czasy wzrostu (D) są podobne. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
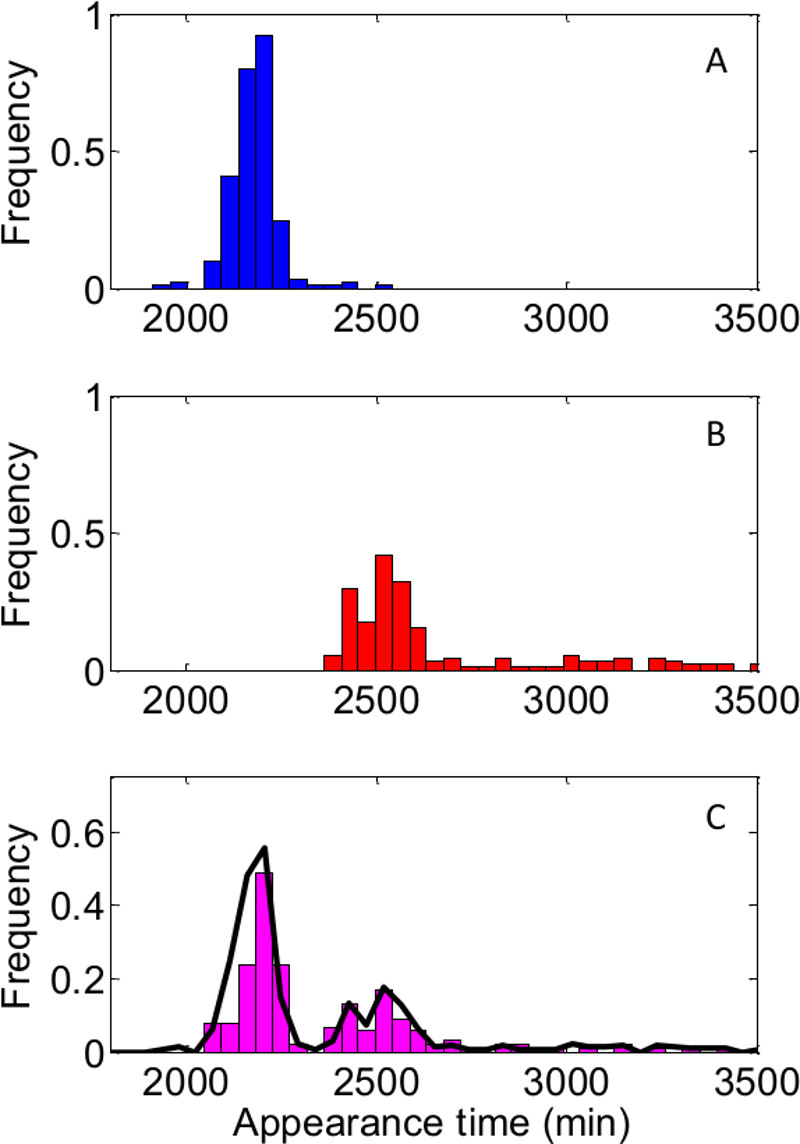
Rysunek 8. Pojawienie się wczesnych kolonii nie zakłóca pojawienia się kolonii późniejszych. (A) rozkład czasu lag dla komórek typu dzikiego wysianych pojedynczo. (B) rozkład czasu lag dla szczepu wrażliwego na zimno wysianego pojedynczo, po przeniesieniu do temperatury dopuszczalnej. (C) rozkład czasu lag dla obu szczepów wysianych razem w tych samych warunkach. Linia czarna reprezentuje oczekiwany rozkład na podstawie danych uzyskanych podczas pomiaru każdego szczepu oddzielnie. Dobra zgodność między rozkładem oczekiwanym a zmierzonym jest uzyskiwana, dopóki całkowita liczba kolonii na płytce nie przekracza 200.
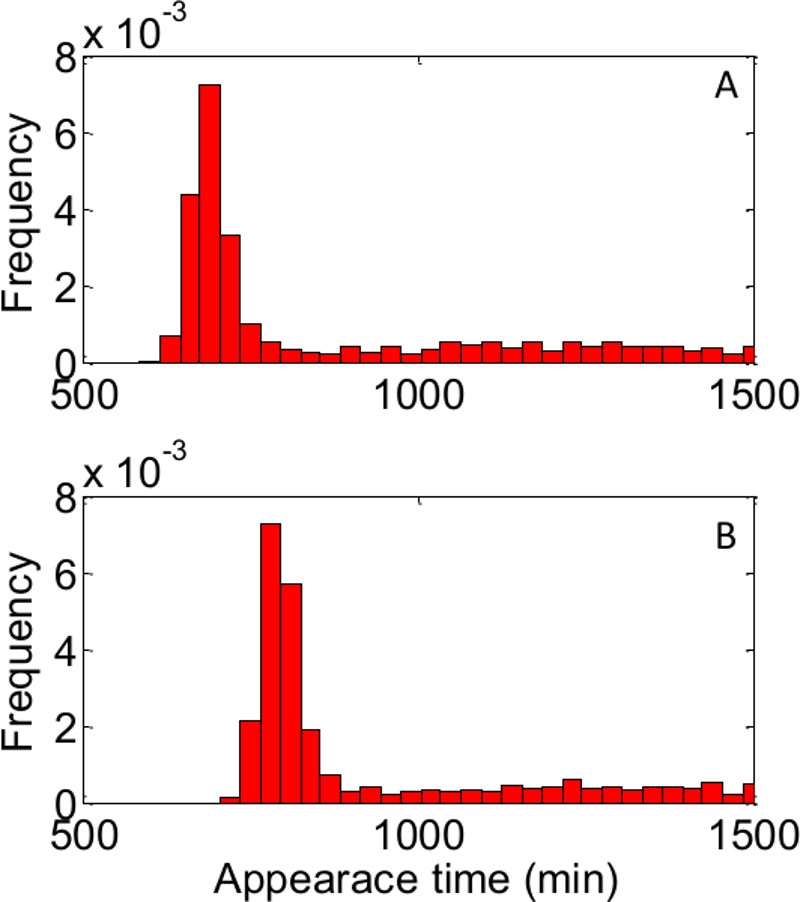
Rycina 9. Próg detekcji nie wpływa na kształt rozkładu pojawiania się kolonii. Rozkład pojawiania się kolonii przeanalizowano dla tego samego zestawu danych, stosując dwa różne progi; (A) próg wynosi 10 pikseli; (B) próg wynosi 50 pikseli. Liczba komórek na histogramie: ok. 1,500. Różny próg detekcji powoduje jedynie przesunięcie czasu detekcji.
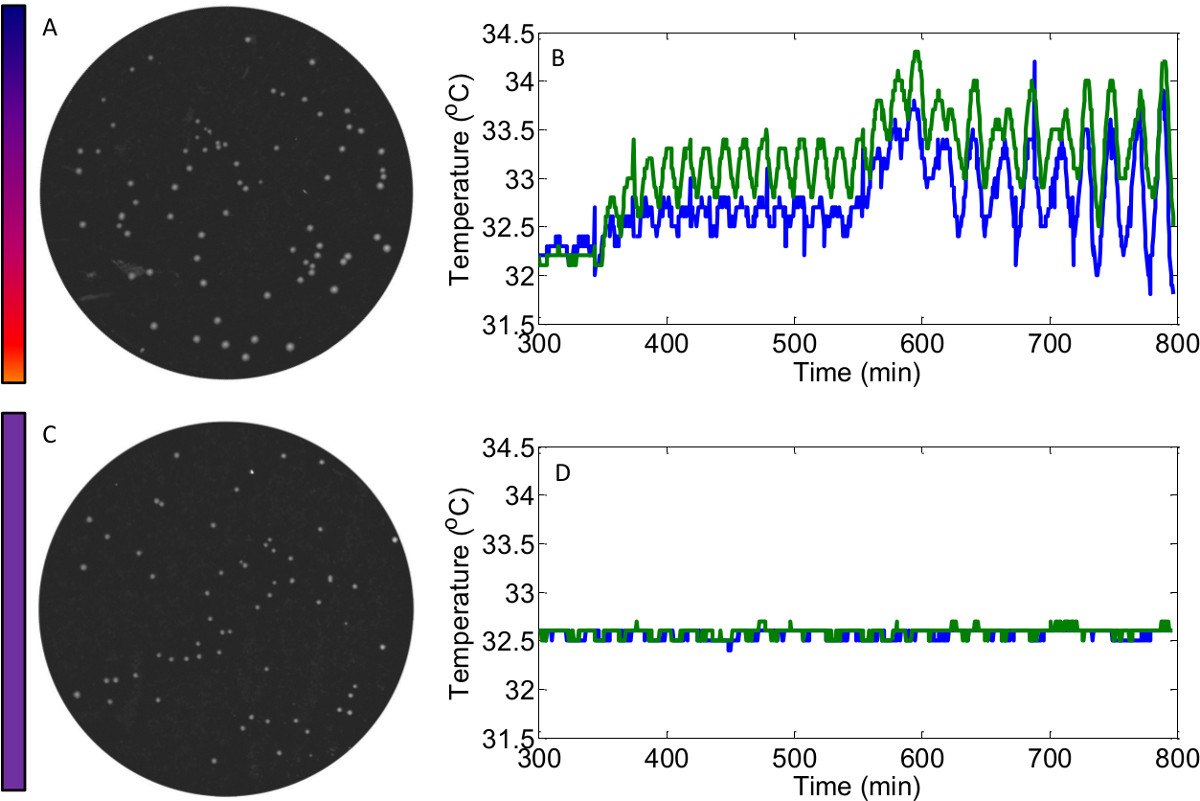
Rysunek 10. Pomiary stabilności temperatury na powierzchni skanera. (A) Obraz płytki z koloniami Bacillus subtillis hodowanych na skanerze bez funkcji zarządzania energią (Power Management). Powierzchnia jest cieplejsza na dole, w związku z czym kolonie rosną szybciej. Stopniująca linia obok płytki jest schematycznym przedstawieniem gradientu ciepła. (B) Stabilność temperatury mierzono za pomocą dwóch termopar rozmieszczonych na powierzchni skanera. Skaner nagrzewa się podczas każdego skanowania oraz w czasie. (C) Przy włączonym zarządzaniu energią temperatura jest jednorodna, a kolonie rosną w podobnym tempie. (D) Analogicznie jak w (B), ale z zastosowaniem modułu zarządzania energią. Stabilność temperatury wynosi ±0.2 °C.
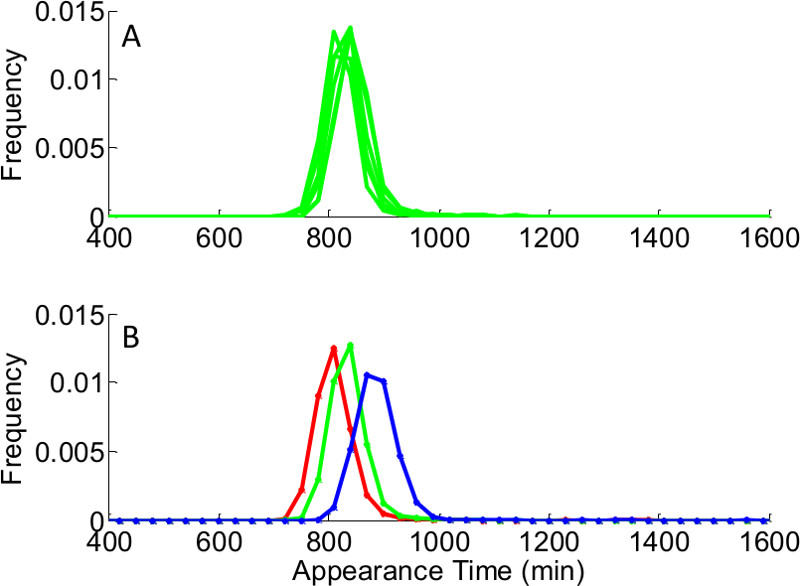
Rysunek 11. Różnice w rozkładzie czasu pojawienia się mogą wynikać z różnic w objętościach pożywki stałej. Ta sama kultura bakteryjna została wysiana na płytki z różnymi objętościami agaru LB, co skutkowało różną wysokością powierzchni agaru. Różnice w wysokości doprowadziły do różnej mętności płytek, a tym samym do różnego czasu detekcji. Sprawdzono różnice między płytkami oraz różnice między warunkami o różnej wysokości. (A) Typowe różnice między płytkami o równych objętościach 30±0.5 ml agaru LB. (B) Różnica między warunkami o różnej wysokości: rozkład pojawienia się mierzono dla płytek o objętościach 20±0.5 ml (czerwona), 30±0.5 ml (zielona) i 40±0.5 ml (niebieska). Każdy warunek stanowi średnią z 6 różnych płytek. Dopóki objętość płytek mieści się w zakresie ±5 ml, mętność jest podobna i prowadzi do podobnego rozkładu czasu pojawienia się.
Dyskusja
Metody mikroskopowe oparte na bezpośredniej obserwacji są często uważane za "złoty standard" w badaniu zachowania pojedynczych komórek. ScanLag, który umożliwia pomiar rozkładu czasów opóźnień w populacjach bakterii, dostarcza danych dobrze zgodnych z rozkładem uzyskanym z analizy pojedynczej komórki i osiąga znacznie wyższe statystyki.
Aby ta metoda działała dobrze, należy wykonać kilka krytycznych kroków: po pierwsze, nie idź na kompromis w kwestii rozdzielczości skanera, która powinna wynosić 4,800 x 9,600, aby uzyskać dobre obrazy. Po drugie, należy pamiętać, że bez modułu zarządzania energią (krok 1.6) na powierzchni platformy może powstać gradient temperatury i wpłynąć na wzrost. Kolejnym ważnym krokiem jest filtracja defektów, takich jak kurz, które mogły zostać błędnie policzone przez oprogramowanie jako kolonie. Wbudowane w oprogramowanie odejmowanie tła zwykle pokonuje te defekty, ale czasami "fałszywe" kolonie muszą być filtrowane ręcznie.
Główne kroki rozwiązywania problemów mogą dotyczyć różnic między płytkami w konfiguracji z kilku powodów: (a) Na tempo wzrostu mikroorganizmów ma wpływ temperatura. Mogą wystąpić różne warunki temperatury i wilgotności z powodu nierównomiernej wentylacji lub umiejscowienia naczynia w inkubatorze. (b) Elektronika skanera może się nagrzewać i powodować gradient temperatury na powierzchni skanera. Rysunek 10 przedstawia wpływ takiego przestrzennego gradientu ciepła na bakterie Bacillus wraz z pomiarami temperatury na powierzchni skanera przed i po wdrożeniu modułu zarządzania energią (krok 1.6). Należy pamiętać, że ten moduł może nie być konieczny w przypadku nowszych skanerów, a jeśli używana jest tylko część powierzchni skanera, zarządzanie energią może być niepotrzebne. c) Płytki o różnej nieprzezroczystości składnika odżywczego agaru mogą prowadzić do różnych poziomów wykrywalności. Rysunek 11 przedstawia tolerancję dla różnych objętości agaru ze składnikami odżywczymi, które skutkują różnymi zmętnieniami.
Eksperymentalnie technika ScanLag jest łatwa do wykonania i wymaga jedynie naniesienia mikroorganizmów na standardowe szalki Petriego i umieszczenia ich na powierzchni skanera. Oprogramowanie, które zostało opracowane, kontroluje całą procedurę. Akwizycja obrazu odbywa się automatycznie, a analiza obrazu w celu śledzenia kolonii jest również automatyczna. Co więcej, system można rozbudowywać w celu pomiaru wielu różnych warunków w tym samym czasie. Wreszcie, metoda opiera się na komercyjnych skanerach biurowych, a zatem jest tania.
Technikę tę można rozszerzyć na badanie mikroorganizmów, które różnią się od E. coli K-12, jednak należy wziąć pod uwagę kilka kwestii. W pierwszej kolejności należy ocenić wpływ wcześnie pojawiających się kolonii na późniejsze, co szczegółowo opisano w poprzedniej publikacji7. W przypadku E. Coli K-12 maksymalna gęstość CFU na płytkę wynosi 200. Inne szczepy o różnych rozmiarach kolonii i innych możliwych wzajemnych oddziaływaniach między koloniami mogą wymagać innej gęstości. Po drugie, analiza płytek jest kalibrowana do określonych progów opartych na oprogramowaniu, które mogą wymagać modyfikacji, w zależności od kontrastu między podłożem stałym a koloniami. Oprogramowanie można również rozbudować w celu wyodrębnienia innych cech kolonii, poza opóźnieniami i tempem wzrostu. Kod oprogramowania jest otwarty i można go modyfikować w celu wyodrębnienia kształtu, jasności, gładkości i koloru kolonii.
Ponieważ pomiary są wykonywane na koloniach pochodzących z pojedynczych komórek, dane ujawniają nowe fenotypy, których nie można zmierzyć za pomocą pomiarów na poziomie populacji. Znaczenie rozkładu opóźnień w czasie ujawnia się w obecności antybiotyków. Wiadomo, że wiele antybiotyków jest skutecznych tylko przeciwko rosnącym komórkom; Dlatego tak długo, jak komórki pozostają w fazie lag i nie rosną, są chronione przed działaniem tych antybiotyków21. Gdy liczba bakterii, które przeżyły, jest oceniana w odstępach czasu podczas antybiotykoterapii15,22,23, często ujawnia się subpopulacja bakterii, zwana przetrwałymi. W niektórych przypadkach odporność na antybiotykoterapię wynika z długotrwałego opóźnienia. Korzystając z tej konfiguracji, ujawnia się to opóźnienie, które często ma nietrywialny rozkład24 (Rysunek 6). Metoda ta umożliwia również odzyskiwanie rzadkich mutantów. Na przykład, po posiewie zmutagenizowanej populacji, mutanty mogą być identyfikowane na podstawie fenotypu i izolowane bezpośrednio, bez selekcji. Instalacja może również monitorować interakcje między komórkami poprzez pomiar wzrostu kolonii w funkcji zagęszczenia pobliskich kolonii oraz ilościowe określanie zjawisk, takich jak wyczuwanie kworum lub rozprzestrzenianie się bakterii rojowych. Wielowymiarowe informacje odkryte w przyszłych eksperymentach z wykorzystaniem tej metody doprowadzą do lepszej charakterystyki populacji drobnoustrojów oraz do postępów w badaniach medycznych i środowiskowych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Eliqowi Osterowi za zdjęcia Bacillus subtillis. Prace są wspierane przez Europejską Radę ds. Badań Naukowych (# 260871) oraz Izraelską Fundację Naukową (#592/10).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Bacto agar | BD | 214010 | |
| Bulion Difco LB | BD | 240230 | |
| Szalka Petriego 90 mm | Miniplast | 20090-01 | |
| Epson Perfection v37 | Epson | B11B207201 | Skaner płaski z rozdzielczością optyczną: 4,800 dpi, Rozdzielczość sprzętowa: 4 800 x 9 600 dpi, głębia bitowa kolorów 48 bitów. |
| Epson Perfection v200 | Epson | B11B188011 | |
| Epson Perfection 3490 | Przekaźnik USB Epson | B11B177011 | |
| ADU200 | ONTRAK | ||
| Kawałki sterylnej czarnej tkaniny filcowej | Wykonane | Około 100 x 100 mm | |
| Białe uchwyty na talerze | Wykonane | Rozmiar powierzchni, z otworem | |
| o średnicy 6 x 99 mmPierścienie Delerin wielkości szalki Petriego | Wykonane | Średnica wewnętrzna: 72 mm Średnica zewnętrzna: 86 mm Górna średnica zewnętrzna: 90 mm |
Bibliografia
- Bochner, B. R. Global phenotypic characterization of bacteria. FEMS Microbiol Rev. 33, 191-205 (2009).
- Monod, J. The growth of bacterial cultures. Annual Reviews in Microbiology. 3, 371-394 (1949).
- Penfold, W. J. On the Nature of Bacterial Lag. J Hyg (Lond. 14, 215-241 (1914).
- Powell, E. O. Growth rate and generation time of bacteria, with special reference to continuous culture. J Gen Microbiol. 15, 492-511 (1956).
- Elfwing, A., LeMarc, Y., Baranyi, J., Ballagi, A. Observing growth and division of large numbers of individual bacteria by image analysis. Applied and Environmental Microbiology. 70, 675-678 (2004).
- Hertog, A., et al. Simplified automated image analysis for detection and phenotyping of Mycobacterium tuberculosis on porous supports by monitoring growing microcolonies. PloS one. 5, (2010).
- Levin-Reisman, I., et al. Automated imaging with ScanLag reveals previously undetectable bacterial growth phenotypes. Nature Methods. 7, (2010).
- Lewis, K. Persister cells. Annual review of microbiology. 64, 357-372 (2010).
- Metris, A., George, S. M., Baranyi, J. Use of optical density detection times to assess the effect of acetic acid on single-cell kinetics. Applied and Environmental Microbiology. 72, 6674-6679 (2006).
- Niven, G. W., Fuks, T., Morton, J. S., Rua, S. A. C. G., Mackey, B. M. A novel method for measuring lag times in division of individual bacterial cells using image analysis. Journal of Microbiological Methods. 65, 311-317 (2006).
- Niven, G. W., Morton, J. S., Fuks, T., Mackey, B. A. Influence of environmental stress on distributions of times to first division in Escherichia coli populations, as determined by digital-image analysis of individual cells. Applied and Environmental Microbiology. 74, 3757-3763 (2008).
- Pin, C., Baranyi, J. Single-cell and population lag times as a function of cell age. Applied and Environmental Microbiology. 74, 2534-2536 (2008).
- Guillier, L., Pardon, P., Augustin, J. C. Influence of stress on individual lag time distributions of Listeria monocytogenes. Applied and Environmental Microbiology. 71, 2940-2948 (2005).
- Metris, A., George, S. M., Peck, M. W., Baranyi, J. Distribution of turbidity detection times produced by single cell-generated bacterial populations. Journal of Microbiological Methods. 55, 821-827 (2003).
- Balaban, N. Q., Merrin, J., Chait, R., Kowalik, L., Leibler, S. Bacterial persistence as a phenotypic switch. Science. 305, 1622-1625 (2004).
- Glaser, D. A., Wattenburg, W. H. An automated system for the growth and analysis of large numbers of bacterial colonies using an environmental chamber and a computer-controlled flying-spot scanner. Ann N Y Acad Sci. 139, 243-257 (1966).
- Guillier, L., Pardon, P., Augustin, J. C. Automated image analysis of bacterial colony growth as a tool to study individual lag time distributions of immobilized cells. Journal of Microbiological Methods. 65, 324-334 (2006).
- Michel, J. B., Yeh, P. J., Chait, R., Moellering, R. C., Kishony, R. Drug interactions modulate the potential for evolution of resistance. Proceedings of the National Academy of Sciences of the United States of America. 105, 14918-14923 (2008).
- Ernebjerg, M., Kishony, R. Distinct Growth Strategies of Soil Bacteria as Revealed by Large-Scale Colony Tracking. Applied and Environmental Microbiology. 78, 1345-1352 (2012).
- Rotem, E., et al. Regulation of phenotypic variability by a threshold-based mechanism underlies bacterial persistence. Proceedings of the National Academy of Sciences of the United States of America. 107, 12541-12546 (2010).
- Bigger, J. The bactericidal action of penicillin on staphylococcus pyogenes. Irish Journal of Medical Science. 19, 585-595 (1944).
- Hofsteenge, N., van Nimwegen, E., Silander, O. K. Quantitative analysis of persister fractions suggests different mechanisms of formation among environmental isolates of E. coli. BMC Microbiol. 13, 25 (2013).
- Moyed, H. S., Bertrand, K. P. Hipa a Newly Recognized Gene of Escherichia-Coli K-12 That Affects Frequency of Persistence after Inhibition of Murein Synthesis. Journal of Bacteriology. 155, 768-775 (1983).
- Balaban, N. Q. Persistence: mechanisms for triggering and enhancing phenotypic variability. Current Opinion in Genetics & Development. 21, 768-775 (2011).
Przedruki i uprawnienia
