Technologia HaloTag to wielofunkcyjna technologia, która odniosła znaczący sukces w izolacji zarówno małych, jak i dużych kompleksów białkowych z komórek ssaków. Tutaj podkreślamy zalety tej technologii w porównaniu z istniejącymi alternatywami i pokazujemy jej użyteczność do badania wielu aspektów funkcji białek wewnątrz komórek eukariotycznych.
Artykuł metodologiczny
Odkrywanie interakcji białek i charakteryzowanie funkcji białek za pomocą technologii HaloTag
W tym artykule
Podsumowanie
Streszczenie
Badania w proteomice eksplodowały w ostatnich latach dzięki postępom w możliwościach spektrometrii mas, które doprowadziły do scharakteryzowania licznych proteomów, w tym tych pochodzących od wirusów, bakterii i drożdży. Dla porównania, analiza ludzkiego proteomu pozostaje w tyle, częściowo ze względu na samą liczbę białek, które muszą być zbadane, ale także złożoność sieci i interakcji, które występują. Aby sprostać wyzwaniom związanym ze zrozumieniem ludzkiego proteomu, opracowaliśmy technologię HaloTag do izolacji białek, szczególnie skuteczną do izolacji kompleksów wielobiałkowych i umożliwiającą bardziej efektywne wychwytywanie słabych lub przejściowych interakcji i/lub białek w niskiej obfitości. HaloTag to genetycznie kodowany znacznik fuzji białek, przeznaczony do kowalencyjnej, specyficznej i szybkiej immobilizacji lub znakowania białek różnymi ligandami. Wykorzystując te właściwości, opracowano liczne aplikacje dla komórek ssaków w celu scharakteryzowania funkcji białek, a tutaj prezentujemy metodologie, w tym: ściąganie białek używane do odkrywania nowych interakcji lub testów funkcjonalnych oraz lokalizację komórkową. Znajdujemy znaczące korzyści w szybkości, specyficzności i kowalencyjnym wychwytywaniu białek fuzyjnych do powierzchni w celu analizy proteomicznej w porównaniu z innymi tradycyjnymi podejściami niekowalencyjnymi. Pokazujemy te i szeroką użyteczność technologii, używając dwóch ważnych białek epigenetycznych jako przykładów, ludzkiego białka bromodomeny BRD4 i deacetylazy histonowej HDAC1. Przykłady te pokazują moc tej technologii w umożliwianiu odkrywania nowych interakcji i charakteryzowaniu lokalizacji komórkowej u eukariontów, co razem przyczyni się do dalszego zrozumienia ludzkiej proteomiki funkcjonalnej.
Wprowadzenie
Zrozumienie funkcji komórek, reakcji na bodźce oraz zmian w rozwoju i/lub stanach chorobowych jest ściśle związane z dekonwolucją proteomu w tych różnych dynamicznych stanach1,2. Zrobiono wiele, aby zrozumieć proteom organizmów niższych, jednak biorąc pod uwagę liczbę białek i wszystkie możliwe interakcje, było to bardzo trudne w odniesieniu do ludzkiego proteomu1,3-7. Postępy w spektrometrii mas znacznie umożliwiły podjęcie tych badań, a tutaj przedstawiamy dodatkowy i znaczący postęp wraz z rozwojem technologii HaloTag zarówno do wydajnego wychwytywania kompleksów białkowych, jak i funkcjonalnego Charakterystyka białek ludzkich z komórek ssaków8-10. Ostatnio w kilku badaniach wykazano, że technologia ta jest kluczowym czynnikiem w odkrywaniu ważnych interakcji, umożliwiając wgląd w nową funkcję białek i zrozumienie choroby11-13.
Fuzja białek HaloTag została początkowo opracowana w celu rozwiązania kilku problemów związanych z tradycyjnymi znacznikami powinowactwa i przeciwciałami związanymi z wychwytywaniem, oczyszczaniem i znakowaniem białek8-10. W prawie wszystkich metodach wychwytywania i oczyszczania białek występuje etap interakcji niekowalencyjnej, który jest używany do wzbogacania określonego białka14. Na tym etapie białko i/lub kompleks mogą się oddzielić z powodu dyfuzji, zwłaszcza jeśli proces ten trwa godziny, a nie minuty. Aby rozwiązać ten problem, białko fuzyjne zostało specjalnie zaprojektowane tak, aby szybko i nieodwracalnie oddziaływać ze swoimi ligandami, które mogą być cząsteczkami, powierzchniami lub fluoroforami.. Dlatego, gdy jest związany ze swoim ligandem, pozostaje związany, co jest jednym z najbardziej różnicujących czynników w porównaniu z innymi znacznikami powinowactwa. Wykazano tu również zdolność do rozwiązywania różnych problemów biologicznych za pomocą jednego konstruktu, co jest możliwe dzięki naprzemiennym ligandom9 (ryc. 1). Na przykład, aby badać interakcje lub funkcje białek, Ligandy powierzchniowe są używane do wychwytywania białka lub kompleksów (ryc. 1). W oddzielnym eksperymencie to samo białko fuzyjne może być znakowane fluorescencyjnie w celu zbadania lokalizacji komórkowej, transportu lub obrotu białek (ryc. 1). Ważne jest jednak, aby pamiętać, że po związaniu liganda, niezależnie od tego, czy jest to powierzchnia, czy fluorofor, Jest to nieodwracalne i dlatego inne ligandy nie mogą być następnie związane w tym samym doświadczeniu.
Analiza istniejących technologii mapowania interakcji białek ujawnia trudności w efektywnym izolowaniu specyficznych interakcji, w tym tych, które są bardziej przejściowe lub występują w mniejszej obfitości1,6,7,14,15. Również ostatnie prace wielu grup pokazują obawę, że w ramach tradycyjnych metod izolacji, szczególnie w obszarze proteomiki człowieka, istnieje znaczna liczba zanieczyszczeń białkowych, które mogą maskować sygnały od prawdziwych interaktorów w Analiza spektrometrii mas16. Właściwości opracowane dla białka HaloTag i wspólnie opracowanej żywicy dobrze rozwiązują te problemy. W protokole dla złożonych pulldownów (ryc. 1) wiązanie kompleksów można osiągnąć w ciągu 15 minut, zarówno promując wychwytywanie kompleksów, jak i zmniejszając poziomy niespecyficznego wiązania8. Ponadto, nieodwracalne wiązanie pozwala na efektywne wychwytywanie białek o niskiej liczebności i pozwala na użycie znacznie mniejszej liczby komórek, Ponowne zmniejszenie tła8. Po ustaleniu wychwytywania kompleksów, protokół obejmuje łagodne warunki mycia w celu utrzymania integralności kompleksu. Elucja wychwyconych kompleksów może być przeprowadzona dwiema metodami, a wybór której metody jest podyktowany celem dalszej analizy. Jeśli pragnieniem jest analiza lub odkrycie oddziałujących białek za pomocą Western blot lub spektrometrii mas, następnie zaleca się elucję kompleksów z denaturantami, takimi jak SDS lub mocznik (ryc. 1). Jest to szczególnie korzystne dla spektrometrii mas, ponieważ białko pierwotnie sprzężone z HaloTag, zwane białkiem przynęty, pozostanie związane z żywicą, a zatem nie zdominuje populacji peptydów wykrytych w spektrometrii mas. Oznacza to jednak również, że białko przynęty prawdopodobnie nie będzie widoczne w analizie za pomocą western blot, Znacząca różnica w porównaniu z innymi niekowalencyjnymi oczyszczaniami powinowactwa lub koimmunoprecypitacjami. Jeśli celem jest oczyszczenie kompleksu w stanie nienaruszonym, który ma być wykorzystany do badań funkcjonalnych, elucję można przeprowadzić przy użyciu proteazy TEV (Tobacco Etch Virus), która rozpoznaje pokrewną sekwencję rozszczepienia zakodowaną między białkiem fuzyjnym a białkiem przynęty (ryc. 1). Próbki te mogą być również analizowane za pomocą spektrometrii mas, ale jak wykazano później, Będą one zawierały znaczną ilość białka przynęty, które może uniemożliwić wykrycie mniejszej liczebności, specyficznych interaktorów.
Tutaj prezentujemy protokoły pulldown i obrazowania zastosowane do dwóch ważnych białek terapeutycznych, białka bromodomeny BRD4 i deacetylazy histonowej, HDAC117. Pokazaliśmy na tych przykładach, interakcję z oczekiwanymi partnerami określoną przez spektrometrię mas, aktywność enzymatyczną po złożonej izolacji dla HDAC1 oraz właściwą lokalizację komórkową dla obu. Razem te wyniki pokazują wielofunkcyjną naturę i siłę Technologia charakteryzowania oddziaływań i funkcji białek eukariotycznych.
Protokół
Uwaga: Następujący protokół może być używany z dowolną fuzją HaloTag i w dowolnej wybranej linii komórkowej stabilnie lub przejściowo transfekowanej. W tych przykładach podamy protokoły transfekcji przejściowej fuzji HaloTag w komórkach HEK293T lub HeLa. We wszystkich eksperymentach zalecamy stosowanie tylko białka kontrolnego.
1. Test ekspresji białka fuzyjnego
- Otrzymaj konstrukt białka fuzyjnego:
- Uzyskaj gotowy wektor fuzji HaloTag lub skonstruuj go przy użyciu istniejących wektorów. Aby uzyskać więcej informacji na temat dostępnych konstrukcji, zobacz Tabelę Specyficznych Odczynników.
- W przypadku tworzenia klonu zaleca się weryfikację sekwencyjną DNA.
- Badanie ekspresji białka fuzyjnego i kontroli:
- Dla każdej próbki przygotuj 250 μl 1X buforu SDS Loading Dye (60 mM Tris HCL pH6,8, 0,75 mM błękitu bromofenolowego, 12,5% glicerolu, 100 mM ditiotreitol, 0,5% SDS).
- Dla każdego białka fuzyjnego i kontrolnego płytkę 0,5 ml komórek HEK293T lub HeLa w odpowiednim pożywce o gęstości 2-4 x 10⁵ komórek/ml na standardowej płytce 24-dołkowej.
- Inkubować przez 18-24 godziny w temperaturze 37 °C i 5% CO2 , a następnie transfekować zgodnie z zaleceniami.
- 24 godziny po transfekcji dodać 0,5 μl liganda 5mM tetra-metylo-rodaminy (TMR) do pożywki każdej studzienki i delikatnie wymieszać płytkę.
- Inkubować transfekowane komórki zawierające ligand przez 15 minut w temperaturze 37 °C i 5% CO2 .
- Odessać pożywkę zawierającą ligand i delikatnie przemyć każdą studzienkę komórek 1 ml RT PBS.
- Odessać PBS i przeprowadzić drugie płukanie 1 ml RT PBS.
- Usuń PBS i dodaj 200 μl buforu barwnika 1X SDS Loading bezpośrednio do komórek.
- Odpipetować lizat z płytki do 1,5 ml probówki eppendorfa.
- Gotować lizat przez 5 minut w temperaturze 95 °C.
- Usunąć 5-10 μl reakcji i załadować na żel SDS-PAGE.
- Użyj skanera detekcji fluorescencyjnej (wzbudzenie TMR: 555 nm, emisja: 585 nm), aby wykryć pasma. Używaj fluorescencyjnych markerów białkowych jako wzorców.
- Jeśli skaner do wykrywania fluorescencyjnego jest niedostępny, wykonaj western blot przy użyciu przeciwciał przeciwko białku przynęty lub znacznikowi fuzji białka, aby wykryć ekspresję białka fuzyjnego.
2. Ściąganie białek
- Przygotowanie komórek przetaczanych przejściowo:
- Dla każdej fuzji lub kontroli przygotuj jedno 15-centymetrowe naczynie z 30 ml komórek o łącznej objętości 3-4 x 10 5 komórek/ml lub 1-1,2 x 10⁷ komórek na konstrukt.
- Inkubować przez 18-24 godziny w temperaturze 37 °C i 5% CO2 , a następnie transfekować zgodnie z zaleceniami.
- Po 24-48 godzinach od transfekcji usuń pożywkę i delikatnie umyj warstwę komórek 20-25 ml lodowatego PBS.
- Usunąć PBS z tworzywa sztucznego, a następnie dodać 25-30 ml schłodzonego PBS o temperaturze 4 °C i delikatnie zeskrobać komórki z płytki.
- Zebrać komórki do stożkowych probówek i wirować przez 5-10 minut w temperaturze 2 000 x g i temperaturze 4 °C.
- Odrzucić supernatant i umieścić osad komórkowy w temperaturze -80 °C na minimum 30 minut lub maksymalnie 6 miesięcy.
- Równoważność żywicy HaloLink:
- Dla każdej próbki fuzyjnej lub kontrolnej należy przygotować 12 ml buforu do równoważenia żywicy/płukania (100 mM Tris-HCl pH 7,5, 150 mM NaCl i 0,005% IGEPAL CA-630). Uwaga: Bardzo ważne jest, aby przygotować i użyć bufora równoważącego żywicę w ciągu 12 godzin, ponieważ rozcieńczony IGEPAL CA-630 nie jest stabilny ani skuteczny po upływie tego czasu.
- Delikatnie wstrząśnij lub wymieszaj żywicę, aby uzyskać jednolitą zawiesinę.
- Do każdego eksperymentu z opuszczaniem należy dozować 200 μl żywicy do probówek mikrowirówek o pojemności 1,5 ml.
- Wirować przez 1 minutę przy 800 x g (np. 3 000 obr./min w mikrowirówce), a następnie ostrożnie usunąć i wyrzucić supernatant (etanol) bez naruszania żywicy na dnie probówki.
- Dodać 800 μl buforu do równoważenia żywicy/płukania i dokładnie wymieszać, kilkakrotnie odwracając probówkę.
- Wirować przez 2 minuty przy 800 x g, a następnie ostrożnie usunąć i wyrzucić supernatant.
- Powtórz kroki 2.2.5 i 2.2.6 jeszcze dwa razy, co daje w sumie 3 prania.
- Nie usuwaj końcowego płukania ani supernatantu, dopóki nie będziesz gotowy do dodania lizatów komórkowych opisanych poniżej (krok 2.3.8), aby zapobiec wysychaniu żywicy.
- Wiązanie i mycie kompleksów fuzyjnych:
- Dla każdej próbki przygotuj 500 μl buforu do lizy ssaków (50 mM Tris-HCl pH 7,5, 150 mM NaCl, 1% Triton X-100, 0,1% Deoksycholanu Na) i 1 ml buforu 1X TBS (100 mM Tris-HCl pH 7,5 i 150 mM NaCl).
- Rozmrozić granulki komórkowe i ponownie zawiesić w 300 μl buforu do lizy ssaków, pipetując w górę iw dół lub krótko wirując.
- Dodaj 6 μl koktajlu inhibitorów proteazy 50X (800 μg/ml chlorowodorku benzamidyny, 500 μg/ml fenantroliny, 500 μg/ml aprotyniny, 500 μg/ml leupeptyny, 500 μg/ml pepstatyny A, 50 mM PMSF). Uwaga: Koktajle proteaz, które zawierają AEBSF, nie mogą być używane, ponieważ zakłócają one wiązanie znaczników fuzji białek.
- Dodać 3 μl DNazy RQ1 i odwrócić przez 10 minut w temperaturze pokojowej.
- Odbić szklanym homogenizatorem o pojemności 2,0 ml; 25-30 uderzeń na lodzie lub przepuścić komórki przez igłę 25 lub 27 G 5-10 razy, aby zakończyć lizę. Uwaga: Sonikacja nie jest zalecana, ponieważ kompleksy mogą się rozpaść, a przegrzanie może wpłynąć na aktywność znacznika fuzji białek.
- Wirować przy 14 000 x g przez 5 minut w temperaturze 4 °C w celu oczyszczenia lizatu.
- Przenieść klarowny lizat o całkowitej objętości około 300 μl do nowej probówki i umieścić na lodzie.
- Dodaj do klarownego lizatu dodatkowe 700 μl buforu 1X TBS i dobrze wymieszaj, pipetując w górę iw dół.
- Wziąć zrównoważone probówki z żywicą przygotowane w kroku 2.2.8 i usunąć końcowe płukanie/supernatant z żywicy, nie naruszając żywicy na dnie probówki.
- Do każdej probówki z żywicą dodać 1 ml rozcieńczonego lizatu.
- Inkubować z mieszaniem na rotatorze rurowym (lub delikatnym mieszadle) przez 15 minut w temperaturze 22 °C. Uwaga: Osiadanie żywicy w tym czasie zmniejsza skuteczność wiązania. Jeśli pożądane jest wiązanie w temperaturze 4 °C, należy to zrobić mieszając przez 1 godzinę.
- Odwirować probówki z żywicą przez 2 minuty przy 800 x g i odrzucić supernatant.
- Dodać 1 ml buforu do równoważenia/płukania żywicy wykonanego w kroku 2.2.1 i dokładnie wymieszać, kilkakrotnie ręcznie odwracając rurkę z żywicą.
- Odwirować probówki z żywicą przez 2 minuty przy 800 x g i wyrzucić płukanie.
- Powtórz kroki 2.3.12, a następnie 2.3.14 jeszcze trzy razy.
- Dodać 1 ml buforu do równoważenia żywicy/przemywania i inkubować w temperaturze 22 °C przez 5 minut ze stałą rotacją.
- Odwirować probówki z żywicą przez 2 minuty przy 800 x g i wyrzucić płukanie.
- W zależności od końcowego zastosowania (dalsze wyjaśnienia znajdują się we Wprowadzeniu) przejdź do sekcji 2.4 lub 2.5.
- Elucja SDS do denaturacji żeli, plam zachodnich lub spektrometrii mas:
- Zawiesić żywicę z każdej próbki w 50 μl buforu elucyjnego SDS (1% SDS i 50 mM Tris-HCl pH7,5)
- Wstrząsaj probówkami w temperaturze pokojowej przez 30 minut.
- Wirować przez 2 minuty przy 800 x g i przenieść eluaty do świeżych probówek w celu analizy.
- W przypadku żelu Western blot lub silver stain, załaduj 5-10 μl na żel denaturujący SDS.
- W przypadku spektrometrii mas należy zachować 40 μl każdej próbki w temperaturze -20 °C.
- Elucja proteazy TEV do testów funkcjonalnych, Western Blots lub spektrometrii mas:
- Po usunięciu ostatniego płukania ponownie zanurz żywicę w 50 μl buforu łupliwego ProTEV i 30 jednostkach enzymu TEV.
- Inkubować w temperaturze 25 °C z wytrząsaniem przez 1 godzinę.
- Wirować przez 2 minuty przy 800 x g.
- Przenieść eluat do świeżych probówek.
- Przechowywać próbkę w temperaturze 4 °C do natychmiastowego użycia w testach funkcjonalnych.
3. Obrazowanie komórkowe znakowanych fluorescencyjnie białek fuzyjnych przy użyciu cytoplazmatycznego i przepuszczalnego dla jądra liganda
- Komórki transfekcyjne, etykiety i obrazu:
- W 8-dołkowym szkle nakrywkowym dla każdego białka fuzyjnego lub kontrolnego umieść 400 μl komórek HeLa w odpowiednim pożywce w każdym dołku o gęstości 1-2 x 10⁵ komórek/ml.
- Inkubować przez 18-24 godziny w temperaturze 37 °C i 5% CO2 , a następnie transfekować zgodnie z zaleceniami.
- 18-24 godziny po transfekcji rozcieńczyć ligand TMR w stosunku 1:200 w odpowiednim pożywce komórkowej, następnie dodać 100 μl tego roztworu do każdej studzienki i delikatnie wymieszać.
- Inkubować transfekowane komórki zawierające ligand przez 15 minut w temperaturze 37 °C i 5% CO2 .
- Odessać pożywkę zawierającą ligand i zastąpić 500 μl odpowiedniej pożywki pozbawionej liganda ze znacznikiem do fuzji białek, która została wstępnie podgrzana do temperatury 37 °C.
- Powtórz dwa razy, w sumie trzy prania.
- Umieścić komórki z powrotem w inkubatorze (37 °C i 5% CO2 ) na 30 minut.
- Odessać pożywkę i zastąpić ją 500 μl odpowiedniej pożywki, która została wstępnie podgrzana do temperatury 37 °C.
- Obraz na mikroskopie z wykorzystaniem odpowiednich parametrów akwizycji (wzbudzenie TMR: 555 nm, emisja: 585 nm).
Wyniki
Przy pracy z każdym nowym białkiem fuzyjnym ważne jest, aby w pierwszej kolejności przetestować ekspresję tego białka po transfekcji oraz potwierdzić, że produkowane jest białko o odpowiedniej masie cząsteczkowej. Ponieważ białka fuzyjne HaloTag mogą być fluorescencyjnie i kowalencyjnie znakowane ligandami przepuszczalnymi lub, w zależności od lokalizacji, nieprzepuszczalnymi, ekspresję można szybko określić, nakładając lizaty komórkowe na żel do elektroforezy denaturującej, a następnie skanując je za pomocą fluorimagera. Stosując protokół opisany w sekcji 1.2, obserwuje się ekspresję Halo-BRD4 (189 kD) oraz kontrolę samego HaloTagu (Ctrl) (34 kD, Rycina 2A). Jak wspomniano w protokole, ekspresję białek fuzyjnych można wykryć również za pomocą tradycyjnego Western blotu z użyciem przeciwciał anty-HaloTag lub, jeśli są dostępne, przeciwciał przeciwko białku przynęcie. Jeśli to możliwe, zaleca się stosowanie liganda fluorescencyjnego, ponieważ jest on bardziej specyficzny, szybszy i łatwiejszy w obsłudze niż detekcja przeciwciałami, a dodatkowo pozwala na analizę ilościową10.
Po zweryfikowaniu ekspresji odpowiedniego białka fuzyjnego o pełnej długości można przeprowadzić testy pulldown białek. Na Rysunku 2B przedstawiono żele barwione srebrem dla powtórzeń biologicznych pulldownów Halo-BRD4 i Ctrl eluowanych za pomocą SDS (Sekcja 2.4 protokołu), które wykazują wysoką powtarzalność. Żele barwione srebrem pokazują, że znaczna liczba białek oddziałuje z białkiem BRD4, przy bardzo niskim poziomie tła w kontroli (Rysunek 2B). Jak wspomniano we wstępie, w tym procesie elucji białko Halo-BRD4 nie zostanie wymyte z żywicy, ponieważ pozostaje z nią związane kowalencyjnie. W związku z tym na żelu barwionym srebrem (Rysunek 2B) ani w analizie western blot (dane nie zostały przedstawione) nie wykryto znaczącego prążka o tej masie cząsteczkowej. Aby ustalić, czy białka te są specyficzne dla BRD4, przeprowadzono analizę spektrometrii mas z chromatografią cieczową (LC-MS/MS) złożonej mieszaniny uzyskanej po elucji SDS. Na Rysunku 2C przedstawiono liczby widm (spectral counts) oraz wartości znormalizowanego współczynnika obfitości widmowej (NSAF) dla znanych interaktorów BRD418-20 zidentyfikowanych w analizie spektrometrii mas Halo-BRD4. Wysoka obfitość komponentów pTEFb18,20 oraz białka BRD919 potwierdza specyficzne wychwycenie kompleksów BRD4. Zgodnie z przewidywaniami wynikającymi z żeli barwionych srebrem (Rysunek 2B), zidentyfikowano również liczne inne białka jako potencjalne interaktory BRD4, których nie zaobserwowano w kontroli (dane nie zostały przedstawione). Ponieważ są one wcześniej nieznane, muszą zostać niezależnie zweryfikowane za pomocą innych metodologii, aby potwierdzić, czy dane białko jest rzeczywistym interaktorem, a jeśli tak, czy wiąże się z BRD4 bezpośrednio czy pośrednio.
Wyizolowane kompleksy można poddać badaniom w celu oceny ich aktywności; zaleca się elucję kompleksów przy użyciu proteazy TEV (Sekcja protokołu 2.5), aby zachowały one swoją funkcjonalność. Na Rysunku 3A przedstawiono żel barwiony srebrem dla kompleksów wyciągniętych metodą pulldown Halo-HDAC1, uwolnionych z żywicy za pomocą proteazy TEV. Ponieważ proteaza TEV przecina region łącznika pomiędzy tagiem białkowym a białkiem fuzyjnym, obserwuje się znaczne ilości białka przynęty, w tym przypadku HDAC1 (Rysunek 3A). Aby sprawdzić, czy ta frakcja wykazuje aktywność HDAC1, eluowane próbki po traktowaniu proteazą TEV przetestowano w luminescencyjnym teście HDAC, HDAC-Glo21. Jak pokazano na Rysunku 3B, próbki pulldown HDAC1 wykazały wysoki poziom aktywności HDAC1 (Kolumna 1), który został specyficznie zahamowany przez znany inhibitor HDAC, SAHA22 (Kolumna 2). W ramach kontroli w celu dalszego wykazania specyficzności, nie zaobserwowano inhibicji HDAC przy użyciu pokrewnego inhibitora z rodziny sirtuin, EX-52722 (Kolumna 3), a w przypadku samego buforu bez dodanej próbki pulldown HDAC1 nie wykryto żadnego sygnału (Kolumna 4).
Istotnym elementem proteomiki funkcjonalnej oraz zrozumienia kompleksów białkowych jest również analiza lokalizacji i/lub transportu białek. Ponieważ te same konstrukty fuzyjne mogą być znakowane fluorescencyjnie wewnątrz komórek, monitorowaliśmy ich lokalizację przy użyciu obrazowania konfokalnego. Zgodnie z protokołem opisanym w sekcji 3, komórki HeLa przejściowo transfekowane Halo-BRD4 (Ryc. 4A) oraz Halo-HDAC1 (Ryc. 4B) zostały znakowane fluorescencyjnie ligandem TMR i poddane obrazowaniu. Jak pokazano na Ryc. 4A i 4B, oba białka zlokalizowały się w jądrze komórkowym, zgodnie z oczekiwaniami17. Dane te dowodzą, że obecność znacznika nie zmieniła fizjologicznej lokalizacji komórkowej białek fuzyjnych.

Rycina 1. Schemat zastosowań w wyciąganiu białek (protein pulldown) oraz obrazowaniu konfokalnym. Wykorzystanie pojedynczego konstruktu umożliwia przeprowadzenie kilku różnych analiz w celu zrozumienia funkcji białek w komórkach ssaków. We wszystkich przypadkach konstrukt fuzyjny Halo jest stabilnie lub przejściowo eksprimowany w adherentnych lub zawiesinowych komórkach ssaków. W przypadku wyciągania kompleksów białkowych komórki są następnie lizowane, kompleksy są kowalencyjnie wychwytywane na żywicy, a następnie eluowane poprzez elucję SDS (ścieżka lewa) lub cięcie TEV (ścieżka prawa). Elucję SDS zaleca się w przypadku dalszej analizy metodą spektrometrii mas, natomiast cięcie TEV jest optymalne do przeprowadzania analiz funkcjonalnych. Aby scharakteryzować ekspresję, lokalizację komórkową, zdarzenia transportu wewnątrzkomórkowego lub obrót białek, żywe komórki eksprimujące białka fuzyjne są znakowane fluorescencyjnie, a następnie analizowane na żelach SDS PAGE lub przy użyciu obrazowania konfokalnego. W zależności od lokalizacji lub ekspozycji białka fuzyjnego w komórce, dostępne są fluorescencyjne ligandy przenikalne lub nieprzenikalne przez błony komórkowe.
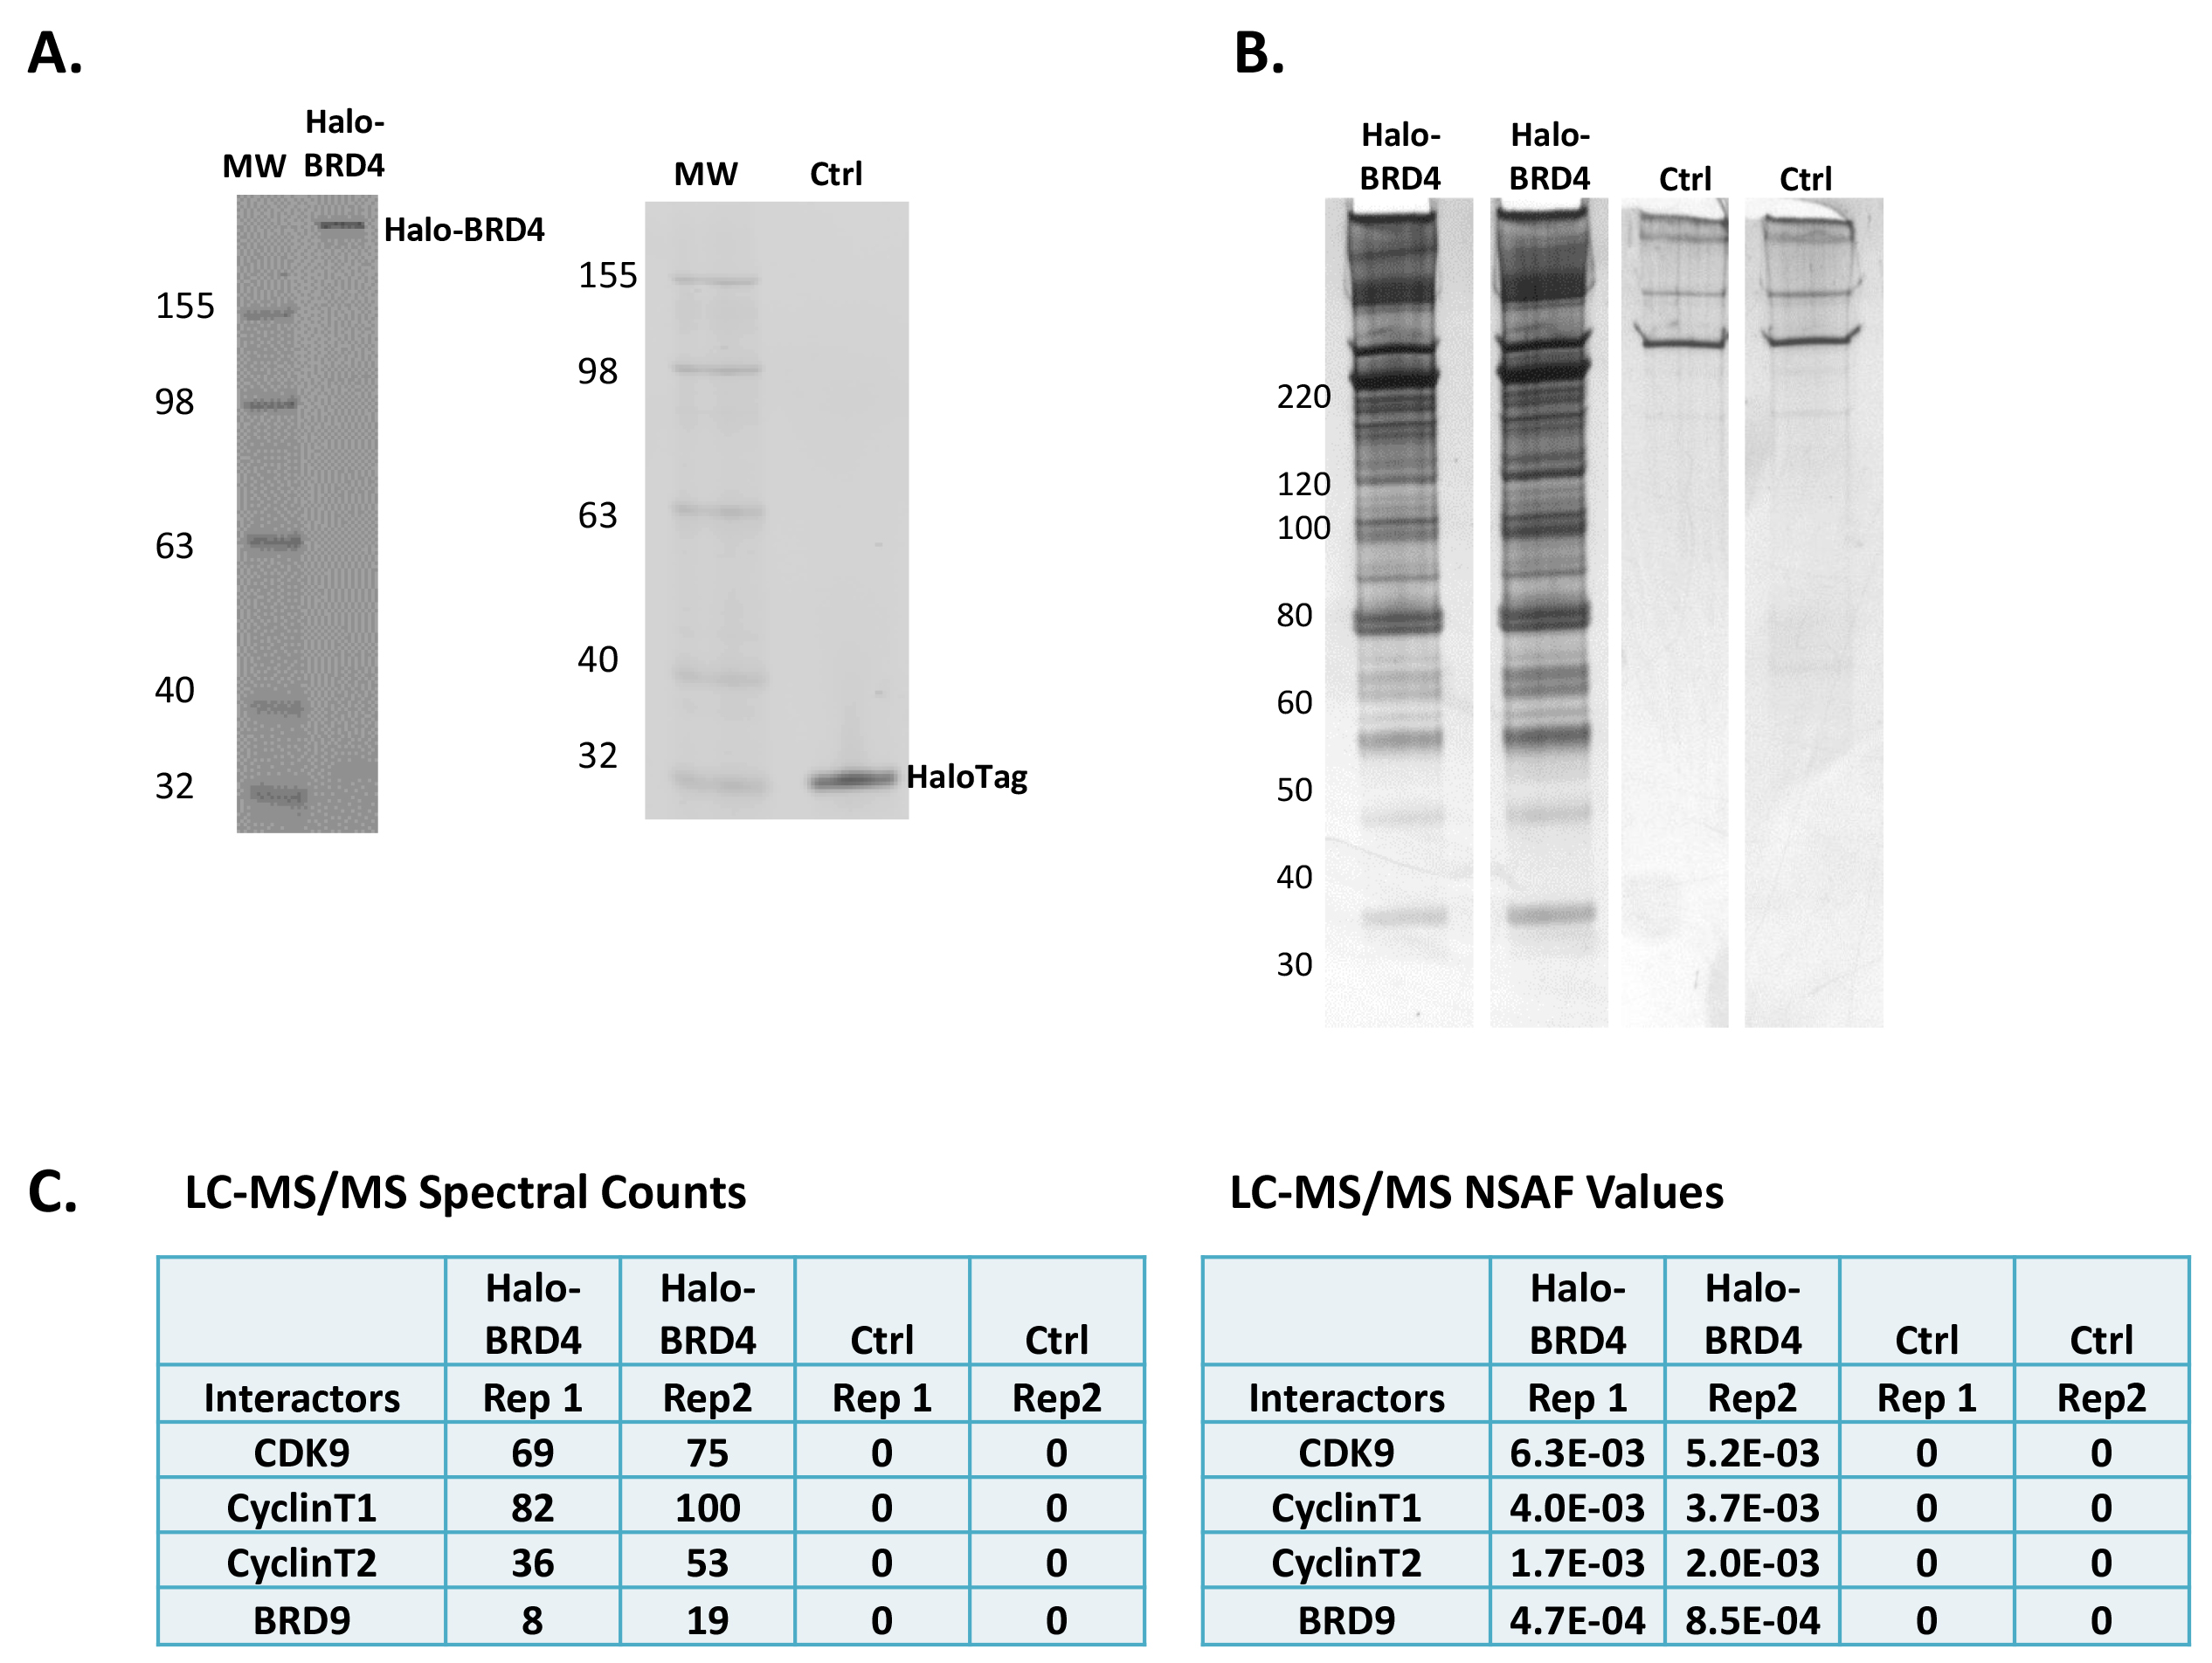
Rycina 2. Ekspresja białka Halo-BRD4, pulldown oraz analiza spektrometrią mas. (A) Żele SDS PAGE pokazujące ekspresję białka fuzyjnego Halo-BRD4, 189 kD, oraz samego tagu fuzyjnego białka Halo, 34 kD, kontroli (Ctrl) w lizacie komórkowym HEK293T znakowanym ligandem TMR (Sekcja 2.1 protokołu). Żele zostały przeskanowane fluorimetrem w celu detekcji; użyto fluorescencyjnego markera masy cząsteczkowej. (B)Żele barwione srebrem dla powtórzeń biologicznych w eksperymentach pulldown próbek Halo-BRD4 i Ctrl elowanych za pomocą SDS. Na żelu zaznaczono wartości masy cząsteczkowej. (C)Liczba widm (lewy panel) i znormalizowane czynniki obfitości widmowej (NSAF) (prawy panel), które uwzględniają masę cząsteczkową białek zidentyfikowanych w analizie spektrometrią mas powtórzeń biologicznych Halo-BRD4 i Ctrl. Przedstawiono białka znane z oddziakiwania z BRD4, w tym komponenty pTEFb (CDK9 i Cyclin T)18,20, a także BRD919. W próbie Ctrl nie zidentyfikowano żadnych peptydów tych białek.
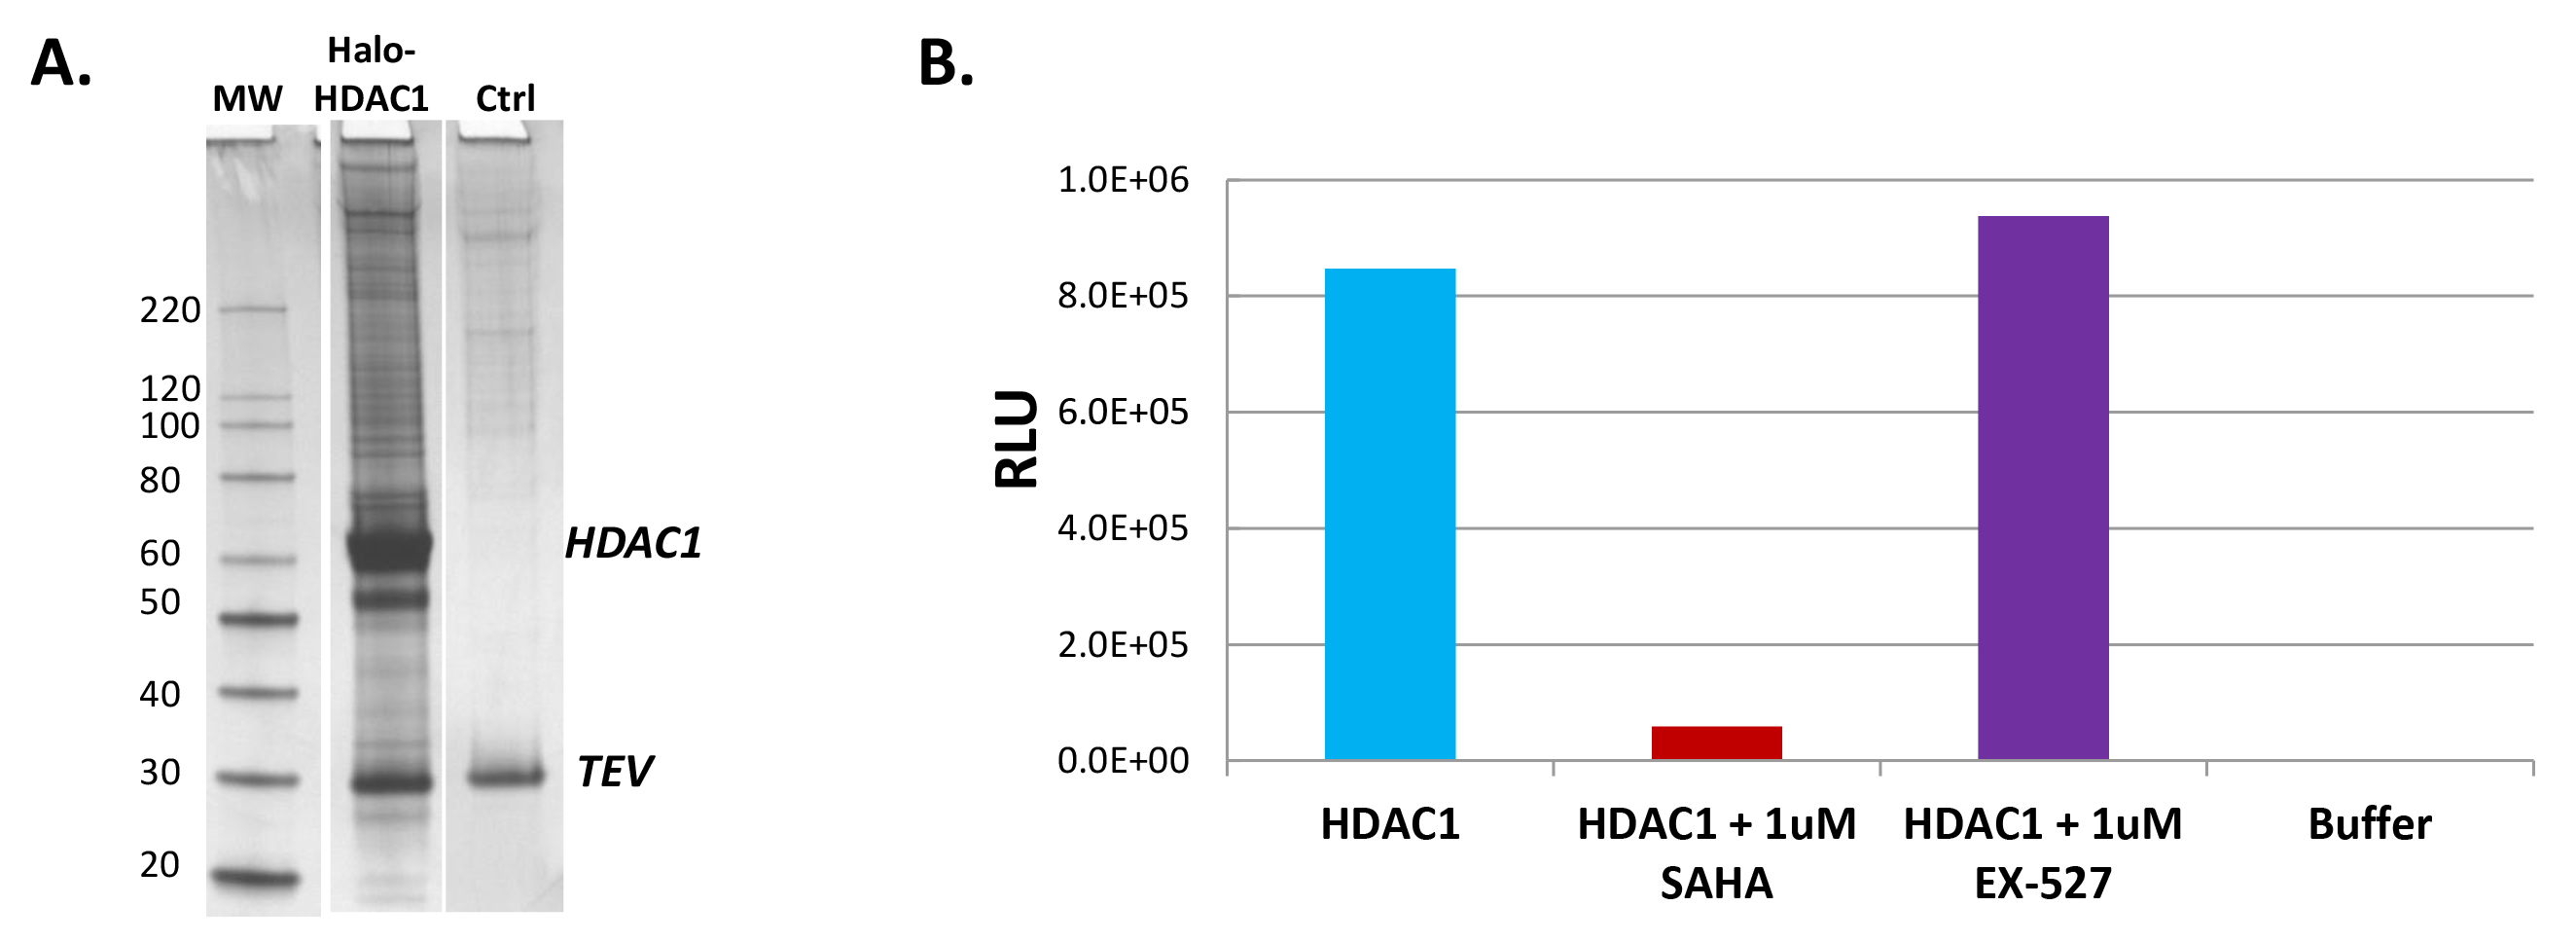
Rycina 3. Izolacja i analiza aktywności kompleksu Halo-HDAC1. (A) Żele barwione srebrem przedstawiające izolację kompleksów Halo-HDAC1 oraz tło z próbki Ctrl po cięciu proteazą TEV (Sekcja 2.5 protokołu). Oznakowano wyraźny prążek HDAC1 (55 kDa) oraz prążek proteazy TEV. Wolne HDAC1 powstaje w wyniku cięcia przez TEV w zoptymalizowanym łączniku między HaloTag a sekwencją fuzyjną HDAC1 po wychwyceniu na żywicy (Rycina 1). (B) Wykres przedstawiający aktywność próbek izolowanych kompleksów HDAC1 w luminescencyjnym teście deacetylazy histonowej, HDAC-Glo21. Kolumna 1 na wykresie wykazuje wysokie poziomy aktywności HDAC w próbkach po pulldown Halo-HDAC1 (HDAC1). Kolumna 2 ujawnia, że aktywność tę można specyficznie zmniejszyć poprzez dodanie inhibitora HDAC, SAHA22, do próbek pulldown HDAC1. Jako kontrole, kolumna 3 wykazuje, że inhibitor deacetylazy specyficzny dla rodziny sirtuin, ale nie dla HDAC, EX-52722, nie hamuje aktywności HDAC1, a kolumna 4 pokazuje, że nie obserwuje się żadnej aktywności w przypadku użycia samego buforu.
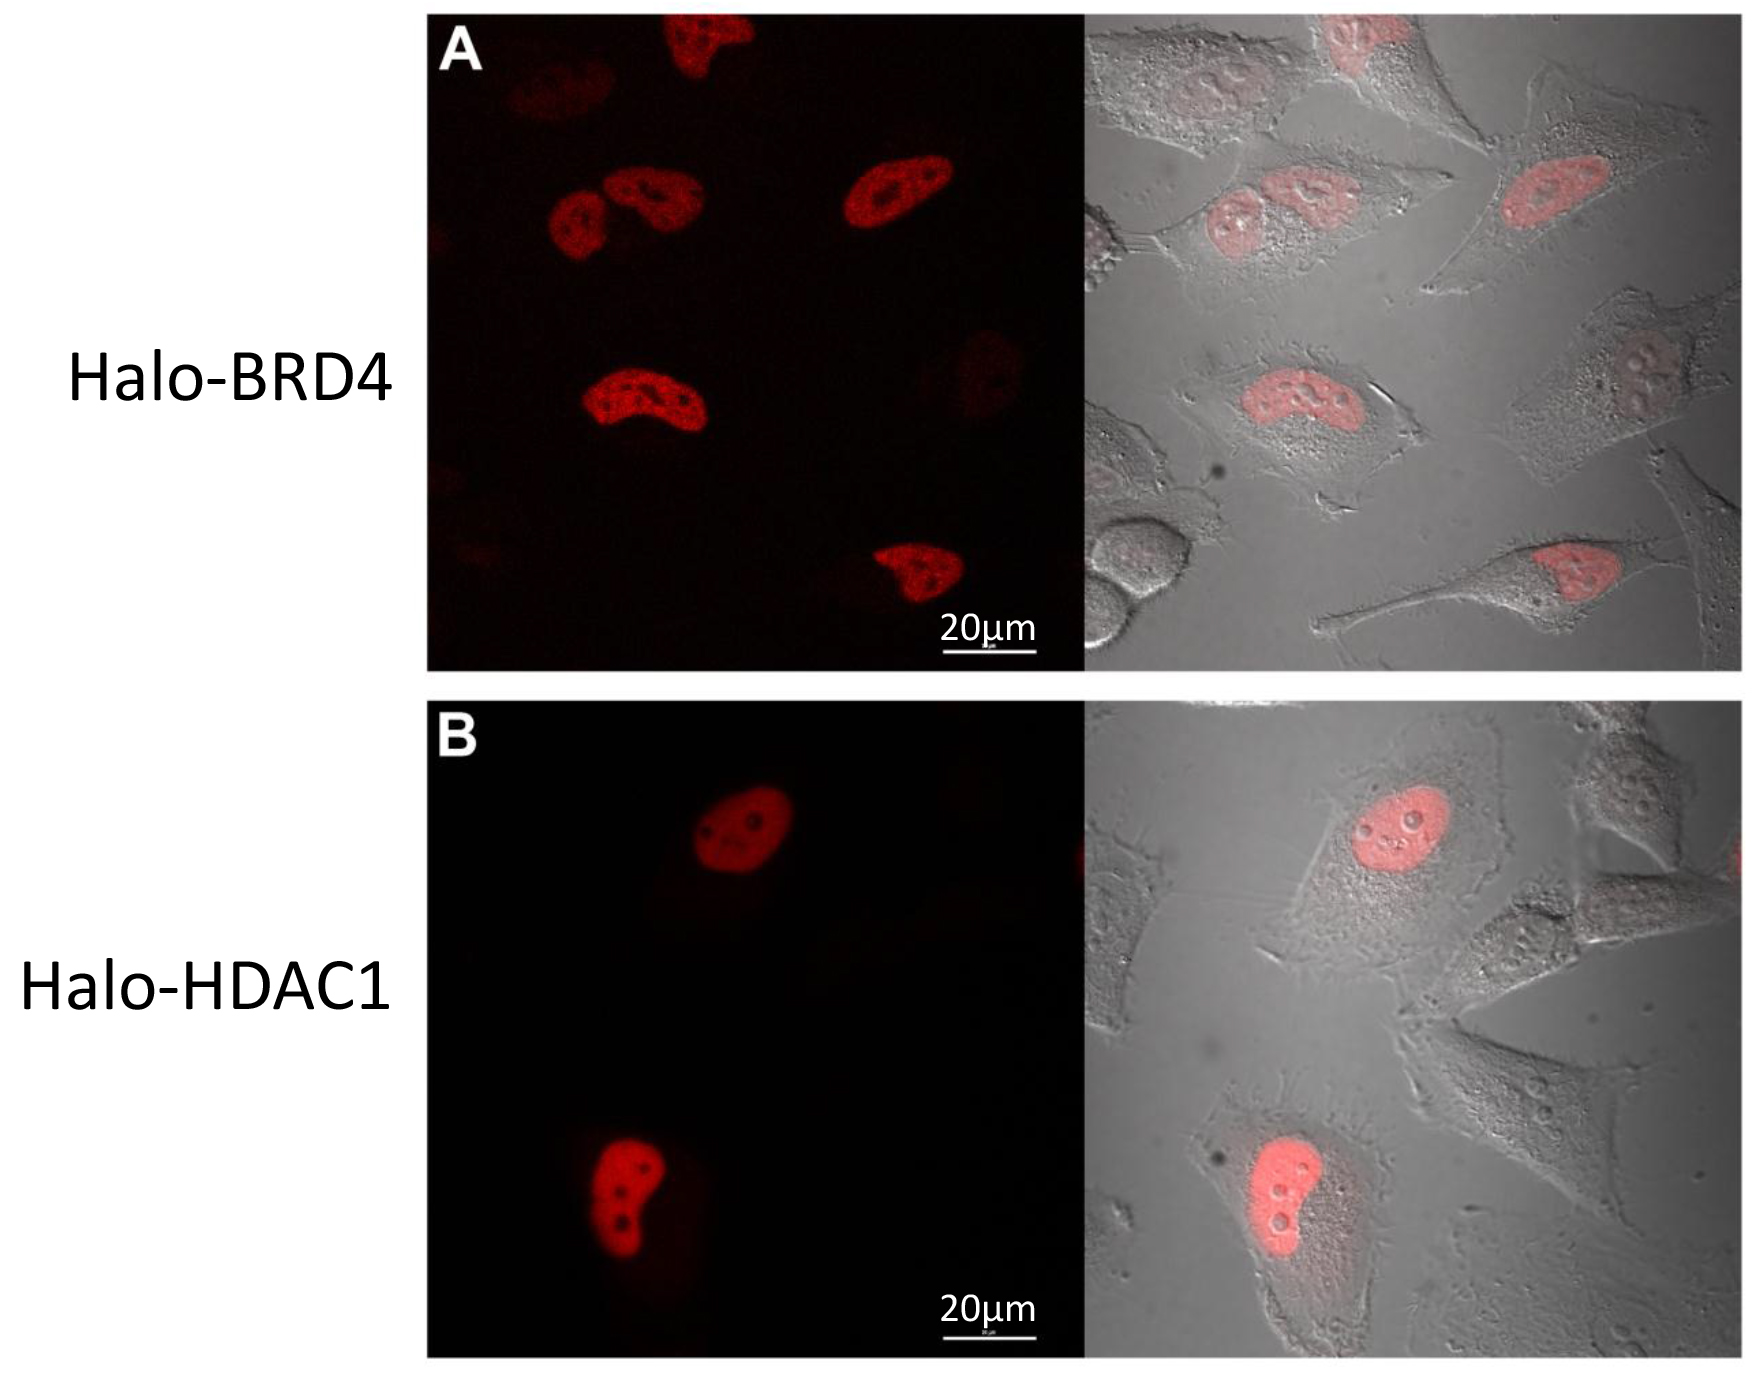
Rycina 4. Obrazowanie konfokalne Halo-BRD4 i Halo-HDAC1. Obrazowanie konfokalne żywych komórek HeLa przetransfekowanych Halo-BRD4 (A) lub Halo-HDAC1 (B) znakowanych fluorescencyjnie ligandem TMR. (A) Ekspresja Halo-BRD4 jest ograniczona do jądra komórkowego, a (B) ekspresja Halo-HDAC1 ma charakter głównie jądrowy. Lewa strona paneli przedstawia kanał fluorescencyjny, a prawa strona jest nałożeniem kanału fluorescencyjnego na kanał DIC dla każdego z nich. Obrazy uzyskano za pomocą mikroskopu konfokalnego wyposażonego w komorę środowiskową 37 °C + CO2, stosując odpowiednie zestawy filtrów. Paski skali = 20 µm.
Dyskusja
Przedstawiono tutaj dwa białka fuzyjne, Halo-BRD4 i Halo-HDAC1, scharakteryzowane w komórkach ssaków eukariotycznych pod kątem ekspresji, izolacji i aktywności kompleksu białkowego oraz lokalizacji komórkowej. Podczas pracy nad tymi różnymi protokołami istnieje kilka ważnych kroków dla powodzenia każdego eksperymentu. Podobnie jak w przypadku każdego białka fuzyjnego, poziom ekspresji i umiejscowienie samego znacznika mogą mieć kluczowe znaczenie dla utrzymania fizjologii. Dlatego ważne jest, aby wziąć pod uwagę, że Fuzje N- i/lub C-końcowe będą musiały zostać zaprojektowane, jeśli wcześniejsza wiedza lub praca z innym znacznikiem nie została wykazana dla konkretnego białka z wyboru. Jeśli chodzi o ekspresję, jeśli poziom jest zbyt wysoki, rozcieńczenie DNA można przeprowadzić podczas transfekcji lub możliwe jest użycie wektorów ze słabszymi promotorami w celu osiągnięcia odpowiedniego poziomu. Wcześniejsze prace wykazały skuteczną izolację kompleksów makromolekularnych na endogennych poziomach ekspresji8, umożliwiając pracę na bardzo niskich poziomach ekspresji. Jeśli to możliwe, badania lokalizacji komórkowej będą również w stanie dostarczyć informacji na temat optymalnej pozycji umieszczania znaczników, a także względnego poziomu ekspresji potrzebnego do prawidłowej fizjologii.
Gdy białka fuzyjne są gotowe do eksperymentów pulldown, aby uzyskać maksymalny sukces z protokołem, bardzo ważne jest przestrzeganie zalecanych ram czasowych w sekcjach lizy, wiązania i mycia, ponieważ jedną z największych zalet jest szybkość złożonego procesu izolacji. Jeśli którykolwiek z tych etapów zostanie wydłużony w czasie, takie, jakie jest wymagane w przypadku metody wychwytywania opartej na przeciwciałach, istnieje ryzyko złożonej dysocjacji lub zwiększonego nieswoistego wiązania8. Podobnie, jeśli czasy są skrócone podczas lizy lub wiązania komórek, komórki mogą nie być odpowiednio całkowicie zlizowane lub skutecznie wychwycone. Jeśli liczba płukań jest zmniejszona lub nie następuje dobre wymieszanie żywicy podczas wiązania lub płukania, Wtedy poziomy tła białek niespecyficznych zostaną zwiększone. Również sposób lizy jest bardzo ważny w odniesieniu do skuteczności wiązania z żywicą. Próby sonikacji próbek, usunięcia zalecanego detergentu, dodania SDS lub innego silnego detergentu i/lub włączenia inhibitora proteazy AEBSF spowodują zmniejszenie lub utratę wiązania białek fuzyjnych i ich kompleksów z żywicą.
Istniejące metody złożonej izolacji z komórek ssaków i ludzkiej analizy proteomicznej zmagają się z wyzwaniem zmniejszenia tła w analizie za pomocą spektrometrii mas16. Było to tak znaczące, że liczne grupy spektrometrii mas stworzyły repozytorium białek zanieczyszczających16. Tło w próbkach ściąganych spektrometrii mas można zdefiniować jako wszystko, co uniemożliwia identyfikację prawdziwych interaktorów białka przynęty. W związku z tym, Tło może powstać w wyniku zanieczyszczenia niespecyficznych białek, a także dużych stężeń białka przynęty lub przeciwciał stosowanych do wytrącania białek przynęty. Wykonano znaczną pracę nad optymalizacją zarówno przedstawionego tutaj protokołu pulldown, jak i żywicy, w celu zminimalizowania poziomu niespecyficznych białek zanieczyszczających w procesie pulldown. Jest to widoczne w żelach barwiących srebro i analizie spektrometrii mas w próbie (Rysunek 2). Aby rozwiązać problem wysokiego poziomu białka przynęty lub przeciwciał, które mogą być równie szkodliwe jak zanieczyszczenia i z którymi zmagają się inne metodologie, zaleca się ekstrakcję z elucją, którą należy przeprowadzić (sekcja 2.4 protokołu). Ze względu na kowalencyjne przyłączanie do żywicy, proces ten pozostawi większość początkowego białka fuzyjnego kowalencyjnie przyłączonego do żywicy. W analizie spektrometrii mas obserwuje się niewielki procent przynęty, która, jak się uważa, zachodzi w wyniku hydrolizy, ale nie stanowi problemu w wykrywaniu innych słabszych lub przejściowych oddziaływań8.
Jak wspomniano we wprowadzeniu, znaczący postęp w proteomice był możliwy dzięki znaczącym postępom w spektrometrii mas1,7. Dlatego ważne jest, aby podkreślić ważne parametry wyboru analizy spektrometrii mas w celu dekonwolucji mieszaniny białek otrzymanych w pulldownach. Oprzyrządowanie musi być wytrzymałe i zdolne do rutynowej i skutecznej analizy próbek zawierających niewielką ilość białka, często mniejszą niż <1 μg. Chromatografia w nanoskali z udziałem kolumn HPLC o średnicy wewnętrznej 50-75 μm i natężeniu przepływu w zakresie 100-300 nl/min jest zwykle stosowana w celu zapewnienia zgodności z małymi rozmiarami próbek i maksymalizacji czułości spektrometru masowego. Aby zmaksymalizować informacje uzyskane w jednej analizie, zwykle stosuje się najnowocześniejsze spektrometry mas zdolne do pozyskiwania widm masowych o wysokiej rozdzielczości w skali czasowej zgodnej z wyżej wymienionymi separacjami w nanoskali, ≥10 Hz. Przyrządy te mają attomolowe poziomy czułości i mogą rutynowo pozyskiwać dane z tolerancjami błędu prekursora sub ppm i masy jonów produktu. Te cechy wydajności służą zwiększeniu wydajności liczby zidentyfikowanych białek i pewności związanej z tymi identyfikacjami.
Dzięki tym danym pokazujemy fizjologiczną lokalizację komórkową, prawidłowe interakcje białko-białko wraz z potencjałem do odkrywania nowych interakcji oraz izolację aktywnych kompleksów przy użyciu jednego konstruktu. Rzeczywiście, alternatywne technologie mogą być stosowane dla każdego z tych różnych aspektów, ale prawdopodobnie nie dla wszystkich23,24. Dzięki technologii HaloTag można zastosować podejście wielofunkcyjne, Postęp w badaniach proteomicznych i uzyskanie pełniejszego zrozumienia funkcji białek w komórkach ssaków.
Oświadczenia
Opłaty za publikację tego artykułu są sponsorowane przez Promega Corporation. Danette L. Daniels, Jacqui Méndez, Hélène Benink, Andrew Niles, Nancy Murphy i Marjeta Urh są pracownikami firmy Promega Corporation, która jest właścicielem komercyjnym poprzez cesję patentów na technologię HaloTag i jej zastosowania. Michael Ford, Richard Jones, Ravi Amunugama i David Allen są pracownikami firmy MSBioworks, która świadczy usługi spektrometrii mas opisane w tym manuskrypcie.
Podziękowania
Dziękujemy Dr. Martinowi Rosenbergowi, Dr. Gary'emu Tarpleyowi i Dr. Keithowi Woodowi za wsparcie tej pracy, oraz Dr. Jamesowi Cali za krytyczną lekturę manuskryptu. DLD, JM, HB, NM, AN, JC i MU są pracownikami Promega Corporation. MF, RJ, RA i DA są pracownikami MS Bioworks, LLC.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| HeLa Cells | ATCC | CCL-2 | Adherent |
| HEK293T Cells | ATCC | CRL-11268 | Adherent |
| Cellular growth media | Invitrogen/Gibco | ||
| PBS - certyfikowana hodowla tkankowa | Invitrogen/Gibco | ||
| FuGENE HD | Wektor | E2311 | |
| Promega | G6591 | ||
| HaloTag-BRD4 | Instytut Badawczy DNA Kazusa | FHC11882 | N-końcowa fuzja |
| HaloTag HaloTag-HDAC1 | Instytut Badawczy DNA Kazusa | FHC02563 | N-terminalowa fuzja HaloTag |
| Klony HaloTag zawierające zawartość | Promega | Różne | |
| wektory http://www.promega.com/FindMyGene/ HaloTag Flexi do klonowania (N- lub C-terminal) | Promega | Various | Wybierz na podstawie poziomu ekspresji i orientacji HaloTag HaloTag |
| TMR Ligand | Promega | G8251 | |
| IGEPAL CA-630 | Sigma | 18896 | |
| HaloTag System do wyciągania i etykietowania ssaków | Promega | G6500 | Zawiera ligand HaloTag |
| TMR System opuszczania dla ssaków | Promega | G6504 | |
| Koktajl inhibitorów proteazy, 50X | Promega | G6521 | |
| Bufor do lizy ssaków | Promega | G9381 | |
| Przeciwciało monoklonalne HaloTag | Promega | G9211 | |
| ProTEV Plus | Promega | V6101 | |
| RQ1 Dnase | Promega | M6101 | |
| Żywica HaloLink | Promega | G1912 | |
| HDAC-Glo | Promega | G6420 | |
| PBS + 0,1% Triton X-100 | Do opcjonalnego obrazowania | ||
| 4% paraformaldehydu/0,2 M sacharozy/PBS | Do opcjonalnego obrazowania | ||
| Etanol | |||
| Naczynia i naczynia | |||
| tkankowych Inkubator | |||
| do hodowli komórkowychJednorazowy podnośnik komórek | Thermo Fisher Scientific | 08-773-1 | |
| Homogenizator szklany, taki jak młynek do tkanek Kontes Dounce | Thermo Fisher Scientific | K885300-0002 | Igła 25-27 G może być również używana |
| Mikrowirówka | |||
| Rotator probówkowy, taki jak Labquake | Thermo Fisher Scientific | 4002110Q | Idealny do etapów |
| wiązania i myciaPlatforma wibrująca, taka jak Eppendorf Thermomixer | Thermo Fisher Scientific | 05-400-200 | Idealna do etapów elucji SDS i rozszczepienia TEV |
| Komorowe szkło osłonowe | Thermo Fisher Scientific | 155409 | Do opcjonalnego obrazowania |
| Mikroskop fluorescencyjny (555 nm Ex/585 nm Em) | Do opcjonalnego obrazowania |
Bibliografia
- Altelaar, A. F., Munoz, J., Heck, A. J. Next-generation proteomics: towards an integrative view of proteome dynamics. Nat Rev Genet. 14, 35-48 (2013).
- Tyers, M., Mann, M. From genomics to proteomics. Nature. 422, 193-197 (2003).
- Coulombe, B., et al. Interaction networks of the molecular machines that decode, replicate, and maintain the integrity of the human genome. Mol Cell Proteomics. 3, 851-856 (2004).
- Gavin, A. C., et al. Proteome survey reveals modularity of the yeast cell machinery. Nature. 440, 631-636 (2006).
- Krogan, N. J., et al. Global landscape of protein complexes in the yeast Saccharomyces cerevisiae. Nature. 440, 637-643 (2006).
- Sardiu, M. E., et al. Probabilistic assembly of human protein interaction networks from label-free quantitative proteomics. Proc Natl Acad Sci U S A. 105, 1454-1459 (2008).
- Domon, B., Aebersold, R. Mass spectrometry and protein analysis. Science. 312, 212-217 (2006).
- Daniels, D. L., et al. Examining the complexity of human RNA polymerase complexes using HaloTag technology coupled to label free quantitative proteomics. J Proteome Res. 11, 564-575 (2012).
- Encell, L. P., et al. Development of a dehalogenase-based protein fusion tag capable of rapid, selective and covalent attachment to customizable ligands. Curr Chem Genomics. 6, 55-71 (2012).
- Ohana, R. F., et al. HaloTag-based purification of functional human kinases from mammalian cells. Protein Expr Purif. 76, 154-164 (2011).
- Black, J. C., et al. KDM4A Lysine Demethylase Induces Site-Specific Copy Gain and Rereplication of Regions Amplified in Tumors. Cell. 154, 541-555 (2013).
- Deplus, R., et al. TET2 and TET3 regulate GlcNAcylation and H3K4 methylation through OGT and SET1/COMPASS. EMBO J. 32, 645-655 (2013).
- Galbraith, M. D., et al. HIF1A Employs CDK8-Mediator to Stimulate RNAPII Elongation in Response to Hypoxia. Cell. 153, 1327-1339 (2013).
- Collins, M. O., Choudhary, J. S. Mapping multiprotein complexes by affinity purification and mass spectrometry. Curr Opin Biotechno. 19, 324-330 (2008).
- Collins, S. R., et al. Toward a comprehensive atlas of the physical interactome of Saccharomyces cerevisiae. Mol Cell Proteomics. 6, 439-450 (2007).
- Mellacheruvu, D., et al. The CRAPome: a contaminant repository for affinity purification-mass spectrometry data. Nat Methods. 10, 730-736 (2013).
- Dawson, M. A., Kouzarides, T. Cancer epigenetics: from mechanism to therapy. Cell. 150, 12-27 (2012).
- Jang, M. K., et al. The bromodomain protein Brd4 is a positive regulatory component of P-TEFb and stimulates RNA polymerase II-dependent transcription. Mol Cell. 19, 523-534 (2005).
- Rahman, S., et al. The Brd4 extraterminal domain confers transcription activation independent of pTEFb by recruiting multiple proteins, including NSD3. Mol Cell Biol. 31, 2641-2652 (2011).
- Yang, Z., et al. Recruitment of P-TEFb for stimulation of transcriptional elongation by the bromodomain protein Brd4. Mol Cell. 19, 535-545 (2005).
- Halley, F., et al. A bioluminogenic HDAC activity assay: validation and screening. J Biomol Screen. 16, 1227-1235 (2011).
- Mack, G. S. To selectivity and beyond. Nat Biotechnol. 28, 1259-1266 (2010).
- Daniels, D. L., Urh, M. Isolation of intracellular protein--DNA complexes using HaloCHIP, an antibody-free alternative to chromatin immunoprecipitation. Methods Mol Biol. 977, 111-124 (2013).
- Urh, M., Rosenberg, M. HaloTag a Platform Technology for Protein Analysis. Curr Chem Genomics. 6, 72-78 (2012).
Przedruki i uprawnienia
