Kluczowe etapy funkcjonowania białka, w szczególności zmiany konformacyjne szkieletu i reakcje transferu protonów, często odbywają się w skali od mikrosekund do milisekund. Te dynamiczne procesy można badać za pomocą spektroskopii w podczerwieni z transformacją Fouriera ze skanowaniem czasowo-rozdzielczym, w szczególności w przypadku białek, których funkcja jest wyzwalana przez światło.
Artykuł metodologiczny
Transfer protonów i dynamika konformacji białek w białkach światłoczułych za pomocą spektroskopii w podczerwieni z transformacją Fouriera ze skanowaniem czasowym i transformacją Fouriera
W tym artykule
Podsumowanie
Streszczenie
Monitorowanie dynamiki protonacji i zmian konformacji szkieletu białka podczas funkcji białka jest niezbędnym krokiem w kierunku zrozumienia jego mechanizmu. Protonacja i zmiany konformacyjne wpływają odpowiednio na wzorzec drgań łańcuchów bocznych aminokwasów i wiązania peptydowego, które można badać za pomocą spektroskopii różnicowej w podczerwieni (IR). W przypadku białek, których funkcja może być powtarzalnie i powtarzalnie wyzwalana przez światło, możliwe jest uzyskanie widm różnicowych w podczerwieni z rozdzielczością (sub)mikrosekundową w szerokim zakresie spektralnym przy użyciu techniki podczerwieni z transformacją Fouriera w trybie step-scan. Przy ~102-10 3 powtórzeniach fotoreakcji, minimalnej liczbie potrzebnej do wykonania skanu w rozsądnej rozdzielczości widmowej i szerokości pasma, poziom szumu w widmach różnicy absorpcji może być nawet ~10-4, wystarczający do śledzenia kinetyki zmian protonacji pojedynczego aminokwasu. Niższy poziom szumów można osiągnąć poprzez większą liczbę uśredniania danych i/lub przetwarzania matematycznego. Ilość białka wymagana do uzyskania optymalnych wyników wynosi od 5 do 100 μg, w zależności od zastosowanej techniki pobierania próbek. Jeśli chodzi o dodatkowe wymagania, białko musi być najpierw skoncentrowane w buforze o niskiej sile jonowej, a następnie wysuszone w celu utworzenia filmu. Film białkowy jest nawadniany przed eksperymentem, albo małymi kropelkami wody, albo w kontrolowanej wilgotności powietrza. Osiągnięty poziom nawodnienia (g wody / g białka) mierzy się na podstawie widma absorpcji IR. Aby zaprezentować tę technikę, zbadaliśmy fotocykl sterowanej światłem bakteriorodopsyny pompy protonowej w jej natywnym środowisku purpurowej błony oraz bramkowanej światłem kanałowej rodopsyny-2 rozpuszczonej w detergencie.
Wprowadzenie
Aby w pełni wyjaśnić, jak białka pełnią swoją funkcję, konieczne jest mierzenie ich w trakcie pracy, tj. wzdłuż ścieżki reakcji, która często obejmuje szereg produktów pośrednich i rozciąga się na kilka rzędów czasu. Kluczowe etapy funkcjonowania białek często zachodzą w zakresie od mikrosekund do milisekund1, w szczególności zmiany konformacyjne szkieletu i reakcje transferu protonów w białkach błonowych. Krystalografia rentgenowska, prawdopodobnie filar biologii strukturalnej, zapewnia statyczne (uśrednione w czasie) gęstości elektronów z dobrze dyfrakcyjnych kryształów białek, notorycznie trudnych do wyhodowania w przypadku białek błonowych2. Model atomowy 3D można zbudować na podstawie gęstości elektronów, choć rzadko uwzględnia lokalizację atomów wodoru. Niezwykły postęp w czasowo-rozdzielczej krystalografii rentgenowskiej, opierający się na dyfrakcji Laue'a3 lub femtosekundowych impulsach rentgenowskich4, dodaje wymiar czasowy do wysokiej informacji strukturalnej nieodłącznie związanej z krystalografią rentgenowską5. Pomijając jednak wyzwania techniczne i analityczne, sieć krystaliczna może zaburzać zmiany konformacyjne w szkielecie i zmieniać dynamikę białek, co jest nieuniknioną wadą metod opartych nakryształach białek5. W związku z tym dynamiczne aspekty białek są nadal najlepiej ujęte za pomocą metod optycznych, takich jak fotoliza błyskawiczna6,7, chociaż z ogólną wadą w postaci ograniczonego wglądu w strukturę.
Spektroskopia w podczerwieni z transformacją Fouriera (FT-IR) łączy rozdzielczość czasową spektroskopii optycznej z cenną wrażliwością na strukturę białka, ostatnią cechę wykorzystywaną w niezliczonych statycznych badaniach strukturalnych i funkcjonalnych białek błonowych8-11. W szczególności spektroskopia różnicowa FT-IR okazała się idealnym narzędziem do badania niewielkich zmian spektralnych, gdy białko przechodzi z jednego stanu metastabilnego do drugiego12-19.
Badania nad dynamiką białek, inne niż na poziomie pojedynczej cząsteczki20,21, wymagają procesu wyzwalającego do synchronizacji. Reakcja jest dogodnie inicjowana szybko i nieinwazyjnie, przy użyciu światła jako wyzwalacza, jak to ma miejsce w badaniu białek z cyklicznymi fotoreakcjami. Dużym wyzwaniem związanym z badaniami czasowo-rozdzielczymi jest osiągnięcie wystarczającej rozdzielczości czasowej przy zachowaniu dobrej rozdzielczości spektralnej i odpowiedniego stosunku sygnału do szumu. Istotne jest również pokrycie odpowiednio szerokiego zakresu spektralnego i czasowego. Spektroskopia FT-IR ze skanowaniem krokowym w czasie przoduje we wszystkich tych aspektach22, z opublikowanymi przykładami obejmującymi zakresy spektralne tak szerokie, jak 3,900-850 cm-1 i dynamikę rozciągającą się ~9 rzędów czasu, z rozdzielczością spektralną do 3,5 cm-1 i rozdzielczością czasową30 nsec 23-28.
Spektrometry IR z transformacją Fouriera wykazują zredukowany szum i lepszą dokładność fotometryczną w porównaniu z spektrometrami dyspersyjnymi29. Jednak w normalnym trybie zapisu szybkiego skanowania spektrometry FT-IR mają rozdzielczość czasową ograniczoną do ≥5-10 ms, co wynika z minimalnego czasu wymaganego przez ruchome lustro interferometru do zakończenia skanowania. Z kolei w technice skanowania krokowego zależność czasowa zdarzenia dynamicznego jest oddzielona od czasu trwania skanowania interferometru. Krótko mówiąc, mobilne lustro porusza się w dyskretnych krokach, a nie w sposób ciągły skanowania w celu zakończenia skanowania. Na każdym z tych etapów (ruchome) lustro jest utrzymywane nieruchomo i rejestrowany jest stan nieustalony. W związku z tym rozdzielczość czasowa jest ograniczona czasem narastania detektora rtęciowo-kadmowo-tellurkowego (MCT), który zwykle mieści się w zakresie 10-100 nsec. W praktyce duży zakres dynamiki interferogramu (zawierający intensywny sygnał w rozbłysku centralnym i małe sygnały w skrzydłach), wymaga do prawidłowej digitalizacji przetwornika analogowo-cyfrowego (ADC) o aż 16-24 bitach, co prowadzi do częstotliwości próbkowania nie wyższych niż ~200 kHz (5 μs)30. Nanosekundową rozdzielczość czasową można osiągnąć, mierząc tylko zmiany w interferogramie, dla których wystarczy 8-12 bitowy przetwornik ADC23,31-33. Aspekty techniczne30,34,35 oraz zastosowania36-38 skanowania krokowego z rozdzielczością czasową zostały szczegółowo omówione w innym miejscu.
Celem obecnego wkładu jest dostarczenie protokołu opisującego praktyczne aspekty czasowo-rozdzielczej spektroskopii FT-IR metodą skanowania krokowego na światłoczułych białkach błonowych. W tym miejscu przedstawiono wydajność tej techniki dla dwóch metod próbkowania: transmisji i całkowitego odbicia tłumionego (ATR). Zastosowanie ATR pozwala na pracę w obecności nadmiaru wody, co nie tylko zapewnia pełne warunki nawodnienia białka, ale także pozwala na dokładną kontrolę pH próbki i siły jonowej49,50. Eksperymenty step-scan zilustrowano na dwóch wybranych systemach: bakteriorodopsyny i rodopsyny kanałowej-2.
Bakteriorodopsyna pompy protonowej (bR) napędzana światłem jest przedmiotem licznych badań biofizycznych od ponad czterdziestu lat39,40, co czyni ją najlepiej poznanym białkiem błonowym do tej pory. Spośród licznych technik stosowanych do badania funkcjonalności bR, spektroskopia FT-IR wywarła prawdopodobnie jeden z największych wpływów. Mianowicie, spektroskopia FT-IR była kluczem do rozdzielenia grup zaangażowanych w transfer protonów przez błonę, jak opisano w innym miejscu13,41,51.
Rodopsyna kanałowa (ChR) jest pierwszym kanałem jonowym bramkowanym światłem znalezionym w przyrodzie42,43. Wzbudzenie świetlne ChR prowadzi do przejściowego otwarcia kanału jonowego. Jego odkrycie utorowało drogę do rozwoju optogenetyki, w której procesy molekularne są kontrolowane przez światło44,45. ChR należy, podobnie jak bR, do rodziny rodopsyn drobnoustrojów, ale w przeciwieństwie do bR znacznie mniej wiadomo o jego mechanizmie funkcjonalnym52. ChR2 łączy swoją funkcję kanału jonowego z aktywnością pompowania protonów46,47. Niedawno zastosowaliśmy spektroskopię FT-IR z funkcją skanowania krokowego w czasie, aby rozwiązać reakcje transferu protonów wewnątrz białka i dynamikę zmian konformacji szkieletu białka w ChR2 48.
Protokół
1. Ogólne aspekty przygotowania próbek i instrumentów
- Użyj komercyjnego spektrometru FT-IR wyposażonego w pomiary krokowe z rozdzielczością czasową. Aby uzyskać najlepsze wyniki, umieść spektrometr FT-IR na stole z odsprzęgnięciem drgań.
- Opróżnij komorę optyki do kilku mbar. Przedmuchnąć komorę próbki suchym powietrzem lub azotem.
- Umieść przezroczysty materiał IR nieprzezroczysty dla promieniowania widzialnego przed detektorem MCT spektrometru FT-IR. Ten środek ostrożności jest niezbędny, aby zapobiec artefaktom pochodzącym z wzbudzającego impulsu laserowego podczas eksperymentów ze skanowaniem krokowym. Uwaga: Używamy okna germanowego (Ge) o średnicy 25 mm. Jego wysoki współczynnik załamania światła powoduje niepożądane straty intensywności, których w dużej mierze uniknięto stosując filtr Ge z powłoką antyrefleksyjną.
- Schłodzić detektor MCT dewara ciekłym azotem. Uwaga: Stosowanie fotowoltaicznych detektorów MCT jest preferowane w stosunku do fotoprzewodzących ze względu na ich liniową odpowiedź, a tym samym lepszą dokładność fotometryczną i niezawodność bazową31,53.
- Próbkę użytą do eksperymentów należy wstępnie zagęścić do co najmniej 2 mg białka/ml w buforze o niskiej (<20 mM) sile jonowej, aby zapobiec tworzeniu się kryształów soli podczas suszenia zawiesiny białkowej w celu utworzenia jednorodnego filmu białkowego. W przypadku próbek, które osadzają się, należy je przemyć/zagęścić, stosując ultrawirowanie (np. białka błonowe w liposomach lub w łatach błony komórkowej). Używaj centrikonów o odpowiednim odcięciu dla białek, które nie osadzają się (np. białka błonowe rozpuszczone w detergentach).
- W celu uzyskania optymalnych rezultatów należy stosować: a) preparaty białkowe tak czyste i aktywne, jak to tylko możliwe; b) stosunek lipidów do białek ≤ 3 w masie dla białek w płatach błony komórkowej lub odtworzonych w liposomach; c) Stosunek detergentu do białka ≤ 1 w masie dla białek rozpuszczalnych w detergentach. Unikaj stosowania detergentów lub lipidów, których pasma drgań pokrywają się z pasmami białka (np. CHAPS).
2. Przygotowanie eksperymentów z całkowitym odbiciem przy użyciu bakteriorodopsyny
- Zamontuj akcesorium ATR w komorze na próbkę spektrometru FT-IR. Uwaga: Używamy ZnSe/diamentowego ATR z 5 aktywnymi odbiciami. Unikaj materiałów półprzewodnikowych, takich jak german lub krzem, jako wewnętrznego elementu odbijającego (IRE) akcesorium ATR, ponieważ na ich właściwości optyczne wpływa wzbudzający laser widzialny.
- Zmierz szerokie spektrum energii (ok. 4 000-800 cm-1) o rozdzielczości 4 cm-1 czystej powierzchni IRE za pomocą konwencjonalnej szybkiej spektroskopii FT-IR. Użyj tego widma jako widma odniesienia do obliczenia widm absorpcyjnych na późniejszym etapie.
- Pokryć powierzchnię IRE ATR 20 μl buforu użytego później do ponownego uwodnienia próbki (np. 4 M NaCl i 100 mM NaPi przy pH 7,4). Zmierz absorpcję podczerwieni przez bufor.
- Usuń bufor i spłucz powierzchnię IRE wodą. Unikaj dotykania powierzchni. Usuń resztki cieczy z powierzchni IRE za pomocą intensywnego przepływu powietrza.
- Rozprowadź ~3 μl bakteriorodopsyny (bR) w fioletowych błonach (~6 mg białka/ml w wodzie dejonizowanej) na powierzchni IRE (obszar ~0,2 cm2). Wysuszyć zawiesinę białkową pod delikatnym strumieniem suchego powietrza, aż do uzyskania filmu.
- Zmierzyć widmo absorpcyjne suchej warstwy (patrz rysunek 1).
- Delikatnie dodaj 20-40 μl buforu o wysokiej sile jonowej, aby ponownie nawodnić suchą warstwę (np. 4 M NaCl i 100 mM NaPi przy pH 7,4). Uwaga: Wysoka siła jonowa zapobiega nadmiernemu pęcznieniu błony membranowej, co pozwala na zatrzymanie jak największej ilości białka blisko badanej powierzchni (ryc. 2).
- Przykryj uchwyt ATR pokrywką, aby zapobiec parowaniu wody. Opcjonalnie należy umieścić osłonę podłączoną do kąpieli cyrkulacyjnej ustawionej na 25 °C w celu kontroli temperatury. W przypadku białek o długich cyklach fotocyklicznych (>sekund) kontrola temperatury może zwiększyć stabilność linii podstawowej.
- Zmierzyć widmo absorbancji. Oszacuj procent próbki pozostałej w pobliżu powierzchni po ponownym uwodnieniu filmu, odejmując widmo absorpcyjne buforu (rysunek 3).
- Potwierdź stabilizację pęcznienia filmu, rejestrując widma absorpcyjne w odstępach 5-20 minut po ponownym nawodnieniu (ryc. 4). Ten krok jest opcjonalny, ale zalecany.
3. Przeprowadzanie eksperymentów transmisyjnych na rodopsynie kanałowej solubionej w detergentach-2
- Dodać 10 μl ChR2 (~10 mg białka/ml) rozpuszczonego w 5 mM NaCl, 5 mM HEPES (pH 7,4) i decylomaltozydzie (DM) w środku okienka BaF2 o średnicy 20 mm. Rozprowadzić go za pomocą końcówki mikropipety do średnicy 6-8 mm (gęstość powierzchni białka ~ 200 μg/cm2).
- Uformuj film za pomocą delikatnego przepływu suchego powietrza. Aby uzyskać najlepsze wyniki, upewnij się, że folia jest jednorodna i ma średnicę mniej więcej odpowiadającą rozmiarowi wiązki podczerwieni przy największej aperturze.
- Uwodnić folię, dodając 3-5 μl mieszaniny glicerolu/wody rozprowadzonej w 3-5 kroplach wokół suchej folii i szczelnie zamknąć ją drugim okienkiem za pomocą płaskiego silikonowego O-ringu o grubości ≥1 mm. Uwaga: Stosunek mieszaniny glicerolu i wody kontroluje wilgotność względną między oknami54. W przypadku próbek higroskopijnych należy zastosować stosunek 3/7 lub 2/8 glicerolu do wody (w/w). Krople glicerolu/wody nigdy nie powinny mieć bezpośredniego kontaktu z filmem białkowym.
- Włóż okna warstwowe BaF2 do uchwytu. Zapobiegaj przedostawaniu się światła prostego do detektora, zakrywając okienko próbki nieprzezroczystym materiałem w podczerwieni, takim jak papier, z otworem dopasowanym do rozmiaru uwodnionej folii. Umieścić uchwyt w komorze na próbki.
- Regulować temperaturę uchwytu do 25 °C za pomocą płaszcza termostatycznego podłączonego do łaźni cyrkulacyjnej o kontrolowanej temperaturze.
- Zmierz widmo absorpcyjne. Upewnij się, że maksymalna absorpcja w obszarze amidu I (~1,700-1,620 cm-1) mieści się w zakresie 0,6-1,0.
- Oszacuj masę i stosunek molowy białka/detergentu/wody z widma absorpcji uwodnionego filmu (Rysunek 5) przy użyciu referencyjnych widm współczynnika ekstynkcji dla wody, DM i reprezentatywnych białek błonowych (Rysunek 6).
- Poczekaj, aż poziom nawodnienia ustabilizuje się przed wykonaniem eksperymentów skanowania krokowego (≥1 godzina).
4. Regulacja i synchronizacja ekscytującego lasera
Do eksperymentów na bR użyj drugiej harmonicznej emisji impulsowego lasera Nd:YAG (λ = 532 nm), aby uruchomić fotocykl. W przypadku eksperymentów z udziałem ChR2 należy użyć wzbudzenia λ = 450 nm, jak zapewnia optyczny oscylator parametryczny (OPO) napędzany trzecią harmoniczną (λ = 355 nm) lasera Nd:YAG. Upewnij się, że impuls laserowy jest wystarczająco krótki (~10 nsec), aby zminimalizować wtórne wzbudzenie foto. Uwaga: Energia impulsów laserowych powinna być jak najbardziej stała. W naszej konfiguracji intensywność lasera waha się o ≤10% wokół wartości średniej, co potwierdza pomiar odbicia lasera za pomocą fotodiody podłączonej do rejestratora stanów nieustalonych i całkującej odpowiedź (ilustracja 8).
- Sprzęgnij laser z próbką. Dostosuj gęstość energii lasera na próbce do 2-3 mJ/cm2 na impuls za pomocą miernika mocy.
- Do konfiguracji ATR użyj światłowodu umieszczonego na górze pokrywy ATR.
- W przypadku eksperymentów transmisyjnych należy użyć luster, aby sprowadzić laser do próbki i, jeśli to konieczne, soczewek do kolimacji lub dywersacji wiązki laserowej do średnicy nieco większej niż rozmiar warstwy próbki.
- Zsynchronizuj impuls laserowy z rejestracją danych przez spektrometr. Użyj impulsu TTL synchronizacji Q-switch elektroniki lasera Nd:YAG, aby wyzwolić spektrometr. Ustaw szybkość wzbudzenia lasera Nd:YAG odpowiednio na 10 Hz dla bR i 0.25 Hz dla ChR2.
- Użyj generatora opóźnienia impulsów (PDG), aby kontrolować szybkość wzbudzenia lasera, jeśli częstotliwość powtarzania lasera Nd:YAG nie jest łatwa do regulacji.
- Podłącz lampę synchronizacyjną lasera Nd:YAG do wejścia zewnętrznego wyzwalacza PDG. PDG zapewnia opóźniony impuls wyjściowy TTL o ~190 μs do wejścia synchronizacji przełącznika Q lasera Nd:YAG w celu wyzwolenia lasera. Bramkuje PDG, aby akceptować wyzwalacz zewnętrzny dopiero po upływie określonego czasu od ostatniego zaakceptowanego wyzwalacza (100 ms dla bR lub 4 s dla ChR2).
5. Przygotowania i ustawienia skanowania krokowego z rozdzielczością czasową
- Umieść dolnoprzepustowy filtr optyczny w ścieżce optycznej. Aby wykonać pomiary krokowe z rozdzielczością w czasie w zakresie spektralnym 1,800-850 cm-1, należy użyć filtra nieprzezroczystego powyżej 1,950 cm-1 i z dobrą transmisją (>50-80%) poniżej 1,800 cm-1 (rysunek 7).
- Zmień detektor z trybu sprzężonego AC na DC. Uwaga: Po tej regulacji sygnał interferogramu nie będzie już oscylował wokół zera, ale wokół wartości znanej jako poziom DC.
- Użyj największej możliwej apertury wiązki spektrometru, aby uzyskać wyższy strumień fotonów, a tym samym lepszy stosunek sygnału do szumu, ale w granicach liniowości detektora.
- Zmniejsz poziom prądu stałego interferogramu do zera i ponownie wyreguluj wzmocnienie elektroniczne, aby lepiej wykorzystać zakres dynamiki analogowego przetwornika cyfrowego (ADC). Osiągnij przesunięcie poziomu DC, stosując polaryzację napięcia do sygnału dostarczanego przez przedwzmacniacz. Uwaga: Ta opcja jest dostępna w nowoczesnych spektrometrach FT-IR. W przeciwnym razie można zamiast tego użyć domowego urządzenia zewnętrznego, umieszczonego między przedwzmacniaczem a ADC 38. Należy wtedy zadbać o to, aby elektronika takiego urządzenia była szybka i liniowa.
- Uruchom menu skanowania krokowego spektrometru FT-IR. Ustaw docelowe pasmo spektralne dla pomiaru step-scan na 1,975.3-0 cm-1. Dostosuj szerokość pasma spektralnego do ułamka liczby falowej lasera He-Ne (1/8th w tym przypadku), nieznacznie przekraczając granicę odcięcia filtra optycznego.
- Wyłącz wszelkie górnoprzepustowe filtry elektroniczne, aby zapobiec zniekształceniom kinetyki w późniejszym czasie. Dolnoprzepustowy filtr elektroniczny może być korzystny, gdy jego częstotliwość odcięcia jest w kolejności lub powyżej częstotliwości próbkowania przetwornika ADC (zmniejsza aliasing szumów).
- Ustaw rozdzielczość spektralną i fazową odpowiednio na 8 cm-1 i 64 cm-1. Ustaw tryb akwizycji interferogramu na jednostronny do przodu. Przy tych opcjach jeden interferogram wymaga około 500 punktów.
- Ustaw częstotliwość próbkowania przetwornika ADC na najwyższą dostępną w spektrometrze (np. 160 kHz lub 6,25 μs). Ustaw "spust eksperymentu" na "Zewnętrzny", tj. laser jest mistrzem. Ustaw liczbę punktów danych rozmieszczonych liniowo, które mają być rejestrowane: 7 000 dla bR (do 42 ms) i 20 000 dla ChR2 (do 125 ms). Uwaga: Dłuższe skale czasowe mogą być pokryte bez przepełniania pamięci ADC za pomocą quasi-logarytmicznie rozmieszczonych w czasie zewnętrznych impulsów TTL z generatora fal w celu wyzwolenia akwizycji danych 38 lub przy użyciu dwóch równoległych rejestratorów stanów przejściowych jako substytutów wewnętrznego ADC31,32.
- Zapisz około 100 punktów przed wyzwoleniem jako odniesienie dla ciemnego stanu próbki. Uwaga: W milisekundowej skali czasowej jakość danych jest często ograniczona przez wahania w mobilnym lustrze. W związku z tym nie oczekuje się, że zwiększenie punktów przed wyzwoleniem powyżej 100 znacząco poprawi jakość danych.
- Ustaw liczbę koaddycji, tj. liczbę średnich wyników fotoreakcji na pozycję lustra. W przypadku bR należy użyć 20 koaddycji (20 minut czasu pomiaru przy współczynniku wzbudzenia 10 Hz). Dla ChR2 użyj 2 koaddycji (70 min czasu pomiaru przy szybkości wzbudzenia 0,25 Hz)
- Powtórz eksperyment 10 razy dla bR i 35 razy na trzech różnych foliach próbek dla ChR2, aby ostatecznie uzyskać ~200 koaddycji na pozycję lustra.
6. Przetwarzanie danych
- Potwierdź stan próbki, porównując widmo różnicowe podczerwieni wywołane światłem uzyskane z pierwszego i ostatniego pomiaru. Rozważ odrzucenie wszelkich pomiarów, w których intensywność widma różnicowego spadnie poniżej 60% pierwszego pomiaru.
- Uśrednić zarejestrowane interferogramy.
- Za pomocą oprogramowania OPUS ze spektrometru FTIR wybierz interferogramy czasowo-rozdzielcze do uśrednienia i dodaj je do "Kalkulatora widma".
- Kliknij "=", aby uzyskać średnią z interferogramów.
Uwaga: Gdy faza interferogramu jest stała podczas pomiaru, jest ona obojętna dla średnich interferogramów lub widm jednokanałowych. Fazę stałą można potwierdzić poprzez obliczenie i porównanie widma fazowego dla pierwszego i ostatniego zarejestrowanego interferogramu.
- Wykonać transformację Fouriera uśrednionych interferogramów czasowo-rozdzielczych, aby uzyskać uśrednione czasowo rozdzielcze widma jednokanałowe.
- Korzystając z tego samego oprogramowania, co w kroku 6.2.1, wybierz uśredniony interferogram czasowo-rozdzielczy i kliknij ikonę "interferogram do widm". Użyj metody korekcji fazy Mertza, zerowego współczynnika wypełnienia wynoszącego 2 (dwa punkty cyfrowe na rozdzielczość instrumentalną) i funkcji apodyzacji (np. trójkąt, 3-wyrazy Blackmanna-Harrisa itp.).
- Kliknij dolny przycisk "konwertuj", aby przekształcić interferogram czasowo-rozdzielczy w widma czasowo-rozdzielcze.
- Eksportuj dane jednokanałowe z rozdzielczością czasową jako "tabelę punktów danych" lub plik "matlab" za pomocą ikony "zapisz jako" w oprogramowaniu OPUS. Kontynuuj przetwarzanie danych w zewnętrznym programie.
- Uśrednij widma jednokanałowe przed laserem i przekształć dane jednokanałowe rozdzielcze w czasie na widma różnic absorpcji w czasie.
- Oblicz wektor oczekiwanego odchylenia standardowego szumu w widmach różnicowych w funkcji liczby falowej (rysunek 12), używając odchylenia standardowego szumu, ε i średniej, S0(ν), ze 100 widm jednokanałowych poprzedzających laser: ε / S0(ν). Wartość ε jest szacowana poprzez odjęcie kolejnych widm jednokanałowych i obliczenie odchylenia standardowego skorygowanego o √2.
- Usuń obszary widmowe zbyt hałaśliwe, aby były użyteczne (np. powyżej 1,825 cm-1 i poniżej 850 cm-1).
- Przeprowadzić uśrednianie quasi-logarytmiczne (np. 20 widm/dekadę czasu). Wygląd danych ulegnie poprawie, a liczba widm zostanie zmniejszona z ~104 do ~102 bez utraty jakichkolwiek istotnych informacji (Rysunek 9).
- Zwiększ czterokrotnie gęstość widmową punktów (do 1 punktu/cm-1) za pomocą interpolacji Fouriera (po wypełnieniu zerem).
Uwaga: Wykonujemy kroki od 6.4.1 do 6.4.4 w domowym programie działającym w MATLAB.
- Przetwarzaj uzyskane widma czasowo-rozdzielcze (rysunek 10A) z dekompozycją wartości osobliwych, SVD, (rysunek 13). Odszumianie danych odbywa się poprzez rekonstrukcję danych przy użyciu ograniczonej liczby istotnych składników SVD (Rysunek 10B). Uwaga: SVD wykonujemy w MATLAB, korzystając z wbudowanej funkcji "svd".
Wyniki
Rysunek 1 przedstawia widmo absorpcyjne suchego filmu bR osadzonego na powierzchni diamentowego elementu wewnętrznego odbicia stosowanego w spektroskopii ATR. Wyraźnie widoczne są charakterystyczne pasma wibracji wiązania peptydowego (amid A, amid I i amid II). Przybliżoną grubość suchego filmu można oszacować na ~1 μm, biorąc pod uwagę ilość dodanego białka (18 μg) oraz powierzchnię ATR (~0.2 cm2), przy założeniu gęstości białka wynoszącej ~1.4 g/cm3,58 lipidów 1.0 g/cm3,59 oraz stosunku lipidów do białek 1/3 (w/w) w błonie purpurowej60.
Suchy film nawodniono nadmiarem 4 M NaCl, 100 mM NaPi o pH 7,4 (Rysunek 3). Poziom nawodnienia oraz efektywne stężenie białka w objętości badanej przez falę ewanescentną można wyznaczyć na podstawie współczynnika skalowania niezbędnego do cyfrowego usunięcia pasm absorpcyjnych wody. Optymalny współczynnik skalowania wyniósł 0,87, co oznacza, że w tym przypadku bufor zajmuje 87%, a próbka 13% objętości w pobliżu powierzchni. Biorąc pod uwagę gęstość białek i lipidów oraz stosunek lipidów do białek w purpurowych błonach (patrz wyżej), możemy wyznaczyć efektywne stężenie białka wynoszące 125 mg/ml w objętości badanej przez falę ewanescentną. Na podstawie poziomu nawodnienia można wywnioskować, że w tym konkretnym przypadku grubość filmu próbki zwiększyła się ok. 6-krotnie po rehydratacji, z ~1 do ~6 μm. Dla kąta padania 45°, typowego dla naszej i większości konfiguracji ATR, głębokość przenikania pola ewanescentnego (dp) dla nawodnionego filmu białkowego w zakresie 1 800-850 cm-1 waha się od 0,3 do 0,6 μm 61. Ponieważ pole ewanescentne jest niemal niewrażliwe na próbkę znajdującą się dwukrotnie powyżej dp 61, wnioskujemy, że ilość białka wykorzystanego w eksperymencie ATR mogłaby w zasadzie zostać zredukowana 5-krotnie bez żadnej istotnej utraty sygnału.
W przypadku zastosowania buforów o niższej sile jonowej film ulega większemu pęcznieniu, co prowadzi do zmniejszenia ilości białka w objętości badanej przez pole ewanescentne (Rycina 2). Dokładna zależność między pęcznieniem filmu a siłą jonową buforu zależy, między innymi, od rodzaju lipidów. Na przykład, podobne pęcznienie filmu, jakie uzyskano w tym przypadku dla bR w błonie purpurowej przy użyciu 4 M NaCl, zaobserwowano dla białka błonowego zrekonstytuowanego w polarnych lipidach E. coli przy zastosowaniu zaledwie 0,1 M NaCl 62. Jeśli próbka zajmuje mniej niż 5% badanej objętości, należy rozważyć powtórzenie etapu hydratacji z użyciem buforu o wyższej sile jonowej. Pęcznienie filmu po hydratacji wymaga pewnego czasu w celu osiągnięcia stabilizacji (Rycina 4). W przypadku bR w błonie purpurowej proces ten jest monoeksponencjalny, z stałą czasową wynoszącą 12 min: uzyskanie stabilnego rehydratowanego filmu zajmuje nie więcej niż 30-60 min
Rysunek 5 przedstawia widmo absorpcji IR uwodnionego filmu ChR2 uzyskane metodą transmisji. W tym przypadku uwodnienie osiągnięto poprzez wystawienie suchego filmu na atmosferę o kontrolowanej wilgotności, zapewnioną przez mieszaninę glicerolu i wody. Widmo można rozłożyć na wkłady pochodzące z wody, detergentu i białka. Ilość każdego z tych składników mogliśmy oszacować, korzystając z widm współczynnika ekstynkcji, przeskalowanych tak, aby pasowały do widma eksperymentalnego. W przypadku wody przyjęliśmy widmo współczynnika ekstynkcji z literatury63, a dla DM zmierzyliśmy go z roztworu o stężeniu 100 mg/ml (Rysunek 6). Wykorzystaliśmy również współczynniki ekstynkcji dla dwóch reprezentatywnych białek błonowych: mitochondrialnego przenośnika ADP/ATP64 oraz bR (Rysunek 7). Współczynnik skalowania wskazuje na powierzchniową gęstość masy wody i DM w filmie wynoszącą odpowiednio 260 μg/cm2 i 200 μg/cm2. Pozostała absorpcja (Rysunek 5, czerwona linia) pochodzi głównie z białka, którego gęstość powierzchniową oszacowano na 250 μg/cm2, wykorzystując współczynnik ekstynkcji pasma amidu II dla dwóch różnych białek błonowych (patrz Rysunek 6). Stosunek molowy białka/detergentu/wody obliczono na 1/60/2000, przyjmując odpowiednio masy cząsteczkowe 35 kDa, 480 Da i 18 Da.
Wykres 3D z typowego eksperymentu FT-IR w trybie step-scan z rozdzielczością czasową dla bR przedstawiono na Rysunku 10A; dane uzyskano metodą ATR podczas 200 min akwizycji. Widma można wyodrębnić dla konkretnych momentów czasowych, na przykład w czasie, gdy spodziewane jest osiągnięcie najwyższej populacji przez produkty pośrednie L, M i N fotocyklu bR (Rysunek 11). Ich cechy widmowe zostały szeroko opisane13,41,65 i nie będą tutaj dalej omawiane. Rysunek 12 przedstawia przebiegi czasowe dla wybranych liczb falowych. Mianowicie, wzrost kinetyki przy 1,762 cm-1 (t1/2 ~60 μsec) informuje o dynamice protonowania Asp85 z zasady Schiffa retinalu66, a jego zanik do zera wskazuje na deprotonowanie podczas powrotu do stanu podstawowego67. Ujemny wzrost kinetyki przy 1,740 cm-1 (t1/2 ~1 msec) informuje o deprotonowaniu łańcucha bocznego Asp96, będącego donorem protonów dla zasady Schiffa68. Zanik intensywności do zera informuje o jego reprotonowaniu z cytoplazmy67. Dynamikę zmian konformacyjnych białka można badać poprzez zmiany absorpcji w obszarze amidu I i amidu II, które osiągają maksymalną zmianę przy ~3 msec w temperaturze pokojowej67,69.
Zastosowanie SVD w problemach spektroskopowych było już wcześniej omawiane55,56. W skrócie, SVD rozkłada dane eksperymentalne, uporządkowane w macierzy A, jako: A = U S VT. Rozkład ten może zostać zmodyfikowany, aby uwzględnić zależność szumu od liczby fal oraz aby zniwelować fluktuacje/dryfty linii bazowej57. Kolumny macierzy U i V zawierają odpowiednio ortonormalne widma oraz wektory przebiegów czasowych dla każdego komponentu SVD. S jest macierzą diagonalną zawierającą tzw. wartości osobliwe. (Abstraktowe) komponenty spektro-temporalne w U i V pojawiają się w kolejności malejącej istotności dla opisu danych eksperymentalnych w sensie najmniejszych kwadratów, co jest określone przez przypisaną im wartość osobliwą. Rycina 13A przedstawia wartości osobliwe jako funkcję numeru komponentu oraz reprodukuje pierwsze osiem kolumn/komponentów macierzy U (widma abstraktowe, Rycina 13B) oraz V (przebiegi czasowe abstraktowe, Rycina 13C). Sygnał jest skoncentrowany w pierwszych pięciu komponentach (co jest oczekiwane dla fotocyklu zawierającego pięć stanów pośrednich), natomiast komponenty powyżej są w dużej mierze zdominowane przez szum losowy i inne źródła błędów. Dane eksperymentalne zrekonstruowano, używając jedynie pierwszych pięciu kolumn U i V oraz pierwszych pięciu kolumn i wierszy macierzy S. Dane zrekonstruowane za pomocą SVD stanowią najlepszą aproksymację metodą najmniejszych kwadratów danych eksperymentalnych do macierzy o randze pięciu. Zrekonstruowane dane wykazują poprawioną jakość (Rycina 10B). Mianowicie, znacznie zredukowano szum, a także niektóre ledwo zauważalne fluktuacje i dryfty linii bazowej (częste w spektroskopii z rozdzielczością czasową typu step-scan 25). Przetwarzanie SVD jest szczególnie korzystne dla poprawy jakości eksperymentalnych przebiegów czasowych w zakresie milisekundowym (czerwone linie na Rycynie 12).
Dane czasowo-rozdzielcze ze skanowania skokowego (step-scan) dla fotocyklu ChR2 uzyskano, stosując opisany powyżej protokół dla eksperymentów transmisyjnych (Rysunek 14A), co wiązało się z około 120 h skumulowanych pomiarów. Dane czasowo-rozdzielcze zebrane metodą step-scan obejmują zakres od 6,25 µsec do 125 msec. Fotocykl ChR2 wymaga około 60 s do pełnego powrotu do stanu wyjściowego. Końcowa część fotocyklu może zostać objęta analizą za pomocą szybkiego skanowania FT-IR (rapid-scan), a zestawy danych step-scan i rapid-scan mogą zostać połączone, jak przedstawiono w innym opracowaniu48. Zmiany spektralne ChR2 są około 10-krotnie mniejsze od tych uzyskanych dla bR, co utrudnia pomiary. W szczególności, przy tak niskich zmianach absorpcji, wyraźne stają się oscylacje linii bazowej w zakresie milisekundowym. Wynikają one z niewielkich drgań ruchomego lustra w skali milisekundowej25. Oscylacje te, wraz z częścią szumu, mogą zostać w dużej mierze usunięte za pomocą SVD, co znacząco poprawia wygląd danych (Rysunek 14B).

Rycina 1. Widmo absorpcyjne bR w błonie purpurowej wysuszonej na powierzchni diamentowej akcesorium ATR. Oznaczono pasma drgań wiązania peptydowego (amid I, II i A).

Rycina 2. Widmo absorpcyjne filmu bR po rehydratacji przy użyciu buforów o różnych mocnościach jonowych (rozcieńczenia 4 M NaCl, 100 mM Na)2HPO4/NaH2PO4 przy pH 7,4). Zauważenie zmniejszenia intensywności pasma amidowego II, t.j., zwiększone pęcznienie błony wraz ze spadkiem siły jonowej buforu. (Wstawka) Względna ilość białka w pobliżu powierzchni, określona na podstawie intensywności absorbancji przy 1,541 cm-1 (maksimum pasma amidowego II) po odjęciu wkładu absorpcyjnego buforu.

Rycina 3. Widmo absorpcyjne błony bR rehydratowanej w buforze objętościowym (siła jonowa 4,3 M) po odjęciu wkładu buforu. Współczynnik odejmowania, 0,87, wybrano w celu usunięcia silnej absorpcji wody w zakresie 3 700-3 000 cm-1 oraz uzyskania płaskiej linii bazowej w zakresie 2 700-1 800 cm-1.

Rysunek 4. Widmo absorpcyjne bR po rehydratacji w buforze o sile jonowej 4,3 M (dla przejrzystości odjęto absorpcję bufora, analogicznie jak na Rysunku 3). Wstawka przedstawia ewolucję pęcznienia filmu po rehydratacji, a następnie absorbancję amidu II białka przy 1 541 cm-1. Dopasowanie do funkcji pojedynczej wykładniczej wskazuje, że stała czasowa stabilizacji pęcznienia filmu wynosi 12 min.

Rysunek 5. Widmo absorpcyjne uwodnionej warstwy ChR2 zmierzone metodą transmisji (linia niebieska). Widmo współczynnika wymierania wody (przerywana linia pomarańczowa) i DM (przerywana linia cyjanowa) zostało przeskalowane i odjęte (linia czerwona).

Rysunek 6. Powtórzone widma współczynnika ekstynkcji masowej w temperaturze 25 °C dla wody w stanie ciekłym (http://www.ualberta.ca/~jbertie/JBDownload.HTM#Spectra) oraz dla uwodnionego filmu transportera ADP/ATP (AAC)64. Widmo współczynnika ekstynkcji masowej zmierzono w roztworze dla DM (100 mg/ml) oraz w uwodnionym filmie dla bR.

Rysunek 7. Transmitancja filtra optycznego zastosowanego w pomiarach FT-IR w trybie scan-scan z rozdzielczością czasową.

Rycina 8. Charakterystyka impulsów laserowych generowanych przez drugą harmoniczną (532 nm) lasera Nd:YAG. Histogram zmienności względnej energii 1 000 impulsów laserowych oraz dopasowanie do rozkładu gaussowskiego z odchyleniem standardowym 0,05.

Rycina 9. Indukowane światłem zmiany absorbancji bR przy trzech reprezentatywnych liczbach falowych w równych odstępach czasu (linie zielona, czarna i niebieska) oraz po uśrednianiu quasi-logarytmicznym do ~20 punktów na dekadę (linie czerwone). Zwróć uwagę na redukcję szumów po uśrednianiu logarytmicznym, co ujawnia oscylacje przebiegów czasowych w zakresie milisekund.
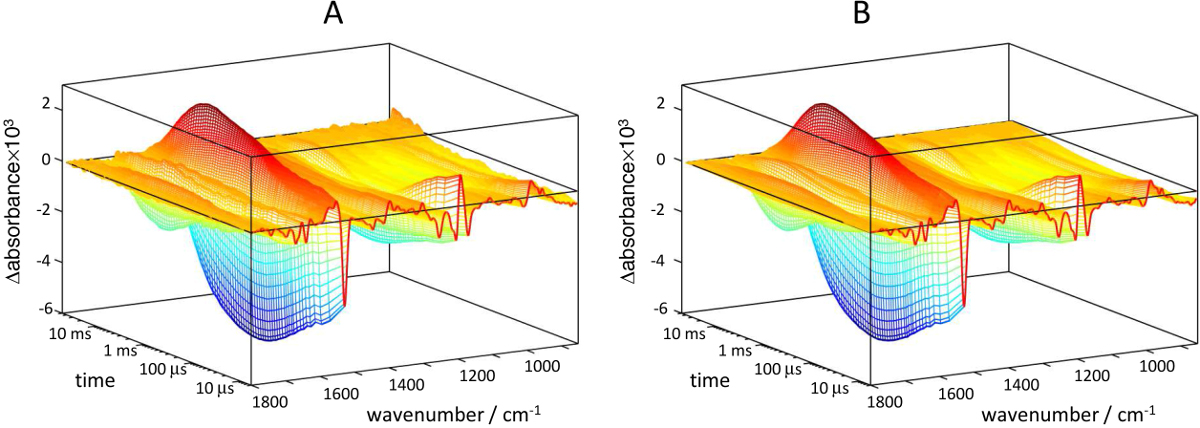
Rysunek 10. Trójwymiarowa reprezentacja zmian absorbancji indukowanych światłem dla bR, zarejestrowana metodą ATR przy pH 7,4 (4 M NaCl, 100 mM NaPi). A) Surowe dane. B) Dane zrekonstruowane przy użyciu pięciu komponentów SVD. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 11. Widma różnicowej absorpcji FT-IR fotocyklu bR w trzech wybranych momentach czasu, w których największe wzbogacenie wykazują produkty pośrednie L (12,5 µsec), M (300 µsec) i N (6 msec).
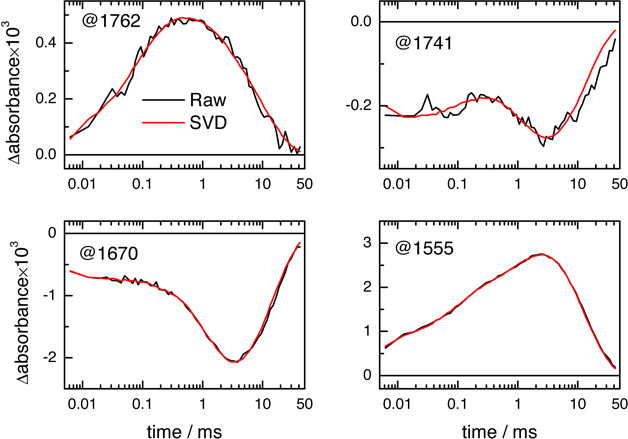
Rysunek 12. Transfer protonów i dynamika szkieletu białkowego w fotocyklu bR rozdzielone za pomocą czasowo rozdzielonej różnicowej spektroskopii FT-IR z przesuwaniem krokowym (step-scan). Zmiany absorbancji przy 1 762 cm-1 informują o dynamice protonowania/deprotonowania Asp85, a przy 1 741 cm-1 o dynamice deprotonowania/reprotonowania Asp96 (wliczając zmiany wiązań wodorowych przed 300 μsec). Przebiegi czasowe przy 1 670 i 1 555 cm-1 informują o zmianach w wibracjach amidowych I i II, które obie są wrażliwe na konformację szkieletu peptydowego. Czarne linie odpowiadają surowym danym, a czerwone danym przetworzonym metodą SVD. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
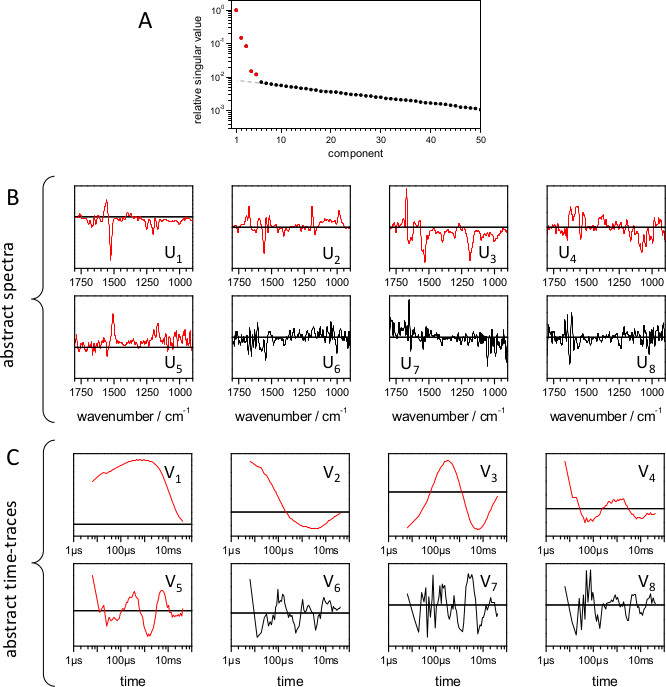
Rysunek 13. Dekompozycja według wartości osobliwych (SVD) eksperymentalnych danych FT-IR z rozdzielczością czasową, uzyskanych metodą skanowania skokowego dla fotocyklu bR (patrz Rysunek 10A). SVD wykonano po zważeniu danych eksperymentalnych, uwzględniając zależność odchylenia standardowego szumu od liczby falowej (Rysunek 15); połączone z 1Proszę podać tekst źródłowy, który należy przetłumaczyć. pochodną w celu zmniejszenia wagi statystycznej fluktuacji linii bazowej, zgodnie z wcześniejszym opisem57. A) Wykres względnych wartości osobliwych dla pierwszych 50 komponentów (czarne kółka). Pierwsze pięć komponentów przypisano do komponentów sygnału (czerwone kółka). Pozostałe komponenty wykazują spadek wykładniczy, zgodnie z oczekiwaniami dla komponentów szumu (patrz przerywana szara linia). B) Pierwsze osiem widm abstrakcyjnych (U1 do U8). C) Pierwsze osiem abstrakcyjnych przebiegów czasowych (V1 do V8). Widma abstrakcyjne i przebiegi czasowe przypisane do sygnału przedstawiono liniami czerwonymi, a pozostałe liniami czarnymi. Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.
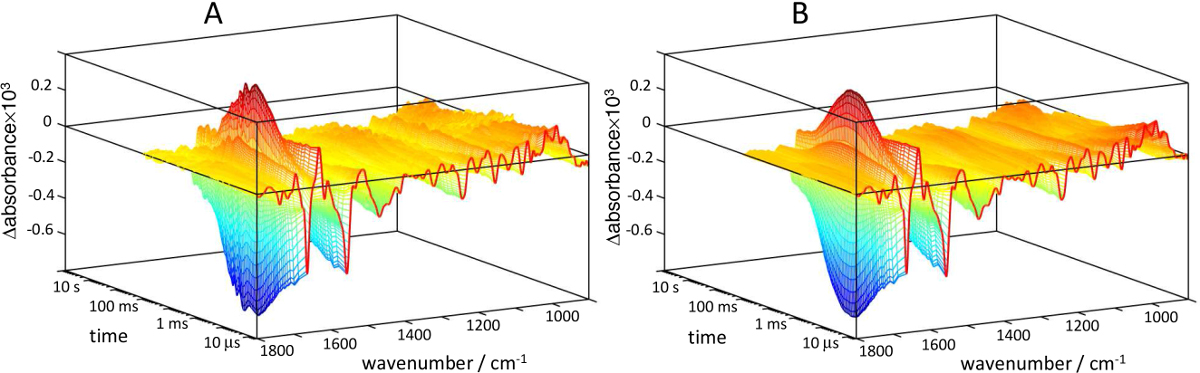
Rysunek 14. Trójwymiarowa reprezentacja zmian absorbancji IR indukowanych światłem dla ChR2, zarejestrowana metodą skanowania skokowego w trybie transmisji. Dane ze skanowania skokowego obejmują czas do 125 msec, co pokrywa jedynie część fotocyklu. A) Dane surowe. B) Dane zrekonstruowane przy użyciu pięciu komponentów SVD. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 15. Szacowany poziom szumu w FT-IR. Widmo różnicowe absorpcji przy rozdzielczości czasowej 6,25 μsec i rozdzielczości widmowej 8 cm-1 dla eksperymentu obejmującego 1 koaddycję/pozycję lustra (500 fotoreakcji) lub ~200 koaddycji/pozycję lustra (105 fotoreakcji). Wartości przedstawiono dla konfiguracji z tłumionym całkowitym odbiciem (ATR) oraz transmisji.
Dyskusja
Jednym z pierwszych aspektów, który należy wziąć pod uwagę podczas wykonywania czasowo-rozdzielczych eksperymentów FT-IR na białku jest przygotowanie próbki w odpowiedniej formie do spektroskopii w podczerwieni. Absorpcja podczerwieni przez substancje inne niż białko będące przedmiotem zainteresowania musi zostać zmniejszona, zwłaszcza przez wodę. Najczęstszym podejściem jest odparowanie wody w próbce w celu utworzenia filmu. Folię można ponownie nawodnić, dodając kilka kropel roztworu wodnego lub wystawiając folię na działanie atmosfery o kontrolowanej wilgotności. Pokazaliśmy, jak w obu przypadkach możliwe jest oszacowanie poziomu hydratacji uzyskanego za pomocą spektroskopii absorpcyjnej w podczerwieni (patrz rysunek 3 i rysunek 5). Chociaż uzyskane poziomy nawodnienia mogą wydawać się niskie w porównaniu z tymi w roztworze, w rzeczywistości są one zbliżone do tych znajdujących się w żywych komórkach70, co sprawia, że badanie uwodnionych warstw białek jest funkcjonalnie istotne. Oprócz wody ważne jest również, aby znać i kontrolować ilość lipidów lub detergentów w próbce. Oba powinny być utrzymywane na tyle niskim, aby mieć zmniejszony wpływ spektroskopowy na absorpcję podczerwieni, ale wystarczająco wysokim, aby zachować integralność i funkcjonalność białka będącego przedmiotem zainteresowania.
Czasowo-rozdzielcza spektroskopia skanowania krokowego ma bezpośrednie zastosowanie tylko do białek wykazujących odwracalne reakcje, które mogą być wywołane w sposób powtarzalny przez światło (ale zobacz postęp w sprzężeniu skanowania krokowego z szybką wymianą)71. W skanowaniu krokowym reakcja musi być powtarzalna przez co najmniej ~500x, co jest minimalną liczbą, aby ukończyć interferogram obejmujący obszar 1,800-850 cm-1 z rozdzielczością 8 cm-1 . W praktyce jednak zazwyczaj wymagane jest dodatkowe uśrednianie danych, aby obniżyć poziom hałasu. Dla 200 koaddycji/pozycji lustra (10,5 powtórzeń reakcji) widmo różnicy absorbancji o rozdzielczości 6,25 μs może wyświetlać odchylenie standardowe szumu między 2 x 10⁻⁵ i 2 x 10⁻⁴ dla ATR oraz między 5 x 10⁻⁶ a 3 x 10⁻⁵ dla eksperymentu transmisyjnego (rysunek 15). Dzięki wyższej przepustowości fotonów, transmisja pozwala na ~7 niższy poziom szumów niż ATR, co jest kluczowym aspektem dla pomyślnego badania próbek dających słabe zmiany absorpcyjne, takie jak ChR2. Z drugiej strony, ATR wymaga od 5 do 25 razy mniej próbki niż eksperyment transmisyjny.
Zastosowanie spektroskopii FT-IR z funkcją skanowania krokowego w czasie jest problematyczne w przypadku białek wykazujących powolne cykle fotocyklowe: rejestracja interferogramu za pomocą skanowania krokowego może stać się niepraktyczna przez długi czas. Przedstawiono pewne rozwiązania postępowania w takich przypadkach72,73, często oparte na użyciu wielu wymiennych próbek w celu przyspieszenia pomiarów kosztem zwiększonego zużycia białka i złożoności eksperymentalnej27,74. W niektórych przypadkach możliwe jest obejście tego problemu poprzez wzbudzenie próbki przed ścisłym zakończeniem fotocyklu. W przypadku ChR2, przy fotocyklu wymagającym po fotowzbudzeniu 60 sekund do 99% odzysku, odzysk po 4 sekundach wynosi już 80%48. Przy wydajności wzbudzenia wynoszącej 10% na impuls laserowy, 98% cząsteczek ChR2 znajduje się w stanie ciemnym 4 sekundy po fotowzbudzeniu, co umożliwia przeprowadzanie eksperymentów z częstotliwością powtarzania lasera do 0,25 Hz.
Przetwarzanie danych jest ostatnim aspektem technicznym wymaganym do osiągnięcia najlepszych możliwych wyników. Uśrednianie logarytmiczne zmniejsza szum i, co równie ważne, zmniejsza rozmiar danych bez zniekształceń, co jest cechą niezbędną do późniejszej analizy danych przy użyciu dekompozycji wartości pojedynczych lub dopasowania globalnego. Uśrednianie logarytmiczne nie jest jednak zbyt skuteczne w uśrednianiu fluktuacji śladów czasowych spowodowanych oscylacjami w ruchomym zwierciadle i innymi źródłami szumu 1/f podczas pomiarów (rysunek 9). Te wahania linii bazowej mogą przekroczyć szum w zakresie milisekund i pogorszyć jakość danych. Dekompozycja wartości osobliwych wykorzystuje nadmiarowość danych w celu zmniejszenia szumu, a przy pewnych modyfikacjach57 może również zredukować wahania linii bazowej.
Wreszcie, trudniejsza i najbardziej czasochłonna część eksperymentu FT-IR ze skanowaniem krokowym odpowiada przypisaniu pasm oraz spektralnej i kinetycznej interpretacji danych. W przypadku bakteriorodopsyny wiele pasm pojawiających się w widmach różnicowych IR zostało przypisanych lub zinterpretowanych dzięki skumulowanej pracy wielu grup badawczych na przestrzeni dziesięcioleci. W przypadku znacznie mniej zbadanego białka, takiego jak rodopsyna kanałowa-2, przedstawionym powyżej eksperymentom w podczerwieni z rozdzielczością czasową muszą towarzyszyć równoległe eksperymenty na mutantach skierowanych na miejsce i połączone z informacjami z technik komplementarnych, aby osiągnąć interpretację mechanistyczną48.
Oświadczenia
Autorzy deklarują brak konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez granty z Deutsche Forschungsgemeinschaft dla J.H. (FOR-1279, SFB-1078, B3). Dziękujemy Tomowi Reslerowi i Björk Süss za pomocne komentarze.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Spektrometr FT-IR | Bruker | Vertex 80v | Wyposażony w detektor fotowoltaiczny MCT, zewnętrzny globalny i pompę bezolejową. Oprogramowanie układowe 2.3. |
| Okna BaF2 | korth Kristalle | ||
| Diamond ATR akcesorium | Smiths Detekcja | Dziewięciorefleksyjny DuraDisk | |
| Łaźnia termostatyczna | Julabo | F25 | |
| Stół z odsprzęgnięciem drgań | OPTA | ||
| Impulsowy laser Nd:YAG z generatorem drugiej harmonicznej | Elektrooptyka Continuum | Minilite | |
| Optyczny oscylator parametryczny (OPO) | OPTA | BBO-355-VIS/IR S/N 1009 | |
| Cyfrowy generator opóźnień/impulsów | Stanford Research Systems | DG535 | |
| Impulsowy laser Nd:YAG z generatorem trzeciej harmonicznej | Spectra-Physics | Quanta-Ray | |
| Różne lustra i soczewki optyczne | ThorLabs | ||
| Vertex 80v | |||
| Wstępne przetwarzanie danych |
Bibliografia
- Henzler-Wildman, K., Kern, D. Dynamic personalities of proteins. Nature. 450, 964-972 (2007).
- Lacapère, J. J., Pebay-Peyroula, E., Neumann, J. M., Etchebest, C. Determining membrane protein structures: still a challenge. Trends Biochem. Sci. 32, 259-270 (2007).
- Wöhri, A. B., et al. Light-induced structural changes in a photosynthetic reaction center caught by Laue diffraction. Science. 328, 630-633 (2010).
- Aquila, A., et al. Time-resolved protein nanocrystallography using an X-ray free-electron laser. Opt. Express. 20, 2706-2716 (2012).
- Neutze, R., Moffat, K. Time-resolved structural studies at synchrotrons and X-ray free electron lasers: opportunities and challenges. Curr. Opin. Struc. Biol. 22, 651-659 (2012).
- Austin, R. H., et al. Dynamics of carbon monoxide binding by heme proteins. Science. 181, 541-543 (1973).
- Alberding, N., et al. Tunneling in ligand binding to heme proteins. Science. 192, 1002-1004 (1976).
- Goormaghtigh, E., Cabiaux, V., Ruysschaert, J. M. Determination of soluble and membrane protein structure by Fourier transform infrared spectroscopy. III. Secondary structures. Subcell. Biochem. 23, 405-450 (1994).
- Tamm, L. K., Tatulian, S. A. Infrared spectroscopy of proteins and peptides in lipid bilayers. Q. Rev. Biophys. 30, 365-429 (1997).
- Arrondo, J. L., Goñi, F. M. Structure and dynamics of membrane proteins as studied by infrared spectroscopy. Prog. Biophys. Mol. Biol. 72, 367-405 (1999).
- Barth, A., Zscherp, C. What vibrations tell us about proteins. Q. Rev. Biophys. 35, 369-430 (2002).
- Gerwert, K. Molecular reaction-mechanisms of proteins as monitored by time-resolved FTIR Spectroscopy. Curr. Opin. Struct. Biol. 3, 769-773 (1993).
- Maeda, A. Application of FTIR spectroscopy to the structural study on the function of bacteriorhodopsin. Isr. J. Chem. 35, 387-400 (1995).
- Kandori, H. Role of internal water molecules in bacteriorhodopsin. Biochim. Biophys. Acta. 1460, 177-191 (2000).
- Zscherp, C., Barth, A. Reaction-induced infrared difference spectroscopy for the study of protein reaction mechanisms. Biochemistry. 40, 1875-1883 (2001).
- Nyquist, R. M., Heitbrink, D., Bolwien, C., Gennis, R. B., Heberle, J. Direct observation of protonation reactions during the catalytic cycle of cytochrome c oxidase. Proc. Natl. Acad. Sci. U. S. A. 100, 8715-8720 (2003).
- Rich, P. R., Iwaki, M. Methods to probe protein transitions with ATR infrared spectroscopy. Mol. Biosyst. 3, 398-407 (2007).
- Noguchi, T. Light-induced FTIR difference spectroscopy as a powerful tool toward understanding the molecular mechanism of photosynthetic oxygen evolution. Photosynth. Res. 91, 59-69 (2007).
- Granell, M., Leon, X., Leblanc, G., Padros, E., Lorenz-Fonfria, V. A. Structural insights into the activation mechanism of melibiose permease by sodium binding. Proc. Natl. Acad. Sci. U. S. A. 107, 22078-22083 (2010).
- Schuler, B., Eaton, W. A. Protein folding studied by single-molecule FRET. Curr. Opin. Struct. Biol. 18, 16-26 (2008).
- Kapanidis, A. N., Strick, T. Biology, one molecule at a time. Trends Biochem. Sci. 34, 234-243 (2009).
- Uhmann, W., Becker, A., Taran, C., Siebert, F. Time-resolved FT-IR absorption spectroscopy using a step-scan interferometer. Appl. Spectrosc. 45, 390-397 (1991).
- Dioumaev, A. K., Braiman, M. S. Two bathointermediates of the bacteriorhodopsin photocycle, distringuished by nanosecond time-resolved FTIR spectroscopy at room temperature. J. Phys. Chem. B. 101, 1655-1662 (1997).
- Rammelsberg, R., Huhn, G., Lübben, M., Gerwert, K. Bacteriorhodopsin's intramolecular proton-release pathway consists of a hydrogen-bonded network. Biochemistry. 37, 5001-5009 (1998).
- Rödig, C., Siebert, F. Errors and artifacts in time-resolved step-scan FT-IR spectroscopy. Appl. Spectrosc. 53, 893-901 (1999).
- Brudler, R., Rammelsberg, R., Woo, T. T., Getzoff, E. D., Gerwert, K. Structure of the I1 early intermediate of photoactive yellow protein by FTIR spectroscopy. Nat. Struct. Biol. 8, 265-270 (2001).
- Remy, A., Gerwert, K. Coupling of light-induced electron transfer to proton uptake in photosynthesis. Nat. Struct. Biol. 10, 637-644 (2003).
- Lórenz-Fonfría, V. A., Furutani, Y., Kandori, H. Active internal waters in the bacteriorhodopsin photocycle. A comparative study of the L and M intermediates at room and cryogenic temperatures by infrared spectroscopy. Biochemistry. 47, 4071-4081 (2008).
- Griffiths, P. R., de Haseth, J. A. Fourier Transform Infrared Spectrometry. , John Wiley and Sons. (1986).
- Smith, G. D., Palmer, R. A. Handbook of vibrational spectroscopy. , John Wiley & Sons Ltd. (2002).
- Rammelsberg, R., Heßling, B., Chorongiewski, H., Gerwert, K. Molecular reaction mechanisms of protein monitored by nanosecond step-scan FT-IR difference spectroscopy. Appl. Spectrosc. 51, 558-562 (1997).
- Rödig, C., Chizhov, I., Weidlich, O., Siebert, F. Time-resolved step-scan Fourier transform infrared spectroscopy reveals differences between early and late M intermediates of bacteriorhodopsin. Biophys. J. 76, 2687-2701 (1999).
- Bromberg, S. E., et al. The mechanism of a C-H bond activation reaction in room-temperature alkane solution. Science. 278, 260-263 (1997).
- Rödig, C., Siebert, F. Handbook of vibrational spectroscopy. , John Wiley & Sons. (2002).
- Braiman, M. S., Xiao, Y. Vibrational Spectroscopy of Biological and Polymeric Materials. , CRC Press. 353-418 (2006).
- Gerwert, K. Handbook of vibrational spectroscopy. , John Wiley & Sons Ltd. (2002).
- Koutsoupakis, C., Pinakoulaki, E., Stavrakis, S., Daskalakis, V., Varotsis, C. Time-resolved step-scan Fourier transform infrared investigation of heme-copper oxidases: implications for O2 input and H2O/H+ output channels. Biochim. Biophys. Acta. 1655, 347-352 (2004).
- Radu, I., Schleeger, M., Bolwien, C., Heberle, J. Time-resolved methods in biophysics. 10. Time-resolved FT-IR difference spectroscopy and the application to membrane proteins. Photochem. Photobiol. Sci. 8, 1517-1528 (2009).
- Haupts, U., Tittor, J., Oesterhelt, D. Closing in on bacteriorhodopsin: progress in understanding the molecule. Annu. Rev. Biophys. Biomol. Struct. 28, 367-399 (1999).
- Lanyi, J. K. Bacteriorhodopsin. Annu. Rev. Physiol. 66, 665-688 (2004).
- Heberle, J., Fitter, J., Sass, H. J., Büldt, G. Bacteriorhodopsin: the functional details of a molecular machine are being resolved. Biophys. Chem. 85, 229-248 (2000).
- Nagel, G., et al. Channelrhodopsin-1: a light-gated proton channel in green algae. Science. 296, 2395-2398 (2002).
- Nagel, G., et al. Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proc. Natl. Acad. Sci U. S. A. 100, 13940-13945 (2003).
- Zhang, F., et al. The microbial opsin family of optogenetic tools. Cell. 147, 1446-1457 (2011).
- Fenno, L., Yizhar, O., Deisseroth, K. The development and application of optogenetics. Annu. Rev. Neurosci. 34, 389-412 (2011).
- Feldbauer, K., et al. Channelrhodopsin-2 is a leaky proton pump. Proc. Natl. Acad. Sci. U. S. A. 106, 12317-12322 (2009).
- Nack, M., et al. Kinetics of proton release and uptake by channelrhodopsin-2. FEBS Lett. 586, 1344-1348 (2012).
- Lórenz-Fonfría, V. A., et al. Transient protonation changes in channelrhodopsin-2 and their relevance to channel gating. Proc. Natl. Acad. Sci. U. S. A. 110, (2013).
- Heberle, J., Zscherp, C. ATR/FT-IR difference spectroscopy of biological matter with microsecond time resolution. Appl. Spectrosc. 50, 588-596 (1996).
- Nyquist, R. M., Ataka, K., Heberle, J. The molecular mechanism of membrane proteins probed by evanescent infrared waves. Chembiochem. 5, 431-436 (2004).
- Gerwert, K., Freier, E., Wolf, S. The role of protein-bound water molecules in microbial rhodopsins. Biochim. Biophys. Acta. 1837, 606-613 (2014).
- Lórenz-Fonfría, V. A., Heberle, J. Channelrhodopsin unchained: Structure and mechanism of a light-gated cation channel. Biochim. Biophys. Acta. 1837, 626-642 (2014).
- Carter, R. O., Lindsay, N. E., Beduhn, D. A solution to base-line uncertainty due to MCT detector nonlinearity in FT-IR. Appl. Spectrosc. 44, 1147-1151 (1990).
- Noguchi, T., Sugiura, M. Flash-induced FTIR difference spectra of the water oxidizing complex in moderately hydrated photosystem II core films: effect of hydration extent on S-state transitions. Biochemistry. 41, 2322-2330 (2002).
- Henry, E. R., Hofrichter, J. Singular value decomposition: application to analysis of experimental data. Methods Enzymol. 210, 129-192 (1992).
- Hendler, R. W., Shrager, R. I. Deconvolutions based on singular value decomposition and the pseudoinverse: a guide for beginners. J. Biochem. Biophys. Methods. 28, 1-33 (1994).
- Lórenz-Fonfría, V. A., Kandori, H. Spectroscopic and kinetic evidence on how bacteriorhodopsin accomplishes vectorial proton transport under functional conditions. J. Am. Chem. Soc. 131, 5891-5901 (2009).
- Fischer, H., Polikarpov, I., Craievich, A. F. Average protein density is a molecular-weight-dependent function. Protein Sci. 13, 2825-2828 (2004).
- Nagle, J. F., Tristram-Nagle, S. Structure of lipid bilayers. Biochim. Biophys. Acta. 1469, 159-195 (2000).
- Lee, A. G. Lipid-protein interactions in biological membranes: a structural perspective. Biochim. Biophys. Acta. 1612, 1-40 (2003).
- Goormaghtigh, E., Raussens, V., Ruysschaert, J. M. Attenuated total reflection infrared spectroscopy of proteins and lipids in biological membranes. Biochim. Biophys. Acta. 1422, 105-185 (1999).
- Lórenz-Fonfría, V. A., León, X., Padrós, E. Studying substrate binding to reconstituted secondary transporters by attenuated total reflection infrared difference spectroscopy. Methods Mol. Biol. 914, 107-126 (2012).
- Bertie, J. E., Lan, Z. D. Infrared intensities of liquids XX: the intensity of the OH stretching band of liquid water revisited, and the best current values of the optical constants of H2O(l) at 25 oC between 15,000 and 1 cm-1. Appl. Spectrosc. 50, 1047-1057 (1996).
- Lórenz, V. A., et al. The secondary structure of the inhibited mitochondrial ADP/ATP transporter from yeast analyzed by FTIR spectroscopy. Biochemistry. 40, 8821-8833 (2001).
- Heßling, B., Souvignier, G., Gerwert, K. A model-independent approach to assigning bacteriorhodopsin's intramolecular reactions to photocycle intermediates. Biophys. J. 65, 1929-1941 (1993).
- Braiman, M. S., et al. Vibrational spectroscopy of bacteriorhodopsin mutants: light-driven proton transport involves protonation changes of aspartic acid residues 85, 96, and 212. 27, 8516-8520 (1988).
- Gerwert, K., Souvignier, G., Hess, B. Simultaneous monitoring of light-induced changes in protein side-group protonation, chromophore isomerization, and backbone motion of bacteriorhodopsin by time-resolved Fourier-transform infrared spectroscopy. Proc. Natl. Acad. Sci. U. S. A. 87, 9774-9778 (1990).
- Gerwert, K., Hess, B., Soppa, J., Oesterhelt, D. Role of aspartate-96 in proton translocation by bacteriorhodopsin. Proc. Natl. Acad. Sci. U. S. A. 86, 4943-4947 (1989).
- Lórenz-Fonfría, V. A., Kandori, H., Padrós, E. Probing specific molecular processes and intermediates by time-resolved Fourier transform infrared spectroscopy: application to the bacteriorhodopsin photocycle. J. Phys. Chem. B. 115, 7972-7985 (2011).
- Ellis, R. J., Minton, A. P. Cell biology: join the crowd. Nature. 425, 27-28 (2003).
- Furutani, Y., Kimura, T., Okamoto, K. Development of a rapid Buffer-exchange system for time-resolved ATR-FTIR spectroscopy with the step-scan mode. Biophysics. 9, 123-129 (2013).
- Rammelsberg, R., Boulas, S., Chorongiewski, H., Gerwert, K. Set-up for time-resolved step-scan FTIR spectroscopy of noncyclic reactions. Vib. Spectrosc. 19, 143-149 (1999).
- Rödig, C., Siebert, F. Monitoring fast reactions of slow cycling systems with time-resolved FTIR spectroscopy. Vib. Spectrosc. 19, 271-276 (1999).
- Rödig, C., Siebert, F. Distortion of the L→M transition in the photocycle of the bacteriorhodopsin mutant D96N: a time-resolved step-scan FTIR investigation. FEBS Lett. 445, 14-18 (1999).
Przedruki i uprawnienia
