Przezczaszkowa stymulacja magnetyczna (TMS) okazała się użytecznym narzędziem w badaniu roli artykulacyjnej kory ruchowej w percepcji mowy. Ten artykuł opisuje, jak rejestrować motoryczne potencjały wywołane (MEP) z mięśni warg i jak zakłócić motoryczną reprezentację warg za pomocą powtarzających się TMS.
Artykuł metodologiczny
Stymulacja kory ruchowej wargi za pomocą przezczaszkowej stymulacji magnetycznej
W tym artykule
Podsumowanie
Streszczenie
Przezczaszkowa stymulacja magnetyczna (TMS) okazała się użytecznym narzędziem w badaniu roli artykulacyjnej kory ruchowej w percepcji mowy. Naukowcy wykorzystali pojedynczy impuls i powtarzający się TMS do stymulacji reprezentacji warg w korze ruchowej. Pobudliwość reprezentacji motorycznej warg można zbadać, stosując pojedyncze impulsy TMS w tym obszarze kory mózgowej i rejestrując potencjały wywołane motoryczne indukowane przez TMS (MEP) za pomocą elektrod przymocowanych do mięśni warg (elektromiografia; Badanie elektromagnetyczne). Większe MEP odzwierciedlają zwiększoną pobudliwość kory mózgowej. Badania wykazały, że pobudliwość wzrasta zarówno podczas słuchania mowy, jak i podczas oglądania ruchów związanych z mową. TMS może być również używany do zakłócania reprezentacji motorycznej warg. Wykazano, że 15-minutowy ciąg podprogowej powtarzalnej stymulacji o niskiej częstotliwości tłumi pobudliwość motoryczną na kolejne 15-20 minut. To wywołane przez TMS zakłócenie reprezentacji warg motorycznych upośledza późniejszą wydajność w wymagających zadaniach percepcji mowy i moduluje reakcje kory słuchowej na dźwięki mowy. Odkrycia te są zgodne z sugestią, że kora ruchowa przyczynia się do percepcji mowy. W tym artykule opisano, jak zlokalizować reprezentację warg w korze ruchowej i jak zdefiniować odpowiednią intensywność stymulacji do przeprowadzania zarówno jednoimpulsowych, jak i powtarzalnych eksperymentów TMS.
Wprowadzenie
Percepcja mowy to wymagająca umiejętność, która wymaga kodowania złożonych i bardzo zmiennych przychodzących sygnałów słuchowych. Chociaż nie budzi wątpliwości, że kora słuchowa odgrywa kluczową rolę w przetwarzaniu mowy, to, czy obszary motoryczne, które kontrolują ruchy artykulatorów (np. ust) podczas produkcji mowy, również przyczyniają się do percepcji mowy, pozostaje tematem aktywnych badań i debaty naukowej1-5. Pomysł, że reprezentacje motoryczne są zaangażowane w percepcję mowy, nie jest nowy. Zgodnie z motoryczną teorią percepcji mowyLibermana6,7 słuchacz postrzega mowę, symulując "zamierzone gesty artykulacyjne" mówcy. TMS okazał się potężnym narzędziem w badaniu przypuszczalnej roli artykulacyjnej kory ruchowej podczas percepcji mowy (przegląd, patrz 8). W artykule skupiono się na stymulacji reprezentacji motorycznej warg za pomocą technik jednoimpulsowych i powtarzalnych TMS.
Jednoimpulsowy TMS dostarczył bardzo skutecznego sposobu badania związku między korą ruchową a przetwarzaniem mowy8-10. Pojedyncze impulsy TMS przyłożone do pierwszorzędowej kory ruchowej (M1) wywołują motoryczne potencjały wywołane (tj. MEP) w przeciwległym mięśniu docelowym, które można zarejestrować za pomocą elektromiografii (EMG). Posłowie do PE nagrani z mięśni ręki (pierwszy międzykostny grzbietowy; BIZ) osiągają szczyt około 24 ms po pulsie, podczas gdy MEP rejestrują z mięśni wargi (orbicularis oris; OO) szczyt około 15 ms po impulsie (patrz rysunek 1). Odzwierciedla to różnice w odległości od kory ruchowej do ust i mięśni dłoni; Droga korowo-opuszkowa do ust jest krótsza niż droga korowo-rdzeniowa do rąk. Intensywność impulsu wymaganego do wywołania MEP różni się znacznie u poszczególnych uczestników, najprawdopodobniej odzwierciedlając różnice neuroanatomiczne i różnice w grubości czaszki11. Amplituda MEP zależy od stanu funkcjonalnego układu ruchowego, przy czym impulsy o stałej intensywności wywołują większe MEP, gdy mięsień docelowy jest skurczony, w porównaniu z momentem, gdy mięsień jest rozluźniony. Pomiary MEP zapewniają dokładny sposób lokalizacji reprezentacji korowych różnych mięśni u każdego uczestnika, a także normalizacji intensywności TMS między badanych. Metoda ta zapewnia również bezpośrednią miarę (tj. amplitudę MEP) pobudliwości motorycznej w stosunku do niezależnej zmiennej będącej przedmiotem zainteresowania. Na przykład badania TMS z pojedynczym impulsem wykazały, że stymulacja reprezentacji ruchu warg wywołuje większe MEP (tj. zwiększoną pobudliwość) podczas słuchania mowy i oglądania ruchów warg związanych z mową10,12,13. Połączone badanie PET i jednoimpulsowe TMS wykazało, że pobudliwość układu motorycznego mowy podczas słuchowej percepcji mowy jest częściowo modulowana przez aktywność w tylnym lewym dolnym zakręcie czołowym14.
Podczas gdy jednoimpulsowy TMS może wykazywać zmiany w pobudliwości układu motorycznego podczas percepcji mowy, nie wskazuje, czy kora ruchowa przyczynia się do przetwarzania mowy. Powtarzający się TMS (rTMS) może być wykorzystany do wywołania tymczasowego zakłócenia (tj. "wirtualnej zmiany") w korze ruchowej15. To podejście "wirtualnej zmiany" umożliwia badanie percepcji mowy podczas kontrolowanych, krótkotrwałych zakłóceń w centralnym obszarze układu motorycznego. "Wirtualne zmiany" spowodowane przez TMS różnią się od rzeczywistych zmian u pacjentów, które często obejmują rozległe obszary kory mózgowej, prowadząc z czasem do funkcjonalnej reorganizacji mózgu. Badania z udziałem pacjentów zazwyczaj porównują zachowanie pacjentów z grupą kontrolną i rzadko dostarczają wiedzy na temat wydajności przed udarem/zmianą. Korzystając z rTMS, możliwe jest zbadanie zdolności uczestnika do wykonywania zadań związanych z percepcją mowy z zakłóceniami motorycznymi i bez nich, a tym samym zbadanie, czy zakłócenia te przyczyniają się do wydajności.
Podprogowy rTMS o niskiej częstotliwości może być użyty do tymczasowego zakłócenia reprezentacji ruchu warg motorycznych i został użyty do zbadania roli artykulacyjnej kory ruchowej w percepcji mowy16-18. W tych eksperymentach zastosowano jednofazowe sekwencje impulsów, ponieważ wykazano, że jednofazowy rTMS o niskiej częstotliwości jest bardziej skuteczny w zmniejszaniu pobudliwości kory mózgowej w porównaniu z dwufazowym rTMS19. Wielkość MEP zarejestrowanych z ust zmniejsza się po 15-minutowym ciągu podprogowych impulsów monofazowych TMS stosowanych z częstotliwością poniżej 1 Hz, tj. pobudliwość motoryczna jest stłumiona18. To zakłócenie wywołane przez rTMS upośledza również zdolność słuchaczy do kategorycznego postrzegania kontinugi akustycznej między dwoma dźwiękami mowy, które różnią się w miejscu artykulacji (np. "ba" vs. "da" i "pa" vs. "ta"). Upośledzona wydajność po zakłóceniu kory ruchowej warg sugeruje, że układ ruchowy przyczynia się do percepcji mowy. Zaburzenie reprezentacji motorycznej ręki nie ma wpływu na kategoryczną percepcję dźwięków mowy. Wyniki te są zgodne z wcześniejszymi odkryciami pokazującymi, że rTMS o niskiej częstotliwości zastosowany do kory przedruchowej upośledza wydajność w zadaniu dyskryminacji fonetycznej podczas używania sylab prezentowanych w hałasie w porównaniu z zadaniem kontrolnym dyskryminacji kolorów dopasowanym pod względem trudności, struktury zadania i typu odpowiedzi20. Badania te pokazują, że rTMS jest niezwykle skutecznym sposobem badania obwodów słuchowo-motorycznych, które mogą wspierać zarówno produkcję mowy, jak i percepcję. rTMS o niskiej częstotliwości może być również stosowany w połączeniu z technikami neuroobrazowania w celu dalszego zbadania tego problemu (patrz Dyskusja).
Protokół
1. Przygotowanie
- Poproś uczestnika o wypełnienie formularza kontroli bezpieczeństwa (patrz np. 21). Uwaga: Uczestnicy, którzy mają przeciwwskazania do TMS, nie powinni być stymulowani; Najczęstszymi przeciwwskazaniami są: brak snu, przyjmowane leki (np. przeciwdepresyjne), a także występowanie padaczki w rodzinie.
- Wyjaśnij uczestnikowi procedurę TMS i szczegóły eksperymentu i uzyskaj świadomą zgodę.
- Za pomocą alkoholu oczyść skórę nad brzuchem mięśnia FDI w prawej ręce oraz w miejscu odniesienia (np. ścięgno mięśnia FDI) i przymocuj elektrody w tych miejscach.
- Oczyść skórę po prawej stronie mięśnia OO alkoholem i przymocuj jedną elektrodę do prawego kącika górnej wargi, a jedną elektrodę do prawego kącika dolnej wargi.
- Oczyść skórę wokół miejsca elektrody uziemiającej (np. na czole) i przymocuj elektrodę.
- Podłącz przewody elektrod do skrzynki elektrod podłączonej do systemu rejestracji EMG.
- Sprawdź sygnały EMG zarejestrowane z mięśni dłoni i warg, gdy uczestnik napina i rozluźnia te mięśnie (dokonując ich wizualnej kontroli za pomocą np. oprogramowania Spike2). Jeśli sygnały wyglądają na głośne, gdy uczestnik rozluźnia mięśnie warg i dłoni, skręć elektrod, ponownie oczyść skórę w miejscu elektrody i/lub poproś uczestnika, aby skrzyżował nogi, zdjął buty i postawił stopy na podłodze (lepsze uziemienie).
- Chroń słuch uczestnika, używając zatyczek do uszu.
- Załóż nasadkę na głowę uczestnika, aby móc zaznaczyć położenie cewki TMS.
2. Lokalizacja reprezentacji ręki motorycznej
- Zaznacz wierzchołek na nasadce (dołączając małą naklejkę lub używając długopisu) i zmierz odległość od wierzchołka do lewego punktu przedusznego. Przesuń 33% tej odległości od wierzchołka w kierunku lewego punktu przedusznego i zaznacz to miejsce.
- Umieść środek cewki TMS w kształcie ósemki w tym miejscu. Ustaw uchwyt cewki pod kątem 45 stopni od linii środkowej.
- Dostarcz pierwszy impuls TMS, np. naciskając pedał nożny. Wybierz niską intensywność (np. 40% maksymalnej intensywności stymulatora), jeśli próg motoryczny uczestnika nie jest znany. Lekko przesuń cewkę i/lub zwiększ intensywność, jeśli w dłoni nie widać MEP ani drgań mięśni.
- Po wywołaniu MEP należy przesuwać cewkę w krokach co 5 mm wokół tego obszaru, aby znaleźć odpowiedni "gorący punkt", tj. miejsce i orientację cewki, które wywołują maksymalne MEP z określoną intensywnością. Zachowaj co najmniej 5-sekundową przerwę między impulsami. Obserwuj rękę uczestnika, aby sprawdzić, które mięśnie drgają. Po znalezieniu miejsca, w którym MEP są największe, zaznacz ten "gorący punkt" i orientację cewki na nasadce.
3. Lokalizacja reprezentacji wargi motorycznej
- Zaznacz punkt w odległości 2-3 cm od plamki FDI wzdłuż linii prostej w kierunku kącika lewego oka (położenie reprezentacji motorycznej jest bardziej przednie i dolne niż w przypadku reprezentacji dłoni).
- Umieść cewkę w tym miejscu. Poproś uczestnika, aby zacisnął mięśnie warg; Obniża to próg silnika, a tym samym ułatwia znalezienie reprezentacji wargi silnika.
- Powiedz uczestnikowi, że impulsy TMS mogą być bardziej intensywne w tym miejscu niż w poprzednim miejscu i że może odczuwać drgania na twarzy (z powodu stymulacji obwodowej) i mimowolne mruganie oczami. Poproś uczestnika, aby w dowolnym momencie poinformował eksperymentatora, czy stymulacja staje się nieprzyjemna lub bolesna, lub jeśli chce przerwać stymulację.
- Dostarcz pierwsze impulsy. Jeśli nie zostaną wywołane żadne MEP, lekko przesuń cewkę i/lub zwiększ intensywność. Zachowaj co najmniej 5-sekundową przerwę między impulsami. Po wywołaniu MEP przesuwaj cewkę wokół tego obszaru w krokach co 5 mm, aby znaleźć "gorący punkt" dla mięśnia OO. Uwaga: Kształt warg posłów do PE jest często wielofazowy, a ich kształt może się różnić w zależności od uczestnika. Ponadto próg motoryczny jest często wyższy w przypadku mięśnia wargi niż w przypadku mięśni dłoni.
4. Definiowanie intensywności dla eksperymentów z pojedynczym impulsem
- Przeszkol uczestnika, aby utrzymywał stały poziom skurczu, jeśli MEP będą nagrywane z przykurczonych mięśni warg. Uwaga: Zapewnienie wizualnej informacji zwrotnej na temat mocy sygnału EMG (np. za pomocą oprogramowania Spike2) pomaga podczas treningu; Trening można przerwać, gdy uczestnik jest w stanie utrzymać stabilny poziom skurczu przez co najmniej 1 minutę.
- Umieść cewkę w gorącym miejscu mięśnia OO. Dostarcz 10 impulsów o stałej intensywności. Zachowaj co najmniej 5-sekundową przerwę między impulsami. Oszacuj rozmiary posłów do PE, dokonując ich oględzin. Zwiększ intensywność, jeśli posłowie do PE są bardzo nieliczni lub nie było żadnego posła do PE na każdej próbie. Ponownie wygeneruj 10 impulsów. Zwiększaj intensywność, aż w każdej próbie zostanie wywołany solidny MEP (np. z amplitudą około 0,3 mV, gdy mięsień wargi jest rozluźniony lub z amplitudą około 1 mV, gdy mięsień wargi jest skurczony). Użyj tej intensywności podczas eksperymentu z pojedynczym impulsem. Uwaga: Dobrą praktyką jest podawanie intensywności stymulatorów w publikacjach.
5. Definiowanie progu aktywnej motoryki dla eksperymentów rTMS
- Poproś uczestnika, aby napiął mięśnie warg tak mocno, jak tylko może. Określ amplitudę tego maksymalnego skurczu (poprzez wzrokowe sprawdzenie sygnału EMG).
- Poproś uczestnika, aby zmniejszył skurcz warg. Poprowadź go, aby osiągnął poziom skurczu, który wynosi około 20% maksimum. Poproś uczestnika, aby utrzymał ten poziom przez 1 minutę. Daj mu krótką przerwę i powtórz ćwiczenie tyle razy, ile potrzeba. Uwaga: Zapewnienie wizualnej informacji zwrotnej na temat mocy sygnału EMG (np. za pomocą oprogramowania Spike2) pomaga podczas treningu; Trening można przerwać, gdy uczestnik jest w stanie utrzymać stabilny poziom skurczu przez co najmniej 1 minutę.
- Dostarcz 10 impulsów przez hotspot dla OO, podczas gdy uczestnik kurczy wargę przy 20% maksimum. Policz, ilu posłów do PE zostało wybranych. Jeśli MEP (o amplitudzie międzyszczytowej co najmniej 0,2 mV) występował w mniej niż 5 z 10 prób, należy zwiększyć intensywność. Jeśli MEP był obecny w więcej niż 5 z 10 prób, zmniejsz intensywność. Powtarzać tę czynność do momentu, gdy zostanie ustalony minimalny poziom intensywności, który wywołuje w PE co najmniej 50% prób (próg aktywnej motoryki).
- Poproś uczestnika o rozluźnienie mięśni warg i dostarczenie 10 impulsów o intensywności progu aktywnej motoryki. Sprawdź, czy nie wywołano żadnych posłów do PE (tj. intensywność stymulacji jest poniżej progu). Jeśli nie uzyskano żadnych MEP, należy użyć tej intensywności (tj. 100% progu aktywnej motoryki) podczas treningu rTMS (gdy mięsień wargi jest rozluźniony). Jeśli posłowie do PE zostali wybrani, wróćmy do punktu 5.3.
6. rTMS o niskiej częstotliwości
- Dostarczaj impulsy TMS z częstotliwością do 1 Hz przez 15 minut podczas pociągu rTMS. W przypadku korzystania z systemu MagStim BiStim, który składa się z dwóch stymulatorów, należy wyzwalać te stymulatory naprzemiennie (tzn. każdy stymulator dostarcza impuls co 3 sekundy) w celu wytworzenia jednofazowej sekwencji impulsów o częstotliwości 0,66 Hz. Uwaga: Oprogramowanie Spike2 wraz z systemem akwizycji EMG (firmy Cambridge Electronics) może być użyte do stworzenia sekwencji impulsów wyzwalających. Uwaga: W praktyce maksymalne natężenie dla ciągu impulsów 0,66 Hz przy użyciu systemu MagStim BiStim i standardowych cewek wynosi 65% maksymalnej mocy wyjściowej stymulatora. Limit ten odnosi się do maksymalnej częstotliwości impulsów każdego stymulatora (0,33 Hz), przegrzania cewek i komfortu uczestnika.
- Monitoruj nagrania z mięśni wargi i dłoni podczas pociągu rTMS, aby upewnić się, że nie są wywoływane żadne MEP, które wskazywałyby na wzrost pobudliwości lub rozprzestrzenianie się efektów na sąsiednią reprezentację. Monitoruj również uczestnika pod kątem oznak dyskomfortu lub zmian w poziomie czujności.
- Wymień cewkę po 7,5 min, aby uniknąć przegrzania. Uwaga: Ten krok można pominąć w przypadku korzystania ze specjalnych cewek, które są chłodzone podczas stymulacji; Nagrzewanie cewek może wpływać na natężenie pola magnetycznego.
Wyniki
Wyniki eksperymentów z pojedynczym impulsem
W eksperymentach z pojedynczym impulsem miarą zależną jest amplituda MEP. Wielkość MEP jest zazwyczaj mierzona albo jako amplituda szczyt-szczyt13,18, albo jako pole pod krzywą10. MEP warg można rejestrować zarówno z rozluźnionego mięśnia, jak i z mięśnia lekko skurczonego. W tym drugim przypadku impulsy TMS mogą być dostarczane z niższą intensywnością, ponieważ skurcz obniża próg motoryczny. Bardzo ważne jest, aby poziom skurczu pozostawał stały przez cały eksperyment, ponieważ siła skurczu wpływa na amplitudy MEP. Im silniejszy jest skurcz, tym większe są MEP. Dlatego, jeśli MEP są rejestrowane z mięśnia skurczonego, ważne jest przeszkolenie uczestnika w utrzymywaniu stałego poziomu skurczu przed zdefiniowaniem intensywności TMS. Podczas treningu pomocna jest informacja zwrotna w formie wizualnej (patrz Protokół 4.1.). Czasami próg jest tak wysoki, że intensywność impulsów TMS jest niekomfortowa dla uczestnika i eksperyment nie może zostać przeprowadzony. Ponadto nie zawsze jest możliwe zlokalizowanie reprezentacji warg lub zarejestrowanie wyraźnych MEP, zwłaszcza gdy mięśnie warg są rozluźnione. Dobrą praktyką w publikacjach jest podawanie liczby uczestników, u których eksperymentu nie udało się przeprowadzić. Rysunek 1 przedstawia MEP zarejestrowane z rozluźnionego i skurczonego mięśnia warg jednego uczestnika. Intensywność impulsów TMS pozostawała stała dla trzech poziomów skurczu. Pobudliwość motoryczna wzrasta, gdy mięsień jest skurczony, w konsekwencji MEP stają się większe.
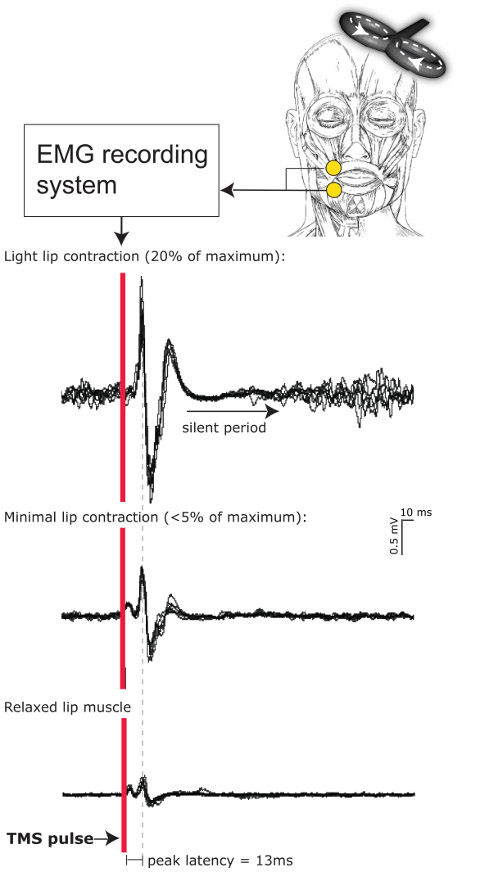
Rysunek 1. Wpływ skurczu mięśni na MEP warg. MEP mierzono u jednej uczestniczki podczas gdy (1) rozluźniała wargi, (2) kurczyła wargi tak lekko, jak tylko mogła (< 5% maksimum) oraz (3) kurczyła wargi z siłą około 20% maksimum. Intensywność monofazowych impulsów TMS była taka sama we wszystkich trzech warunkach (58% intensywności maksymalnej). W każdym warunku zarejestrowano 6 MEP (na rysunku naniesione jeden na drugi). Rysunek obrazuje, że MEP zwiększają się wraz ze wzrostem poziomu skurczu. W warunku z najsilniejszym skurczem wyraźnie widoczny jest korowy okres ciszy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Pobudliwość ruchowa reprezentacji warg zwiększa się podczas słuchania mowy oraz oglądania ruchów warg związanych z mową. Rysunek 2 przedstawia MEP warg zarejestrowane podczas słuchania mowy i hałasu niewerbalnego, a także podczas obserwowania ruchów gałek ocznych i ruchów warg związanych z mową10. W niniejszym badaniu MEP rejestrowano z lekko skurczonych mięśni warg. Poziom skurczu dodano jako współzmienną w analizie MEP i wykorzystano do skorygowania wielkości MEP. MEP warg wywołane stymulacją lewego M1 były istotnie zwiększone podczas słuchania mowy i oglądania ruchów warg związanych z mową w porównaniu z warunkami bazowymi, natomiast MEP warg wywołane stymulacją prawego M1 nie uległy modulacji w żadnej z warunków.
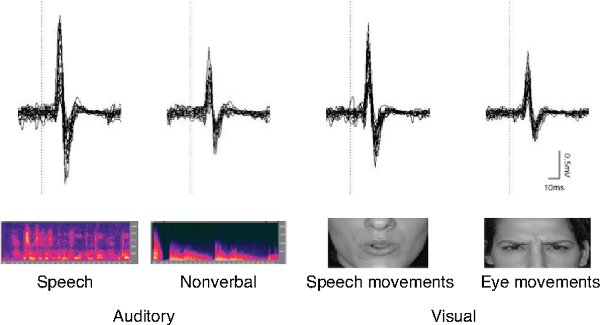
Rysunek 2. MEP u jednego uczestnika podczas percepcji słuchowej i wizualnej mowy. MEP rejestrowano z lekko napiętego mięśnia warg podczas stymulacji lewej kory ruchowej. MEP uległy wzmocnieniu podczas słuchania mowy oraz oglądania związanych z mową ruchów warg. Rysunek zmodyfikowano na podstawie 10.
Niedawne badanie analizowało specyficzność zmian pobudliwości w korze ruchowej warg podczas obserwacji wizualnych ruchów ust13. Wartości z-score dla MEP warg rejestrowanych podczas wizualnej percepcji znanej mowy (angielskiej), nieznanej mowy (hebrajskiej), ruchów ust niebędących mową (grymasy) oraz nieruchomej twarzy przedstawiono na Rysunku 3. Wartości z-score obliczono względem średniej ze wszystkich warunków. Impulsy TMS podawano nad lewym obszarem M1, a MEP rejestrowano z rozluźnionego mięśnia warg. MEP były większe podczas obserwacji znanej mowy niż podczas obserwacji nieznanej mowy lub ruchów ust niebędących mową. MEP rejestrowane podczas obserwacji nieruchomej twarzy były tak samo duże, jak podczas obserwacji mowy angielskiej. Wyniki te sugerują, że kora ruchowa warg bierze udział w przetwarzaniu sygnałów wizualnych podczas komunikacji mową. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
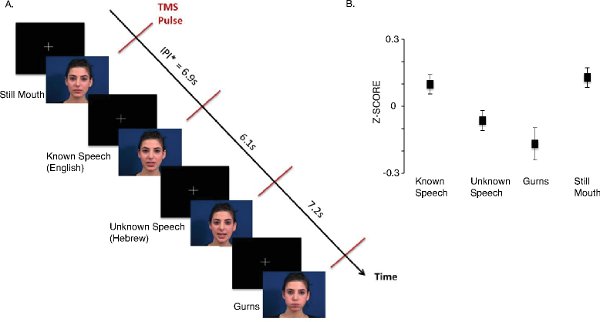
Rycina 3. Pobudliwość motoryczna podczas percepcji wizualnej mowy. A. Uczestnicy oglądali nagrania wideo znanej mowy (t.j. angielskiej), nieznanej mowy (t.j. hebrajskiej), ruchów ust niebędących mową (t.j. grymasów) oraz nieruchomych ust. Podczas każdego filmu podawany był jeden impuls TMS. Odstęp między impulsami (IPI) wynosił od 5 do 8 sekund. B. Na rysunku przedstawiono standaryzowane amplitudy MEP (± SEM) zmierzone z warg podczas oglądania filmów. Wartości z-score obliczono względem średniej ze wszystkich warunków. MEP były istotnie większe podczas obserwacji znanej mowy niż nieznanej mowy (p = 0,001) lub grymasów (p < 0,05). Różnice w amplitudach MEP między warunkami odzwierciedlają różnice w pobudliwości reprezentacji warg w korze ruchowej. Rycina zmodyfikowana na podstawie13. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Wyniki eksperymentów rTMS
Wykazano, że niskoczęstotliwościowa rTMS nad reprezentacją ruchową dłoni może zmniejszyć pobudliwość ruchową i wywołać tymczasowe zaburzenie w tym obszarze (i.e. „wirtualną lekcję”)15. rTMS nad reprezentacją ruchową warg również zmniejsza pobudliwość tego obszaru18. Zmiany amplitud MEP po 15 min niskoczęstotliwościowej stymulacji nad reprezentacją warg w lewej korze M1 przedstawiono na Ryc. 4. MEP rejestrowane z warg były stłumione 7 min po zakończeniu serii powtarzalnych TMS, ale zaczęły powracać po 15 min. To stłumienie pobudliwości pokazuje, że niskoczęstotliwościowa rTMS zakłóciła funkcjonowanie reprezentacji warg w korze ruchowej na około 15 min.
Zaburzenia w korze motorycznej artykulacyjnej wywołane przez TMS upośledzają wyniki uczestników w wymagających zadaniach percepcji mowy. Rysunek 5 pokazuje, w jaki sposób wywołane przez TMS zaburzenie reprezentacji warg modulowało wyniki w zadaniu dyskryminacji dźwięków identycznych i różniących się18. Uczestnikom prezentowano pary syntetycznych sylab zarówno przed, jak i po niskoczęstotliwościowym rTMS. Ich zadaniem było wskazanie, czy sylaby były takie same, czy różne. Zaburzenia wywołane przez TMS upośledziły zdolność uczestników do rozróżniania syntetycznych dźwięków mowy artykułowanych wargowo od dźwięków mowy, które nie są artykułowane wargami ('ba' vs. 'da' oraz 'pa' vs. 'ta'). Jednakże zaburzenie to nie wpłynęło na ich zdolność do rozróżniania dwóch dźwięków mowy, które nie są artykułowane wargami ('ka' vs. 'ga' oraz 'da' vs. 'ga'). Sugeruje to, że reprezentacja warg przyczynia się do percepcji mowy w sposób specyficzny dla danego artykulatora.
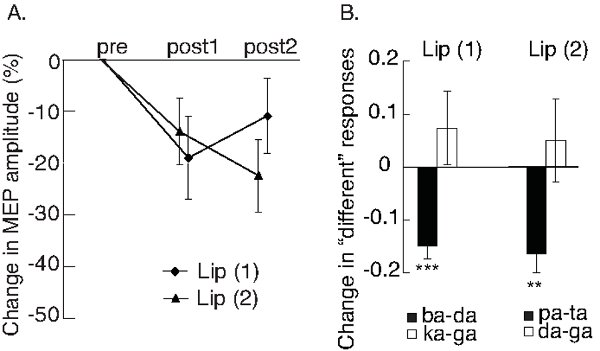
Rysunek 4. Wpływ rTMS na pobudliwość ruchową i dyskryminację mowy. A. Wykres przedstawia średnie zmiany (± SEM) amplitud szczyt-szczyt MEP po rTMS w stosunku do MEP przed rTMS. MEP rejestrowano z mięśni warg, a rTMS stosowano nad korą ruchową warg w lewej półkuli w obu eksperymentach 1 i 2. MEP po rTMS rejestrowano ok. 7 min (post1) i ok. 15 min (post2) po zakończeniu 15-minutowej serii niskoczęstotliwościowej rTMS. MEP zostały znacząco stłumione po rTMS w obu eksperymentach 1 i 2. B. Uczestnikom prezentowano syntetyczne dźwięki mowy z ośmiostopniowych kontinuów akustycznych pomiędzy dwoma dźwiękami mowy. Pary „międzykategoryczne” wybrano na podstawie położenia granic kategorii, które określono indywidualnie dla każdego uczestnika. Uczestnicy wykonywali zadanie dyskryminacji takie samo-inne przed i po niskoczęstotliwościowej rTMS nad reprezentacją ruchową warg. Przedstawiono zmiany w proporcjach odpowiedzi „inne” (± SEM). Po TMS uczestnicy gorzej dyskryminowali pary międzykategoryczne zawierające dźwięki mowy artykułowane wargami ('ba' vs. 'da' oraz 'pa' vs. 'ta') niż przed rTMS. Rozróżnialność pozostałych par pozostała stabilna. Rysunki zmodyfikowano na podstawie18. **p < .01, ***p < .001. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dyskusja
W ciągu ostatnich dwóch dekad TMS stał się szeroko stosowaną metodą w neuronauce poznawczej, ponieważ może dostarczać informacji uzupełniających neuroobrazowanie. Dostarczyło to również naukowcom zajmującym się mową nowych narzędzi do zbadania, czy system motorycznej produkcji mowy może być zaangażowany w percepcję mowy. W szczególności TMS stanowi ważny sposób eksperymentalnego testowania, czy obwody neuronalne kontrolujące artykulację mowy są ułatwione podczas słuchania mowy i czy obwody te przyczyniają się do percepcji mowy.
W artykule tym opisano, w jaki sposób reprezentacja ruchu warg może być stymulowana za pomocą TMS oraz jak zarówno techniki pojedynczego impulsu, jak i powtarzalne TMS zostały wykorzystane do zbadania roli kory ruchowej w percepcji mowy. Przedstawione tutaj badania dostarczają dowodów na to, że kora ruchowa przyczynia się do przetwarzania mowy w ludzkim mózgu. Inne paradygmaty TMS zostały również wykorzystane do zbadania przetwarzania mowy w układzie motorycznym. Wykazano, że podwójne impulsy TMS dostarczane przez reprezentacje wargi motorycznej i języka przed sylabami słuchowymi ułatwiają rozpoznawanie sylab artykułowanych odpowiednio w wargach i języku22. Paradygmat sparowanej cewki może być wykorzystany do zbadania efektywnej łączności między reprezentacją warg a innymi obszarami kory mózgowej podczas percepcji mowy23. Wykazano, że efektywna łączność między reprezentacją wargi ruchowej i połączeniem skroniowo-ciemieniowym a dolną korą czołową jest wzmocniona podczas słuchania mowy, ale nie podczas słuchania białego szumu. Ciągła stymulacja theta-burst (cTBS) nad połączeniem skroniowo-ciemieniowym zniosła jego skuteczną łączność z reprezentacją warg motorycznych, dostarczając dalszych dowodów na to, że te obszary kory mózgowej są funkcjonalnie sprzężone podczas słuchania mowy23. Przewaga cTBS nad rTMS o niskiej częstotliwości polega na tym, że stosunkowo krótki ciąg cTBS (np. 40 sekund) może spowodować długotrwałe zakłócenie kory ruchowej (do 60 minut)24. Jednak wpływ cTBS na pobudliwość ruchową jest bardzo zróżnicowany u wszystkich uczestników25.
Połączenie TMS z innymi technikami neuroobrazowania, które mierzą aktywność całego mózgu, może zapewnić wgląd w to, jak TMS wpływa na procesy neuronalne zarówno w sąsiednich, jak i bardziej dystalnych obszarach kory mózgowej. Obszary mózgu bez wątpienia oddziałują na siebie nawzajem podczas procesów percepcyjnych i poznawczych, więc nie jest zaskakujące, że wywołana "wirtualna zmiana" w jednym obszarze mózgu moduluje funkcjonowanie innych obszarów mózgu zaangażowanych w ten sam proces. Aby pogłębić zrozumienie neuronalnych podstaw percepcji mowy, konieczne jest zbadanie, w jaki sposób artykulacyjna kora ruchowa oddziałuje z obszarami słuchowymi w górnej korze skroniowej podczas słuchania mowy i jak te interakcje przyczyniają się do percepcji mowy. Połączenie TMS z technikami obrazowania mózgu dostarcza środków do odpowiedzi na te pytania. Na przykład, możliwe jest zbadanie wpływu zaburzeń układu artykulacyjnego wywołanych TMS na przetwarzanie sygnałów mowy w korze skroniowej górnej za pomocą elektroencefalografii (EEG), magnetoencefalografii (MEG), funkcjonalnego rezonansu magnetycznego i pozytonowej tomografii emisyjnej (PET). Eksperymenty łączące rTMS o niskiej częstotliwości i EEG pokazują, że zakłócenia w artykulacyjnej korze ruchowej wywołane przez TMS modulują automatyczną dyskryminację dźwięków mowy, ale nie niemowy, w układzie słuchowym, co pokazuje, że systemy te oddziałują na siebie podczas przetwarzania mowy16. Połączenie rTMS z MEG jest również potężną metodą badania czasu interakcji słuchowo-motorycznych17.
Niemniej jednak związek między produkcją mowy a percepcją jest nadal słabo poznany. TMS w połączeniu z zadaniami mowy i dodatkowymi technikami neuroobrazowania może pomóc naukowcom w lepszym zrozumieniu neuronalnych podstaw percepcji i produkcji mowy oraz tego, czy nakładają się one na siebie.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
R.M. był wspierany przez Radę ds. Badań Medycznych (stypendium rozwoju kariery). J.R. był wspierany przez Wellcome Trust (grant na projekt przyznany K.E.W i R.M.). Pragniemy podziękować Jennifer Chesters za pomoc w realizacji filmu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Stymulator TMS | Magstim Limited, Walia, Wielka Brytania | Magstim BiStim (dwie podłączone cewki MagStim 200) | |
| 2 cewki TMS | Magstim Limited, Walia, Wielka Brytania | 70-milimetrowa cewka ósemkowa, | |
| do rejestracji sygnału EMG | Covidien llc, MA, USA. | Elektrody EKG dla noworodków Kendall, 22 mm x 30 mm | |
| Skrzynka elektrod (do zapisu EMG) | Cambridge Electronic Design Limited, Wielka Brytania | CED 1902-11/4 Adapter | |
| Jednostka akwizycji danych (do EMG) | Cambridge Electronic Design Limited, Wielka Brytania | Micro1401-3 | |
| (do EMG) | Cambridge Electronic Design Limited, Wielka Brytania | 1902 | |
| Oprogramowanie do rejestracji i analizy EMG | Cambridge Electronic Design Limited, Wielka Brytania | Spike2, wersja 7 |
Bibliografia
- Hickok, G. The role of mirror neurons in speech and language processing. Brain Lang. 112, 1-2 (2010).
- Hickok, G., Houde, J., Rong, F. Sensorimotor integration in speech processing: computational basis and neural organization. Neuron. 69, 407-422 (2011).
- Lotto, A. J., Hickok, G. S., Holt, L. L. Reflections on mirror neurons and speech perception. Trends Cogn Sci. 13, 110-114 (2009).
- Pulvermuller, F., Fadiga, L. Active perception: sensorimotor circuits as a cortical basis for language. Nat Rev Neurosci. 11, 351-360 (2010).
- Scott, S. K., McGettigan, C., Eisner, F. A little more conversation, a little less action--candidate roles for the motor cortex in speech perception. Nat Rev Neurosci. 10, 295-302 (2009).
- Liberman, A., Mattingly, I. G. The motor theory of speech perception revised. Cognition. 21, 1-36 (1985).
- Liberman, A. M., Cooper, F. S., Shankweiler, D. P., Studdert-Kennedy, M. Perception of the speech code. Psychological Review. 74, 431-461 (1967).
- Mottonen, R., Watkins, K. E. Using TMS to study the role of the articulatory motor system in speech perception. Aphasiology. 26, 1103-1118 (2012).
- Fadiga, L., Craighero, L., Buccino, G., Rizzolatti, G. Speech listening specifically modulates the excitability of tongue muscles: a TMS study. Eur J Neurosci. 15, 399-402 (2002).
- Watkins, K. E., Strafella, A. P., Paus, T. Seeing and hearing speech excites the motor system involved in speech production. Neuropsychologia. 41, 989-994 (2003).
- Stokes, M. G., et al. Simple metric for scaling motor threshold based on scalp-cortex distance: application to studies using transcranial magnetic stimulation. J Neurophysiol. 94, 4520-4527 (2005).
- Murakami, T., Restle, J., Ziemann, U. Observation-execution matching and action inhibition in human primary motor cortex during viewing of speech-related lip movements or listening to speech. Neuropsychologia. , (2011).
- Swaminathan, S., et al. Motor excitability during visual perception of known and unknown spoken languages. Brain Lang. 126, 1-7 (2013).
- Watkins, K., Paus, T. Modulation of motor excitability during speech perception: the role of Broca's area. J Cogn Neurosci. 16, 978-987 (2004).
- Chen, R., et al. Depression of motor cortex excitability by low-frequency transcranial magnetic stimulation. Neurology. 48, 1398-1403 (1997).
- Mottonen, R., Dutton, R., Watkins, K. E. Auditory-motor processing of speech sounds. Cereb Cortex. 23, 1190-1197 (2013).
- Mottonen, R., van de Ven, G. M., Watkins, K. E. Attention fine-tunes auditory-motor processing of speech sounds. J Neurosci. 34, 4064-4069 (2014).
- Mottonen, R., Watkins, K. E. Motor representations of articulators contribute to categorical perception of speech sounds. J Neurosci. 29, 9819-9825 (2009).
- Sommer, M., Lang, N., Tergau, F., Paulus, W. Neuronal tissue polarization induced by repetitive transcranial magnetic stimulation. Neuroreport. 13, 809-811 (2002).
- Meister, I. G., Wilson, S. M., Deblieck, C., Wu, A. D., Iacoboni, M. The essential role of premotor cortex in speech perception. Curr Biol. 17, 1692-1696 (2007).
- Rossi, S., Hallett, M., Rossini, P. M., Pascual-Leone, A. Safety, ethical considerations, and application guidelines for the use of transcranial magnetic stimulation in clinical practice and research. Clin Neurophysiol. 120, 2008-2039 (2009).
- D'Ausilio, A., et al. The motor somatotopy of speech perception. Curr Biol. 19, 381-385 (2009).
- Murakami, T., Restle, J., Ziemann, U. Effective connectivity hierarchically links temporoparietal and frontal areas of the auditory dorsal stream with the motor cortex lip area during speech perception. Brain Lang. 122, 135-141 (2012).
- Huang, Y. Z., Edwards, M. J., Rounis, E., Bhatia, K. P., Rothwell, J. C. Theta burst stimulation of the human motor cortex. Neuron. 45, 201-206 (2005).
- Hamada, M., Murase, N., Hasan, A., Balaratnam, M., Rothwell, J. C. The role of interneuron networks in driving human motor cortical plasticity. Cereb Cortex. 23, 1593-1605 (2013).
Przedruki i uprawnienia
