U pszczół miodnych ustalono jednoczesne zewnątrzkomórkowe długoterminowe zapisy z dwóch różnych neuropile mózgowych lub dwóch różnych dróg anatomicznych. Nagrania te pozwalają na badanie czasowych aspektów przetwarzania neuronalnego w różnych obszarach mózgu zarówno na poziomie pojedynczego neuronu, jak i na poziomie zespołu u zachowującego się zwierzęcia.
Artykuł metodologiczny
Jednoczesne długoterminowe zapisy na dwóch etapach przetwarzania neuronalnego u zachowujących się pszczół miodnych
W tym artykule
Podsumowanie
Streszczenie
Zarówno u ssaków, jak i owadów, informacje neuronalne są przetwarzane w różnych ośrodkach mózgowych wyższego i niższego rzędu. Centra te są sprzężone za pomocą zbieżnych i rozbieżnych połączeń anatomicznych, w tym okablowania sprzężenia zwrotnego i sprzężenia zwrotnego. Co więcej, informacje tego samego pochodzenia są częściowo przesyłane równoległymi ścieżkami do różnych, a czasem do tych samych obszarów mózgu. Aby zrozumieć ewolucyjne korzyści, jak również obliczeniowe zalety tych strategii okablowania, a zwłaszcza ich czasowe zależności od siebie, konieczny jest jednoczesny dostęp do pojedynczych neuronów różnych dróg lub neurostosów w tym samym preparacie w wysokiej rozdzielczości czasowej. Tutaj koncentrujemy się na pszczołach miodnych, demonstrując unikalny zewnątrzkomórkowy długoterminowy dostęp do rejestrowania aktywności wielu jednostek w dwóch kolejnych neurostosach1, płacie antenowym (AL), pierwszym etapie przetwarzania węchowego i ciele grzyba (MB), centrum integracji wyższego rzędu zaangażowanym w uczenie się i tworzenie pamięci, lub dwóch równoległych szlakach neuronalnych2 połączenie AL z MB. Ten ostatni został wybrany jako przykład i zostanie w pełni opisany. Na filmie instruktażowym zademonstrowano budowę i trwałe wprowadzenie elastycznych wielokanałowych drutów elektrodowych. Różnicowe wzmocnienie parami kanałów elektrod mikrodrutowych drastycznie zmniejsza szum i sprawdza, czy źródło sygnału jest ściśle związane z położeniem końcówki elektrody. Elastyczność mechaniczna zastosowanych elektrod drucianych pozwala na stabilne, inwazyjne, długotrwałe zapisy przez wiele godzin do kilku dni, co stanowi wyraźną zaletę w porównaniu z konwencjonalnymi technikami poza- i wewnątrzkomórkowego zapisu in vivo.
Wprowadzenie
Pszczoły miodne, podobnie jak większość innych owadów, w dużym stopniu polegają na węchu. Między innymi wykorzystują wskazówki węchowe do orientacji, krycia, komunikacji z przedstawicielami tego samego gatunku i żerowania. Ich dobrze opracowany układ węchowy przyczynia się do bogatego repertuaru zachowań edukacyjnych związanych z bodźcami zapachowymi kwiatów. Zachowania te można łatwo badać w kontrolowanych warunkach laboratoryjnych (przegląd patrz3-5). Ich "mini mózgi" (cp.6) ze stosunkowo niewielką liczbą neuronów sprawiają, że pszczoła miodna jest dobrze przystosowanym organizmem modelowym do badania kodowania węchowego i uczenia się podczas monitorowania aktywności neuronalnej.
System węchowy zarówno u owadów, jak i u ssaków wykazuje analogiczną organizację w dużym stopniu (dla przeglądu patrz7,8). U pszczół miodnych około 80 000 neuronów receptorowych9 zlokalizowanych w czubkach wzdłuż czułków10,11 przekształca bodziec zapachowy w sygnał neuronalny. Aksony z neuronów receptorów węchowych unerwiają płat czułkowy (AL), który ma organizację kłębuszkową porównywalną z opuszką węchową kręgowców. AL składa się z około 164 kłębuszków nerkowych połączonych ze sobą około 4000 lokalnych interneuronów (LN) (przegląd patrz12). Szczególnie w przypadku pszczół miodnych wykazano niedawno, że LN zapewniają niejednolitą łączność boczną i że różne subpopulacje posiadają elementarne i konfiguracyjne właściwości kodowania węchowego13,14 . Wykazano, że AL jest podzielony na brzuszny i grzbietowy płat hemi, dając początek przyśrodkowej i bocznej drodze płata czułkowego (m- i l-ALT; wcześniej określane jako m- i l-APT dla przyśrodkowego i bocznego płata czułka protocerebral way15-17). W tym miejscu zostanie użyta nowa terminologia traktatowa, wprowadzona przez niedawne wysiłki na rzecz ujednolicenia nomenklatury mózgu owadów18. Oba ALT (l- i m-ALT) łączą 410 (l-ALT) lub 510 (m-ALT) neuronów projekcyjnych (PN) jednokłębuszkowych, odpowiednio15,16,19. Ostatnio wykazano, że PN obu szlaków kodują zapachy równolegle2 (dla przeglądu patrz17,20), a oba szlaki synaptycznie tworzą rozbieżne połączenia z komórkami Kenyona (KC), głównymi neuronami ciała grzyba (MB). Każdy MB zawiera około 172 000 KC21-23. Wiadomo, że MB są zaangażowane w integrację bodźców, uczenie się i tworzenie pamięci. Dendryty axo KC tworzą szypułkę (łodygę grzyba), która ma dwa główne obszary wyjściowe: wierzchołek lub płat alfa i płat poziomy lub beta22,24. Wynik MB zbiega się tylko do około 400 neuronów zewnętrznych (EN)24. EN odpowiedzialne za przetwarzanie informacji węchowych unerwiają głównie brzuszną część płata pionowego22. Ostatnio wykazano, że ENs zarejestrowane w tym obszarze kodują asocjację nagrody za zapach25.
Aspekty czasowe w systemie węchowym owadów i kręgowców stały się ważnym i znaczącym aspektem jako potencjalna zasada kodowania26-29. Aby móc jednocześnie rejestrować wiele neuronów z różnych miejsc w wysokiej rozdzielczości czasowej, opracowaliśmy techniki podwójnego nagrywania wielojednostkowego przy użyciu niestandardowych wielokanałowych elektrod drucianych wprowadzanych do różnych obszarów docelowych w układzie węchowym pszczoły. Takie podejście pozwala nam analizować i porównywać procesy czasowe w układzie węchowym pszczoły miodnej na poziomie pojedynczych neuronów i populacji neuronów między równoległymi szlakami węchowymi, podwójnym szlakiem węchowym2 lub między różnymi kolejnymi neuropilami1. Niedawno, dzięki podobnemu podejściu eksperymentalnemu w układzie węchowym szarańczy30 przy użyciu innej konfiguracji elektrod, byliśmy w stanie przeanalizować mechanizm kodowania czasoprzestrzennego w celu rozpoznawania zapachów niezmiennych w tle31. W ten sposób ustalone podwójne zapisy umożliwiają gromadzenie informacji przestrzennych o jednoczesnych profilach aktywności neuronalnej.
W porównaniu do szerszego próbkowania przestrzennego uzyskanego z obrazowania wapnia, ta metoda pozwala na zapis tylko z dwóch miejsc. Jednak zaletą w porównaniu z technikami obrazowania wapniowego jest wysoka precyzja czasowa zapisów potencjału czynnościowego, której nie można zapewnić ani przez konwencjonalne obrazowanie CCD, ani przez akwizycję obrazowania 2-fotonowego. Opisane tutaj elektrody zewnątrzkomórkowe są na stałe wszczepione i zamocowane względem mózgu i torebki głowy, unikając dryfu elektrody. Jest to wyraźna zaleta w porównaniu z zastosowaniem ostrych elektrod wewnątrzkomórkowych. Kolejną zaletą w porównaniu z zapisami wewnątrzkomórkowymi i obrazowaniem wapnia jest wydłużony czas obserwacji neuronalnej, wynoszący od wielu godzin do kilku dni. Jest to ważny warunek wstępny do zbadania neuronalnych korelatów uczenia się i tworzenia pamięci. Dodatkowe korzyści płynące z nagrań wielostanowiskowych są bardziej szczegółowo opisane w sekcji dyskusji.
W tym przeglądzie metodologicznym zostanie pokazana procedura produkcji elektrod drucianych o niestandardowych projektach, dostosowana z32,33 i dostosowana do długoterminowych zapisów wielojednostkowych w mózgu pszczoły miodnej. Dodatkowopokazano przykład, w jaki sposób tego typu elektrody są na stałe wszczepiane w dwóch różnych miejscach zapisu w układzie węchowym pszczoły miodnej, aby rejestrować jednocześnie l- i m-ALT przez długi czas, aby umożliwić wiele protokołów stymulacji. W celu weryfikacji pozycji zapisu podano przykład i protokół barwienia oraz wizualizacji miejsc rejestracji po nagraniu.
Protokół
1. Budynek elektrody (Rysunek 1)
- Produkcja adaptera elektrody pasującego do płytki interfejsu elektrody komercyjnych wielokanałowych systemów wzmacniaczy1,2,25.
- Użyj małej płytki z pleksiglasu przyklejonej do 18-pinowej podstawy złącza.
- Podłącz podstawę za pomocą 3 krótkich odcinków izolowanego drutu do 3 oddzielnych końcówek lutowniczych przykręconych do płytki z pleksiglasu (Rysunek 1 A1-A3).
- Włóż rowek w płytkę z pleksiglasu, w którym szklana kapilara może się łatwo przesuwać i być utrzymywana na miejscu za pomocą (Rysunek 1 B1).
- Przedłuż szklaną kapilarnę o około 5 mm za pomocą szpilki do drobniczka.
- Przymocuj druty mikroelektrody wzdłuż maleńkiego kołka i szklanej kapilary, aby zagwarantować stabilizację i wsparcie.
- Wielokanałowa produkcja mikrodrutów (zaczerpnięta z Ryuichy Okada32,33)
- Rozpięte są 3 mikrodruty (drut miedziany pokryty poliuretanem, średnica 15 μm) w taki sposób, aby były umieszczone obok siebie (Rysunek 1 B2).
- Za pomocą igły lutowniczej 12 V częściowo rozprowadź cienką warstwę niskotopliwego wosku dentystycznego (50 °C) wzdłuż drutów, aby je skleić (końcówka elektrody) (Rysunek 1 B3). Pozostaw kilka centymetrów nieprzyklejonych (koniec elektrody), ponieważ ta sekcja zostanie później wykorzystana do połączenia mikroprzewodów z adapterem elektrody.
- Podłącz wielokanałowy mikroprzewód do adaptera elektrody
- Wyjmij szklaną kapilarnę z uchwytu i przymocuj ją za pomocą kołka minutien do końcówki elektrody. Ustaw go w pozycji równoległej do mikroelektrody (rysunek 1 B3).
- Przyklej końcówkę elektrody do szpilki minutowej za pomocą niskotopliwego wosku dentystycznego i odetnij mikroelektrodę na końcówce, wystającą 2-3 cm z końcówki minuty i na końcu elektrody (małe strzałki Rysunek 1 B3).
- Lekko wsuń kapilarę z powrotem do adaptera elektrody. Użyj, aby go zamocować (Rysunek 1 B4).
- luźne końce trzech przewodów do końcówek lutowniczych za pomocą pistoletu lutowniczego o temperaturze około 360 °C, aby zapewnić stopienie izolacji (Rysunek 1 B4). Po należy upewnić się, że jest odpowiedni kontakt elektryczny (~300 kOhm).
- Zamontuj jedną z elektrod (master) na płytce interfejsu elektrody sceny głównej i zamocuj drugą elektrodę wielokanałową (podrzędną) na osobnym adapterze. Podłącz kanały urządzenia podrzędnego do elektrody głównej (Rysunek 1 C1). Dodatkowo elektrody odniesienia i mięśniowe do podstawy elektrody głównej (rysunek 1 C2).
2. Przygotowanie pszczół (Rysunek 2)
W tych opisanych eksperymentach używana jest pszczoła miodna (Apis mellifera), która jest zwierzęciem bezkręgowym i dlatego nie wymaga specjalnych etycznych pozwoleń na użycie.
- Złap zbieraczkę pszczół miodnych (A. mellifera) przy wejściu do ula rano, jak pokazują inni34,35.
- Schłodź pszczoły na kruszonym lodzie do momentu unieruchomienia (5 do 10 minut) i zamocuj jedną w standardowym uchwycie z pleksiglasu lub metalowej rurce w taki sposób, aby głowa była odsłonięta (ryc. 2 A). Aby zminimalizować ruchy głowy, użyj niskotopliwego wosku dentystycznego (~50 °C) i ostrożnie przymocuj głowę do uchwytu wokół podstawy oczu złożonych i szyi.
- Użyj wosku o niskiej temperaturze topnienia, aby przymocować kości szkieletowej czułków do torebki głowy (ryc. 2 B) bez dotykania wici. Wić anteny musi być skierowana do przodu. Upewnij się, że pszczoła może swobodnie poruszać trąbką.
- Ogol kapsułkę na głowę, aby zapewnić niezakłócony widok i dostęp do czubka głowy.
- Nakarm pszczołę 30% roztworem sacharozy aż do nasycenia, aby zapewnić wystarczające nawilżenie tkanki mózgowej i dobrą żywotność zwierzęcia (ryc. 2 C).
- Wykonaj ostrożne nacięcia pionowo wzdłuż granic oczu złożonych i poziomo nad podstawami czułków, a także pod oczkami i usuń poluzowany kawałek naskórka (ryc. 2 D).
- Ostrożnie odłóż na bok gruczoły podgardłowe i usuń tchawicę, aby zapewnić wyraźny widok i dostęp do mózgu przed wprowadzeniem elektrod (ryc. 2E, 2F).
3. Wprowadzenie elektrody
W przykładowym przypadku zilustrowanym na rysunku 2, jedna elektroda jest skierowana na l-ALT, a druga na m-ALT2. Korzystając z określonych punktów orientacyjnych, możliwe są również inne regiony docelowe, na przykład obszary wyjściowe AL i MB1.
- Umieść elektrody za pomocą mikromanipulatorów w obszarze zainteresowania (Rysunek 2G i 3A). Aby celować w m-ALT, umieść elektrodę między AL i przyśrodkowo od pionowego płata MB. Upewnij się, że miejsce wprowadzenia znajduje się powyżej punktu rozgałęzienia przyśrodkowych bocznych PN ALT. Wysuń elektrodę do mózgu na głębokość około 180 μm (ryc. 2E). W przypadku zapisu l-ALT PN umieść elektrodę poniżej bocznego protocerebrum (LH) w środku wyimaginowanej linii między boczną stroną płata pionowego a środkiem AL. Wprowadź elektrodę na głębokość około 300 μm (Rysunek 2E)
- Włóż odniesienie (srebrny drut o średnicy około 25 μm) do ipsilateralnego oka złożonego przez małe nacięcie w naskórku. Włóż kolejny srebrny drut do obszaru projekcji mięśni poniżej bocznej oczki. UWAGA: W razie potrzeby zachowanie pszczół w zakresie uczenia się może być monitorowane z dużą precyzją czasową, rejestrując mięsień M17, który bierze udział w odpowiedzi na wydłużenie trąbki (PER) pszczoły36, jak opisano w25.
- Aby solidnie zakotwiczyć elektrody w mózgu i torebce głowy, przykryj całą przestrzeń nad mózgiem dwuskładnikowym krzemem (ryc. 2H), co zapobiegnie wysychaniu mózgu. UWAGA: nagrania mogą trwać od wielu godzin do kilku dni, a pszczoły mogą być na przykład rejestrowane podczas klasycznej procedury kondycjonowania (ryc. 2H) lub stymulowane dużym panelem różnych zapachów.
4. Akwizycja danych i wstępne przetwarzanie
- Użyj odpowiedniego oprogramowania do akwizycji, które spełnia następujące wymagania: częstotliwość próbkowania min 25 kHz; analogowe1,25 lub cyfrowe 2 różnicowanie krzyżowe między kanałami elektrod; filtr pasmowo-przepustowy od 300 Hz do 8 000 Hz w celu wyodrębnienia zdarzeń skokowych.
- Użyj dostępnego oprogramowania do sortowania spajków, aby wyodrębnić aktywność pojedynczej jednostki, na przykład techniki dopasowywania szablonów zawarte w oprogramowaniu Spike2 (Rysunek 3).
- Do dalszej analizy należy wykorzystać znaczniki czasu wyodrębnionych jednostek do obliczenia uśrednionych reakcji na zapach pojedynczej jednostki (rysunek 4) lub do obliczenia wektorów populacji do analizy głównych składowych (PCA) (rysunek 5) przy użyciu dostępnego na rynku oprogramowania. Aby dokładniej przeanalizować opóźnienie odpowiedzi pojedynczej jednostki i populacji, porównaj najnowsze publikacje1,2,25.
5. Wizualizacja względnej pozycji elektrody (Rysunek 4)
- Zanurz końcówki elektrod w roztworze 5% hydrazydu Alexa 568 lub 5% hydrazydu Alexa 488, który rozpuszcza się w 0,5 M roztworze chlorku potasu przed eksperymentami rejestracyjnymi.
- Po eksperymentach ostrożnie usunąć elektrody i pokrywający je krzem, przepłukać mózg roztworem Ringera pszczelego, usunąć gruczoły i tchawicę i wprowadzić drobne kryształki dekstranu tetrametylorhodaminy lub wprowadzić 5% roztwór rozpuszczony w 1,0 M octanie potasu do AL, aby oznaczyć ALT w kierunku następczym. Wykonaj następujące czynności w ciemności.
- Pozwól, aby barwnik został pobrany i przetransportowany przez neurony projekcyjne wzdłuż ich dróg aksonalnych (30-45 min) (ryc. 4A), a następnie umyj mózg roztworem Ringera pszczół trzy razy przez kolejne 30-45 minut.
- Schłodź pszczołę na lodzie do momentu unieruchomienia i ostrożnie wyjmij mózg z torebki głowy. Utrwalić mózg, płucząc go w 0,1 M roztworze PBS zawierającym 4% formaldehydu i przechowywać przez noc w temperaturze 4 °C.
- Odczekaj co najmniej 12 godzin przed dwukrotnym umyciem mózgu w 0,1 M PBS (10 minut każdy).
- Myj mózg 3x przez 20 minut w 0,2% Triton X-100 rozcieńczonym w 0,1 M PBS przed odwodnieniem w serii alkoholi rosnących (30%, 50%, 70%, 90%, 95%, 3x 100% etanolu, 20 min każdy krok).
- Osadź odwodniony mózg w salicylanie metylu na szkiełku mikroskopowym i uszczelnij go szkiełkiem nakrywkowym.
- Użyj konfokalnego laserowego mikroskopu skaningowego i skanuj mózg jako wycinki optyczne co 2-5 μm za pomocą obiektywu apochromatycznego Harmonic Compound Plan (zanurzenie 10X 0,4 NA). Wzbudzić tkankę za pomocą długości fali 568 nm dla dekstranu tetrametylorrodaminy i długości fali 488 nm dla położenia elektrody.
- Zrekonstruuj poplamione struktury mózgu i ścieżki elektrod ze stosów obrazów w 3D za pomocą oprogramowania do rekonstrukcji (np. AMIRA lub Fidżi) (Rysunek 4).
Wyniki
"Niniejszy protokół umożliwia jednoczesne rejestracje na dwóch różnych etapach przetwarzania w obrębie poszczególnych pszczół miodnych, a dodatkowo pozwala na badanie mechanizmów leżących u podstaw uczenia się i pamięci poprzez np. warunkowanie PER u unieruchomionych pszczół". Jest to warunek wstępny do analizy aspektów czasowych przetwarzania neuronalnego. Metoda ta jest łatwo dostosowywalna do różnych podejść naukowych w celu wyjaśnienia sieci neuronalnej układu węchowego pszczoły. Na przykład metoda ta jest stosowana (i) do analizy przetwarzania czasowego PN w obrębie podwójnej drogi węchowej pszczoły miodnej, PN l-ALT i m-ALT (Rysunek 5). Na Rysunku 5A przedstawiono przykład PN l-ALT rejestrowanego jednocześnie z PN m-ALT jako średnią z dziesięciu prób, co ilustruje siłę i latencję ich odpowiedzi w odniesieniu do pięciu różnych stężeń zapachów w formie kolorowej mapy ciepła. Średnia z siedmiu pszczół z 11 PN l-ALT i 13 PN m-ALT (Rysunki 5B, 5C) wykazuje, że zarówno siła odpowiedzi, jak i latencja odpowiedzi, w pewnym stopniu odzwierciedlają stężenie substancji zapachowej. W tym przykładzie PN zwiększyły siłę swojej odpowiedzi, podczas gdy wraz ze wzrostem stężenia substancji zapachowej ich latencja odpowiedzi malała (Rysunki 5B, 5C). Wynik ten jest dość ograniczony i dotyczy tylko analizowanej substancji zapachowej, ale jest spójny z niedawnymi modelami obliczeniowymi AL37. To, czy kodowanie stężenia zapachu w AL pszczoły opiera się na nieliniowych obliczeniach, czy na innych właściwościach kodowania, wciąż wymaga analizy w przyszłości. Ponadto metodę tę można wykorzystać (ii) do porównania aspektów czasowych w aktywności populacyjnej na dwóch kolejnych etapach przetwarzania: wyjściu z AL i MB (Rysunek 6). Analiza głównych składowych (PCA) wykazuje, że obliczenia zapachowe są przedłużone i trwają dłużej niż cała prezentacja zapachu na poziomie PN, podczas gdy w EN w aktywności populacyjnej reprezentowane były jedynie momenty początku i końca ekspozycji na zapach (Rysunek 6). W związku z tym populacja EN osiągnęła maksymalną aktywność już w punkcie czasowym, w którym aktywność PN wciąż się rozwijała (por. Film 1).
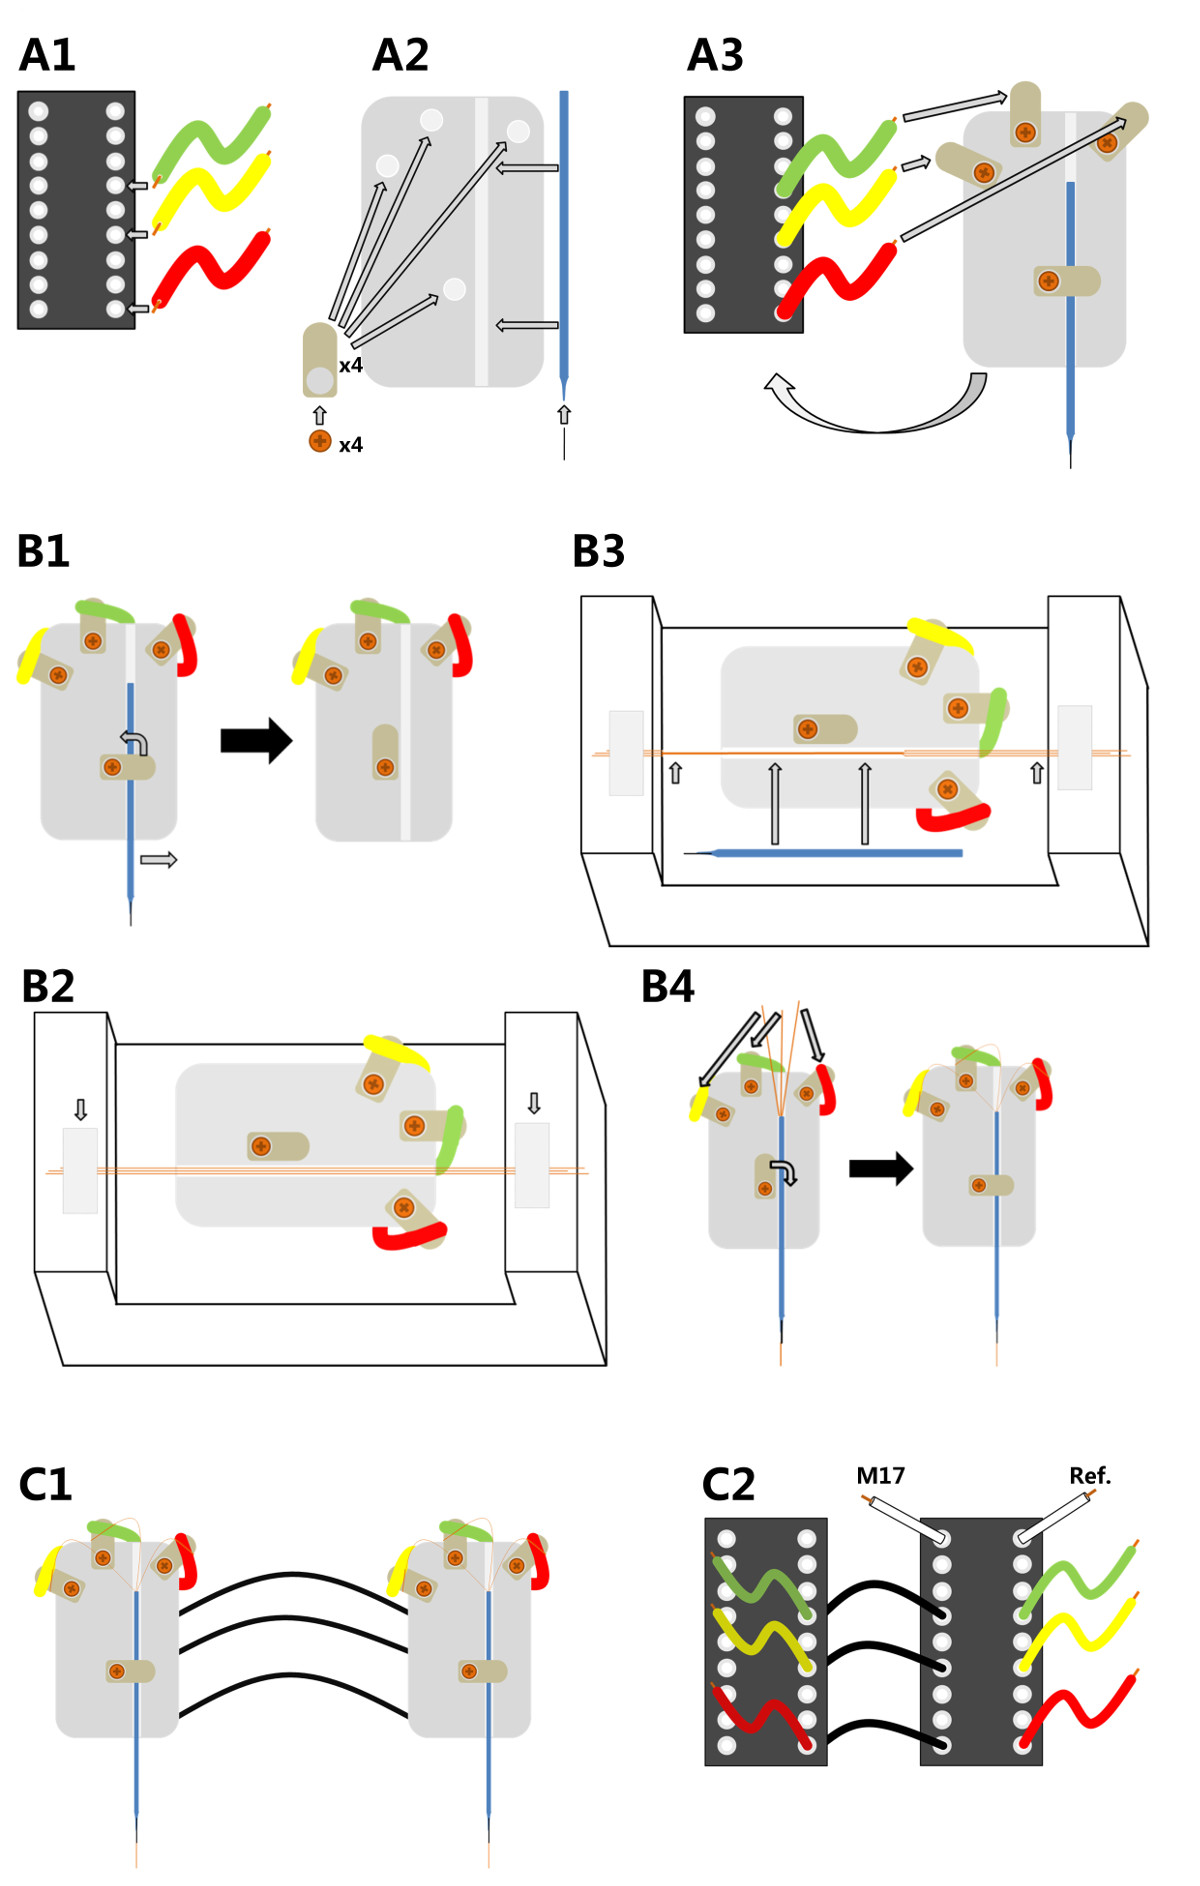
Rycina 1. Wykonanie trzechkanałowych elektrod z mikrodrutów. A1) Końce trzech przewodów są przylutowane do złącza pinowego IC w pozycjach 11, 13 i 16. A2) Cztery wyprowadzenia lutownicze są przykręcone do podstawy z pleksiglasu; pin minutien jest wkładany do końcówki kapilary szklanej, która następnie zostaje przymocowana do plastikowej płytki. A3) Plastikowa płytka jest przyklejana na górze złącza pinowego IC, a wolny koniec każdego przewodu jest przylutowany do jednego z górnych wyprowadzeń lutowniczych. B1) Aby wyposażyć uchwyt elektrody w cienkie miedziane druty, kapilarę należy wyjąć ponownie. B2) Podstawa uchwytu zostaje następnie zamocowana w specjalnie wykonanym urządzeniu do wyrównywania. Trzy miedziane mikrodruty są wyrównywane wzdłuż rowka i utrwalane taśmą klejącą na obu końcach. B3) Równoległe mikrodruty są sklejane woskiem dentystycznym i kapilara jest wkładana z powrotem na miejsce (długie strzałki); sklejone mikrodruty są następnie mocowane do kapilary woskiem dentystycznym, a jej końce są odcinane (krótkie strzałki). B4) Trzy wolne końce miedzianych drutów są przylutowane do trzech górnych wyprowadzeń lutowniczych, co zapewnia im kontakt elektryczny ze złączem pinowym IC. C1) Dwie w pełni zmontowane elektrody mogą zostać połączone ze sobą do użytku z jednym przedwzmacniaczem głowicowym. C2) W tym celu piny jednej elektrody (lewa, slave) są łączone za pomocą izolowanych przewodów z drugą elektrodą (prawa, master), która jest podłączona do przedwzmacniacza głowicowego; elektroda podłączona do przedwzmacniacza może również odbierać sygnał z mięśnia (M17) i elektrody referencyjnej (Ref).
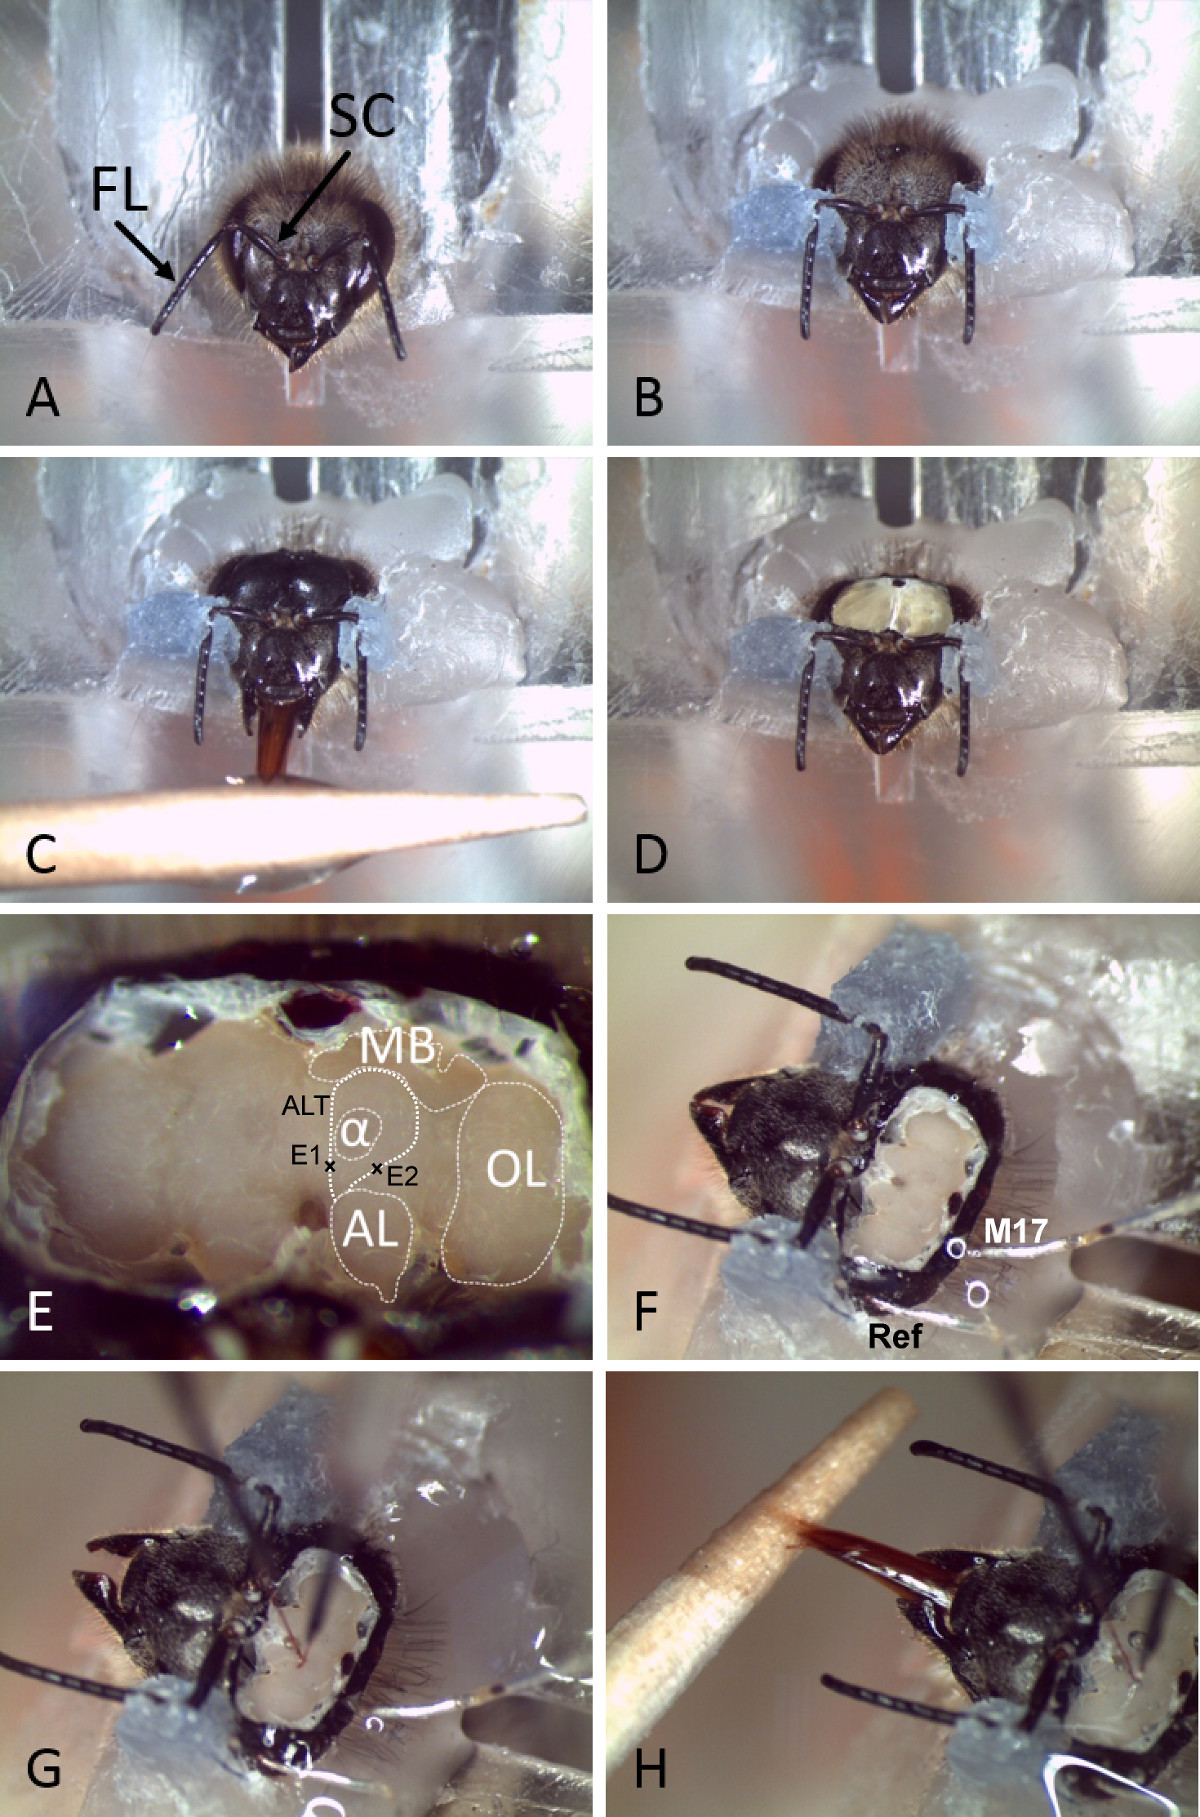
Rysunek 2. Przygotowanie i trwałe wprowadzenie elektrod do mózgu pszczoły. A) Pszczoła zostaje umieszczona w uchwycie z pleksiglasu po unieruchomieniu na lodzie. Wskazano czułki z biczkiem (FL) i trzonkiem (SC). B) Głowa i czułki zostają unieruchomione za pomocą wosku dentystycznego. C) Kapsuła głowy zostaje ogolona, a pszczoła zostaje nakarmiona wodą z cukrem. D) Kapsuła głowy zostaje otwarta. E) Po usunięciu gruczołów i tchawki z górnej części mózgu, można łatwo rozróżnić poszczególne neuropile i główne punkty orientacyjne. Wskazano trajektorie ALT wraz z miejscem wprowadzenia elektrod. (MB: ciało grzybowate, AL: płat czułkowy, OL: płat optyczny, α: płat alfa lub płat pionowy, ALT: trakt płata czułkowego, E1: strona wprowadzenia elektrody do rejestracji z m-ALT, E2: strona wprowadzenia elektrody do rejestracji z l-ALT). F) Elektrody referencyjne (Ref) i mięśniowe (M17) zostają wprowadzone do kapsuły głowy przez niewielkie otwory w kutykuli lub złożonym oku. G) Drutowe elektrody zostają wprowadzone do mózgu w odpowiednich miejscach. H) Po unieruchomieniu elektrod za pomocą dwuskładnikowego silikonu, pszczoła nadal wykazuje PER i może być warunkowana (np. za pomocą wody z cukrem).
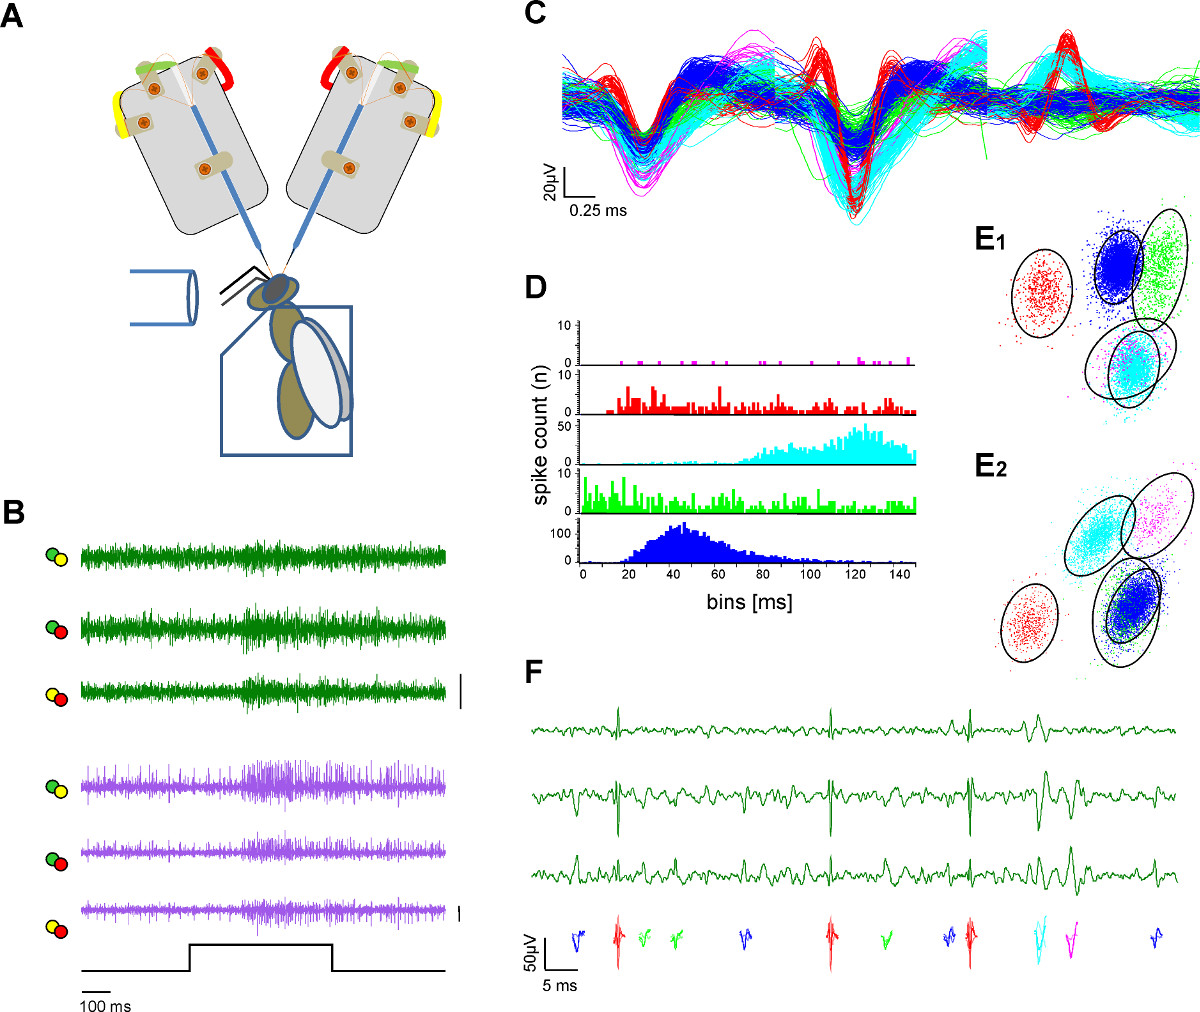
Rycina 3. Rejestracja zewnątrzkomórkowa w dwóch traktach neuronalnych i ekstrakcja pojedynczych jednostek (sortowanie impulsów). A) Schematyczny rysunek zestawu eksperymentalnego. Pszczoła jest unieruchomiona w uchwycie z pleksiglasu. Stymulacja zapachowa odbywa się za pomocą szklanej rurki. Dwa trzpienie elektrod rejestrują aktywność z odsłoniętego mózgu pszczoły. B) Jednoczesne rejestracje z PN l-ALT i m-ALT (ślady zielone i fioletowe) wykazujące odpowiedzi pobudzające w obu traktach na 500 msec stymulację zapachową roztworem miodu w wodzie o stężeniu 1:100 w temperaturze 33 °C. Każda naniesiona linia reprezentuje zróżnicowane kanały, zgodnie z kodowaniem kolorystycznym wyprowadzeń elektrod w A. Pasek skali: 50 µV. C) Po przeprowadzeniu procedur sortowania impulsów pojedyncze potencjały czynnościowe zostają posortowane i zakodowane kolorystycznie. Nałożenie posortowanych jednostek ilustruje separację przebiegów czasowych. D) Histogram odstępów między impulsami wskazuje jakość separacji posortowanych jednostek jako dowód prawidłowego sortowania impulsów. Należy zauważyć brak impulsów w okresie refrakcji jednostki. E) Dwa widoki (E1, E2) z klastrowania 3D posortowanych jednostek z wykorzystaniem analizy głównych składowych, co wskazuje na odległość posortowanych jednostek od siebie. Okręgi wskazują 2,5-krotną odległość Mahalanobisa, która odpowiada SD w przestrzeni i wskazuje na znaczące zróżnicowanie klastrów w przestrzeni głównych składowych F) Zakodowane kolorystycznie jednostki przedstawiają potencjały czynnościowe widoczne w powiększeniu trzech kanałów z rejestracji jednego traktu. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 4. Wizualizacja po rejestracji i rekonstrukcja 3D pozycji rejestracyjnej. A) Widok projekcji przekrojów ortogonalnych wzdłuż osi z z maksymalną intensywnością dopasowania dla przedniego i wstecznego wypełniania jednokłębuszkowych neuronów projekcyjnych rzutujących z AL do MB i LH. Wewnątrzkomórkowy znacznik Microruby (dekstran tetrametylorodaminowy) został wprowadzony do AL po eksperymentach rejestracyjnych. Obarwione kłębuszki wewnątrz AL potwierdzają prawidłowe barwienie PN. B) Widok projekcji przekrojów ortogonalnych wzdłuż osi z z maksymalną intensywnością dopasowania z barwienia dwóch elektrod znacznikiem Alexa hydrazide 488, wskazujący miejsce umieszczenia elektrod dla m-ALT (E1, strzałka) i l-ALT (E2, strzałka). Znacznik Alexa Hydrazide 488 migruje do tkanki otaczającej elektrodę i barwi miejsce jej wprowadzenia. Należy zauważyć, że wyraźne barwienie w AL jest artefaktem powierzchniowym. C) Rekonstrukcje 3D zbarwionych komórek docelowych (PN) oraz miejsca wprowadzenia elektrod z A, B (prawa strona) wraz ze schematycznym przeglądem systemu węchowego pszczoły miodnej (lewa strona) z zaznaczeniem przebiegu l- i m-ALT. Uwaga, przedstawiono jedynie drogi PN jednokłębuszkowych. AN: nerw czułkowy, AL: płat czułkowy, LH: róg boczny, MB: ciało grzybowate, E1, E2: miejsca wprowadzenia elektrod, m-ALT: przyśrodkowy trakt płata czułkowego, l-ALT: boczny trakt płata czułkowego, c: ogonowy, r: rostralny, m: przyśrodkowy, l: boczny. Kliknij tutaj, aby zobaczyć większą wersję tej ryciny.
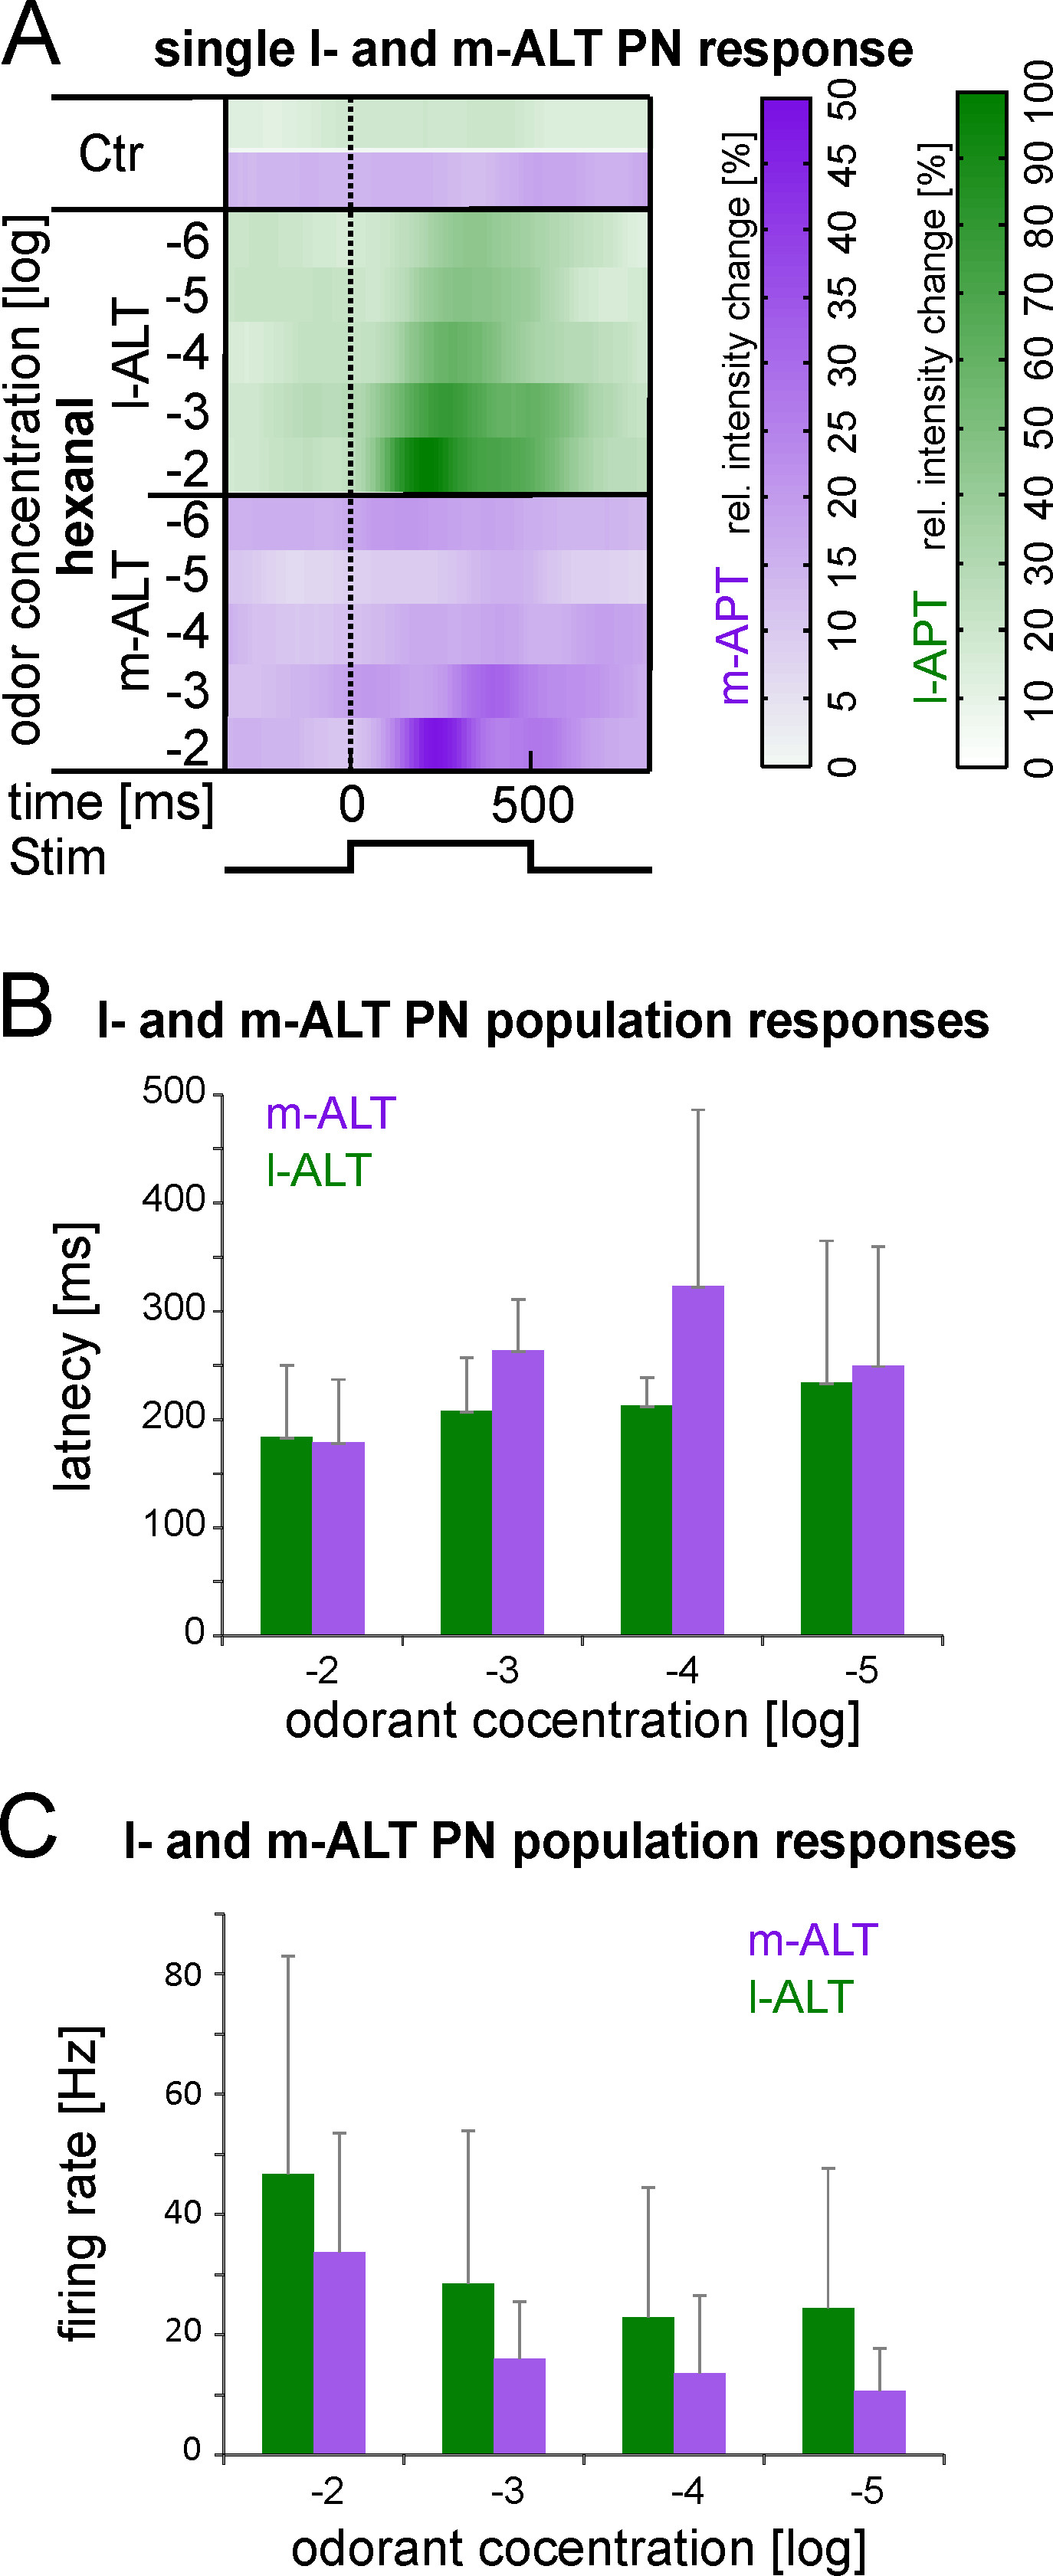
Rysunek 5. Przykład kodowania stężenia zapachu w obrębie podwójnej drogi węchowej. A) Wykresy ciepła ilustrują odpowiedź pojedynczego l-ALT (zielony) oraz pojedynczego m-ALT PN (fioletowy), zarejestrowaną jednocześnie u pojedynczej pszczoły miodnej w odpowiedzi na substancję zapachową heksanal przy zwiększających się stężeniach zapachu (od 1: 10-6 do 1:100). Każda linia stanowi średnią z dziesięciu prób stymulacji. Częstotliwość wyładowań przedstawiono jako względną zmianę intensywności, która stanowi częstotliwość wyładowań w stosunku do odjętej aktywności spontanicznej. B) Latencja odpowiedzi populacyjnej 11 neuronów projekcyjnych (PN) z traktu l-ALT i 13 PN z traktu m-ALT u 7 badanych pszczół. U każdej pszczoły rejestrowano jednocześnie PN z obu traktów. Latencja odpowiedzi populacyjnej wykazuje tendencję spadkową wraz ze wzrostem stężenia zapachu w PN z obu traktów. Początek odpowiedzi zapachowej w czułkach, wynoszący 99 ms, zarejestrowano za pomocą elektroantenogramów i odjęto go od latencji odpowiedzi PN. Należy zauważyć, że przy najniższych stężeniach odpowiedzi były zbyt słabe do pomiaru latencji, w związku z czym zostały wykluczone. C) Częstotliwość wyładowań odpowiedzi populacyjnej z tych samych PN, co w B. Wraz ze wzrostem stężenia zapachu wzrasta siła odpowiedzi. l-ALT wykazuje silniejszą odpowiedź. W B i C podano średnią oraz odchylenie standardowe (SD).
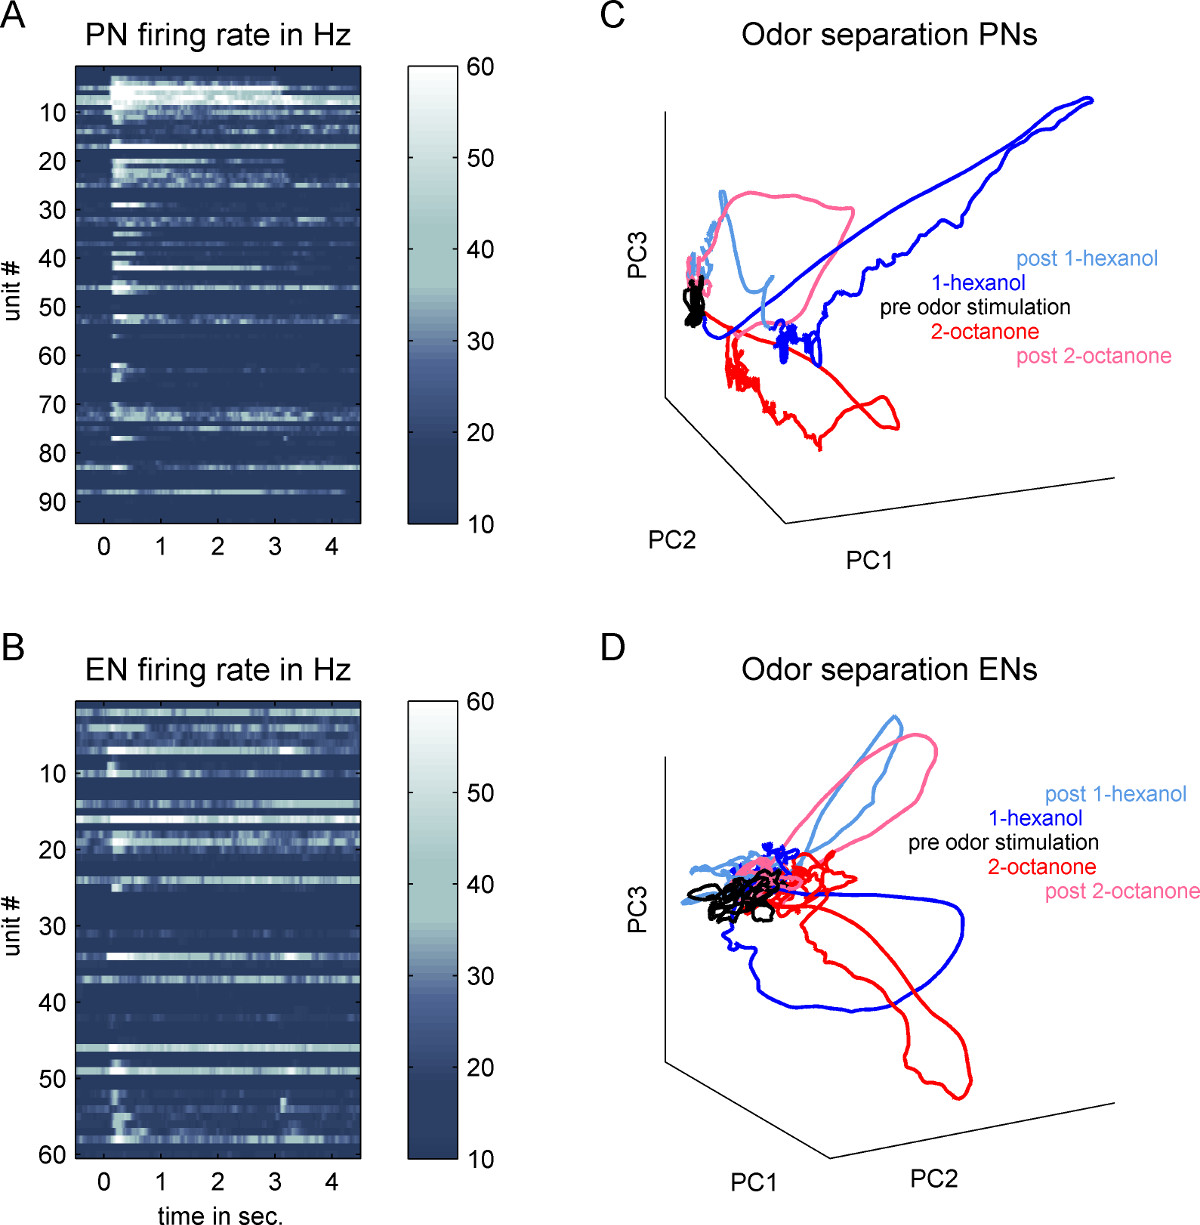
Rysunek 6. Porównanie aktywności populacji na dwóch kolejnych etapach przetwarzania w obrębie drogi węchowej pszczoły miodnej. Dane zarejestrowano u 20 zwierząt stymulowanych 1-heksanolem i 2-oktanonem. A) Każda linia reprezentuje średnią częstotliwość wyładowań jednego neuronu projekcyjnego (PN) zakodowaną kolorami fałszywymi, obliczoną dla 10 powtórzeń zapachu 1-heksanolu. Prezentacja zapachu rozpoczyna się w czasie 0 i trwa trzy sekundy. B) Przedstawia to samo co w A), ale dla zewnętrznych neuronów ciała grzybowatego (EN). Macierz pokazana w A) można traktować jako wektor populacyjny PN podczas stymulacji zapachowej 1-heksanolem. Obliczyliśmy analogiczny wektor populacyjny podczas stymulacji zapachowej 2-oktanonem i wykorzystaliśmy oba wektory w analizie głównych składowych (PCA) z zachowaniem wymiaru czasowego. C) Trzy pierwsze główne składowe (PC1, 2 i 3) zostały naniesione względem siebie, aby zilustrować separację zapachów w aktywności zespołu PN na wyjściu z płata czułkowego. Czas przed wystąpieniem zapachu oznaczono kolorem czarnym. Aktywność podczas trzech sekund stymulacji 1-heksanolem pokazano w kolorze niebieskim. Aktywność podczas stymulacji 2-oktanolem pokazano w kolorze czerwonym. Ponadto przedstawiono 1,5 sekundy aktywności po ustaniu zapachu 1-heksanolu (jasnoniebieski) i 2-oktanonu (różowy). Należy zauważyć, że na poziomie zespołu PN oba zapachy wywołują bardzo wyraźne trajektorie, które stabilizują się w „punkcie stałym” utrzymującym się dłużej niż cały okres stymulacji zapachowej. Dopiero po ustaniu zapachu trajektorie powracają do aktywności bazowej bez stymulacji. D) Tę samą analizę przeprowadzono na poziomie zespołu EN, reprezentującym aktywność na wyjściu z ciała grzybowatego. W porównaniu do aktywności PN, zapachy wywołują mniej wyraźne trajektorie. Ponadto nie obserwuje się „punktu stałego”. Trajektorie początkowo indukowane zapachem mieszają się z aktywnością bazową, mimo że zapach jest nadal obecny. Dopiero ustanie zapachu wywołało dodatkową trajektorię.
Film 1. Analiza czasowa trajektorii indukowanej zapachem po analizie głównych składowych wektora populacji PN (lewa strona) i wektora populacji EN (prawa strona; por. Rycina 6). Górne części zawierają trzy pierwsze składowe główne (PC1, 2 i 3) naniesione względem siebie. Dolne panele ilustrują przebieg PC1, 2 i 3 w czasie. Stymulację zapachem zaznaczono szarym paskiem. Wszystkie panele zostały zsynchronizowane. Należy zauważyć, że aktywność populacji EN rozpoczyna się nieco wcześniej niż aktywność populacji PN; zjawisko to wydaje się sprzeczne z intuicją, ale można je wyjaśnić łącznością i właściwościami zaangażowanych warstw, co zostało omówione wcześniej1.
Dyskusja
W artykule przedstawiono produkcję i zastosowanie specjalnie zaprojektowanych wielokanałowych mikroelektrod. Opisane elektrody nadają się do rejestrowania zarówno aktywności pojedynczej jednostki, jak i populacji, co jest szczególnie przydatne do pomiarów opóźnień i innych właściwości odpowiedzi czasowej różnych neuronów i różnych neuropils w obrębie jednej próbki (szczegóły patrz1,2,25). Dodatkowo pokazaliśmy, jak na stałe zaimplementować elektrody mikrodrutowe, aby umożliwić stabilne, długoterminowe zapisy u zachowujących się pszczół miodnych, które utrzymują się przez wiele godzin do kilku dni.
Zewnątrzkomórkowe nagrania wielojednostkowe stały się korzystnym narzędziem do osiągania wysokiej rozdzielczości czasowej w połączeniu z informacją przestrzenną. W naszym przypadku są to albo równoległe drogi neuronalne2, albo dwa różne neuropils1. Wiele neuronów może być rejestrowanych i analizowanych na poziomie pojedynczego neuronu równolegle i w wysokiej rozdzielczości czasowej. Zapisy wielojednostkowe zastosowano najpierw u ssaków38, a później także u owadów39-41. Znaczny postęp osiągnięto dzięki opracowaniu i udoskonaleniu zewnątrzkomórkowych technik zapisu wielokanałowego42,43. Obejmuje to na przykład opracowanie nowych elektrod44 lub nowatorskich algorytmów sortowania i grupowania spajków45. Ogólne metody zewnątrzkomórkowych technik zapisu wielojednostkowego są dobrze opisane46-48. Samodzielnie zbudowane elektrody pokazane na tym filmie można dodatkowo dostosować, dodając więcej mikrodrutów na elektrodę lub mikrodruty można skręcić, aby uzyskać mierzalne stałe odległości między końcówkami. Obie procedury prowadziłyby jednak do zmniejszenia elastyczności i zwiększenia grubości elektrody.
W porównaniu z sondami krzemowymi powszechnie stosowanymi do zapisów zewnątrzkomórkowych u znacznie większych owadów, takich jak jastrzębiowa, szarańcza i karaluch40,49–51 , opisane mikroelektrody drutowe są mniejsze, elastyczne i z łatwością radzą sobie z potencjalnymi ruchami mózgu, a zatem mogą być niezawodnie stosowane u małych owadów społecznych, takich jak pszczoły i mrówki, które wykazują znacznie szerszy repertuar behawioralny. Większość sond silikonowych ma struktury przypominające ostry trzpień, przecinające aksony i tkankę nerwową wzdłuż ich kanału wprowadzającego, podczas gdy opisane mikrodruty są okrągłe, elastyczne i mniejsze, a zatem są mniej szkodliwe dla otaczającej tkanki, co jest wyraźną zaletą, jeśli celem jest badanie długoterminowej plastyczności u nienaruszonego i zachowującego się zwierzęcia. Kolejną zaletą elektrod mikrodrutowych jest ich niski koszt produkcji i łatwa obsługa. Zamiast starannego czyszczenia drogiej sondy silikonowej, druty elektrod są świeżo cięte przed wprowadzeniem mózgu, dzięki czemu nie ma problemów z przekrwieniem. Ponadto możliwe jest użycie więcej niż jednej elektrody mikrodrutowej w tym samym preparacie, umieszczonej w różnych neurostosach1 lub drogach2 , jak pokazano tutaj. Takie podejście jest szczególnie korzystne do analizowania i porównywania aspektów czasowych, takich jak opóźnienia odpowiedzi i interakcje na różnych poziomach przetwarzania neuronowego.
Zdajemy sobie sprawę z faktu, że zarejestrowany sygnał zewnątrzkomórkowy nie odzwierciedla aktywności pojedynczej komórki jako takiej. Jest to zawsze związek aktywności napięciowej wokół końcówki elektrody. Aby wskazać źródło sygnału, zawsze obliczana jest różnica dwóch sąsiednich kanałów mikroprzewodowych w obrębie jednej elektrody. W związku z tym źródło sygnałów szczytowych używanych do wyodrębniania aktywności pojedynczej jednostki było zawsze bardzo blisko jednego lub drugiego kanału elektrody, co skutkowało łatwymi do odróżnienia przebiegami skoków. Sygnały z większej odległości, takie jak aktywność mięśni lub aktywność sąsiednich neuropils, docierają do obu elektrod w tym samym czasie, wywołując porównywalne kształty i amplitudy i zostaną odrzucone przez tę procedurę. Korzystając z techniki dopasowywania szablonów Spike2, jesteśmy bardzo pewni, że uzyskamy aktywność pojedynczej jednostki, która nie jest taka sama, ale bardzo zbliżona do aktywności pojedynczego neuronu. Jednak problemu sortowania kolców można uniknąć, stosując techniki rejestracji wewnątrzkomórkowej.
Zapisy pojedynczych komórek za pomocą ostrych elektrod lub pipet plastrowych pozwalają na dogłębną wiedzę na temat właściwości fizjologicznych pojedynczego neuronu. Jednak ze względu na mały rozmiar neuronów owadów i ich neurytów (np. mniej niż 1 μm dla PN pszczół miodnych 52) możliwe jest przeprowadzenie tylko krótkoterminowych zapisów. Co więcej, zapisy wewnątrzkomórkowe mogą być inwazyjne i mogą uszkodzić komórkę, co może być kolejnym powodem ograniczeń czasowych. Zapisy wewnątrzkomórkowe in vivo u owadów rzadko trwają dłużej niż godzinę. Okno czasowe, które było wystarczające dla pionierskiej pracyMartina Hammera 53 , który zarejestrował wewnątrzkomórkowy z pojedynczego zidentyfikowanego neuronu, brzusznego niesparowanego neuronu szczękowego #1 (VUMmx1). Mógł powiązać jego aktywność bezpośrednio ze ścieżką nagrody. Juliane Mauelshagen54 zarejestrowała wewnątrzkomórkowo aktywność zidentyfikowanego zewnętrznego neuronu ciała grzyba, neuronu zewnętrznego szypułki #1 (PE1) podczas warunkowania klasycznego. Ten sam neuron był w centrum zainteresowania Menzela i Manza55 , kiedy znaleźli LTP po elektrycznej stymulacji komórek Kenyona. Jednak Okada i współpracownicy56 mogli wykorzystać dobrze scharakteryzowany wewnątrzkomórkowo wzór skoków (podwójne i potrójne kolce) do identyfikacji PE1 podczas nagrań zewnątrzkomórkowych. W końcu połączenie obu metod, wewnątrzkomórkowych zapisów ze zidentyfikowanych neuronów i zewnątrzkomórkowych zapisów długoterminowych może być potężnym narzędziem dla przyszłych badań.
Jednak użycie ostrych elektrod do jednoczesnego rejestrowania wielu komórek (jednostek) na różnych poziomach przetwarzania przez wiele godzin do kilku dni w celu analizy ich czasowych relacji reakcji i/lub nawet zmian plastycznych jest prawie niemożliwe.
Dzięki pierwszym metodom obrazowania wapnia u pszczoły miodnej57,58 przy użyciu barwników wrażliwych na wapń, analiza przestrzennych wzorców reakcji na zapach była dostępna59-62. Jednak w wielu przypadkach barwniki wrażliwe na wapń muszą zostać wprowadzone do tkanki mózgowej za pomocą inwazyjnych manipulacji, które ponownie ograniczają długość życia pszczół i wewnętrzne właściwości analizowanych komórek. Problem ten został rozwiązany w innych organizmach modelowych, takich jak muszka owocowa, przy użyciu genetycznie wprowadzonych czujników wapnia63,64. Jednak ogólnie rzecz biorąc, czujniki wapnia mogą wprowadzać inne ograniczenia, ponieważ mogą działać jako wapniowe, które prawdopodobnie wpływają na czasowe właściwości reakcji zapachowych. Jednoczesne zapisy wewnątrzkomórkowe w połączeniu z obrazowaniem wapnia lub podejściami obliczeniowymi mogą udowodnić właściwą rozdzielczość czasową procesów obrazowania65,66. Jednak rozdzielczość czasowa samego procesu obrazowania jest raczej ograniczona. Systemy akwizycji optycznej zwykle wykorzystują obrazowanie CCD z rozdzielczością czasową 5-20 Hz 67, chociaż obrazowanie 2-fotonowe może być w stanie uzyskać szybsze sekwencje68. Jednak zwiększenie częstotliwości próbkowania zawsze idzie w parze ze spadkiem rozdzielczości przestrzennej. Ponadto wrażliwe na wapń barwniki stosowane u pszczół miodnych ulegają bieleniu, co również skraca czas pozyskiwania69.
W porównaniu z innymi technikami rejestracji fizjologicznej u owadów, nasze elastyczne, wielokanałowe elektrody mikrodrutowe zapewniają długotrwały dostęp do pojedynczej jednostki i aktywności neuronalnej populacji u zachowujących się pszczół.
Pokazaliśmy, jak używać dwóch z tych elektrod na różnych etapach przetwarzania u tego samego zwierzęcia, co ułatwia analizę aspektów kodowania czasowego między różnymi miejscami rejestracji. W zależności od problemu badawczego i modelu owada, podstawowa metoda budowy elektrod zaprezentowana tutaj jest łatwa do rozbudowy i/lub adaptacji. Na przykład można sobie wyobrazić użycie więcej niż trzech pojedynczych przewodów do produkcji elektrod wielokanałowych. Ponadto liczba miejsc rejestracji może być rozszerzona i możliwa jest obserwacja aspektów czasowych więcej niż dwóch dróg lub neuropilsów. Mamy nadzieję, że ta metoda zainspiruje wielu naukowców i pozytywnie przyczyni się do zrozumienia zaawansowanego przetwarzania neuronów w małych mózgach.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Autorzy chcieliby podziękować Isabelle Reus za stworzenie śledzenia strony wprowadzania elektrod, Tobiasowi Rosenbaumowi za programowanie LabView, Anneke Meyer za analizy danych i pomocne dyskusje. Dziękujemy Randolfowi Menzelowi za dyskusję i praktyczną pomoc na wczesnym etapie rozwoju elektrody. Ponadto dziękujemy Brianowi Smithowi za współpracę podoktorską z MS-B. Prace te były wspierane przez Deutsche Forschungsgemeinschaft (DFG, SPP 1392, Ro1177/5-2) na rzecz WR.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Olej parafinowy | Fluka | 76235 | |
| Zapachy | Sigma Aldrich | ||
| PBS | pH 7,2 | ||
| 4% Formaldehyd | ThermoScientific | 28908 | metanolu |
| Triton X | BioChemica | A1388 | |
| Salicylan metylu | Roth | 4529.1 | |
| Dekstran tetrametylorolodaminy, 10 000 MW (mikrorubin) | Invitrogen | D7162 | zachowaj ciemne |
| Alexa 488 hydrazyd | Invitrogen | A-10436 | keep dark |
| Alexa 568 hydrazyd | Invitrogen | A-10437 | keep dark |
| Bee Ringer Solution | patrz Brill et al.2 | ||
| Drut miedziany pokryty poliuretanem | Elektrisola | 15 µ m średnicy i Izolacja | |
| Wosk dentystyczny | Densply Detrey | 64103015S1 | umiarkowana temperatura topnienia |
| Wosk dentystyczny | Flexaponal | 124-202-00 | wosk niskotopliwy |
| KWIK SIl | WPI | 03L | |
| 18 Pin Socket | Conrad Electronic | 189634-62 | |
| Klej topliwy | Conrad Electronic | 827673 | |
| Igła do | Conrad Electronics | 830283 | 12 V |
| Końcówka lutownicza | Conrad Electronic | 531901 | |
| Glaselectrodes | WPI | 1B100F-3 | |
| Minutien Pins | Fine Science Tools | 26002-20 | V2A 0,2 x 12 mm |
| Przełączana scena czołowa | Tucer Davis Technologies | SH16 | |
| Moduł połączeniowy stacji czołowej | NPI | INT-03M | |
| Moduł wzmacniacza | NPI | PDA-2F | |
| Tablice akwizycji danych | National Instruments | NI-6123, Ni-6143 | |
| Oprogramowanie do akwizycji | National Instruments | Lab View 8.2 | niestandardowy projekt |
| Sortowanie kolców | CED | Spike 2 v7.11 | |
| Matlab | Mathworks | R2008B | |
| Mikromanipulator | Leitz | instrukcja | |
| AG-wires | WPI | AGT05100 | |
| Konfokalny laserowy mikroskop skaningowy | Leica | TCS SP2 AOBS | |
| AMIRA | Mercury Computer Systems | 2000-02-05 |
Bibliografia
- Strube-Bloss, M. F., Herrera-Valdez, M. a, Smith, B. H. Ensemble response in mushroom body output neurons of the honey bee outpaces spatiotemporal odor processing two synapses earlier in the antennal lobe. PLoS ONE. 7 (11), (2012).
- Brill, M. F., Rosenbaum, T., Reus, I., Kleineidam, C. J., Nawrot, M. P., Rössler, W. Parallel processing via a dual olfactory pathway in the honeybee. The Journal of neuroscience the official journal of the Society for Neuroscience. 33 (6), 2443-2456 (2013).
- Menzel, R. The honeybee as a model for understanding the basis of cognition. Nature Reviews Neuroscience. 13 (11), 758-768 (2012).
- Sandoz, J. Behavioral and neurophysiological study of olfactory perception and learning in honeybees. Frontiers in Systems Neuroscience. 5, (2011).
- Giurfa, M. Cognition with few neurons: higher-order learning in insects. Trends in Neurosciences. 36 (5), 1-10 (2013).
- Menzel, R., Giurfa, M. Cognitive architecture of a mini-brain: the honeybee. Trends in cognitive sciences. 5 (2), 62-71 (2001).
- Hildebrand, J. G., Shepherd, G. M. Mechanisms of olfactory discrimination: converging evidence for common principles across phyla. Annual Review of Neuroscience. 20, 595-631 (1997).
- Wilson, R. I., Mainen, Z. F. Early events in olfactory processing. Annu. Rev. Neurosci. 29, 163-201 (2006).
- Streinzer, M., Kelber, C., Pfabigan, S., Kleineidam, C. J., Spaethe, J. Sexual dimorphism in the olfactory system of a solitary and a eusocial bee species. The Journal of comparative neurology. 521 (12), (2013).
- Nishino, H., Nishikawa, M., Mizunami, M., Yokohari, F. Functional and topographic segregation of glomeruli revealed by local staining of antennal sensory neurons in the honeybee Apis mellifera. The Journal of comparative neurology. 515 (2), 161-180 (2009).
- Schneider, D. Elektrophysiologische Untersuchungen von Chemo- und Mechanorezeptoren der Antenne des Seidenspinners Bombyx mori L. Zeitschrift für Vergleichende Physiologie. 40 (1), 8-41 (1957).
- Menzel, R., Rybak, J. Antennal lobe of the honeybee. Handbook of brain microcircuits. , 427-432 (2011).
- Girardin, C. C., Kreissl, S., Galizia, C. G. Inhibitory connections in the honeybee antennal lobe are spatially patchy. Journal of neurophysiology. 109 (2), 332-343 (2013).
- Meyer, A., Galizia, C. G. Elemental and configural olfactory coding by antennal lobe neurons of the honeybee (Apis mellifera). Journal of comparative physiology. A, Neuroethology, sensory, neural, and behavioral. 198 (2), 159-171 (2012).
- Abel, R., Rybak, J., Menzel, R. Structure and response patterns of olfactory interneurons in the honeybee, Apis mellifera. The Journal of comparative neurology. 437 (3), 363-383 (2001).
- Kirschner, S., Kleineidam, C. J., Zube, C., Rybak, J., Grünewald, B., Rössler, W. Dual olfactory pathway in the honeybee, Apis mellifera. The Journal of comparative neurology. 499 (6), 933-952 (2006).
- Galizia, C. G., Rössler, W. Parallel olfactory systems in insects: anatomy and function. Annual review of entomology. 55 (August), 399-420 Forthcoming.
- Ito, K., Shinomiya, K., et al. A coordinated nomenclature system for the insect brain. Neuron. 81 (4), 755-765 (2014).
- Rybak, J. The digital honey bee brain atlas. Honeybee Neurobiology and Behavior. , 125-140 (2012).
- Rössler, W., Brill, M. F. Parallel processing in the honeybee olfactory pathway: structure, function, and evolution. Journal of comparative physiology. A, Neuroethology, sensory, neural, and behavioral. 199 (11), (2013).
- Mobbs, P. The brain of the honeybee Apis mellifera. I. The connections and spatial organization of the mushroom bodies. Philosophical transactions of the Royal Society of London. Series B, Biological. 298 (1091), 309-354 (1982).
- Strausfeld, N. J. Organization of the honey bee mushroom body: representation of the calyx within the vertical and gamma lobes. The Journal of comparative neurology. 450 (1), 4-33 (2002).
- Witthöft, W. Absolute Anzahl und Verteilung der Zellen im Hirn der Honigbiene. Zeitschrift für Morphologie der Tiere. 61 (1), 160-184 (1967).
- Rybak, J., Menzel, R. Anatomy of the mushroom bodies in the honey bee brain: the neuronal connections of the alpha-lobe. The Journal of Comparative Neurology. 465, 444-465 (1993).
- Strube-Bloss, M. F., Nawrot, M. P., Menzel, R. Mushroom body output neurons encode odor-reward associations. The Journal of neuroscience : the official journal of the Society for Neuroscience. (8), 3129-3140 (2011).
- Haddad, R., Lanjuin, A., Madisen, L., Zeng, H., Murthy, V. N., Uchida, N. Olfactory cortical neurons read out a relative time code in the olfactory bulb. Nature neuroscience. (May), 1-11 (2013).
- Martin, J. P., Beyerlein, A., et al. The neurobiology of insect olfaction: Sensory processing in a comparative context. Progress in neurobiology. 95 (3), 427-447 (2011).
- Nawrot, M. P. Dynamics of sensory processing in the dual olfactory pathway of the honeybee. Apidologie. 43 (3), 269-291 (2012).
- Farkhooi, F., Froese, A., Muller, E., Menzel, R., Nawrot, M. P. Cellular adaptation facilitates sparse and reliable coding in sensory pathways. PLoS computational biology. 9 (10), e1003251(2013).
- Saha, D., Leong, K., Katta, N., Raman, B. Multi-unit recording methods to characterize neural activity in the locust (Schistocerca americana) olfactory circuits. Journal of visualized experiments JoVE. (71), (2013).
- Saha, D., Leong, K., Li, C., Peterson, S., Siegel, G., Raman, B. A spatiotemporal coding mechanism for background-invariant odor recognition. Nature neuroscience. 16 (12), 1-13 (2013).
- Mizunami, M., Okada, R., Li, Y., Strausfeld, N. J. Mushroom Bodies of the Cockroach Activity and Identities of Neurons. Journal of Comparative Neurology. 519 (July), 501-519 (1998).
- Okada, R., Ikeda, J., Mizunami, M. Sensory responses and movement-related activities in extrinsic neurons of the cockroach mushroom bodies. Journal of Comparative Physiology A: Sensory, Neural, and Behavioral Physiology. 185 (2), 115-129 (1999).
- Haehnel, M., Froese, A., Menzel, R. In vivo Ca2+ imaging of mushroom body neurons during olfactory learning in the honey bee. Journal of visualized experiments JoVE. (30), (2009).
- Felsenberg, J., Gehring, K. B., Antemann, V., Eisenhardt, D. Behavioural pharmacology in classical conditioning of the proboscis extension response in honeybees (Apis mellifera). Journal of visualized experiments JoVE. (47), (2011).
- Rehder, V. Quantification of the honeybee’s proboscis reflex by electromyographic recordings. Journal of Insect Physiology. 33 (7), 501-507 (1987).
- Serrano, E., Nowotny, T., Levi, R., Smith, B. H., Huerta, R. Gain control network conditions in early sensory coding. PLoS computational biology. 9 (7), e1003133(2013).
- Hubel, D. H., Wiesel, T. N. Receptive fields and functional architecture of monkey striate cortex. The Journal of physiology. 195 (1), 215-243 (1968).
- Christensen, T. A., Pawlowski, V. M., Lei, H., Hildebrand, J. G. Multi-unit recordings reveal context-dependent modulation of synchrony in odor-specific neural ensembles. Nature neuroscience. 3 (9), 927-931 (2000).
- Byers, K. J. R. P., Sanders, E., Riffell, J. A. Identification of olfactory volatiles using gas chromatography-multi-unit recordings (GCMR) in the insect antennal lobe. Journal of visualized experiments JoVE. (72), e4381(2013).
- Perez-Orive, J., Mazor, O., Turner, G. C., Cassenaer, S., Wilson, R. I., Laurent, G. Oscillations and sparsening of odor representations in the mushroom body. Science. 297 (5580), 359-365 (2002).
- Stevenson, I. H., Kording, K. P. How advances in neural recording affect data analysis. Nature. 14 (2), 139-142 (2011).
- Buzsáki, G. Large-scale recording of neuronal ensembles. Nature neuroscience. 7 (5), 446-451 (2004).
- Viventi, J., Kim, D. -H., et al. Flexible, foldable, actively multiplexed, high-density electrode array for mapping brain activity in vivo. Nature neuroscience. 14 (12), 1599-1605 (2011).
- Pouzat, C., Mazor, O., Laurent, G. Using noise signature to optimize spike-sorting and to assess neuronal classification quality. Journal of neuroscience methods. 122 (1), 43-57 (2002).
- Lewicki, M. S. A review of methods for spike sorting: the detection and classification of neural action potentials. Network. 9 (4), R53-R78 (1998).
- Quian Quiroga, R., Panzeri, S. Extracting information from neuronal populations: information theory and decoding approaches). Nature reviews. Neuroscience. 10 (3), 173-185 (2009).
- Einevoll, G. T., Franke, F., Hagen, E., Pouzat, C., Harris, K. D. Towards reliable spike-train recordings from thousands of neurons with multielectrodes. Current opinion in neurobiology. 22 (1), 11-17 (2012).
- Riffell, J. a, Lei, H., Abrell, L., Hildebrand, J. G. Neural basis of a pollinator’s buffet: olfactory specialization and learning in Manduca sexta. Science. 164 (6), 877-892 (2013).
- Bender, J. a, Pollack, A. J., Ritzmann, R. E. Neural activity in the central complex of the insect brain is linked to locomotor changes. Current biology : CB. 20 (10), 921-926 (2010).
- Perez-Orive, J., Bazhenov, M., Laurent, G. Intrinsic and circuit properties favor coincidence detection for decoding oscillatory input. The Journal of neuroscience the official journal of the Society for Neuroscience. 24 (26), 6037-6047 (2004).
- Rybak, J. Die strukturelle Organisation der Pilzkörper und synaptische Konnektivität protocerebraler Interneuronen im Gehrin der Honigbiene, Apis mellifera.: eine licht- und elektronenmikroskopische Studie. , (1994).
- Hammer, M. An identified neuron mediates the unconditioned stimulus in associative olfactory learning in honeybees. Nature. 366, 59-63 (1993).
- Mauelshagen, J. Neural correlates of olfactory learning paradigms in an identified neuron in the honeybee brain. Journal of neurophysiology. 69, 609-625 (1993).
- Menzel, R., Manz, G. Neural plasticity of mushroom body-extrinsic neurons in the honeybee brain. The Journal of experimental biology. 208 (22), 4317-4332 (2005).
- Okada, R., Rybak, J., Manz, G., Menzel, R. Learning-related plasticity in PE1 and other mushroom body-extrinsic neurons in the honeybee brain). The Journal of neuroscience: the official journal of the Society for Neuroscience. 27 (43), 11736-11747 (2007).
- Joerges, J., Küttner, A., Galizia, C. G., Menzel, R. Representation of odours and odour mixtures visualized in the honeybee brain. Nature. 387, 285-288 (1997).
- Galizia, C. G., Joerges, J., Küttner, A., Faber, T., Menzel, R. A semi-in-vivo preparation for optical recording of the insect brain. Journal of neuroscience. 76 (1), 61-69 (1997).
- Galizia, C. G., Sachse, S., Rappert, A., Menzel, R. The glomerular code for odor representation is species specific in the honeybee Apis mellifera. Nature. 2 (5), 473-478 (1999).
- Sandoz, J. -C. Odour-evoked responses to queen pheromone components and to plant odours using optical imaging in the antennal lobe of the honey bee drone Apis mellifera L. The Journal of experimental biology. 209 (18), 3587-3598 (2006).
- Fernandez, P. C., Locatelli, F. F., Person-Rennell, N., Deleo, G., Smith, B. H. Associative conditioning tunes transient dynamics of early olfactory processing. The Journal of neuroscience the official journal of the Society for Neuroscience. 29 (33), 10191-10202 (2009).
- Locatelli, F. F., Fernandez, P. C., et al. Nonassociative plasticity alters competitive interactions among mixture components in early olfactory processing. European Journal of Neuroscience. 37 (1), (2013).
- Silbering, A. F., Bell, R., Galizia, C. G., Benton, R. Calcium imaging of odor-evoked responses in the Drosophila antennal lobe. Journal of visualized experiments JoVE. (61), 1-7 (2012).
- Strutz, A., Völler, T., Riemensperger, T., Fiala, A., Sachse, S. Calcium imaging of neural activity in the olfactory system of Drosophila. Genetically Encoded Functional Indicators. 72, 43-70 (2012).
- Galizia, C. G., Kimmerle, B. Physiological and morphological characterization of honeybee olfactory neurons combining electrophysiology, calcium imaging and confocal microscopy. Journal of Comparative Physiology A: Neuroethology, Sensory, Neural, and Behavioral Physiology. 190 (1), 21-38 (2004).
- Helmchen, F., Waters, J. Ca2+ imaging in the mammalian brain in vivo. European journal of pharmacology. 447 (2-3), 119-129 (2002).
- Stierle, J. S., Galizia, C. G., Szyszka, P. Millisecond stimulus onset-asynchrony enhances information about components in an odor mixture. Journal of Neuroscience. 33 (14), 6060-6069 (2013).
- Haase, A., Rigosi, E., et al. In-vivo two-photon imaging of the honey bee antennal lobe. Biomedical optics express. 2 (1), 131-138 (2010).
- Becker, P. L., Fay, F. S. Photobleaching of fura-2 and its effect on determination of calcium concentrations. The American journal of physiology. 253 (4 pt 1), C613-C618 (1987).
Przedruki i uprawnienia
