Pokazujemy budowę komór parowych z użyciem łatwo dostępnych materiałów, które jednocześnie mieszczą 6 klatek dla myszy. Dalej opisujemy ich zastosowanie w mysim modelu ekspozycji płodu na alkohol równoważnej we wszystkich 3 trymestrzech ciąży ludzkiej. Ten paradygmat eksponuje zwierzęta w czasie ciąży i w dniach poporodowych 1-12.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Budowa komór parowych używanych do wystawiania myszy na działanie alkoholu w czasie odpowiednika wszystkich trzech trymestrów rozwoju człowieka
W tym artykule
Podsumowanie
Streszczenie
Narażenie na alkohol podczas rozwoju może skutkować konstelacją nieprawidłowości morfologicznych i behawioralnych, które są zbiorczo znane jako Spektrum Płodowych Zaburzeń Alkoholowych (FASD). Na najcięższym końcu spektrum znajduje się alkoholowy zespół płodowy (FAS), charakteryzujący się opóźnieniem wzrostu, dysmorfologią twarzoczaszki i deficytami neurobehawioralnymi. Badania na modelach zwierzęcych, w tym gryzoniach, wyjaśniły wiele mechanizmów molekularnych i komórkowych zaangażowanych w patofizjologię FASD. Podawanie etanolu ciężarnym gryzoniom wykorzystano do modelowania narażenia ludzi w pierwszym i drugim trymestrze ciąży. Spożycie etanolu w trzecim trymestrze ciąży u ludzi zostało modelowane na noworodkach gryzoni. Jednak niewiele badań na gryzoniach charakteryzowało wpływ ekspozycji na etanol we wszystkich trzech trymestrze ciąży u ludzi, co jest wzorcem narażenia, który jest powszechny u kobiet w ciąży. Tutaj pokazujemy, jak zbudować komory parowe z łatwo dostępnych materiałów, z których każda może pomieścić do sześciu standardowych klatek dla myszy. Opisujemy paradygmat komory parowej, który można wykorzystać do modelowania narażenia na etanol, przy minimalnym obchodzeniu się z nim, we wszystkich trzech trymestrzech. Nasze badania pokazują, że ciężarne matki rozwinęły znaczną tolerancję metaboliczną na etanol. Jednak nowonarodzone myszy nie rozwinęły tolerancji metabolicznej, a liczba płodów, masa płodu, masa łożyska, liczba młodych/miot, liczba martwych szczeniąt/miot i masa szczeniąt nie miały znaczącego wpływu na ekspozycję na etanol. Ważną zaletą tego paradygmatu jest jego możliwość zastosowania w badaniach na genetycznie zmodyfikowanych myszach. Ponadto paradygmat ten minimalizuje obchodzenie się ze zwierzętami, co jest głównym błędem w badaniach nad alkoholem płodowym.
Wprowadzenie
Picie w czasie ciąży może zaszkodzić płodowi, powodując trwałe zmiany w wielu organach i układach, które znacznie obniżają jakość życia osób dotkniętych chorobą i ich rodzin. Szacuje się, że około 10-30% kobiet pije w czasie ciąży w USA, a 1-8% pije w napadach1,2. Zakres skutków wywołanych ekspozycją na etanol podczas rozwoju płodu jest zbiorczo znany jako spektrum płodowych zaburzeń alkoholowych (FASD). Ostatnie szacunki wskazują, że FASD są poważnym problemem zdrowia publicznego, którego częstość występowania w USA wynosi nawet 2-5%3. Cięższym objawem FASD jest alkoholowy zespół płodowy (FAS), który charakteryzuje się opóźnieniem wzrostu, nieprawidłowościami twarzoczaszki i deficytami neurobehawioralnymi, w tym trudnościami w uczeniu się. Częstość występowania FAS szacuje się na 0,2-0,7% w USA3. Obecnie dostępne metody leczenia FASD są tylko częściowo skuteczne, a rozwój skuteczniejszych metod leczenia jest ograniczony przez słabe zrozumienie komórkowych i molekularnych podstaw tego złożonego spektrum zaburzeń.
Dane z National Birth Defects Prevention Study (NBDPS) wskazują, że kobiety w ciąży najczęściej piją wpierwszym trymestrze ciąży, przed wykryciem ciąży, a następnie abstynencją w późniejszych etapach ciąży 2. NBDPS stwierdził również, że drugim najczęstszym wzorcem spożywania etanolu w czasie ciąży jest picie we wszystkich trymestrach ciąży2. Przyczyny tego obejmują brak świadomości na temat potencjalnie szkodliwych skutków ekspozycji płodu na etanol (nawet w niskich dawkach), ograniczony dostęp do opieki prenatalnej, pozytywną historię zaburzeń neuropsychiatrycznych oraz nadużywanie lub uzależnienie od etanolu4. Co ciekawe, NBDPS poinformował, że trzecim najczęstszym wzorcem konsumpcji była abstynencja w 1. i 2. trymestrze, a następnie konsumpcja w 3. trymestrze, kiedy często zakłada się, że picie jest bezpieczne, ponieważ organogeneza została w większości zakończona. Jednak3 trymestr jest okresem dużej podatności na uszkodzenia układu nerwowego wywołane etanolem, ponieważ jest to okres, w którym obwody neuronalne ulegają głębokiemu wyrafinowaniu2. NBDPS zidentyfikował również inne, rzadsze wzorce spożywania alkoholu, które występują w czasie ciąży, w tym spożycie w 1. i 2. trymestrze, a następnie abstynencję w 3. trymestrze2.
W próbie modelowania różnych wzorców konsumpcji etanolu obserwowanych u kobiet w ciąży, ustalono szereg rozwojowych paradygmatów ekspozycji na etanol przy użyciu różnych gatunków zwierząt, z których najczęściej występująszczury i myszy 5,6. Czas trwania ciąży u tych zwierząt trwa zwykle około 3 tygodni, co odpowiada 1. i 2. trymestrze ciąży u człowieka. W wielu badaniach na gryzoniach oceniano wpływ różnych dawek i wzorców narażenia na etanol w tym okresie. Przykłady metod często stosowanych do podawania etanolu ciężarnym myszom i szczurom obejmują podawanie w postaci diety płynnej7,8, dodawanie etanolu do wody pitnej9,10, dobrowolne picie roztworów słodzonych sacharyną11, zgłębnik żołądkowy12, wdychanie oparów13 oraz wstrzyknięcie podskórne lub dootrzewnowe14. Wyniki tych badań podsumowały kilka deficytów obserwowanych u ludzi z FASD, wykazując, że ekspozycja we wczesnych stadiach ciąży jest wystarczająca do uszkodzenia obwodów neuronalnych w mózgu (przegląd w 6,15).
Eksperymenty na gryzoniach wykazały również, że ekspozycja w okresie odpowiadającym3 trymestrze ciąży ludzkiej, co w przybliżeniu odpowiada pierwszym 1-2 tygodniom życia po urodzeniu u szczurów i myszy, może znacząco zaburzyć rozwój mózgu. Narażenie w tym okresie modelowano poprzez podawanie etanolu nowonarodzonym szczurom lub myszom. Etanol podawano tym zwierzętom różnymi metodami, w tym karmieniem przez gastrostomię u zwierząt hodowanych sztucznie wwieku 16-18 lat, intubacją żołądkową19, wstrzyknięciem podskórnym20 i wdychaniem oparów21,22. Badania te przekonująco wykazały, że gwałtowny wzrost mózgu jest okresem dużej podatności na rozwojowe skutki etanolu6.
Jak wspomniano powyżej, picie we wszystkich trymestrach ciąży jest powszechnym wzorcem konsumpcji etanolu u kobiet2. Jednak stosunkowo niewiele badań oceniało wpływ tego wzorca narażenia przy użyciu modeli zwierzęcych. W niektórych z tych badań wykorzystano duże zwierzęta, u których odpowiednik 3. trymestru występuje w okresie życia płodowego, a nie w okresie noworodkowym, jak w przypadku szczurów i myszy. Te modele zwierzęce obejmują naczelne23,24 i owce25-27. Jednak te modele zwierzęce nie były szeroko stosowane w badaniach nad FASD, częściowo ze względu na wysokie koszty i potrzebę specjalistycznych placówek opiekuńczych. Gryzonie są częściej używane do scharakteryzowania wpływu ekspozycji na etanol w całym trymestrze ciąży na rozwój płodu5. Świnki morskie okazały się szczególnie korzystne pod tym względem, biorąc pod uwagę ich rozległy rozwój prenatalny i podobieństwa w dojrzewaniu mózgu do ludzkiego28,29. W przypadku świnek morskich udało się scharakteryzować wpływ ekspozycji na etanol w życiu płodowym, który obejmuje równoważny okres rozwoju człowieka wtrzecim trymestrze ciąży. Stosunkowo wysoki koszt tych zwierząt, a także stosunkowo długi czas trwania ich ciąży (~67 dni), ograniczyły ich wykorzystanie do kilku laboratoriów zajmujących się badaniami nad FASD.
Ze względu na ich opłacalność i szerokie zastosowanie w badaniach biomedycznych, badacze wykorzystali szczury do modelowania ekspozycji na etanol we wszystkich trymestrzech ciąży. We wstępnych badaniach szczury były narażone w czasie ciąży na stosowanie diety płynnej, a następnie podawanie etanolu przez gastrostomię sztucznie hodowanym noworodkom (dni po urodzeniu (P) 1-10), co skutkowało szczytowym poziomem etanolu we krwi (BEC) u matek wynoszącym 0,08 g/dl, a u młodych 0,16 g/dl. Paradygmat ten spowodował długotrwałe zmiany w mielinizacji nerwu wzrokowego i zmniejszył liczbę włókien glejowych Bergmanna w móżdżkuo 30-32. Podobnie, Maier i współpracownicy, stosując sztuczne warunki chowu, podawali etanol ciężarnym samicom szczurów w sposób podobny do objadania się poprzez intubację żołądkową, a następnie podawanie noworodkom podczas części odpowiednika 3. trymestru (P4-9)33,34. Szczytowe BEC u matki i młodego wynosiły 0,3 g/dl zarówno w 20. dniu ciąży, jak i w P6. Ten paradygmat ekspozycji przez cały trymestr spowodował opóźnienie wzrostu, które było znacznie większe niż obserwowane u szczeniąt narażonych w wybranych okresach ciąży33. Ponadto szczury narażone na działanie etanolu w okresie odpowiadającym wszystkim trymestrzom ciąży wykazywały zmniejszenie liczby komórek Purkinjego móżdżku i ziarnistości, które było większe niż obserwowane u zwierząt narażonych w innych okresach34. W przypadku tego paradygmatu odnotowano również zmniejszenie liczby komórek hipokampa, ale efekty te wydają się być przede wszystkim konsekwencją ekspozycji w 3. trymestrze ciąży35. Metoda, która polega na podawaniu etanolu przez zgłębnik dożołądkowy zarówno ciężarnym szczurom, jak i nowonarodzonym myszom, została również wykorzystana do modelowania ekspozycji we wszystkich trymestrach36. Ta metoda, która dała BECs 0,13 g / dl u matek (17 dzień ciąży) i 0,24 g / dl u młodych P6, wywołała długotrwałe zmiany w poziomach neuroprzekaźników monoaminowych w hipokampie i podwzgórzu oraz zwiększoną ekspresję metylotransferaz DNA i metylowego białka wiążącego CpG 2 w hipokampie37,38. Stosując podobny paradygmat ekspozycji (BEC = 0,14-0,2 g/dl u matek i 0,2 g/dl u młodych), Gil-Mohapel i wsp.39 wykryło wzrost liczby nowych niedojrzałych neuronów w zakręcie zębatym dorosłych szczurów, które mogą stanowić mechanizm kompensacyjny w przypadku uszkodzenia neuronów wywołanego etanolem lub zmiany w dojrzewaniu neuronów urodzonych w wieku dorosłym. Badacze próbowali również modelować całe narażenie na etanol w trymestrze ciąży, wystawiając matki za pomocą diety płynnej lub picia wody zarówno w czasieciąży, jak i laktacji. Jednak użyteczność wystawiania młodych poprzez mleko matki jest ograniczona, ponieważ zwykle skutkuje to niskimi BEC szczeniąt (np. 0,002-0,05 g/dl; 41,42).
Myszy były również szeroko wykorzystywane do charakteryzowania skutków rozwojowej ekspozycji na etanol. Ten model zwierzęcy ma wiele zalet opisanych powyżej dla modelu zwierzęcego szczura, z dodatkową zaletą, że dostępnych jest wiele genetycznie zmodyfikowanych szczepów myszy5. Myszy zostały z powodzeniem wykorzystane do scharakteryzowania działania etanolu w1., 2. lub 3. trymestrze ciąży43,44. Jednak wpływ wszystkich trymestrów ekspozycji na te zwierzęta nie został dobrze scharakteryzowany, ponieważ technicznie trudniej jest wystawić myszy w czasie odpowiadającym wszystkim trymestrzom ciąży u ludzi. Na przykład sztuczny chów i zgłębnik żołądkowy, które były z powodzeniem stosowane u szczurów, wymagają bardziej specjalistycznych procedur u myszy45. Zgodnie z naszą najlepszą wiedzą, tylko w jednym badaniu do tej pory podjęto próbę zbadania wpływu całej ekspozycji na etanol w trymestrze ciąży przy użyciu myszy; Zwierzęta te były narażone na działanie roztworu etanolu w wodzie pitnej w czasie ciąży i laktacji46. U matek BEC wynosiły 0,07 g/dl, a BEC u młodych nie określono się, ale spodziewano się, że będą one stanowić ułamek tych u matek.
Tutaj opisujemy nowy model ekspozycji myszy na etanol przez cały trymestr, gdzie alkohol jest podawany zarówno ciężarnym matkom, jak i noworodkom za pomocą komór do inhalacji parowej. Komory parowe zostały zbudowane w oparciu o poprzedni projekt47. Zapewniamy szczegółową instrukcję, jak zbudować komory inhalacyjne i przeprowadzić procedury naświetlania. Dostarczamy również informacji na temat BEC, które można osiągnąć, oraz wpływu ekspozycji na przeżywalność i wzrost młodych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie procedury dotyczące zwierząt zostały zatwierdzone przez Instytucjonalny Komitet Opieki i Wykorzystania Zwierząt (Institutional Animal Care and Use Committee) Uniwersytetu Nowego Meksyku – Centrum Nauk o Zdrowiu (University of New Mexico-Health Sciences Center).
1. Montaż komory parowej
- Dotnij arkusze poliwęglanowe piłą tarczową lub wyrzynarką do wymiarów podanych w filmie dla górnego, dolnego, przedniego i tylnego panelu, paneli bocznych oraz drzwi (Rysunek 1 i Tabela 1).
- Za pomocą piły tarczowej lub wyrzynarki wytnij otwór o wysokości 8 cali i szerokości 16 cali na środku przedniego panelu.
- Wymierz i zaznacz miejsca na otwory pod zawias taśmowy na arkuszu poliwęglanowym o wymiarach 18 cali na 10 cali, który stanie się drzwiami komory.
- W drzwiach wywierć otwory z pogłębieniem za pomocą wiertła 5/16 cala, a następnie wiertłem 3/16 cala wywierć otwory pod śruby. Upewnij się, że otwory z pogłębieniami dla łebków śrub znajdują się od wewnętrznej strony drzwi.
- Przygotuj arkusze poliwęglanowe do spawania.
- Zmontuj przedni, tylny i boczne panele z panelem dolnym, używając kleju Weld-on #16.
- Uszczelnij wszelkie szczeliny między panelami za pomocą kleju Weld-on #16.
- Przymocuj górny panel za pomocą kleju Weld-on #16.
- Użyj ścisków sztangowych lub ciężkich podręczników, aby utrzymać wszystkie elementy na miejscu do czasu utwardzenia spoin.
- Przymocuj kawałek poliwęglanu o wymiarach 1 cal na 12 cali do przedniego panelu, 1 cal poniżej otworu, w celu montażu zawiasu drzwi.
- Odczekaj co najmniej 24 h aż klej Weld-on utwardzi się.
- Dotnij 2 odcinki rurki PEX o długości 12 cali oraz 1 odcinek rurki PEX o długości 1 cala.
- Wiertłem 5/16 cala wywierć otwór w każdej z 12-calowych rurek PEX w odległości około 1 do 2 cali od jednego z końców.
- Przymocuj dwie 12-calowe rurki PEX do trójnika 3/8 cala, tak aby otwory znajdowały się w części oddalonej od złącza.
- Zamknij otwarte końce rurek PEX za pomocą zaślepek 3/8 cala.
- Przymocuj zawias taśmowy do przedniego panelu i drzwi, używając śrub maszynowych i nakrętek 4-40.
- Traktując drzwi jako szablon, zaznacz otwory niezbędne do montażu zawiasu taśmowego na 1-calowym dystansie na przednim panelu komory.
- Wiertłem 3/16 cala wywierć otwory w przednim panelu pod zawias taśmowy.
- Przymocuj drzwi i zawias taśmowy do przedniego panelu za pomocą śrub maszynowych i nakrętek 4-40.
- Zmontuj zaciski szybkomocujące zgodnie z instrukcją w filmie, stosując podkładkę i nakrętkę po obu stronach ramienia bocznego.
- Zaznacz i wywierć otwory 3/16 cala pod zaciski szybkomocujące w przednim panelu, a następnie przymocuj zaciski za pomocą śrub maszynowych i nakrętek 4-40.
- Dodaj gumowe uszczelki profilowe 3/8 cala do wewnętrznej strony drzwi.
- Wiertłem do pogłębiania 5/8 cala wywierć otwór w centrum górnego panelu na wlot.
- Wywierć otwór 1/2 cala w dolnej części środka tylnego panelu na wylot.
- Zmontuj port wylotowy, przesuwając gwintowaną część adapterów przelotowych 3/8 cala przez tylną ściankę komory parowej w otworze wylotowym. Przymocuj nakrętkę od wewnątrz komory, aby utrzymać element na miejscu.
- Zdejmij folie ochronne z arkuszy poliwęglanowych.
- Przymocuj 1-calowy odcinek rurki PEX do trójnika i wprowadź rurkę PEX przez otwór w górnej części komory od wewnątrz.
- Przymocuj kolanko 90° 3/8 cala do górnej części 1-calowej rurki PEX od zewnątrz.
UWAGA: Wywierć otwór 1/2 cala w drzwiach i włóż w niego septę uszczelniającą 1/2 cala. - Powtórz kroki 1-22 dla komory kontrolnej z samym powietrzem.
2. Montaż stelaża i układu doprowadzania powietrza
- W przypadku umieszczania komór na wózku/stelażu wymienionym w liście materiałów, złożyć wózek zgodnie z instrukcją producenta.
- Używając zapasowych nakrętek i śrub, przymocować do stelaża kawałek poliwęglanu, który będzie służył do utrzymania regulatorów przepływu powietrza.
- W dowolnym miejscu na kawałku poliwęglanu zaznaczyć i wywiercić otwory o średnicy 3/4 cala dla regulatorów przepływu powietrza, a następnie przymocować regulatory za pomocą dołączonych nakrętek.
- Przymocować adaptery przelotowe o średnicy 3/8 cala do portów wlotowych i wylotowych regulatorów przepływu powietrza.
- Złożyć kolbę z etanolem, montując kamień napowietrzający, korek nr 8 oraz szybkozłączki przelotowe.
- Używając wężyka TYGON o średnicy 3/8 cala, połączyć regulatory przepływu z pompą powietrza i kolbą z etanolem, zgodnie z Rysunkiem 1.
- W przypadku komory z samym powietrzem, połączyć port wylotowy regulatora przepływu powietrza z wlotowym kolankiem 90° o średnicy 3/8 cala za pomocą wężyka TYGON o średnicy 3/8 cala, jak pokazano na Rysunku 1.
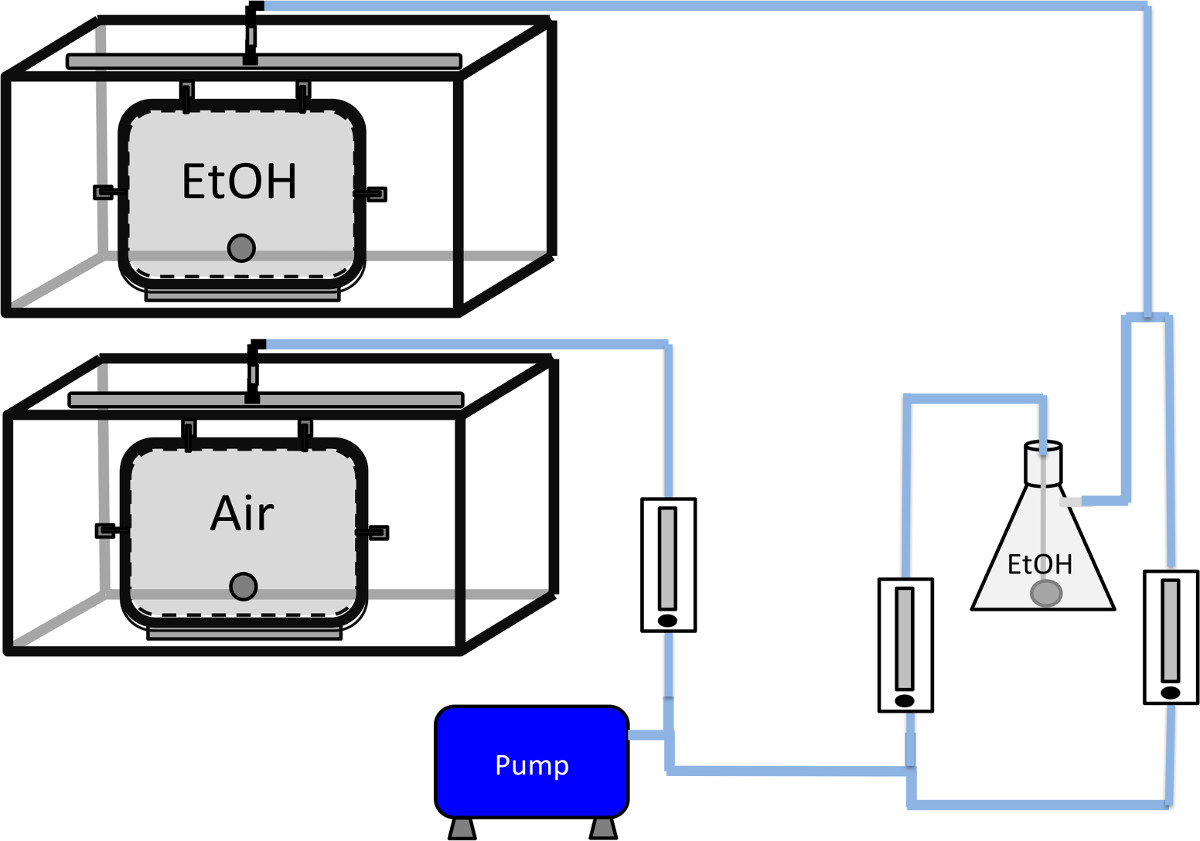
Rycina 1. Schematyczny przedstawienie konfiguracji komór parowych. Do pompy powietrza o niskim poziomie hałasu przymocowany jest łącznik w kształcie litery T. Jedna strona łącznika T jest bezpośrednio podłączona do regulatora przepływu powietrza dla komory zawierającej tylko powietrze. Druga strona jest ponownie rozdzielona i podłączona do dwóch różnych regulatorów przepływu, jednego dla powietrza i jednego dla etanolu. Komora z powietrzem jest podłączona bezpośrednio do regulatora, jak pokazano. W przypadku komory z oparami etanolu, jeden regulator przepływu jest podłączony do kamienia napowietrzającego zanurzonego w ciekłym etanolu w kolbie filtracyjnej. Boczne wyjście kolby filtracyjnej jest połączone z wyjściem regulatora powietrza, zgodnie ze wskazaniem. Połączone opary etanolu i powietrze są następnie kierowane do wlotu komory z oparami etanolu. Rurki wylotowe (niewidoczne na schemacie) są podłączone do wywiewni w pomieszczeniu.
3. Testowanie komór parowych i regulacja poziomów etanolu
- Do kolby ssawki wlej 600 ml etanolu o stężeniu 190 proof, włóż kamień napowietrzający i podłącz rurkę wlotową do bocznego wylotu kolby.
- Zamknij drzwi komory i włącz pompę powietrza.
- Ustaw regulatory przepływu powietrza tak, aby przez ciekły alkohol przepływało około połowy objętości powietrza, z którym jest on mieszany. Dostosuj przepływ samego powietrza do całkowitego przepływu mieszaniny alkoholu i powietrza w komorze etanolowej.
- Pozostaw komory do wyrównania stanu na co najmniej 30 min przed pomiarem stężenia etanolu w powietrzu.
- Zmierz stężenie etanolu w powietrzu, pobierając 5 ml powietrza za pomocą igły 18G i strzykawki 60 ml przez septum. Rozcieńcz tę próbkę powietrzem z otoczenia, odciągając tłok do objętości 60 ml (rozcieńczenie 1:12). Zmierz poziom etanolu w powietrzu za pomocą alkometru zgodnie z instrukcją producenta. Rozcieńczenie powietrza z komory jest konieczne, aby uzyskać poziom par alkoholu mieszczący się w zakresie detekcji alkometru.
UWAGA: W przypadku stosowania różnych poziomów ekspozycji na alkohol konieczne może być dostosowanie stopnia rozcieńczenia. - W punkcie wyjścia dostosuj regulatory przepływu powietrza w razie potrzeby, aby uzyskać stężenie alkoholu w powietrzu wynoszące około 4,5-5 g/dl (g odparowanego alkoholu na dl powietrza).
4. Hodowla zwierząt
- Grupowo utrzymuj samice myszy C578BL/6 (w wieku 2-3 miesięcy) przez co najmniej 1 tydzień w celu synchronizacji cykli jajnikowych.
- Indywidualnie utrzymuj samce myszy C57BL/6 (w wieku 2-5 miesięcy) przez co najmniej 2 tygodnie.
- Po synchronizacji umieść jedną samicę z jednym samcem na 5 dni, aby umożliwić kopulację.
- Po kopulacji usuń samce, a samice przenieś do oddzielnych klatek i umieść w komorach.
5. Przed- i ponatalna ekspozycja na opary etanolu
- Narażaj ciężarne samice na opary etanolu przez 4 hr dziennie, zaczynając od godziny 10:00 podczas cyklu świetlnego (światło od 6:00 do 18:00), z wyjątkiem dnia narodzin, aby zapobiec śmierci młodych.
- Waż samice w dniach gestacji (G) 5, G13-G14 oraz G18-G20 w celu monitorowania ciąży; ściółkę zmieniano w dniach ważenia samic, aby zminimalizować stres związany z manipulacją.
- Codziennie wymieniaj pokarm w grupach narażonych na etanol, aby uniknąć spożycia granulatów, które mogłyby wchłonąć etanol.
- W dniu narodzin nie poddawaj zwierząt ekspozycji. Po narodzinach narażaj samice i młode przez 4 hr dziennie, zaczynając od godziny 10:00, od P1 do P12.
- Waż młode w dniach P2, P8, P12 i P25 oraz wymieniaj ściółkę w dniach P8 i P12, aby zminimalizować dodatkowe manipulacje.
- Bezpośrednio po ostatniej ekspozycji (P12) przenieś klatki do standardowego pomieszczenia dla zwierząt.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rycina 2A pokazuje, że zarówno ciężarne myszy, jak i noworodkowe potomstwo były narażone na stosunkowo stabilne stężenia oparów etanolu w komorach. Stężenia te mieściły się w zakresie 4-6 g/dl. Rycina 2B przedstawia osiągnięte stężenia etanolu we krwi (BEC) u ciężarnych myszy w funkcji czasu. BEC mierzono przy użyciu standardowego testu opartego na dehydrogenazie alkoholowej48. W dniu G5 BEC szybko wzrosły do ~60 mM 2 h po rozpoczęciu ekspozycji i osiągnęły szczyt pod koniec 4...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu szczegółowo opisujemy metody budowy komór do inhalacji parowej. Materiały i narzędzia potrzebne do budowy komór są łatwo dostępne u wielu komercyjnych dostawców, a etapy budowy komór są stosunkowo proste. System, który tutaj opisujemy, nie zawiera żadnych liniowych zaworów zwrotnych, które zapobiegałyby przepływowi wstecznemu i mieszaniu. Nie byliśmy w stanie zmierzyć żadnego wykrywalnego etanolu w komorach powietrznych, co sugeruje, że nie mamy żadnego mieszania ani cofania się etanolu do komór tylko powie...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Wspierane przez granty National Institutes of Health R01-AA015614, R01-AA014973, T32-AA014127 i K12-GM088021. Autorzy dziękują Samancie L. Blomquist za pomoc techniczną oraz doktorom Kevinowi Caldwellowi i Donaldowi Partridge'owi za krytyczną ocenę manuskryptu i filmu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Poliwęglan 1/4" przezroczysty 48" x 24" | McMaster-Carr | 8574K23 | 10 |
| Uszczelka gumowa z pianki 3/8 "szer. x 7/32" wys. | McMaster-Carr | 93085K67 | 10 ft |
| Weld-on #16 | McMaster-Carr | 7515A11 | 3 |
| Zawias fortepianowy 12" długi | McMaster-Carr | 1658A11 | 2 x 1 ft |
| Docisk dociskowy standard | McMaster-Carr | 5126A26 | 8 |
| Rurka PEX 1/2" | McMaster-Carr | 51275K88 | 10 ft |
| Łącznik trójnika kolczastego () Pkg 10 | McMaster-Carr | 5463K608 | 1 |
| Złączka z zadziorem () Pkg 10 | McMaster-Carr | 5462K79 | 1 |
| Kolanko kolczaste (czarne) Zestaw 10 | McMaster-Carr | 5463K596 | 1 |
| Adaptery 3/8" Przewlekane, rura do rury gwintowanej | McMaster-Carr | 5463K851 | 1 |
| Phillips Śruba maszynowa 4-40 | McMaster-Carr | 91772A112 | 1 |
| Śruba maszynowa nakrętka sześciokątna 4-40 | McMaster-Carr | 90480A005 | 1 |
| Przepływomierz panelowy 2-20 | McMaster-Carr | 41945K76 | |
| 3 KOLBA, FILTR 1 000 ml 6/OPAKOWANIE | VWR | 89001-800 | cyfra arabska |
| Precyzyjna uszczelka Septa | VWR | 89084-490 | 1 |
| VWR gumowy korek #8 1-otworowy | VWR | 59581-367 | 1 |
| DĘTKA TYGON R3603 3/8X9/16 50'VWR | 89068-556 | 1 | |
| DĘTKA TYGON R3603 1/4X11/16 50'VWR | 89068-502 | 1 | |
| Kamień napowietrzający P2120 | VWR | 32573-007 | 1 |
| 3/8" Trójniki Pk 20 | VWR | 46600-060 | 1 |
| Rozłączniki VWR stożkowe Pk 10 | VWR | 46600-110 | 1 |
| 3/8 Złącze liniowe z zaworem | zaworem do węży Colder Products Company | HFCD17612 | 1 |
| Pompa powietrza o średniej wydajności | LMI Producenci | DB60L | 1 |
| Regały druciane Nexelate 36"W X 24"D X 63"H | Globalna T9A990135 przemysłowa | 1 | |
| Zestaw kółek trzpieniowych (4) 5-calowych kół poliuretanowych | Global industrial | T9A500591 | 1 |
Bibliografia
- Centers for Disease Control and Prevention (CDC). World Health Organization Who. Alcohol use and binge drinking among women of childbearing age--United States. MMWR Morb Mortal Wkly Rep. 61 (28), 534-538 (2012).
- Ethen, M. K., et al. Alcohol consumption by women before and during pregnancy. Matern Child Health J. 13, 274-285 (2009).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15, 176-192 (2009).
- Wendell, A. D. Overview and epidemiology of substance abuse in pregnancy. Clin Obstet Gynecol. 56, 91-96 (2013).
- Cudd, T. A. Animal model systems for the study of alcohol teratology. Exp Biol Med (Maywood. 230, 389-393 (2005).
- Valenzuela, C. F., Morton, R. A., Diaz, M. R., Topper, L. Does moderate drinking harm the fetal brain? Insights from animal models). Trends Neurosci. 35, 284-292 (2012).
- Sliwowska, J. H., Song, H. J., Bodnar, T., Weinberg, J. Prenatal Alcohol Exposure Results in Long-Term Serotonin Neuron Deficits in Female Rats: Modulatory Role of Ovarian Steroids. Alcohol Clin. Exp. Res. 10, (2013).
- Sutherland, R. J., McDonald, R. J., Savage, D. D. Prenatal exposure to moderate levels of ethanol can have long-lasting effects on hippocampal synaptic plasticity in adult offspring. Hippocampus. 7, 232-238 (1997).
- Naassila, M., Daoust, M. Effect of prenatal and postnatal ethanol exposure on the developmental profile of mRNAs encoding NMDA receptor subunits in rat hippocampus. J Neurochem. 80, 850-860 (2002).
- Servais, L., et al. Purkinje cell dysfunction and alteration of long-term synaptic plasticity in fetal alcohol syndrome. Proc Natl Acad Sci U S A. 104, 9858-9863 (2007).
- Brady, M. L., Allan, A. M., Caldwell, K. K. A limited access mouse model of prenatal alcohol exposure that produces long-lasting deficits in hippocampal-dependent learning and memory. Alcohol Clin Exp Res. 36, 457-466 (2012).
- Bake, S., Tingling, J. D., Miranda, R. C. Ethanol exposure during pregnancy persistently attenuates cranially directed blood flow in the developing fetus: evidence from ultrasound imaging in a murine second trimester equivalent model. Alcohol Clin Exp Res. 36, 748-758 (2012).
- Cuzon, V. C., Yeh, P. W., Yanagawa, Y., Obata, K., Yeh, H. H. Ethanol consumption during early pregnancy alters the disposition of tangentially migrating GABAergic interneurons in the fetal cortex. J Neurosci. 28, 1854-1864 (2008).
- Godin, E. A., et al. Magnetic resonance microscopy defines ethanol-induced brain abnormalities in prenatal mice: effects of acute insult on gestational day 7. Alcohol Clin Exp Res. 34, 98-111 (2010).
- Gil-Mohapel, J., Boehme, F., Kainer, L., Christie, B. R. Hippocampal cell loss and neurogenesis after fetal alcohol exposure: insights from different rodent models. Brain Res Rev. 64, 283-303 (2010).
- Diaz, J., Samson, H. H. Impaired brain growth in neonatal rats exposed to ethanol. Science. 208, 751-753 (1980).
- Stanton, M. E., Goodlett, C. R. Neonatal ethanol exposure impairs eyeblink conditioning in weanling rats. Alcohol Clin Exp Res. 22, 270-275 (1998).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1, 213-222 (1984).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning at short and long CS-US intervals in rats. Dev Psychobiol. 49, 589-605 (2007).
- Ikonomidou, C., et al. Ethanol-induced apoptotic neurodegeneration and fetal alcohol syndrome. Science. 287, 1056-1060 (2000).
- Heaton, M. B., Paiva, M., Madorsky, I., Siler-Marsiglio, K., Shaw, G. Effect of bax deletion on ethanol sensitivity in the neonatal rat cerebellum. J Neurobiol. 66, 95-101 (2006).
- Ryabinin, A. E., Cole, M., Bloom, F. E., Wilson, M. C. Exposure of neonatal rats to alcohol by vapor inhalation demonstrates specificity of microcephaly and Purkinje cell loss but not astrogliosis. Alcohol Clin Exp Res. 19, 784-791 (1995).
- Kraemer, G. W., Moore, C. F., Newman, T. K., Barr, C. S., Schneider, M. L. Moderate level fetal alcohol exposure and serotonin transporter gene promoter polymorphism affect neonatal temperament and limbic-hypothalamic-pituitary-adrenal axis regulation in monkeys. Biol Psychiatry. 63, 317-324 (2008).
- Schneider, M. L., et al. Moderate-level prenatal alcohol exposure alters striatal dopamine system function in rhesus monkeys. Alcohol Clin Exp Res. 29, 1685-1697 (2005).
- Ramadoss, J., Hogan, H. A., Given, J. C., West, J. R., Cudd, T. A. Binge alcohol exposure during all three trimesters alters bone strength and growth in fetal sheep. Alcohol. 38, 185-192 (2006).
- Ramadoss, J., Lunde, E. R., Pina, K. B., Chen, W. J., Cudd, T. A. All three trimester binge alcohol exposure causes fetal cerebellar purkinje cell loss in the presence of maternal hypercapnea, acidemia, and normoxemia: ovine model. Alcohol Clin Exp Res. 31, 1252-1258 (2007).
- Ramadoss, J., Tress, U., Chen, W. J., Cudd, T. A. Maternal adrenocorticotropin, cortisol, and thyroid hormone responses to all three-trimester equivalent repeated binge alcohol exposure: ovine model. Alcohol. 42, 199-205 (2008).
- Byrnes, M. L., Reynolds, J. N., Brien, J. F. Brain growth spurt-prenatal ethanol exposure and the guinea pig hippocampal glutamate signaling system. Neurotoxicol Teratol. 25, 303-310 (2003).
- Catlin, M. C., Abdollah, S., Brien, J. F. Dose-dependent effects of prenatal ethanol exposure in the guinea pig. Alcohol. 10, 109-115 (1993).
- Phillips, D. E., Krueger, S. K. Effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on glial cell development in rat optic nerve. Int J Dev Neurosci. 10, 197-206 (1992).
- Phillips, D. E., Krueger, S. K., Rydquist, J. E. S. hort- Short- and long-term effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on the development of myelin and axons in rat optic nerve. Int J Dev Neurosci. 9, 631-647 (1991).
- Shetty, A. K., Burrows, R. C., Wall, K. A., Phillips, D. E. Combined pre- and postnatal ethanol exposure alters the development of Bergmann glia in rat cerebellum. Int J Dev Neurosci. 12, 641-649 (1994).
- Maier, S. E., Chen, W. J., Miller, J. A., West, J. R. Fetal alcohol exposure and temporal vulnerability regional differences in alcohol-induced microencephaly as a function of the timing of binge-like alcohol exposure during rat brain development. Alcohol Clin Exp Res. 21, 1418-1428 (1997).
- Maier, S. E., Miller, J. A., Blackwell, J. M., West, J. R. Fetal alcohol exposure and temporal vulnerability: regional differences in cell loss as a function of the timing of binge-like alcohol exposure during brain development. Alcohol Clin Exp Res. 23, 726-734 (1999).
- Livy, D. J., Miller, E. K., Maier, S. E., West, J. R. Fetal alcohol exposure and temporal vulnerability: effects of binge-like alcohol exposure on the developing rat hippocampus. Neurotoxicol Teratol. 25, 447-458 (2003).
- Kelly, S. J., Lawrence, C. R. Intragastric intubation of alcohol during the perinatal period. Methods Mol Biol. 447, 101-110 (2008).
- Perkins, A., Lehmann, C., Lawrence, R. C., Kelly, S. J. Alcohol exposure during development: Impact on the epigenome. Int J Dev Neurosci. 31, 391-397 (2013).
- Tran, T. D., Kelly, S. J. Alterations in hippocampal and hypothalamic monoaminergic neurotransmitter systems after alcohol exposure during all three trimester equivalents in adult rats. J Neural Transm. 106, 773-786 (1999).
- Gil-Mohapel, J., et al. Altered adult hippocampal neuronal maturation in a rat model of fetal alcohol syndrome. Brain Res. 1384, 29-41 (2011).
- Popovic, M., Caballero-Bleda, M., Guerri, C. Adult rat's offspring of alcoholic mothers are impaired on spatial learning and object recognition in the Can test. Behav Brain Res. 174, 101-111 (2006).
- Guerri, C., Sanchis, R. Alcohol and acetaldehyde in rat's milk following ethanol administration. Life Sci. 38, 1543-1556 (1986).
- Matta, S. G., Elberger, A. J. Combined exposure to nicotine and ethanol throughout full gestation results in enhanced acquisition of nicotine self-administration in young adult rat offspring. Psychopharmacology (Berl. 193, 199-213 (2007).
- Olney, J. W. Fetal alcohol syndrome at the cellular level). Addict Biol. 9, 137-149 (2004).
- Sulik, K. K. Genesis of alcohol-induced craniofacial dysmorphism. Exp Biol Med (Maywood). 230, 366-375 (2005).
- Lewis, S. M., et al. Modifying a displacement pump for oral gavage dosing of solution and suspension preparations to adult and neonatal mice). Lab Anim (NY). 39, 149-154 (2010).
- Cebolla, A. M., et al. Effects of maternal alcohol consumption during breastfeeding on motor and cerebellar Purkinje cells behavior in mice. Neurosci Lett. 455, 4-7 (2009).
- Becker, H. C., Hale, R. L. Repeated episodes of ethanol withdrawal potentiate the severity of subsequent withdrawal seizures: an animal model of alcohol withdrawal "kindling". Alcohol Clin. Exp. Res. 17, 94-98 (1993).
- Galindo, R., Valenzuela, C. F. Immature hippocampal neuronal networks do not develop tolerance to the excitatory actions of ethanol. Alcohol. 40, 111-118 (2006).
- Workman, A. D., Charvet, C. J., Clancy, B., Darlington, R. B., Finlay, B. L. Modeling transformations of neurodevelopmental sequences across mammalian species. J Neurosci. 33, 7368-7383 (2013).
- Becker, H. C., Diaz-Granados, J. L., Weathersby, R. T. Repeated ethanol withdrawal experience increases the severity and duration of subsequent withdrawal seizures in mice. Alcohol. 14, 319-326 (1997).
- Ukita, K., Fukui, Y., Shiota, K. Effects of prenatal alcohol exposure in mice: influence of an ADH inhibitor and a chronic inhalation study. Reprod Toxicol. 7, 273-281 (1993).
- Varma, P. K., Persaud, T. V. Influence of pyrazole, an inhibitor of alcohol dehydrogenase on the prenatal toxicity of ethanol in the rat. Res Commun Chem Pathol Pharmacol. 26, 65-73 (1979).
- Balcombe, J. P., Barnard, N. D., Sandusky, C. Laboratory routines cause animal stress. Contemp Top Lab Anim Sci. 43, 42-51 (2004).
- Arias, C., Molina, J. C., Mlewski, E. C., Pautassi, R. M., Spear, N. Acute sensitivity and acute tolerance to ethanol in preweanling rats with or without prenatal experience with the drug. Pharmacol Biochem Behav. 89, 608-622 (2008).
- Nizhnikov, M. E., Molina, J. C., Varlinskaya, E. I., Spear, N. E. Prenatal ethanol exposure increases ethanol reinforcement in neonatal rats. Alcohol Clin Exp Res. 30, 34-45 (2006).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
Komory do inhalacji par alkoholumodel płodowego zespołu alkoholowego u myszyparadygmat ekspozycji na etanolkonstrukcja komory z poliwęglanusystem regulacji przepływu powietrzaekspozycja ciężarnych myszyekspozycja noworodkowych myszypomiar zawartości alkoholu we krwiuszczelnianie za pomocą zacisków przełączalnychporty wlotowe i wylotowe
