Droga korowo-rdzeniowa, jeden z głównych dróg sensomotorycznych, może być jednostronnie uszkodzony w pniu mózgu gryzonia w celu przetestowania terapii indukujących neuroplastyczność dla ośrodkowego układu nerwowego. Ten zabieg chirurgiczny ("piramidotomia") i oceny pooperacyjne są opisane w niniejszym protokole.
Artykuł metodologiczny
Jednostronna piramidotomia drogi korowo-rdzeniowej u szczurów w celu oceny terapii indukujących neuroplastyczność
W tym artykule
Podsumowanie
Streszczenie
Droga korowo-rdzeniowa (CST) może być całkowicie jednostronnie przerwana w piramidach rdzeniowych pnia mózgu gryzonia. CST to układ ruchowy, który ma ogromne znaczenie dla kontroli dystalnych mięśni u ludzi i, w mniejszym stopniu, u gryzoni. Jednostronne przecięcie jednej piramidy powoduje utratę unerwienia rdzenia kręgowego CST, głównie po przeciwnej stronie rdzenia kręgowego, co prowadzi do przejściowej niepełnosprawności ruchowej kończyn przednich i trwałej utraty zręczności. Projekcje ipsilateralne w przewodzie korowo-rdzeniowym są niewielkie. Udoskonaliliśmy naszą metodę chirurgiczną, aby zwiększyć szanse na całkowite usunięcie zmiany. Opisujemy opiekę pooperacyjną. Deficyty w teście sięgania po śrut schodów Montoya i pokazanym tutaj teście drabiny poziomej są wykrywane do 8 tygodni po urazie. Braki w teście chowu cylindrów są wykrywane tylko przejściowo. W związku z tym test butli może być odpowiedni tylko do wykrywania krótkotrwałego odzysku. Pokazujemy, w jaki sposób elektrofizjologicznie i anatomicznie można oceniać zmiany chorobowe i plastyczne. Opisujemy również, jak analizować włókna z nieuszkodzonego CST kiełkujące w poprzek linii środkowej do obszarów ubogich. Uzyskanie >90% całkowitych zmian chorobowych jest trudne ze względu na bliskość tętnicy podstawnej w rdzeniu przedłużonym, a wskaźniki przeżycia mogą być niskie. Alternatywne podejścia chirurgiczne i testy behawioralne są opisane w tym protokole. Model piramidotomii jest dobrym narzędziem do oceny zabiegów indukujących neuroplastyczność, które zwiększają kiełkowanie nienaruszonych włókien po urazie.
Wprowadzenie
Przewód korowo-rdzeniowy (CST) jest jednym z głównych węzłów motorycznych w ludzkim rdzeniu kręgowym. Uszkodzenie tego przewodu po urazie rdzenia kręgowego powoduje znaczną utratę sprawności. CST jest szczególnie ważny dla ruchów motorycznych u ludzi, takich jak ruchy palców i kontrola mięśni dystalnych. Występuje również u gryzoni, chociaż jego anatomiczne położenie w rdzeniu kręgowym jest inne niż u ludzi, a uszkodzenia CST są mniej upośledzające 1-4.
Jeden model in vivo uszkodzenia CST obejmuje jednostronną piramidotomię, gdzie jedna piramida w brzusznym pniu mózgu jest cięta rostralnie do dekusacji (Rysunek 1). Piramidy są wyraźną cechą anatomiczną po brzusznej stronie rdzenia przedłużonego, przez którą przebiega CST przed odklejeniem. U szczurów większość włókien (około 95%) odrywa się na ogonowym końcu rdzenia, a następnie znajduje się w grzbietowej części przyśrodkowej rdzenia kręgowego. Jednak około 10% odtłuszczonych włókien biegnie w kolumnach grzbietowo-bocznych. Pozostałe ~5% włókien pozostaje nieskrzyżowane po stronie ipsilateralnej i przemieszcza się w brzusznej części przyśrodkowej 5,6. Po piramidotomii rdzeń kręgowy traci swój bezpośredni wkład z przeciwległego CST (ryc. 1).
Model piramidotomii jest szczególnie dobry do testowania odpowiedzi nienaruszonych włókien nieuszkodzonego CST na leczenie. Pozwala na ocenę plastyczności i kiełkowania nienaruszonych włókien w poprzek linii środkowej rdzenia kręgowego, które unerwiają obszary odnerwione. Zaobserwowano, że drogi korowo-rdzeniowe znacznie kiełkują w modelach urazów kręgosłupa i pośredniczą, zwłaszcza w regeneracji kończyn przednich 7-10. Leczenie może mieć na celu poprawę regeneracji kończyn przednich. Skuteczność terapii można sprawdzić za pomocą oceny zachowania, technik śledzenia anatomicznego drogi moczowej i końcowych eksperymentów elektrofizjologicznych 3,11,12.
Zaletą w porównaniu do większości innych przedklinicznych modeli urazów kręgosłupa jest to, że dotyczy to konkretnie jednego odcinka w porównaniu do innych urazów kręgosłupa, często dotykając wielu odcinków. Tylko jeden odcinek w wyraźnym, powierzchownym położeniu anatomicznym jest uszkodzony. Kolejną zaletą jest to, że piramidotomia jest powtarzalnym modelem urazu. Jest to odpowiednie źródło in vivo dla badaczy do testowania wpływu potencjalnych terapii indukujących neuroplastyczność, które mają na celu odzyskanie funkcji motorycznych po urazach lub zaburzeniach wpływających na układ ruchowy 13,14.
Protokół
Oświadczenie etyczne: Wszystkie procedury były zgodne z wytycznymi brytyjskiego Ministerstwa Spraw Wewnętrznych i Ustawy o Zwierzętach (Procedury Naukowe) z 1986 roku.
1. Chirurgia i kontuzja
UWAGA: Używanie szczurów cięższych niż 220 g może pomóc w rekonwalescencji pooperacyjnej, jeśli chirurg stwierdzi, że zwierzęta często tracą więcej niż 10% swojej przedoperacyjnej masy ciała.
- Przed zabiegiem chirurgicznym należy przebadać zwierzęta pod kątem preferencji dotyczących przedniej łapy za pomocą testu odchowu cylindra 15 lub testu staicase Montoya 24. Najlepiej przeciąć piramidę/ CST odpowiadającą dominującej łapie przedniej.
UWAGA: Na dwa dni przed zabiegiem umieść w klatkach następujące przedmioty, aby szczury zapoznały się z produktami spożywczymi, które będą korzystne podczas rekonwalescencji po operacji: okłady hydrożelowe, mokre zacier i wysokokaloryczne suplementy diety. Sterylne wersje tych suplementów diety są dostępne u różnych dostawców. - Samice szczurów z kapturem Lister (o masie od 200 do 250 g) znieczulić izofluranem (5% do indukcji i 1 do 2% do konserwacji) w tlenie (natężenie przepływu: 1,5 l/min). UWAGA: Wybór środka znieczulającego jest ważny. Znieczulenie wziewne pozwala na szybszą regulację głębokości znieczulenia niż ketamina, która również jest powszechnie stosowana. Izofluran pozwala na lepszą kontrolę częstotliwości i głębokości oddychania. Wybór środka znieczulającego to izofluran. UWAGA: Używanie szczurów cięższych niż 220 g może pomóc w rekonwalescencji pooperacyjnej, jeśli chirurg stwierdzi, że zwierzęta często tracą więcej niż 10% swojej przedoperacyjnej masy ciała.
- Karprofen należy podawać podskórnie jako środek przeciwbólowy, gdy zwierzęta są znieczulone w celu zmniejszenia stanu zapalnego i zapewnienia znieczulenia. Uwaga: Karprofen podaje się podczas operacji piramidotomii w naszym laboratorium zgodnie z zaleceniami naszego lekarza weterynarii. Opioidy mogą powodować dalszą depresję oddechową podczas operacji.
- Utrzymuj zwierzęta w temperaturze 37 °C podczas operacji za pomocą homeotermicznego systemu i sondy temperatury doodbytniczej.
- Potwierdź pełne znieczulenie, sprawdzając, czy nie ma odruchu wycofania szczypania łapy i odruchu mrugania.
Uwaga: Opcjonalnie: Aby przeciwdziałać problemom z oddychaniem podczas operacji, intubacja i wentylacja mogą być wykonalne. Należy jednak pamiętać, że tchawica musi zostać przemieszczona podczas operacji. - Po znieczuleniu ułóż szczura w pozycji leżącej, ogol brzuszną szyję i wysterylizuj ją chusteczkami z 1% chlorheksydyną i/lub chusteczkami nasączonymi alkoholem. Nałóż sterylny koc chirurgiczny na zwierzę i utrzymuj obszar w sterylności przez cały czas.
- Po znieczuleniu ułóż szczura w pozycji leżącej, ogol brzuszną szyję i wysterylizuj ją 1% chlorheksydyną i chusteczkami nasączonymi alkoholem. Nałóż sterylny koc chirurgiczny na zwierzę i utrzymuj obszar sterylny przez cały czas.
UWAGA: Opcjonalnie głowa szczura może być zamocowana w ramie stereotaktycznej w pozycji leżącej na plecach podczas operacji, aby uniemożliwić ruchomość głowy, tj. kości potylicznej. - Wykonaj nacięcie linii środkowej o długości od 2 do 3 cm od podbródka do prawie rostralnego końca mostka za pomocą sterylnego skalpela (#10). Opcjonalnie zastosuj małe zaciski buldoga, aby cofnąć skórę.
- Tępo wypreparuj górne warstwy tkanek, takie jak gruczoły (np. gruczoł podszczękowy i ślinianka przyuszna) oraz mięśnie pokrywające tchawicę, stosując odwrotne działanie nożyczkami i kleszczami zębatymi. Zawsze trzymaj się linii środkowej. Tkanki powinny się łatwo rozdzielać.
- Po odsłonięciu tchawicy przesuń ją na bok. Linia środkowa jest widoczna pod nim z dwoma białymi poduszeczkami tłuszczowymi, oznaczającymi linię środkową na końcu rostralnym.
- Rostral do białych poduszek tłuszczowych, tępo rozwarstwiać tkankę, aż do osiągnięcia brzusznej powierzchni czaszki (kości podstawno-potylicznej).
- Włożyć retraktory o długich zębach (długość zęba 5,5 mm lub 16 mm), aby utrzymać tchawicę przesuniętą na bok (maksymalnie 1 cm) i odsłonić podstawę czaszki. Przemieszczenie tchawicy może utrudniać oddychanie.
UWAGA: W przypadku niektórych zwierząt należy poluzować zwijacze kilka razy podczas operacji, aby odciążyć tchawicę, np. co 10 minut przez 2 minuty. Zamiast zwijaczy o długich zębach można stosować zwijacze hakowe, aby zmniejszyć obciążenie związane z przemieszczeniem. - Ostrożnie kauteryzuj małe widoczne naczynia krwionośne na końcu rostralnym idącym w kierunku krtani, aby uniknąć krwawienia.
UWAGA: Aby zapobiec kauteryzacji, naczynia krwionośne nerwu krtaniowego wstecznego są ostrożnie odciągane od ściany tkanki przed ich kauteryzacją. - Dostosuj mikroskop do pozostałej części operacji.
- Usuń okostną pokrywającą podstawę czaszki drobnymi kleszczami. Wyreguluj zwijacze, aby uzyskać najlepszą możliwą widoczność podczas wiercenia.
- Poczuj nierówną powierzchnię kości podstawno-potylicznej za pomocą cienkich kleszczy, zwracając uwagę na uniesienie w linii środkowej, która obejmuje tętnicę podstawną. Rostralnie czaszka staje się uniesiona jako lekka wypukłość.
- W zależności od tego, po której stronie zmiana jest pożądana, wywierć otwór około 1 mm bocznie do linii środkowej w ruchach przyśrodkowo-bocznych.
UWAGA: Pamiętaj, że szczur jest w pozycji leżącej, a jego lewa strona może znajdować się po prawej stronie badacza! - Po wykonaniu otworu powiększ wiertłem w kierunku linii środkowej małymi pionowymi ruchami w górę iw dół, aż tętnica podstawna będzie wyraźnie widoczna i powiększ się bocznie o co najmniej 2 mm.
- Upewnij się, że tętnica podstawna jest wyraźnie widoczna. Piramidę można rozpoznać po lekko wybrzuszonym kształcie (ryc. 2) i po graniczących naczyniach krwionośnych.
- Usuń wszelkie pozostałe fragmenty kości za pomocą drobnych kleszczy.
- Nałóż jedną kroplę chlorowodorku doksapramu, środka pobudzającego oddychanie, na język.
- Otwórz oponę twardą wzdłużnie za pomocą igły o rozmiarze 26 i drobnych kleszczyków bocznych do tętnicy podstawnej. Zanurz płyn mózgowo-rdzeniowy (CSF) i wszelkie krwawienia za pomocą patyczków kosmetycznych.
- Unikając uszkodzenia tętnicy podstawnej, wykonaj cięcie o szerokości około 1,5 mm rozciągające się na szerokość piramidy i głębokość 0,5 mm za pomocą nożyczek sprężynowych Vannas prostopadłych do tętnicy podstawnej (ryc. 2), aby przerwać włókna CST.
UWAGA: Zaznacz wcześniej mikronożyczki w odległości 0,5 mm od końcówek. Po otwarciu opony twardej tętnicę podstawną można przesunąć nieco w jedną stronę, co zapewnia lepszy dostęp do piramidy. - Powtórz cięcie za pomocą końcówki igły o rozmiarze 26, aby upewnić się, że zmiana obejmuje włókna w pobliżu tętnicy podstawnej.
- Zatamuj krwawienie lekkim naciskiem za pomocą patyczków kosmetycznych. Opcjonalnie cięcie może być pokryte pianką żelową.
- Usuń retraktory, wymień tkanki i zszyj tylko skórę za pomocą szwów 3-0 Vicryl.
- Po zabiegu należy trzymać zwierzę w inkubatorze w temperaturze 32 °C do momentu całkowitego wybudzenia i w razie potrzeby podać podskórnie 5 ml soli fizjologicznej. Nie zostawiaj zwierzęcia bez opieki.
- Podawaj Carporfen podskórnie jako środek przeciwzapalny i przeciwbólowy na ból pooperacyjny jeden dzień po operacji.
- Należy ściśle obserwować zwierzęta przez tydzień po zabiegu i co najmniej raz w tygodniu po zabiegu.
- W razie potrzeby po operacji na podłodze klatki umieść okłady z żelu nawadniającego, puree z jedzenia dla niemowląt, mokre puree i suchą karmę. Zapewnij butelki na wodę z długimi dziobkami (bez zaworów z łożyskami kulkowymi).
Wyniki
Wskaźniki przeżywalności.
W reprezentatywnym badaniu przeprowadzonym przez nasz zespół przeżywalność wyniosła 16 z 20 samic szczurów Lister hooded (200 do 250 g). Najczęstszym powikłaniem są trudności w oddychaniu wynikające z przemieszczenia tchawicy lub uszkodzenia ośrodków oddechowych w pniu mózgu, położonych grzbietowo względem piramid (nucleus solitarii, ambiguous i parabrachilis). Podobne wyniki zostały zgłoszone w literaturze 16.
Wyniki behawioralne.
Do oceny efektów sensorimotorycznych po pyramidotomii u gryzoni wykorzystuje się szereg testów behawioralnych: najczęściej stosowanymi ocenami behawioralnymi są test drabiny poziomej, test sięgania po pojedynczą granulkę, test podnoszenia się w cylindrze oraz test schodów Montoyi. Inne testy opisane w literaturze to test sięgania po granulki, test wspinania się po linie, analiza chodu oraz test taśmy klejącej 3,17-19. Większość z nich wykazuje funkcjonalny deficyt motoryczny tydzień po urazie. Obecnie większość badań opisanych w literaturze przeprowadza testy behawioralne jedynie do 42 dnia 4,11,13,20,21 lub przez krótszy czas 3,18,22. Przeprowadziliśmy testy behawioralne przez dłuższy okres i zaobserwowaliśmy w zasadzie pełny powrót funkcji motorycznych 8 tygodni po pyramidotomii w niektórych testach behawioralnych, z wyjątkiem testu schodów Montoyi oraz testu drabiny poziomej. Wynika to prawdopodobnie z kilku przyczyn. Po pierwsze, uszkodzony CST rostralnie względem zmiany może tworzyć synapsy z neuronami w pniu mózgu, które pełnią rolę pośrednich przekaźników do neuronów ruchowych w rdzeniu kręgowym. Po drugie, nieuszkodzony (kontralateralny) CST może kiełkować i tworzyć synapsy z neuronami w pniu mózgu lub rdzeniu kręgowym, które pełnią rolę przekaźników do neuronów ruchowych. Po trzecie, inne zachowane drogi ruchowe, takie jak drogi siatczkowo-rdzeniowe, przedsionkowo-rdzeniowe lub czerwono-rdzeniowe, mogą przejąć część funkcji. W związku z tym w modelu pyramidotomii trudno jest wykryć trwały efekt terapeutyczny za pomocą wielu testów behawioralnych. Niektóre testy behawioralne w tym modelu mogą jednak wskazywać na przyspieszoną regenerację wczesną po urazie, która jest związana z zastosowanym leczeniem.
Test wspinania w cylindrze 3,4,23
Na podstawie testu cylindra stwierdzono, że uszkodzeniu uległ CST odpowiadający dominującej przedniej łapie. Szczury umieszcza się w pleksiglasowym cylindrze i obserwuje zachowanie wznoszenia przez okres 3 min. Przed urazem występowała lekka preferencja do używania jednej przedniej łapy, łapy dominującej, podczas eksploracji pionowej (Rysunek 3A). Uraz dotyczy strony dominującej i użycie przedniej łapy kontralateralnej spadło do 28% w 1. tygodniu po urazie (ANOVA z powtarzanymi pomiarami p <0.05; analiza post-hoc wykazała, że zwierzęta wykazują istotne deficyty w 1., 2. i 3. tygodniu, p <0.05, test Fishera LSD). 4 tygodnie po urazie zwierzęta powróciły do formy i wykorzystywały dotkniętą kończynę przednią w 45% wznoseń, a po 6 tygodniach wartość ta wyniosła 57% (n = 16, przedstawiono średnią ± błąd standardowy). Podobnie Starkey et al. (4) oceniali myszy za pomocą testu cylindra do 42 dni po piramidotomii i zgłosili istotny spadek użycia dotkniętej przedniej łapy przez cały okres testowania.
Test schodowy Montoyy 24
Szczury wymagają wstępnego treningu przed tym testem w celu aklimatyzacji przed wystąpieniem urazu. Aby zwiększyć motywację podczas sesji testowej, w noc poprzedzającą badanie zwierzęta są poddawane restrykcji pokarmowej do 15 g pokarmu na szczura. Głodzone szczury umieszcza się w schodach Montoya na 15 min. Po każdej stronie znajduje się schody składające się z 7 stopni z otworami, z których każdy zawiera 3 pelety. Zapisuje się całkowitą liczbę odzyskanych peletów po każdej stronie. Liczba peletów odzyskanych kontralateralną/dotkniętą przednią łapą spadła znacząco z 61% przed urazem do 3% 3 dni po urazie (Figure 3B). Zdolność do odzyskiwania peletów była nadal znacząco upośledzona w 4. tygodniu po urazie, przy odzyskaniu 20% peletów. Szczury wykazują znaczący deficyt aż do 8. tygodnia, kiedy to zjedzono jedynie 29% peletów (Repeated Measures ANOVA p <0.05, analiza post hoc wykazała, że zwierzęta mają znaczące deficyty po stronie kontralateralnej w każdym tygodniu, p <0.05, Fisher’s LSD). Przednia łapa ipsilateralna jest dotknięta do 1. tygodnia po urazie; jednakże następuje poprawa do drugiego tygodnia (Repeated Measures ANOVA p <0.05, analiza post hoc wykazała, że zwierzęta mają znaczące deficyty w 3. dniu i 1. tygodniu w obrębie przedniej łapy ipsilateralnej, p <0.05, Fisher’s LSD). Początkowe deficyty przedniej łapy ipsilateralnej można wyjaśnić uszkodzeniem ipsilateralnej części drogi korowo-rdzeniowej przebiegającej przez przeciętą piramidę, z późniejszym kiełkowaniem i regeneracją.
Test drabiny poziomej 25
Szczury wymagają wstępnego treningu przed wykonaniem tego testu. Szczury przechodzą trzykrotnie przez drabinę o długości 1 m z nieregularnymi odstępami między szczeblami. Nagrania wideo są następnie analizowane w zwolnionym tempie, a całkowita liczba poślizgnięć i pominięć szczebli dla każdej łapy jest kwantyfikowana. Wykres na Rysunku 3C przedstawia całkowitą liczbę pominięć i poślizgnięć po stronie dotkniętej oraz po stronie mniej dotkniętej (przednia łapa + tylna łapa) jako procent całkowitej liczby wykonanych kroków. Szczury wykazują istotnie zwiększoną liczbę błędów 1 tydzień po urazie, wynoszącą odpowiednio 10% po stronie dotkniętej i 11% po stronie mniej dotkniętej. Deficyt ten utrzymuje się po stronie kontralateralnej/dotkniętej do 8. tygodnia, przy 10% popełnianych błędów, natomiast po stronie ipsilateralnej/mniej dotkniętej ustępuje do 2. tygodnia (ANOVA z powtarzanymi pomiarami, analiza post hoc wykazała, że zwierzęta mają istotne deficyty w każdym tygodniu po stronie kontralateralnej oraz istotne deficyty w 1. i 3. tygodniu po stronie ipsilateralnej, p <0.05, test LSD Fishera).
Badania elektrofizjologiczne
W terminalnym układzie elektrofizjologicznym zwierzę znieczulono dożylnie urethanem. Przez cały czas trwania procedury utrzymywano temperaturę 37 °C ± 1 °C. Przednią część szyi, przednie kończyny oraz klatkę piersiową ogolono i zdezynfekowano szorstkim roztworem jodu. Piramidy odsłonięto zgodnie z wcześniejszym opisem, a nerw promieniowy odsłonięto w górnej części ramienia poprzez dostęp brzuszny, nacinając skórę i mięsień piersiowy większy. Dystalny koniec nerwu promieniowego przecięto, a nerw ułożono na dwóch hakowych elektrodach z drutu srebrnego w kąpieli z oleju mineralnego. Każdą z piramid stymulowano koncentrycznymi elektrodami bipolarnymi na różnych głębokościach, podając 5 impulsów o częstotliwości 300 Hz przy zwiększającej się amplitudzie stymulacji. Rejestrację sygnałów zawsze prowadzono z nerwu promieniowego unieruchomionej kończyny (Rysunek 4).
U zwierząt nieurazowanych w nerwie promieniowym odnotowano silną odpowiedź przy opóźnieniach od 12 do 20 msec podczas stymulacji przeciwległej piramidy (Rycina 4B). Stymulacja ipsilateralna skutkuje jedynie sporadyczną aktywacją (Rycina 4C). Zwierzęta, u których wcześniej wykonano pyramidotomię, nie wykazują odpowiedzi w nerwie promieniowym po stronie przeciwległej do ramienia rejestracyjnego podczas stymulacji uszkodzonego szlaku powyżej miejsca zmiany (Rycina 4B’). Jednakże stymulacja włókien CST w piramidach ipsilateralnych względem elektrod rejestrujących spowodowała silniejszą aktywację w nerwie promieniowym w porównaniu do zwierząt nieurazowanych w 12 tygodniu po urazie (Rycina 4C’).
Wyniki anatomiczne.
Zwierzęta uśmiercono 10 tygodni po operacji zgodnie z Harmonogramem 1 ustawy Animals (Scientific Procedures) Act 1986. Dwa tygodnie wcześniej, nieuszkodzony CST śledzono za pomocą wstrzyknięć biotynilowanej dekstrany aminowej (BDA) do kory ruchowej 26 po stronie ipsilateralnej względem niedowładnej kończyny (Rycina 1). Pozwala to na ilościowe określenie liczby nieuszkodzonych włókien, które przekraczają linię środkową i zasilają rdzeń kręgowy po stronie kontralateralnej (Rycina 5C, D). U zwierząt nieuszkodzonych tylko kilka włókien przekracza linię środkową, natomiast liczba ta zwiększa się w odpowiedzi na uraz. Poprzeczne przekroje szyjnego rdzenia kręgowego barwiono przeciwciałem przeciwko kinazie białkowej C (PKC) gamma, aby ocenić stopień denerwacji w uszkodzonym CST (Rycina 5E)16. Alternatywnie, kompletność uszkodzenia można ocenić poprzez wstrzyknięcie znacznika BDA do kory ruchowej po stronie ipsilesionalnej względem uszkodzenia w wyniku pyramidotomii. Brak znakowania w kontralateralnym grzbietowo-przyśrodkowym CST oraz ipsilateralnym brzuszno-przyśrodkowym CST stanowi dowód całkowitego jednostronnego przerwania ciągłości.

Rycina 1: Schemat przedstawiający drogi korowo-rdzeniowe u szczura oraz jednostronną aksotomie CST w piramidach. Górny obraz: Neurony korowo-rdzeniowe biorą początek w komórkach piramidowych warstwy 5 kory. Biotynilowana dekstrana amina (zaznaczona na zielono) jest wstrzykiwana do kory kontralezjonalnej na dwa tygodnie przed zakończeniem eksperymentu. Środkowy obraz: Drogi tworzą piramidy na brzusznej powierzchni rdzenia przedłużonego, a na poziomie złącza rdzeniowo-przedłużonego większość aksonów ulega skrzyżowaniu. Jednostronna pyramidotomia jest przeprowadzana w ogonie rdzenia przedłużonego (zaznaczona na czerwono). Dolny obraz: Większość dróg korowo-rdzeniowych biegnie w dorsomedialnych i dorsolateralnych częściach rdzenia kręgowego. Mniejszość pozostaje ipsilateralnie i biegnie ventromedialnie.

Rycina 2: Widok brzuszny mózgu szczura. Piramidy są charakterystyczne ze względu na to, że stanowią wypukłe, równoległe wyniesienia (żółta ramka). Granice piramid są wyznaczone przyśrodkowo przez tętnicę podstawną (bas) wzdłuż linii środkowej oraz bocznie u podstawy wypukłości w połowie odległości między tętnicą podstawną a tętnicą przyoliwną (pol), jak pokazano na (C). Kraniotomia jest wykonywana nad tętnicą podstawną i bocznie, rozciągając się do tętnicy przyoliwnej (czerwona ramka w C). Jedną piramidę przecina się prostopadle do tętnicy podstawnej (czerwona linia w C, cięcie pokazano na preparacie w A i B). Leki wprowadzone zbyt ogonowo, w pobliżu tętnic kręgowych (vert), będą niepełne, ponieważ droga CST zaczyna się krzyżować, a tętnica kręgowa jest przesunięta względem linii środkowej. (C) Obraz zaadaptowany z „The Rat Nervous System” autorstwa George'a Paxinosa27. UWAGA: Ta rycina pokazuje uszkodzenie po lewej stronie obrazów: jest to prawy sznur piramidowy zwierzęcia, ponieważ leży ono na plecach. Należy jednak zauważyć, że w materiale wideo pokazano uszkodzenie lewego sznura piramidowego zwierzęcia.

Rysunek 3: Reprezentatywne wyniki testu cylindra, testu sięgania po pellet na schodach Montoyi oraz testu drabiny poziomej. We wszystkich testach po urazie stwierdzono deficyt motoryczny. Jednakże w 4. tygodniu po urazie w teście cylindra nie wykryto deficytu, podczas gdy trwałe deficyty były wykrywalne w teście schodów Montoyi oraz teście drabiny poziomej do 8. tygodnia po urazie (n = 16 na grupę, przedstawiono średnie i błąd standardowy). Gwiazdka oznacza p <0.05 względem wartości bazowej sprzed urazu (test LSD Fishera).Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
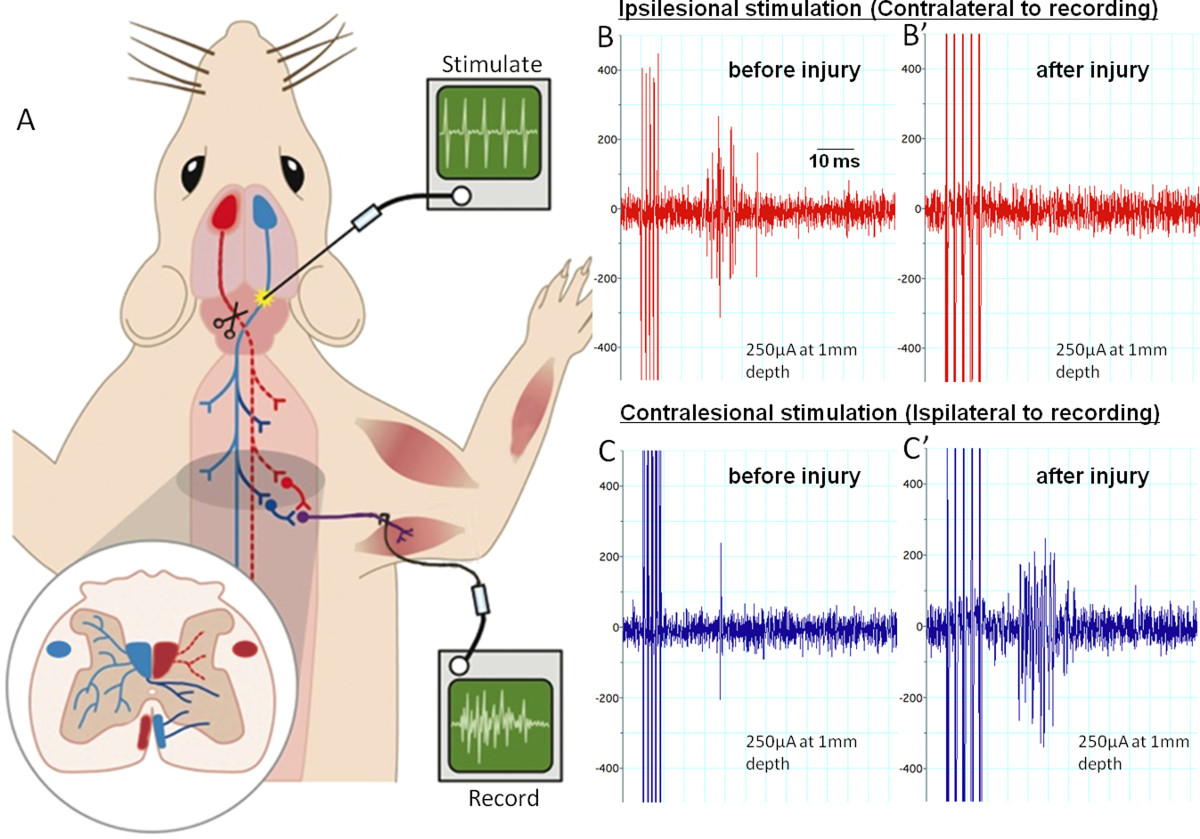
Rycina 4: Badanie elektrofizjologiczne drogi korowo-rdzeniowej przed i po pyramidotomii. (A) przedstawia układ do eksperymentu końcowego. Stymulujemy piramidy serią 5 impulsów na różnych głębokościach rostralnie od miejsca uszkodzenia i skrzyżowania. Czerwony trakt to trakt uszkodzony. Rejestrujemy sygnały z nerwu promieniowego po stronie kontralesjonalnej. (B) oraz (C) pokazują przykładowe zapisy przy stymulacji ipsilesjonalnej lub kontralesjonalnej przed lub 12 tygodni po pyramidotomii. Stymulacje ipsilesjonalne wywołują liczne złożone potencjały czynnościowe (skoki na zapisie) w nerwie promieniowym przed uszkodzeniem (B). Są one zniesione w wyniku uszkodzenia, a aktywność nie powraca w ciągu 12 tygodni (B’). Stymulacja kontralesjonalna wywołuje rzadkie pojedyncze złożone potencjały czynnościowe przed uszkodzeniem (C). 12 tygodni po uszkodzeniu aktywność jest znacznie zwiększona (C’), co wynika prawdopodobnie z wypustkowania nienaruszonych aksonów przez linię środkową oraz zmian plastycznych w obrębie rdzenia kręgowego. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 5: Ocena anatomiczna po piramidotomii. (A, B, C, D) Do śledzenia drogi korowo-rdzeniowej użyto biotynilowanej dekstranaminy, wstrzykując ją do kory ruchowej odpowiadającej nieuszkodzonej CST (patrz kolor zielony na Rycynie 1). Wyraźnie widoczne są komponenty grzbietowo-przyśrodkowe oraz brzuszno-przyśrodkowe CST (A, część grzbietowo-przyśrodkowa powiększona w B). (C) oraz (D) to powiększenia z (A) przedstawiające włókna kiełkujące przez linię środkową do istoty szarej po stronie odnerwionej w odpowiedzi na leczenie. Aby ocenić stopień kompletności uszkodzenia, wykonano przekroje poprzeczne na poziomie odcinka szyjnego C4 (tkanka 12 tygodni po urazie) i zabarwiono je przeciwciałami przeciwko PKC gamma (E). CST po lewej stronie obrazu jest nienaruszona i widać, jak wybrzusza się przez linię środkową w stronę odnerwioną, prawdopodobnie z powodu dezintegracji strukturalnej uszkodzonej grzbietowej CST.
Dyskusja
Opisaliśmy model urazu piramidotomii. Droga korowo-rdzeniowa jest przecięta na poziomie pnia mózgu. Z technicznego punktu widzenia zabieg ten wymaga dużej ostrożności i dokładności. W pniu mózgu znajdują się ośrodki oddechowe i ośrodki sercowo-naczyniowe w wielu jądrach, takich jak jądro niejednoznaczne i solitaria osadzone w siatkowatej formacji pod piramidami. Jeśli nacięcie zostanie wykonane zbyt głęboko, może to prowadzić do nagłych trudności w oddychaniu, które mogą być śmiertelne. Podajemy Dopram tuż przed cięciem, aby zwiększyć aktywność oddechową, aby zapobiec nagłemu ustaniu oddychania. Jeśli oddech ustaje, warto wentylować zwierzę tlenem przez następne pięć minut, ponieważ może dojść do siebie. Ponadto należy bezwzględnie unikać wszelkich uszkodzeń tętnicy podstawnej. Powikłania w ciągu pierwszych kilku dni po urazie to: kolejny krwotok w pniu mózgu wpływający na funkcje życiowe, znaczna utrata masy ciała, poważne trudności w oddychaniu z powodu przemieszczenia tchawicy oraz poważne problemy z orientacją i równowagą zwierzęcia z powodu rozległego urazu, w tym oliwek tuż obok piramid. Powikłania te mogą być traktowane jako punkty końcowe, a zwierzęta mogą być zabijane w sposób humanitarny. Niezbędne jest ścisłe monitorowanie w pierwszym tygodniu po zabiegu. Pokarm uzupełniający może być podawany w celu zrównoważenia utraty wagi. Zapalenie dróg oddechowych (chrapliwy oddech) zwykle ustępuje w ciągu jednego do dwóch dni. Ogólnie rzecz biorąc, młodsze zwierzęta są łatwiejsze do operowania, ponieważ ich szyja jest mniej głęboka. Ponadto są bardziej odporne i mają mniej komplikacji związanych z oddychaniem.
Wymaga to pewnej praktyki, aby osiągnąć całkowite uszkodzenie CST za pomocą piramidotomii. Podobnie w dwóch badaniach przeprowadzonych przez Stewarda i wsp. 16, który miał na celu powtórzenie poprzedniego eksperymentu Benowitza i wsp. 28, wykazał początkowo wysoką śmiertelność i że niektóre z ich zmian były niekompletne. Deficyty behawioralne również będą zmienne. Zalecamy, aby nowy chirurg wykonał wiele praktycznych operacji piramidotomii przed wykonaniem pełnego eksperymentu w celu przetestowania potencjalnej terapii. Sposoby zapobiegania niekompletnym zmianom polega na odtworzeniu cięcia za pomocą igły podskórnej, upewniając się, że włókna korowo-rdzeniowe w pobliżu tętnicy podstawnej są przecięte, jak opisano w tym protokole. Inne opcje to odessanie miejsca zmiany za pomocą szklanej pipety ssącej z końcówką, jak opisano w Zhou i wsp., 2003: 29. Cienki drut wolframowy może być również użyty do przecięcia przewodu 22. Alternatywą dla piramidotomii jest jednostronne przecięcie grzbietowej części szyjki C3 CST, a następnie przecięcie z dostępem brzusznym brzusznej części C2 CST 18. Jakkolwiek prawdopodobne jest, że całkowita zmiana nie jest konieczna, jeśli celem jest badanie kiełkowania przeciwstawnego CST; Jeśli większość piramidy jest uszkodzona i występuje reakcja kiełkowania po stronie nieuszkodzonej, może to być wystarczające.
Jednym z celów modelu zmiany piramidotomii jest ablacja jednej strony drogi korowo-rdzeniowej i zastosowanie terapii indukujących neuroplastyczność w celu stymulacji plastyczności i kiełkowania nienaruszonych, nieuszkodzonych włókien. Do testowania terapii neuroprotekcyjnych model ten jest nieodpowiedni i należy stosować inne modele urazów, takie jak urazy spowodowane kontuzjami. Wyniki piramidotomii oceniane są najczęściej za pomocą testów behawioralnych i anatomicznych. Test drabiny poziomej, test podnoszenia cylindra i test schodów Montoya są najczęściej stosowanymi ocenami behawioralnymi. Inne testy opisane w literaturze to test sięgania po śrut, test wspinaczki po linie, analiza chodu oraz test taśmy klejącej 3,17-19. Jednak wyniki większości testów behawioralnych są często monitorowane tylko do maksymalnie 42 dni po leczeniu 3,4,11,17,18,20-22. Z wcześniejszych doświadczeń wynika, że gryzonie odzyskują większość funkcji w późniejszych punktach czasowych bez żadnej interwencji leczniczej. Wykazaliśmy, że test drabiny poziomej i test docierania do kulki schodowej Montoya wykrywają niepełnosprawność do późniejszego punktu czasowego. Mogą być używane do pomiaru powrotu do sprawności funkcjonalnej w wyniku leczenia. Kompletność zmiany ocenia się za pomocą barwienia PKC gamma (które oznacza włókna CST w kolumnach grzbietowych) rdzenia kręgowego na poziomie rostralnym szyjki macicy lub barwienia cyjaniną eriochromową poprzecznych odcinków miejsca uszkodzenia. Biotynylowana amina dekstranu może być wstrzykiwana do kory przeciwległej w celu oceny kiełkowania nienaruszonych włókien przez linię środkową do odnerwionego obszaru rdzenia kręgowego.
Podsumowując, model piramidotomii jest dobry do oceny zdolności indukujących neuroplastyczność leku do leczenia urazów ośrodkowego układu nerwowego, jeśli operacja zostanie pomyślnie opanowana. Ocenia plastyczność nienaruszonych włókien. Następnym krokiem byłoby zastosowanie bardziej istotnego klinicznie modelu, takiego jak urazy spowodowane stłuczeniami, aby ocenić zdolność leku do przezwyciężenia większych urazów wpływających na wiele dróg moczowych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez International Spinal Research Trust i Rosetrees Trust.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Karprofen | Norbrook | Vm No; 02000/4229 | podawać 5 mg/kg dwa razy dziennie |
| Homeotermiczny system | Harvard Instruments | 507222F | |
| Isoflurane | Abbott | B506 | |
| Cienkie nożyczki - Tough Cut | Fine Science Tools | 14058-09 | |
| Kleszcze | Fine Science Tools | 11019-12 | |
| Długozębne zwijacze Alm | Fine Science Tools | 17009-07 | |
| systemu kauterycznego | Harvard Instruments | 726067 | |
| drobne kleszcze Dumont | Fine Science Tools | 11251-10 | |
| Frezy ze stali węglowej | Fine Science Tools | 19007-07 | |
| Dopram V-drops | Pfizer | nałóż 1 kroplę na język | |
| Vannas Spring Nożyczki | Fine Science Tools | 15000-03 | |
| gelfoam | Equimedical | EQU705001 | |
| 3-0 Vicryl | Nici Mikroskop operacyjny Ethicon | ||
| Zeiss | |||
| Kompaktowy system anestezjologiczny Isoflurane K/F Pojedynczy gaz | VetTech Solutions | ||
| Wagi | Ohaus | NVT3201 | |
| Ostrza skalpela ze stali węglowej nr 10 | Igły Swann-Morton | 201 | |
| 25g | Terumo | NN-2525R | |
| (1 ml i 5 ml) | Terumo | SS+01T1 / SS*05SE1 | |
| Sól fizjologiczna (chlorek sodu 0,9%) | Patyczki kosmetyczne Fresenius Kabi | Pl 08828/0178 | |
| Johnson and Johnson | 5000207582502 | sterylizować przed użyciem |
Bibliografia
- Lemon, R. N. Descending pathways in motor control. Annual review of neuroscience. 31, 195-218 (2008).
- Lemon, R. N., Griffiths, J. Comparing the function of the corticospinal system in different species: organizational differences for motor specialization. Muscle & nerve. 32, 261-279 (2005).
- Starkey, M. L., et al. Assessing behavioural function following a pyramidotomy lesion of the corticospinal tract in adult mice. Experimental neurology. 195, 524-539 (2005).
- Starkey, M. L., Bartus, K., Barritt, A. W., Bradbury, E. J. Chondroitinase ABC promotes compensatory sprouting of the intact corticospinal tract and recovery of forelimb function following unilateral pyramidotomy in adult mice. Eur J Neurosci. 36, 3665-3678 (2012).
- Brosamle, C., Schwab, M. E. Cells of origin, course, and termination patterns of the ventral, uncrossed component of the mature rat corticospinal tract. The Journal of comparative neurology. 386, 293-303 (1997).
- Brosamle, C., Schwab, M. E. Ipsilateral, ventral corticospinal tract of the adult rat: ultrastructure, myelination and synaptic connections. Journal of neuroctology. 29, 499-507 (2000).
- Bareyre, F. M., et al. The injured spinal cord spontaneously forms a new intraspinal circuit in adult rats. Nat Neurosci. 7, 269-277 (2004).
- Chen, Q., Smith, G. M., Shine, H. D. Immune activation is required for NT-3-induced axonal plasticity in chronic spinal cord injury. Exp Neurol. 209, 497-509 (2008).
- Z'Graggen, W. J., et al. Compensatory sprouting and impulse rerouting after unilateral pyramidal tract lesion in neonatal rats. J Neurosci. 20, 6561-6569 (2000).
- Rosenzweig, E. S., et al. Extensive spontaneous plasticity of corticospinal projections after primate spinal cord injury. Nat Neurosci. 13, 1505-1510 (2010).
- Z'Graggen, W. J., Metz, G. A., Kartje, G. L., Thallmair, M., Schwab, M. E. Functional recovery and enhanced corticofugal plasticity after unilateral pyramidal tract lesion and blockade of myelin-associated neurite growth inhibitors in adult rats. J Neurosci. 18, 4744-4757 (1998).
- Kartje-Tillotson, G., O'Donoghue, D. L., Dauzvardis, M. F., Castro, A. J. Pyramidotomy abolishes the abnormal movements evoked by intracortical microstimulation in adult rats that sustained neonatal cortical lesions. Brain Res. 415, 172-177 (1987).
- Thallmair, M., et al. Neurite growth inhibitors restrict plasticity and functional recovery following corticospinal tract lesions. Nature Neuroscience. 1, 124-131 (1998).
- Akbik, F. V., Bhagat, S. M., Patel, P. R., Cafferty, W. B., Strittmatter, S. M. Anatomical plasticity of adult brain is titrated by Nogo Receptor 1. Neuron. 77, 859-866 (2013).
- Schallert, T., Fleming, S. M., Leasure, J. L., Tillerson, J. L., Bland, S. T. CNS plasticity and assessment of forelimb sensorimotor outcome in unilateral rat models of stroke, cortical ablation, parkinsonism and spinal cord injury. Neuropharmacol. 39, 777-787 (2000).
- Steward, O., Sharp, K., Yee, K. M. A re-assessment of the effects of intracortical delivery of inosine on transmidline growth of corticospinal tract axons after unilateral lesions of the medullary pyramid. Experimental neurology. 233, 662-673 (2012).
- Thallmair, M., et al. Neurite growth inhibitors restrict plasticity and functional recovery following corticospinal tract lesions. Nature neuroscience. 1, 124-131 (1998).
- Weidner, N., Ner, A., Salimi, N., Tuszynski, M. H. Spontaneous corticospinal axonal plasticity and functional recovery after adult central nervous system injury. Proc Natl Acad Sci U S A. 98, 3513-3518 (2001).
- Schnell, L., Schneider, R., Kolbeck, R., Barde, Y. A., Schwab, M. E. Neurotrophin-3 enhances sprouting of corticospinal tract during development and after adult spinal cord lesion. Nature. 367, 170-173 (1994).
- Starkey, M. L., Bleul, C., Maier, I. C., Schwab, M. E. Rehabilitative training following unilateral pyramidotomy in adult rats improves forelimb function in a non-task-specific way. Experimental neurology. 232, 81-89 (2011).
- Ueno, M., Hayano, Y., Nakagawa, H., Yamashita, T. Intraspinal rewiring of the corticospinal tract requires target-derived brain-derived neurotrophic factor and compensates lost function after brain injury. Brain : a journal of neurology. 135, 1253-1267 (2012).
- Maier, I. C., et al. Constraint-induced movement therapy in the adult rat after unilateral corticospinal tract injury. J Neurosci. 28, 9386-9403 (2008).
- Schallert, T., Fleming, S. M., Leasure, J. L., Tillerson, J. L., Bland, S. T. CNS plasticity and assessment of forelimb sensorimotor outcome in unilateral rat models of stroke, cortical ablation, parkinsonism and spinal cord injury. Neuropharmacology. 39, 777-787 (2000).
- Montoya, C. P., Campbell-Hope, L. J., Pemberton, K. D., Dunnett, S. B. The "staircase test": a measure of independent forelimb reaching and grasping abilities in rats. Journal of neuroscience methods. 36, 219-228 (1991).
- Soblosky, J. S., Song, J. H., Dinh, D. H. Graded unilateral cervical spinal cord injury in the rat: evaluation of forelimb recovery and histological effects. Behavioural brain research. 119, 1-13 (2001).
- Soleman, S., Yip, P., Leasure, J. L., Moon, L. Sustained sensorimotor impairments after endothelin-1 induced focal cerebral ischemia (stroke) in aged rats. Experimental neurology. 222, 13-24 (2010).
- Paxinos, G. The Rat Nervous System. , Academic Press, Inc. (1995).
- Benowitz, L. I., Goldberg, D. E., Madsen, J. R., Soni, D., Irwin, N. Inosine stimulates extensive axon collateral growth in the rat corticospinal tract after injury. Proc Natl Acad Sci U S A. 96, 13486-13490 (1999).
- Zhou, L., Baumgartner, B. J., Hill-Felberg, S. J., McGowen, L. R., Shine, H. D. Neurotrophin-3 expressed in situ induces axonal plasticity in the adult injured spinal cord. J Neurosci. 23, 1424-1431 (2003).
Przedruki i uprawnienia
