Gruczoł łzowy (LG) to rozgałęziony organ, który wytwarza wodne składniki łez, niezbędne do utrzymania wzroku i zdrowia oczu. Tutaj opisujemy mysie techniki preparacji LG i hodowli ex vivo w celu rozszyfrowania szlaków sygnałowych zaangażowanych w rozwój LG.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Manipulowanie mysim gruczołem łzowym
W tym artykule
Podsumowanie
Streszczenie
Gruczoł łzowy (LG) wydziela łzy wodniste niezbędne do utrzymania struktury i funkcji rogówki, przezroczystej tkanki niezbędnej do widzenia. U człowieka pojedynczy LG znajduje się na orbicie powyżej bocznego końca każdego oka, dostarczając łzy do powierzchni oka przez 3 - 5 przewodów. Mysz ma trzy pary głównych gruczołów ocznych, z których najbardziej zbadanym jest zewnątrzorbitalny gruczoł łzowy (LG) znajdujący się z przodu i brzusznie do ucha. Podobnie jak inne narządy gruczołowe, LG rozwija się w procesie morfogenezy rozgałęzień nabłonka, w którym pojedynczy pączek nabłonka w skondensowanej mezenchymie przechodzi wiele rund tworzenia pąków i przewodów, tworząc skomplikowaną, połączoną sieć wydzielniczych acini i przewodów. Ten skomplikowany proces został dobrze udokumentowany w wielu innych narządach nabłonkowych, takich jak trzustka i gruczoł ślinowy. Jednak LG został znacznie mniej zbadany, a mechanizmy kontrolujące morfogenezę są słabo poznane. Podejrzewamy, że ta niedostateczna reprezentacja jako systemu modelowego jest konsekwencją trudności związanych ze znalezieniem, analizą i hodowlą LG. W związku z tym opisujemy tutaj techniki preparacji do pobierania zarodkowego i pourodzeniowego LG oraz metody hodowli ex vivo tkanki.
Wprowadzenie
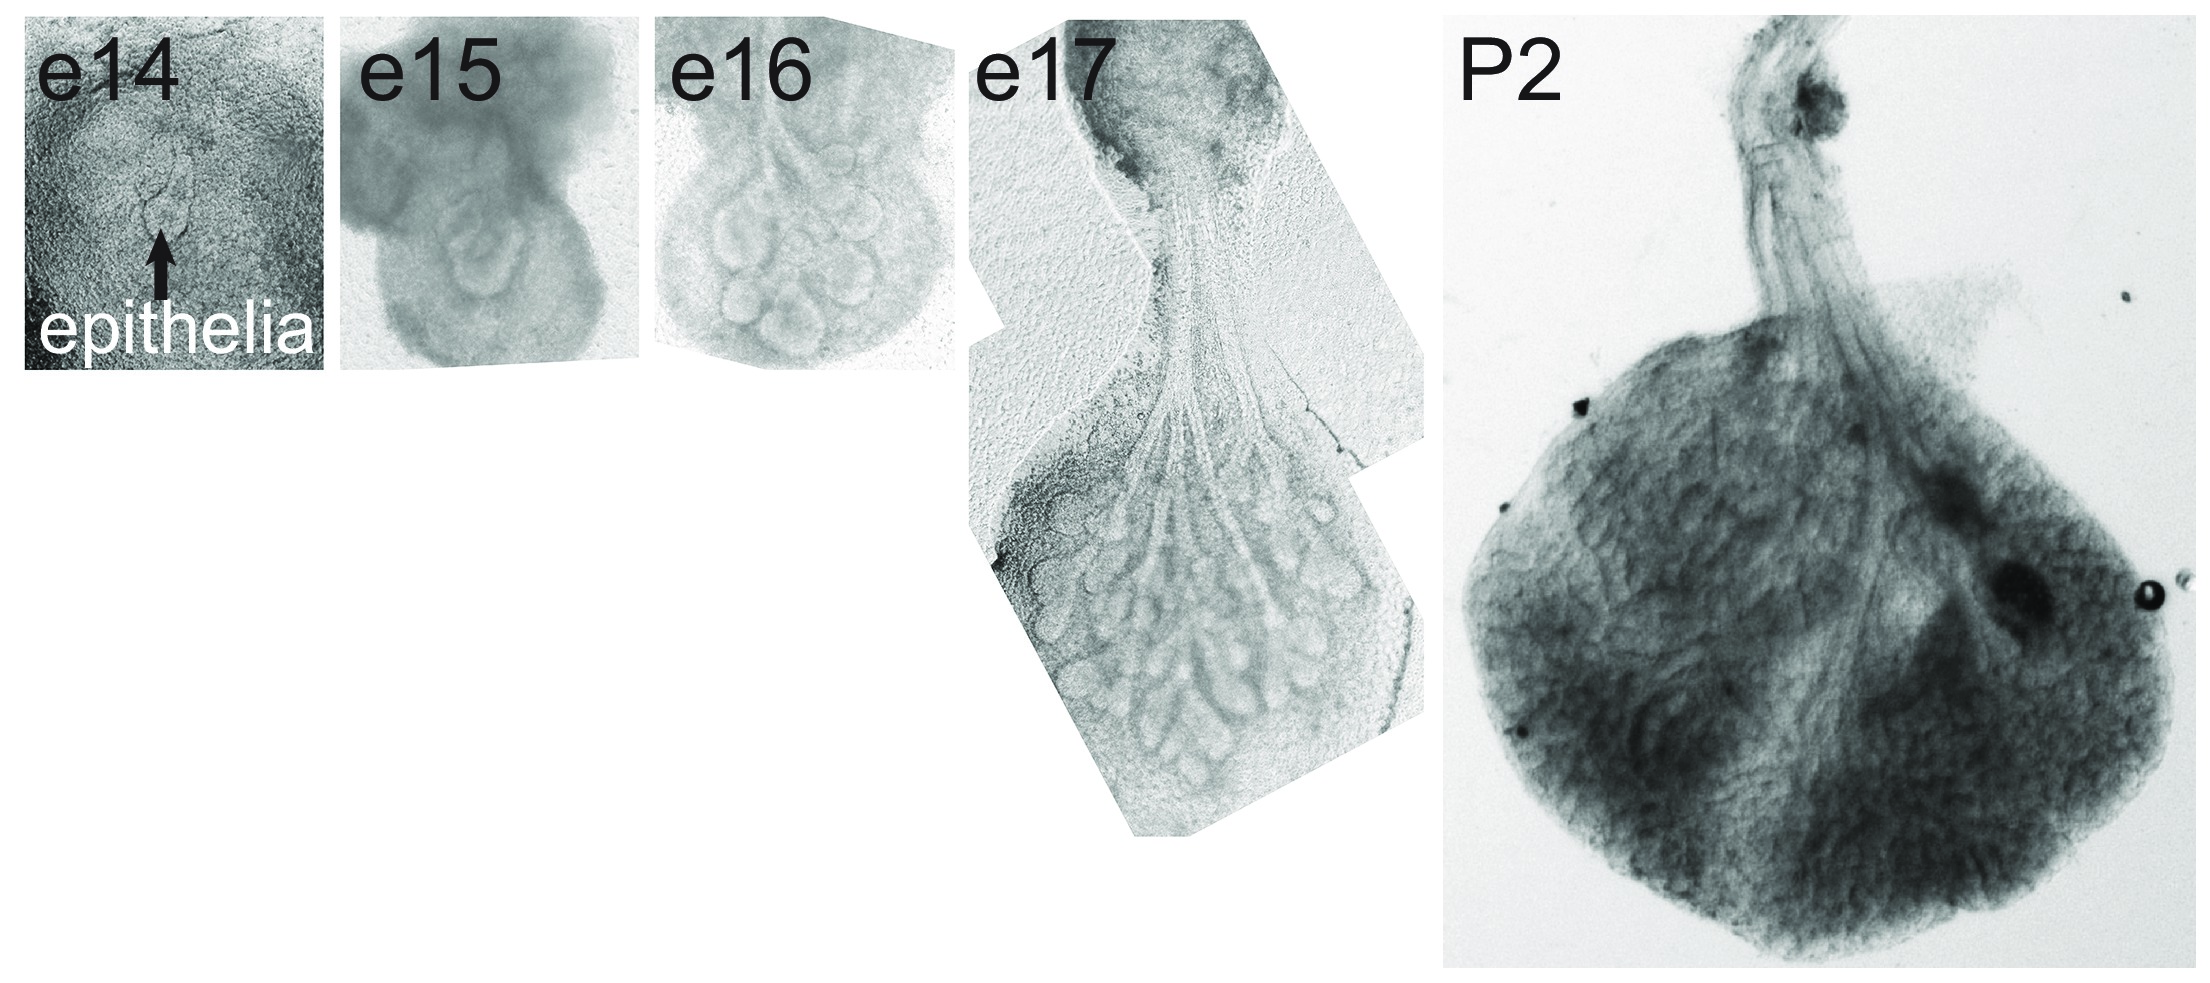
Gruczoł łzowy (LG) jest odpowiedzialny za wydzielanie łez w stanie wodniczym, co ma kluczowe znaczenie dla ostrości wzroku oraz zdrowia, utrzymania i ochrony komórek powierzchni oka. Dysfunkcja LG prowadzi do jednej z najczęstszych i najbardziej wyniszczających chorób oczu: zespołu suchego oka z niedoborem wody wodnistej, która charakteryzuje się podrażnieniem oczu, wrażliwością na światło i pogorszeniem widzenia1. U człowieka LG znajduje się w oczodole powyżej bocznego końca oka, gdzie 3 - 5 przewodów wydalniczych odkłada łzy na powierzchni oka. Mysz ma trzy pary głównych gruczołów ocznych, z których najbardziej zbadanym jest gruczoł łzowy (LG) znajdujący się z przodu i brzusznie do ucha (zewnątrzorbitalny) ze łzami przemieszczającymi się do oka przez pojedynczy przewód wydalniczy. Podobnie jak inne narządy gruczołowe, LG rozwija się w procesie morfogenezy rozgałęzień nabłonkowych, w którym pojedynczy pączek nabłonkowy w skondensowanej mezenchymie przechodzi wiele rund tworzenia pąków i przewodów, tworząc skomplikowaną, połączoną sieć wydzielniczych acini i przewodów (ryc. 1)2. W trakcie rozwoju nabłonek ulega unaczynieniu, a także silnemu unerwieniu przez nerwy przywspółczulne zwoju skrzydłowo-podniebiennego oraz w mniejszym stopniu przez nerwy współczulne ze zwoju szyjnego górnego3. Interakcje między każdym z tych typów komórek, tj. komórkami neuronalnymi, nabłonkowymi, śródbłonkowymi i mezenchymalnymi, są niezbędne do funkcjonowania i utrzymania dorosłej tkanki. Jednak podstawowe mechanizmy molekularne koordynujące rozwój i regenerację LG, a także sposób, w jaki komunikacja między komórkami kieruje tymi procesami, pozostają niejasne.
Pojawienie się technik hodowli embrionalnej ex vivo pozwoliło na identyfikację ścieżek rozwojowych i regeneracyjnych w wielu rozgałęzionych narządach4. Hodowla ex vivo daje badaczowi możliwość manipulowania narządem (mechanicznym, genetycznym lub chemicznym) w określonych warunkach, a także charakteryzowania rozwoju narządu i interakcji komórka-komórka w czasie rzeczywistym. Egzorbitalny LG myszy jest bardzo podatny na tę technikę, a ostatnie badania zdefiniowały systemy sygnalizacyjne, które regulują jego rozwój2,5. Jednak pomimo potrzeby zrozumienia sygnałów molekularnych leżących u podstaw rozwoju i regeneracji LG, obecnie pozostaje ona niedostatecznie zbadana, prawdopodobnie z powodu trudności technicznych związanych z izolacją narządu. W tym artykule opisujemy, jak wyizolować i przeprowadzić hodowlę ex vivo embrionalnego mysiego LG w celu zdefiniowania programów rozwojowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie prace na zwierzętach były wykonywane zgodnie z zaleceniami zawartymi w Przewodniku dla Opieki i Użytkowania Zwierząt Laboratoryjnych National Institutes of Health. Protokół został zatwierdzony przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt (IACUC) Uniwersytetu Kalifornijskiego w San Francisco.
1. Embrionalne gruczoły łzowe myszy (LG): Pobieranie i mikrodysekcja
- Zgodnie z procedurami zatwierdzonymi przez Komitet Etyki ds. Zwierząt do Badań Naukowych, eutanazja ciężarnych samic CD-1 (lub transgenicznych) w czasie z rosnącym poziomem wdychania CO2 , a następnie potwierdzenie przez zwichnięcie szyjki macicy w celu pobrania zarodków w odpowiednim dniu embrionalnym. Oznacz dzień odkrycia czopa dopochwowego e0,
Uwaga: Gruczoły łzowe (LG) można zbierać od stadium pojedynczego pąka e14. Jednak zarodki e16 (5 - 10 pąków) dają najbardziej spójne wyniki dla hodowli ex vivo. - Wysterylizuj brzuszną stronę myszy za pomocą 70% etanolu. Uszczypnij skórę i wykonaj nacięcie w linii środkowej sterylnymi nożyczkami chirurgicznymi; Przeciąć skórę i otrzewną, aby odsłonić jamę brzuszną. Usuń 2 rogi macicy, przecinając wzdłuż mezometrium na górze każdego rogu macicy i umieść w zimnym PBS (sól fizjologiczna buforowana fosforanami) lub pożywce DMEM F12 uzupełnionej 100 U/ml penicyliny i 100 μg/ml streptomycyny.
- Za pomocą kleszczy (#4) usuń zarodki z worków owodniowych i umieść je na drugiej sterylnej szalce Petriego zawierającej zimny PBS. Uważaj, aby nie dotykać oczu ani obszaru głowy.
- Umieść zarodek w mikroskopie preparacyjnym z podstawą transilluminacyjną. Jeśli zarodek jest kroki 1.5 - 1.7. Jeśli zarodki są >e17, te kroki mogą być pomocne, ale nie są konieczne, dlatego przejdź do kroku 1.8.
- Odetnij głowę od tułowia tuż poniżej dolnej żuchwy (krok 1, rysunek 2) za pomocą sterylnego skalpela (ostrze #10). Obróć głowę tak, aby żuchwa znalazła się teraz na płytce preparcyjnej. Użyj kleszczy, aby ustabilizować głowę i skalpela, aby usunąć około 1/4 grzbietowej strony mózgu (krok 2, 1cięcie, ryc. 2) – jest to szczególnie ważne, gdy chrząstka sztywnieje około e15.
- Ustaw głowę tak, aby skalpel mógł przebić nos między oczami. Wykonaj nacięcie przez środek głowy, tak aby oczy znalazły się teraz na oddzielnych połówkach (krok 2, 2i cięcie, rysunek 2).
- Używając dwóch kleszczy #5, weź połowę głowy i usuń nadmiar tkanki (patrz krok 3, Rysunek 2). Pamiętaj, aby ustawić głowę tak, aby LG (znajdujący się w dolnym tylnym kąciku oka) nie został utracony w tym procesie usuwania. Usuń nadmiar tkanki mózgowej, chrzęstnej i nosowej otaczającej i pod okiem. Ponieważ gruczoł jest ledwo widoczny w tym momencie, upewnij się, że oko jest prawidłowo zorientowane po usunięciu nadmiaru tkanki, aby uniknąć utraty lokalizacji LG.
- Ostrożnie chwyć skórę od tylnego, dolnego kącika oka obiema kleszczami. Usuń skórę, ostrożnie rozciągając kleszcze, aby odsłonić LG. Użyj dodatkowego oświetlenia powyżej i poniżej tkanki, aby pomóc w wizualizacji LG.
Uwaga: LG, wyróżniający się wyglądem jako pączek na kanale w ciemniejszej, skondensowanej mezenchymie, powinien być widoczny w tym miejscu. - Ostrożnie zacznij preparować LG i związaną z nim mezenchymę (patrz schemat i zdjęcia) z otaczającej tkanki za pomocą kleszczy, uważając, aby nie chwycić LG ani związanego z nim kanału. Gdy gruczoł zostanie uwolniony od otaczającej tkanki, delikatnie usuń cały gruczoł, chwytając nabłonek otaczający oko u podstawy przewodu LG. Zadbaj o zachowanie mezenchymimy otaczającej nabłonek, którą można zaobserwować jako skondensowaną mezenchymę, w którą nabłonek wchodzi.
UWAGA: Może być konieczne dodatkowe usunięcie tkanki (wszelkie małe fragmenty kości, mięśnie i tkanka łączna), aby uniknąć czynników sygnalizacyjnych / wzrostowych z sąsiedniej tkanki. - W przypadku hodowli należy zebrać 4-5 gruczołów i związaną z nimi mezenchymę na płytkę (LG są posiewane natychmiast po rozbiorze); zebrać co najmniej 14 gruczołów na 100 μl buforu do lizy RNA dla RT-PCR6.
2. Przygotuj płytki do hodowli ex vivo
Ta procedura opiera się na tej zastosowanej do rozwijającego się gruczołu ślinowego7,8.
- Dodać 200 μl pożywki hodowlanej DMEM F12 (uzupełnionej o 100 μg/ml penicyliny i 100 μg/ml streptomycyny) z 50 μg/ml kwasu askorbinowego i 50 μg/ml holotransferyny do naczynia mikrostudzienkowego ze szklanym dnem o średnicy 50 mm7,
Uwaga: DMEM F12 został wybrany, ponieważ wcześniej stwierdziliśmy, że maksymalizuje morfogenezę w embrionalnym gruczole ślinowym. - Umieść filtr z membraną poliwęglanową o średnicy 13 mm z porami 0,1 μm na wierzchu mediów.
- Opcjonalny krok: Rozcieńczyć laminę 3-D w stosunku 1:1 za pomocą DMEM/F12, aby uzyskać końcowe stężenie 3 mg/ml (użyj pipety 200 μl do delikatnego wymieszania; odwiruj przez 1 minutę, jeśli pojawią się pęcherzyki). Dodać 15 μl rozcieńczonej 3-D lamininy do filtra.
Uwaga: Stwierdzono, że to rozcieńczenie jest optymalne do utrzymania LG w stanie 3D bez uszczerbku dla rozgałęzień nabłonka. Nie jest to jednak niezbędne dla kultury LG. - Umieść 4 - 5 LG na filtrze lub w lamininie. Hodowla LG ex vivo przez 24 - 48 godzin (ryc. 3) lub utrwalenie 4% PFA przez 20 min w celu dalszej analizy za pomocą qPCR lub barwienia immunologicznego (ryc. 4). Analiza qPCR embrionalnej tkanki gruczołowej znajduje się w Rebustini et al., 2011. Aby zapoznać się z analizą immunofluorescencyjną embrionalnych tkanek gruczołowych, zapoznaj się z następującymi cytatami: Hoffman i wsp., (2002) oraz Steinberg i wsp., (2005).
3. Gruczoły łzowe myszy poporodowe i dorosłe (LG): Rozwarstwienie
- Poddaj mysz eutanazji myszy po urodzeniu zgodnie z odpowiednimi standardami komisji etycznej ds. zwierząt. W przypadku szczeniąt po urodzeniu w 8 dniu lub młodszych należy poddać się eutanazji, odcinając głowę sterylnymi nożyczkami. W 8. dniu po porodzie lub starszym spryskaj sierść 70% etanolem.
- Aby zlokalizować LG, połóż mysz boczną stroną do góry pod mikroskopem preparacyjnym z oświetleniem z góry. Uwaga: LG po urodzeniu i u dorosłych jest otoczony tętnicą szyjną, mięśniem żwacza i skórą właściwą (patrz ryc. 5).
- Za pomocą małych nożyczek preparacyjnych wykonaj małe nacięcie w naskórku z boku od miejsca, w którym powinien znajdować się LG.
- Za pomocą kleszczy rozciągnij naskórek w kierunku ucha, aby odsłonić LG.
- Użyj kleszczy, aby delikatnie poluzować LG z otaczającej tkanki.
- Gdy LG zostanie uwolniony z otaczającej tkanki, ostrożnie wyjmij LG za przewód, chwytając za miejsce, w którym przewód i nabłonek otaczający oko łączą się (ryc. 1).
- Umieść LG w buforze do lizy RNA dla RT-PCR lub utrwal za pomocą 4% PFA na 20 minut w celu barwienia immunologicznego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Gruczoły łzowe (LG) rozwijają się poprzez proces morfogenezy rozgałęziania nabłonka. Obrazy w jasnym polu embrionalnych LG wypreparowanych w dniach e14, e15, e16, e17 oraz w dniu P2 ilustrują ten proces.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wszechstronność w hodowli i manipulacji LG ex vivo zapewnia znaczące korzyści w badaniu jego rozwoju. Obejmuje to szybkość, z jaką badacz jest w stanie testować hipotezy i mnogość perturbacji, które można wykonać, aby ocenić, w jaki sposób komórki nabłonkowe, neuronalne, śródbłonkowe i mezencyhmalne oddziałują na siebie, tworząc narząd. Istnieje jednak szereg zastrzeżeń związanych z korzystaniem z tego modelu. Po pierwsze, ze względu na izolację, gruczoł nie jest już połączony z obwodowym układem naczyniowym lub...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy pragną podziękować za dofinansowanie zapewnione przez Program Alokacji Zasobów UCSF.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM/F12 bez HEPES | SH3027101 | Thermo Scientific | |
| Penicylina-Streptomycyna | P0781 | Sigma-Aldrich | |
| z surowicy bydlęcej | A9576 | Sigma-Aldrich | |
| Paraformaldehyd 16% roztwór | 15710 | Mikroskopia elektronowa | Rozcieńczony do 4% w 1x |
| PBS Sól fizjologiczna buforowana fosforanem 10x | BP665-1 | Fisher Scientific | |
| Sól fizjologiczna buforowana fosforanem 1x | Przygotowana z 10x zapasu | ||
| holo-transferyny bydlęcej | T1283 | Sigma-Aldrich | 25 mg/ml roztwór podstawowy w wodzie. Zamroź jednorazowe podwielokrotności przy -20 °C. Dodać do pożywki DMEM/F12 do końcowego stężenia 50 μ g/ml. |
| Kwas L-askorbinowy (Witamina C) | A4544 | Sigma-Aldrich | 25 mg/ml roztwór podstawowy w wodzie. Zamroź jednorazowe podwielokrotności przy -20 °C. Dodać do pożywki DMEM/F12 do końcowego stężenia 50 μ g/ml. |
| płytki BioLite 100 mm poddane obróbce kultur tkankowych | 130182 | Thermo Scientific | Płytki niepoddane hodowli tkankowej. |
| Mikroskop stereoskopowy z iluminatorem podstopniowym | Stemi 2000 | Carl Zeiss | Można użyć dowolnego stereoskopowego mikroskopu preparacyjnego, który ma podstawę światła przechodzącego. |
| Podstawa iluminatora stopnia do mikroskopu stereoskopowego | TLB 4000 | Diagnostics Instruments, Inc. | |
| Sokół 35 mm Naczynia poddane kulturze tkankowej | 353001 | Corning | Można również stosować płytki niepoddane hodowli tkankowej. |
| Naczynia z dnem ze szkła niepowlekanego 50 mm | P50G-1.5-14-F | MatTek Corporation | |
| Mikroskop fluorescencyjny szerokokątny | Axio Observer Z1 | Carl Zeiss | Każdy mikroskop fluorescencyjny (pionowy, odwrócony lub stereoskopowy) może być używany do monitorowania ekspresji GFP przy małym powiększeniu za pomocą dołączonej kamery cyfrowej. |
| Mikroskop konfokalny | TCS SP5 | Leica Microsystems | Mikroskopia konfokalna jest niezbędna, aby zobaczyć szczegółowe struktury komórkowe. Można użyć dowolnego mikroskopu konfokalnego. |
| Kleszczyki do mikro-cienkich szczypiec SWISS, #5 (11.2 cm) | 17-305X | Integra LifeSciences Corporation | Do usuwania mezenchymy z nabłonka wymagane są drobne końcówki. Można również użyć igieł wolframowych. |
| Kleszcze Dumont Standard, #5 (11 cm) | 91150-20 | Fine Science Tools (USA), Inc. | Idealny do zbierania gruczołów z zarodków. |
| Plastikowe rękojeści noży chirurgicznych wielokrotnego użytku, styl nr 3. | 4-30 | Integra LifeSciences Corporation | |
| , nr 10 | 4-310 | Integra LifeSciences Corporation | |
| Zestaw do izolacji RNAqueous-Micro Total RNA | AM1931 | Life Technologies | |
| Cultrex 3D Culture Matrix Laminin I | 3446-005-01 | Trevigen | 6 mg / ml zapas rozcieńczony 1:1 z DMEM/F12 |
| Crl w ciąży w czasie: CD1 (ICR) | Charles River Labs Embriony | są zbierane w dniu 14 (z dniem odkrycia czopa wyznaczonym jako dzień 0). | |
| Membrany hydrofilowe trawione śladem nukleoporowym, 0,1 μ m wielkość porów, 13 mm | 110405 | Whatman | |
| Myszy Pax6-Cre w ciąży w ciąży z użyciem gfp | Tg(Pax-Cre, GFP)1Pgr | The Jackson Laboratory | Opcjonalne myszy do nauki lokalizowania LG. |
Bibliografia
- Liu, K. C., Huynh, K., Grubbs, J., Davis, R. M. Autoimmunity in the pathogenesis and treatment of keratoconjunctivitis sicca. Current allergy and asthma reports. 14, 403(2014).
- Makarenkova, H. P., et al. FGF10 is an inducer and Pax6 a competence factor for lacrimal gland development. Development. 127, Cambridge, England. 2563-2572 (2000).
- Dartt, D. A. Neural regulation of lacrimal gland secretory processes: relevance in dry eye diseases. Progress in retinal and eye research. 28, 155-177 (2009).
- Nigam, S. K. Concise review: can the intrinsic power of branching morphogenesis be used for engineering epithelial tissues and organs. Stem cells translational medicine. 2, 993-1000 (2013).
- Qu, X., et al. Glycosaminoglycan-dependent restriction of FGF diffusion is necessary for lacrimal gland development. Development. 139, Cambridge, England. 2730-2739 (2012).
- Rebustini, I. T., et al. MT2-MMP-dependent release of collagen IV NC1 domains regulates submandibular gland branching morphogenesis. Developmental cell. 17, 482-493 (2009).
- Hoffman, M. P., et al. Gene Expression Profiles of Mouse Submandibular Gland Development: FGFR1 Regulates Branching Morphogenesis in Vitro Through BMP- and FGF-Dependent Mechanisms. Development. 129, 24-5778 (2002).
- Steinberg, Z., et al. FGFR2b signaling regulates ex vivo submandibular gland epithelial cell proliferation and branching morphogenesis. Development. 132, Cambridge, England. 1223-1234 (2005).
- Knox, S. M., et al. Parasympathetic innervation maintains epithelial progenitor cells during salivary organogenesis. 329, Science. New York, N.Y. 1645-1647 (2010).
- Magenheim, J., et al. Blood vessels restrain pancreas branching, differentiation and growth. Development. 138, Cambridge, England. 4743-4752 (2011).
- Jaskoll, T., et al. FGF10/FGFR2b signaling plays essential roles during in vivo embryonic submandibular salivary gland morphogenesis. BMC developmental biology. 5, 11(2005).
- Takasato, M., et al. Directing human embryonic stem cell differentiation towards a renal lineage generates a self-organizing kidney. Nature cell biology. 16, 118-126 (2014).
- Knox, S. M., et al. Parasympathetic stimulation improves epithelial organ regeneration. Nature communications. 4, 1494(2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
