Prezentujemy metodę zastosowania fizjologicznego pola elektrycznego do migrujących, unieśmiertelnionych komórek prostaty w specjalnie wykonanej komorze galwanotaksji. Za pomocą tej metody wykazujemy, że 2 linie nienowotworowych komórek prostaty wykazują różne stopnie kierunkowości migracji w terenie.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wykorzystanie specjalnie zaprojektowanych komór galwanotaksji do badania kierunkowej migracji komórek prostaty
W tym artykule
Podsumowanie
Streszczenie
Fizjologiczne pole elektryczne służy specyficznym funkcjom biologicznym, takim jak kierowanie migracją komórek w rozwoju zarodka, wzrost neuronów i gojenie się ran nabłonkowych. Zastosowanie pola elektrycznego prądu stałego do hodowanych komórek in vitro indukuje kierunkową migrację komórek lub galwanotaksję. Demonstrowana tutaj metoda galwanotaksji 2-wymiarowej jest modyfikowana za pomocą wykonanych na zamówienie komór z poli(chlorku winylu) (PVC), szklanej powierzchni, elektrod platynowych i zastosowania zmotoryzowanego stolika, na którym obrazowane są ogniwa. Komory z PVC i elektrody platynowe wykazują niską cytotoksyczność, są niedrogie i nadają się do wielokrotnego użytku. Szklana powierzchnia i zmotoryzowany stolik mikroskopowy poprawiają jakość obrazów i umożliwiają ewentualne modyfikacje powierzchni szkła i obróbkę komórek. Sfilmowaliśmy galwanotaksję dwóch nienowotworowych, unieśmiertelnionych SV40 linii komórek prostaty, pRNS-1-1 i PNT2. Te dwie linie komórkowe wykazują podobne prędkości migracji i obie migrują w kierunku katody, ale wykazują inny stopień kierunkowości w galwanotaksji. Wyniki uzyskane za pomocą tego protokołu sugerują, że linie komórkowe pRNS-1-1 i PNT2 mogą mieć różne cechy wewnętrzne, które regulują ich kierunkowe odpowiedzi migracyjne.
Wprowadzenie
Endogenne pola elektryczne są wykrywane w różnych tkankach, takich jak skóra 1, 32, 33 i mózg 2. Fizjologiczne pole elektryczne pełni określone funkcje biologiczne, w tym kieruje rozwojem zarodka 3, 4, kieruje rozwojem procesów neuronalnych 5, 6 i sprzyja zamykaniu ran nabłonka i rogówki 1, 7. In vitro zastosowanie pola elektrycznego prądu stałego do hodowanych komórek naśladuje fizjologiczne pole elektryczne i indukuje kierunkową migrację komórek, czyli galwanotaksję. Galwanotaksję badano w fibroblastach 8, keratynocytach ryb 9, keratynocytach ludzkiego nabłonka i rogówki 10-12, limfocytach 13, neuroblastach 2 i neuronalnych komórkach progenitorowych 14. Po wystawieniu na działanie zastosowanego pola większość badanych komórek migruje kierunkowo w kierunku bieguna katodowego (-). Jednak kilka komórek rakowych, w tym wysoce przerzutowe ludzkie komórki raka piersi i ludzka linia komórkowa raka prostaty PC-3M, przemieszcza się do bieguna anodowego (+) 15, 16. Zaproponowano kilka mechanizmów pośredniczących w galwanotaksji lub wyjaśniających zdolność komórek do wyczuwania pola elektrycznego, w tym aktywację receptorów EGF 12, nabłonkowego kanału sodowego 17, PI3K i PTEN 18 oraz uwalnianie jonów wapnia 15, 19. Mechanizm ten nie jest jeszcze w pełni poznany i możliwe, że w galwanotaksji zaangażowanych jest wiele szlaków sygnałowych.
Metoda 2-wymiarowej galwanotaksji, którą tutaj demonstrujemy, jest przydatna do scharakteryzowania kierunkowej migracji przylegających, ruchliwych komórek, zarówno do monitorowania migracji pojedynczych komórek 10, 12, 17, jak i migracji arkusza zlewających się komórek 18, 20. Technika ta została zmodyfikowana z Peng i Jaffe21 oraz Nishimura et al.10 z wykonanymi na zamówienie, przezroczystymi komorami z PVC, z wyjmowanymi szkiełkami nakrywkowymi umożliwiającymi łatwe pobieranie komórek po galwanotaksji w celu analizy wtórnej, takiej jak obrazowanie immunofluorescencyjne. Szklana powierzchnia komór galwanitoraksji jest kompatybilna optycznie, co pozwala na filmowanie w dużym powiększeniu i z komórkami znakowanymi fluorescencyjnie. Pozwala również na eksperymentalne projektowanie z modyfikacją powierzchni szkła, taką jak zmiana powłoki powierzchniowej lub ładunków. W komorach zastosowano przekładki wykonane ze szkła nakrywkowego nr 1 w celu zminimalizowania przepływu prądu przez ogniwa; Dlatego ogrzewanie dżulowe, które jest proporcjonalne do kwadratu przepływu prądu, nie przegrzałoby ogniw podczas eksperymentu. Mostki agarowe łączące zapobiegają bezpośredniemu kontaktowi elektrod z komórkami i zapobiegają zmianie pH podłoża lub stężenia jonów podczas galwanoksji.
Dwie nierakotwórcze linie komórek prostaty ludzkiej zostały zbadane pod kątem ich reakcji galwanotoksji w tym badaniu. pRNS-1-1 22 i PNT2 23 są unieśmiertelnionymi SV40, zależnymi od czynnika wzrostu liniami komórkowymi eksprymującymi markery nabłonkowe cytokeratyny 5, 8, 18 i 19 z niską lub zerową ekspresją antygenu specyficznego dla prostaty (PSA). Obie linie komórkowe zachowują wielokątną morfologię normalnych komórek nabłonkowych, ale nieprawidłowość chromosomów zaobserwowano w kariotypowaniu 22, 24. Chociaż pRNS-1-1 i PNT2 mają podobne zachowania w większości eksperymentów, wykazują różnice w tworzeniu struktury groniastej i galwanotaksji. Na matrycy 3D, Matrigel, komórki pRNS-1-1 tworzą puste struktury groniaste o światłach przypominających normalną tkankę gruczołu krokowego 25. Jednak komórki PNT2 tworzą stałe sferoidy bez światła lub spolaryzowanego nabłonka 26. Komórki pRNS-1-1 wykazują również wyższą odpowiedź galwanotaktyczną niż PNT2 w obecnym badaniu. Korelacja między tworzeniem struktury groniastej a galwanotaksją w pRNS-1-1 sugeruje, że sygnały galwanotaktyczne mogą odgrywać rolę w organizowaniu ruchów tkanki gruczołu krokowego w odpowiedzi na endogenne pola elektryczne i dostarczają dalszych cech do rozróżnienia między tymi 2 liniami komórkowymi.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Hodowla komórek prostaty
- Kultywuj komórki prostaty pRNS-1-1 i PNT2 na szalkach hodowlanych 100 mm w pożywce RPMI 1640 uzupełnionej o 10% FBS oraz antybiotyk-antymykotyk w temperaturze 37 °C przy 5% CO2. Odnawiaj pożywkę każdego dnia, aż komórki osiągną 80% konfluencji przed rozpoczęciem eksperymentów z galwanotaksją.
2. Montaż komór do galwanotaksji
- Montaż komór dolnych
- Przetrzeć plastikową komorę do galwanotaksji 2-propanolem. Za pomocą strzykawki nanieść silikonowy uszczelniacz klasy morskiej wokół okrągłych otworów na spodniej stronie komory i przymocować duże szkiełko podstawowe (Rysunek 1). Użyć tylnej części aplikatora bawełnianego do dociśnięcia szkiełka i usunąć nadmiar kleju za pomocą patyczków bawełnianych. Okrągłe otwory umożliwiają przepływ medium i prądu elektrycznego nad komórkami znajdującymi się pomiędzy dwoma wewnętrznymi zbiornikami z medium.
- Za pomocą rylca diamentowego wyciąć z małego szkiełka podstawowego dystansery o wymiarach 6 mm x 25 mm.
- Odwrócić komorę. Za pomocą strzykawki i/lub metalnej szpatułki nanieść 2 paski kleju silikonowego, aby utworzyć powierzchnię kanału o wymiarach 10 mm x 25 mm do przylegania komórek pomiędzy 2 okrągłymi otworami na dolnym szkle. Przykleić 2 szklane dystansery pomiędzy 2 okrągłymi otworami. Użyć tylnej części aplikatorów bawełnianych do dociśnięcia dystanserów i usunąć nadmiar kleju za pomocą patyczków bawełnianych i/lub wykałaczek.
- Suszyć komorę przez 24 h aż do utwardzenia kleju silikonowego. Moczyć komorę w wodzie destylowanej przez noc w celu usunięcia pozostałości kwasu octowego z kleju. Osuszyć komorę do natychmiastowego użycia lub przechowywać ją do późniejszego wykorzystania w czystym pojemniku.
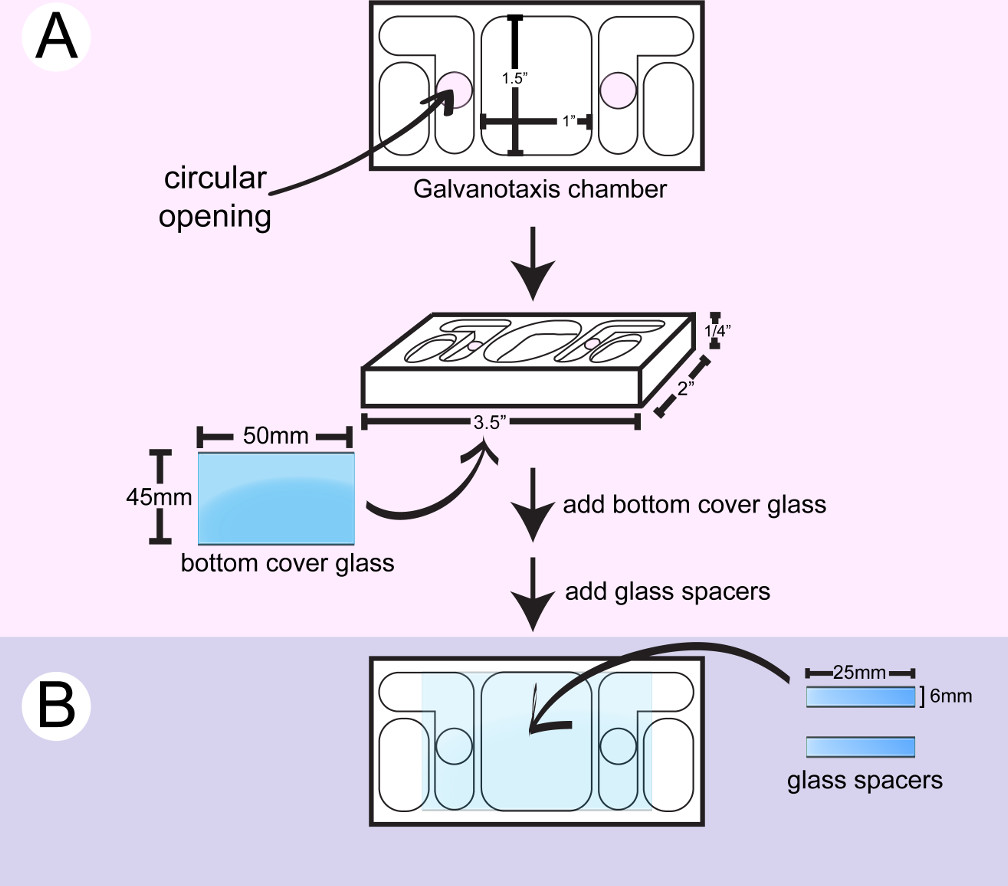
Rysunek 1: Montaż dolnej komory do galwanotaksji. A>) Duże szkiełko podstawowe zostaje przymocowane do spodu czystej komory. B>) Dwa szklane dystansery zostają przyklejone pomiędzy 2 okrągłymi otworami, aby utworzyć kanał o wymiarach 10 mm x 25 mm dla przylegania komórek.
- Wysiewanie komórek do komór do galwanotaksji
- Przygotować wymaganą liczbę komór do galwanotaksji niezbędnych do eksperymentu. Każda linia komórkowa lub wariant traktowania wymaga jednej komory do galwanotaksji. Przetrzeć komory do galwanotaksji 2-propanolem. Przemyć komory sterylnym PBS 3 razy i sprawdzić przepływ cieczy pomiędzy 2 okrągłymi otworami w komorach.
- Umieścić komory w sterylnych szalkach do hodowli komórkowych i pozostawić do wyrównania temperatury w 37 °C przez 15 min. Odczepić komórki prostaty z naczynia hodowlanego, używając 5 ml 0,25% Trypsyny-EDTA w 37 °C przez 5 min. Zneutralizować trypsynę-EDTA za pomocą 5 ml 10% FBS w PBS.
- Przenieść komórki do probówek 15 ml i wirować przez 5 min przy 200 x g w 37 °C. Odessać nadsącz i resuspenderować komórki w 1 ml medium hodowlanego.
- Pobrać 20 µl zawiesiny komórkowej do komory licznej i obliczyć liczbę komórek. Dostosować stężenie komórek do 8 x 10⁴ komórek/ml za pomocą medium hodowlanego.
- Wyjąć komory do galwanotaksji z inkubatora 37 °C. Wysiać 350 µl zawiesiny komórkowej do każdej komory.
- Inkubować komórki w komorach przez noc w szalce hodowlanej z wilgotną chusteczką Kimwipe lub w komorze wilgotnościowej w inkubatorze w 37 °C przy 5% CO2.
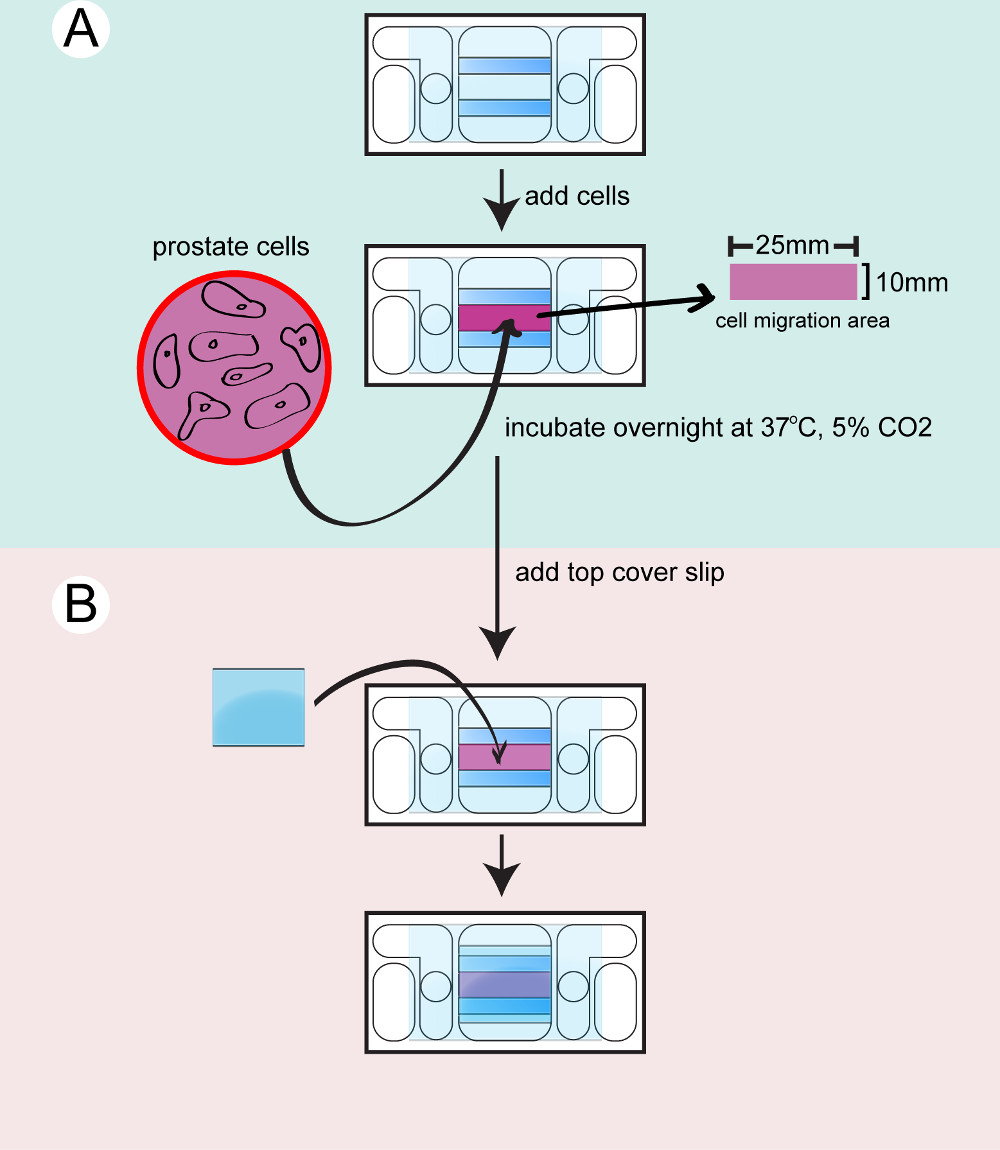
Rysunek 2: Wysiew komórek do komory. Dolna komora zostaje osuszona i oczyszczona. A) Komórki prostaty są trypsynizowane, policzone, przeniesione do komory i inkubowane przez noc. B) Przed filmowaniem do uszczelnienia komory przymocowano górne szkiełko nakrywkę.
- Montaż górnych komór
- Zmontuj górną komorę przed filmowaniem. Mikroskop pozwala na obrazowanie tylko jednej komory do galwanotaksji w danym czasie. Podgrzej 10 ml pożywki hodowlanej do 37 °C dla każdej komory do galwanotaksji. Przenieś komorę do galwanotaksji z inkubatorów na płytkę grzewczą o temperaturze 37 °C.
- Przepłucz komórki pożywką hodowlaną, aby usunąć komórki nieprzytwierdzone. Pozostaw w komorze 400 µl pożywki. Użyj strzykawki, aby nanieść smar wysokopróżniowy na górną część obu szklanych dystansów.
- Nałóż małe szkiełko nakrywkowe, aby uszczelnić komorę. Delikatnie dociśnij szkiełko nakrywkowe tylną stroną aplikatora bawełnianego. Wytrzyj nadmiar pożywki za pomocą patyczków bawełnianych.
- Osusz powierzchnię szkła i nanieś smar wysokopróżniowy, aby uszczelnić szczelinę między szkiełkiem nakrywowym a komorą. Do rozprowadzenia smaru użyj metalnej szpatułki. Dodaj 4 ml pożywki hodowlanej do wewnętrznych zbiorników i sprawdź przepływ cieczy między zbiornikami.
- Przygotowanie mostków agarowych
- Odetnij parę odcinków rurki PVC o długości 2 cali (503/16 ID x 5/16 OD x 1/16 Wall), odwróć je i włóż do zlewki o pojemności 100 ml.
- Odważ 200 mg Bacto-Agar i dodaj do kolby o pojemności 50 ml z 10 ml pożywki hodowlanej, aby przygotować 2% żel agarowy. Podgrzewaj w kuchence mikrofalowej przez 30 sec. Przenieś żel agarowy do plastikowych rurek za pomocą pipety transferowej. Pozostaw mostki agarowe w temperaturze pokojowej na 10 min, aby agar stężał.
- Dodaj 2 ml pożywki hodowlanej do zewnętrznych zbiorników komory do galwanotaksji. Wsuń mostki agarowe do wewnętrznych i zewnętrznych zbiorników z pożywką, aby przeprowadzić prąd.
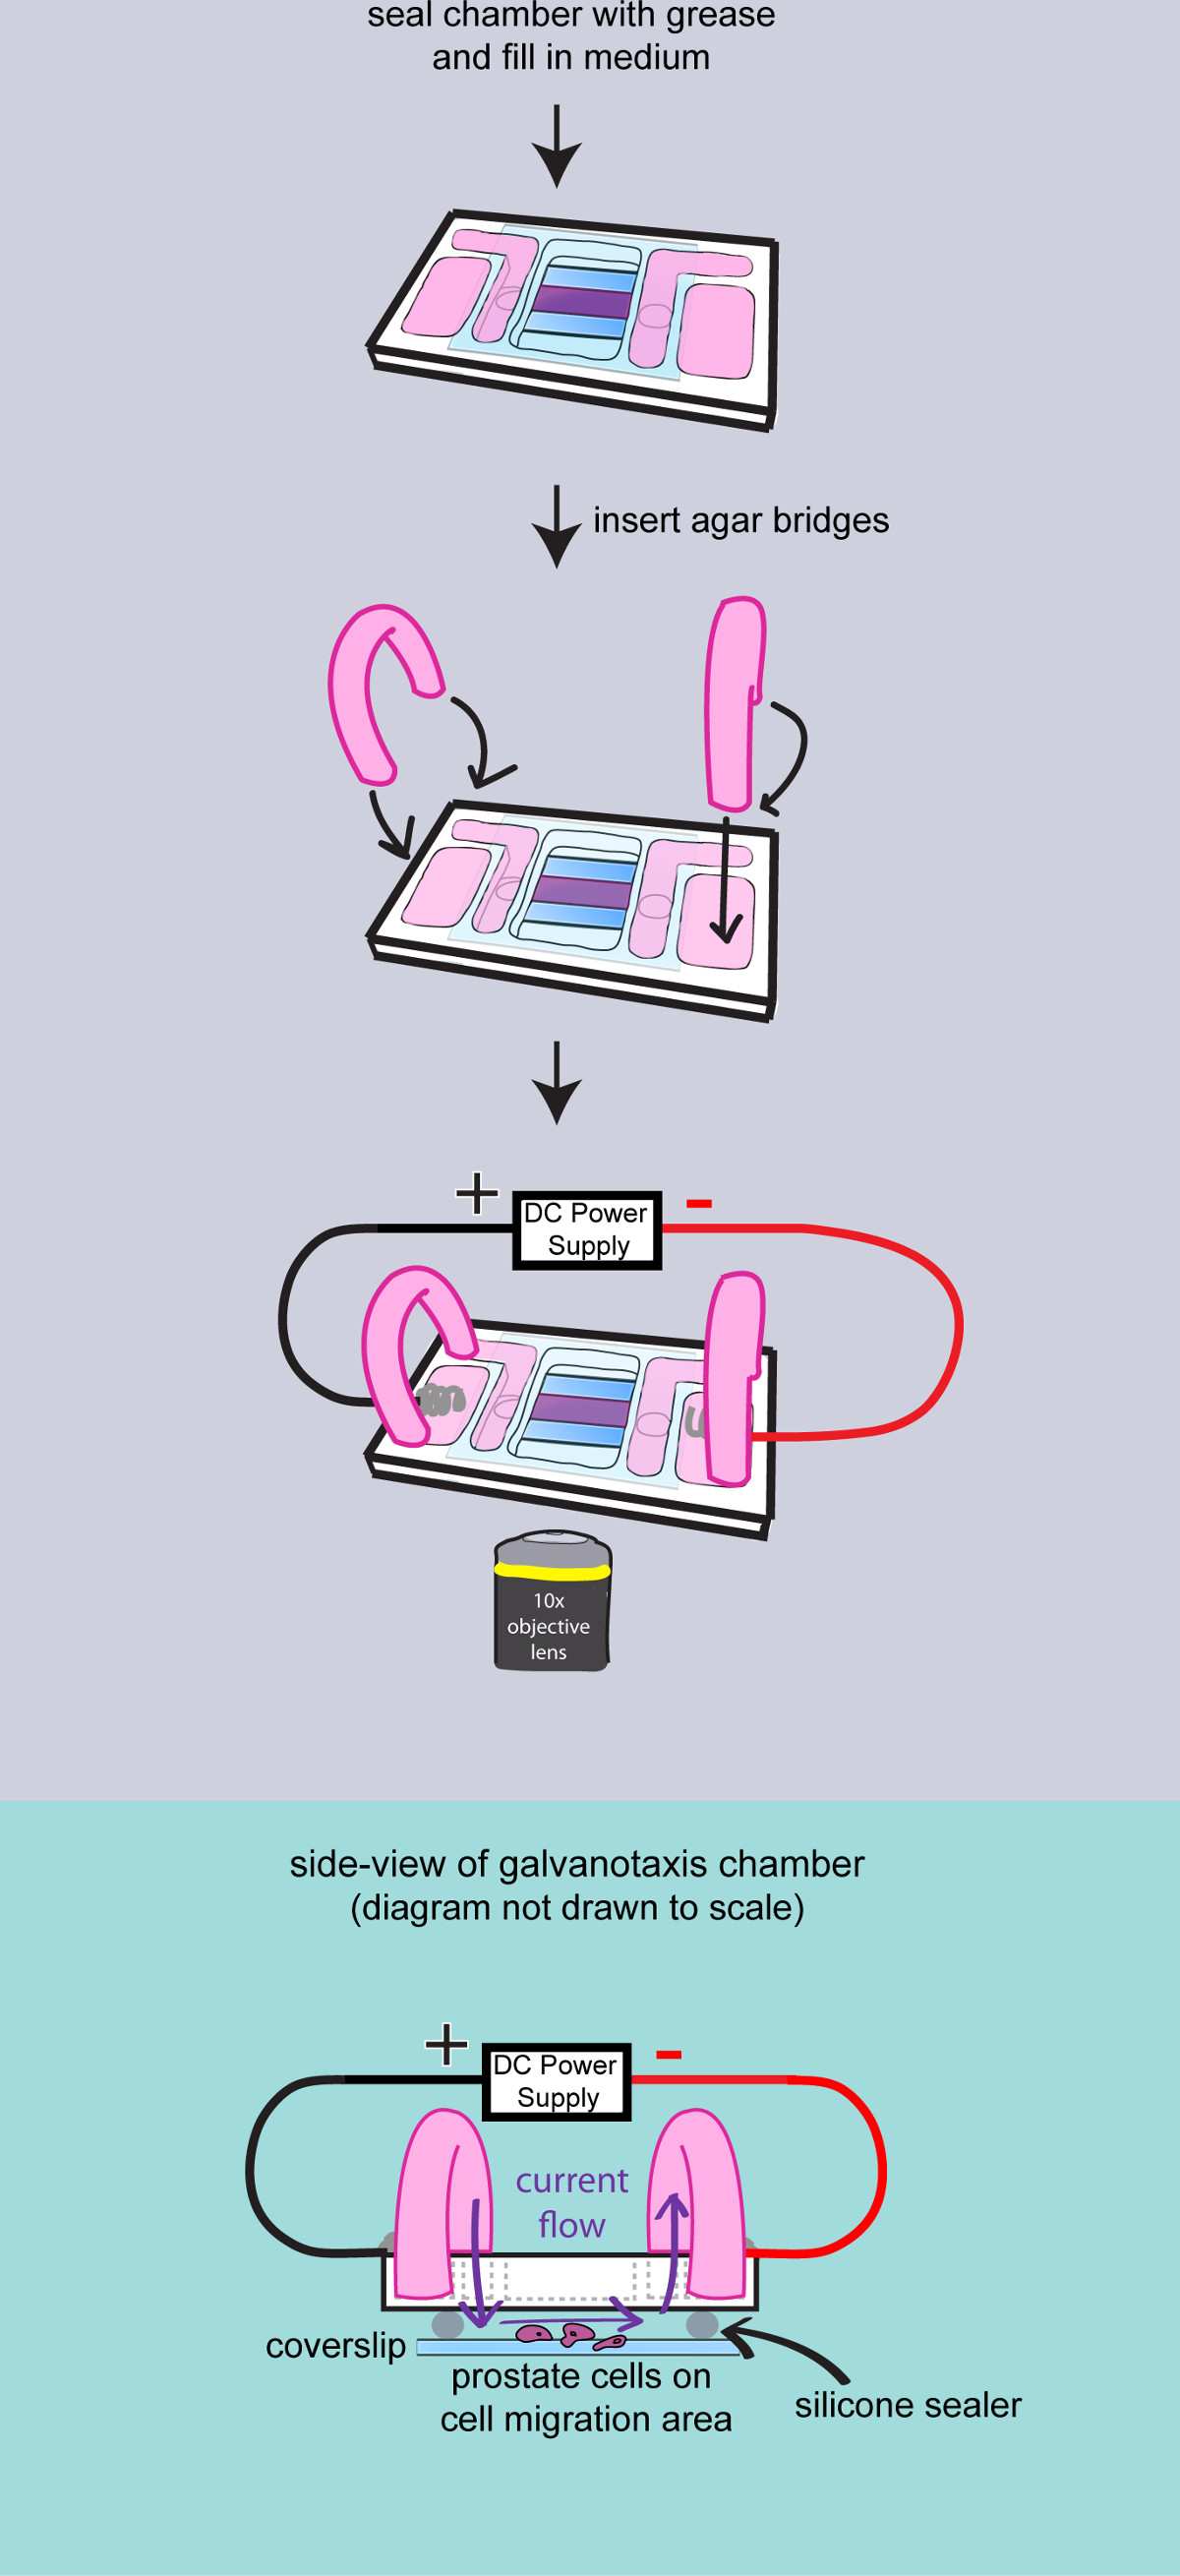
Rycina 3: Filmowanie komórek w komorze. Schemat przedstawiający końcowy montaż komory do galwanotaksji. Komora jest całkowicie uszczelniona smarem wysokopróżniowym. Do zbiorników dodaje się pożywkę, a do komory wprowadza dwa mostki agarowe. Następnie komora do galwanotaksji zostaje przeniesiona na stolik mikroskopu, a elektrody zostają podłączone w celu przyłożenia pola elektrycznego. Przedstawiono widok z boku zmontowanej komory do galwanotaksji, aby zilustrować, że prąd elektryczny przepływa nad komórkami poprzez mostki agarowe oraz przestrzeń między szkiełkiem nakrywkowym.
3. Obrazowanie time-lapse
- Na 2 h przed obrazowaniem włącz inkubator do temperatury 37 °C i 5% CO2 w powietrzu cyrkulującym.
- Włącz mikroskop i uruchom oprogramowanie do akwizycji obrazów. Skalibruj stolik mikroskopu i wybierz obiektyw 10X.
- Przenieś komory do galwanotaksji na stolik mikroskopu, przymocuj komorę taśmą i ustaw ostrość na komórkach. Włóż elektrody do galwanotaksji do zewnętrznych zbiorników, umieszczając katodę po prawej stronie. Zabezpiecz przewód i elektrody taśmą.
- Włącz zasilacz, aby przyłożyć pole elektryczne do komory. Zmierz napięcie wyjściowe woltomierzem w poprzek komory, aby osiągnąć 2,5 V dla komory o długości 25 mm (100 mV/mm). Utrzymuj natężenie pola podczas eksperymentu poprzez regulację prądu wyjściowego.
- W oprogramowaniu wybierz 10 punktów w obrębie komory do nagrywania, aby wygenerować dziesięć filmów time-lapse. Ustaw warunki akwizycji w odstępach 10-min przez 2 h.
- Rozpocznij nagrywanie i w razie potrzeby reguluj prąd wyjściowy.
- Po zakończeniu eksperymentu zdejmij komorę ze stolika i utrwal komórki 95% alkoholem. Rozbij komorę żyletką, aby ją wyczyścić i ponownie wykorzystać.
4. Kwantyfikacja galwanotaksji
- Obróć filmy time-lapse i zorientuj katodę tak, aby znajdowała się w górnej części obrazów. Wyeksportuj filmy do oprogramowania do śledzenia komórek.
- Ręcznie wyznacz pozycje (x,y) dla 10-20 komórek w każdym punkcie czasowym z każdego filmu (Rysunek 4 A, B). Odległości migracji oraz kąty względem kierunku północ-południe, odpowiadającego orientacji pola elektrycznego, zostaną obliczone w oprogramowaniu do śledzenia komórek (Rysunek 4C).
UWAGA: Średnia prędkość migracji jest obliczana na podstawie całkowitej odległości migracji oraz całkowitego czasu filmowania. Kierunkowość jest przeliczana z kątów na wartość cosinusa. Jeśli komórki migrują w sposób losowy, średnia wartość cosinusa będzie bliska zeru. Jeśli komórki migrują bezpośrednio w kierunku katody, wartość cosinusa wyniesie +1. Jeśli komórki migrują bezpośrednio w kierunku anody, wartość cosinusa wyniesie -1.
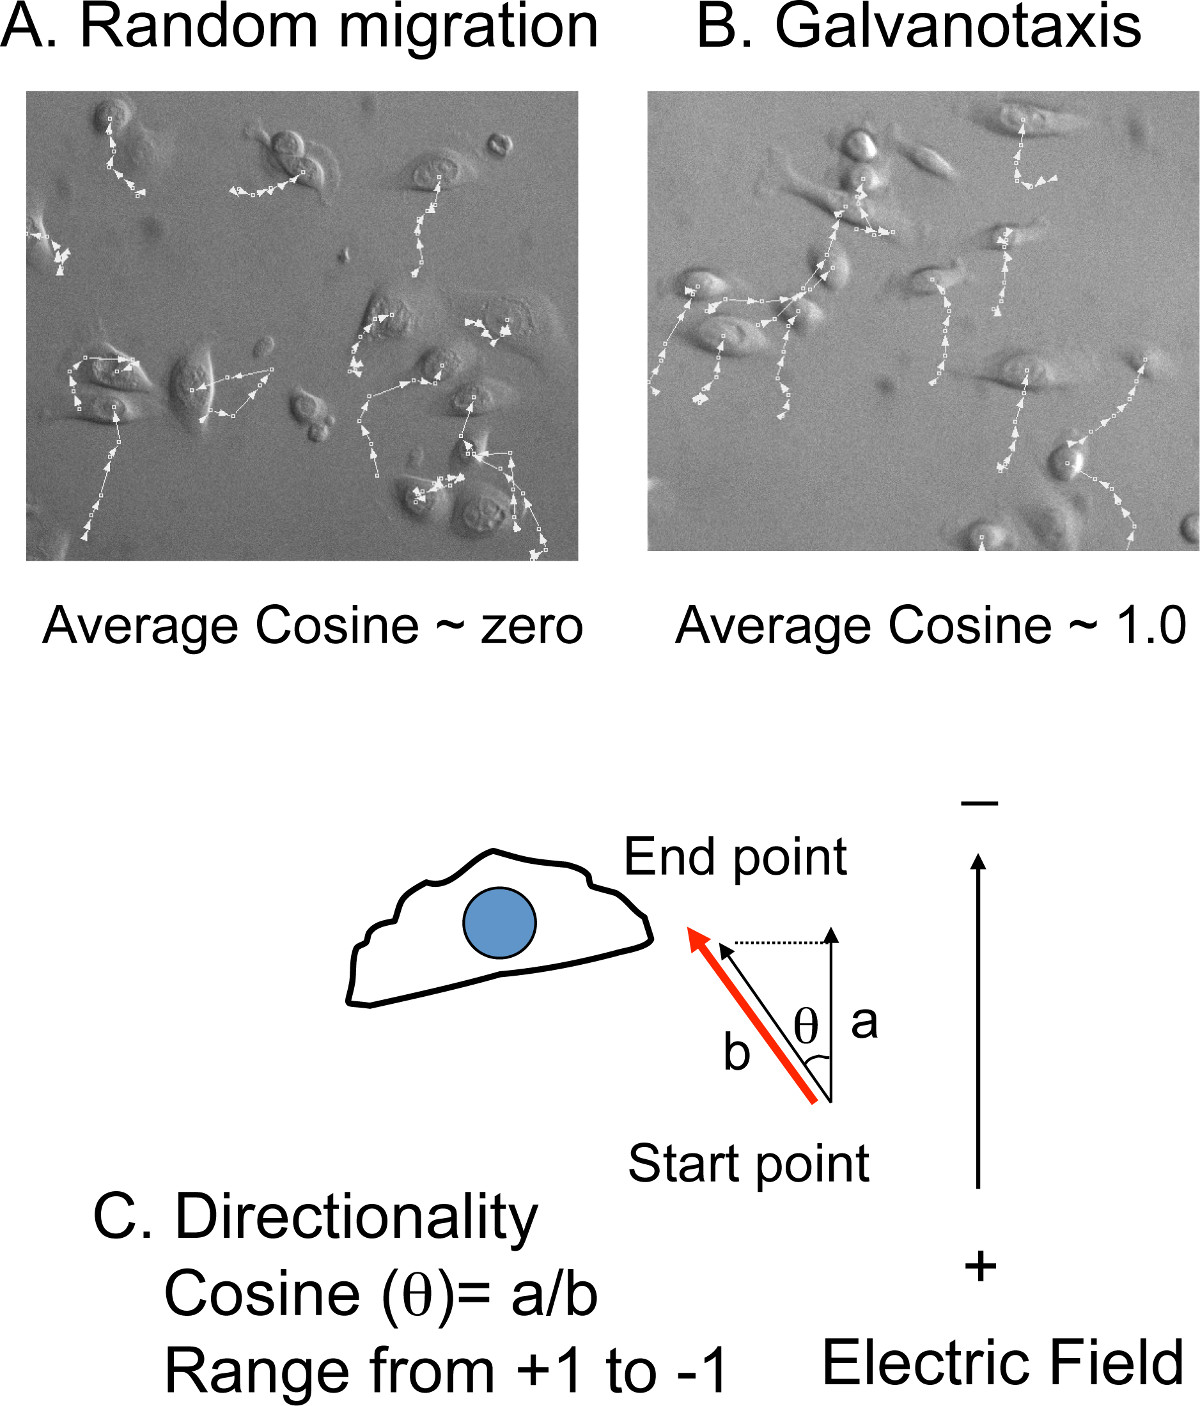
Rycina 4: Śledzenie komórek w celu pomiaru kierunkowości. A) Nałożenie linii śledzenia na obrazy komórek. Pozycje (x, y) komórek są śledzone ręcznie w filmach time-lapse. Jeśli komórki migrują losowo, średni cosinus jest bliski zeru. B) Jednakże, jeśli komórki migrują w kierunku katody lub anody, wartość średniego cosinusa jest bliska +1,0 (katoda) lub –1,0 (anoda). C) Kierunkowość jest reprezentowana przez wartość cosinusa, która jest przekształcana z kątów migracji (θ). Cosinus (θ) jest równy stosunkowi odległości a (dystans migracji) do odległości b (odległość rzutowana na kierunek pola elektrycznego).
- Zapisz pomiary. Zaimportuj dane do aplikacji bazodanowej, aby obliczyć wyniki zbiorcze.
- Wyeksportuj zbiorcze dane dotyczące średniej prędkości migracji oraz średniej wartości cosinusa do arkusza kalkulacyjnego, aby sporządzić wykresy słupkowe (Rycina 5).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Za pomocą tej metody zbadano dwie linie komórek prostaty (pRNS-1-1 i PNT2). Komórki obu linii migrują z podobną prędkością 1,0 +/- 0,3 µm/min w ciągu 2 godzin (Rycina 5A). Jednak kierunkowość względem pola elektrycznego wynosi 0,7 +/- 0,3 dla linii pRNS-1-1 oraz 0,2 +/- 0,8 dla linii PNT2 (Rycina 5B). Wyniki wykazują istotną różnicę w galwanotaksji tych dwóch linii komórkowych (p<0,01, śledzono 100 komórek), co sugeruje, że posiadają one różne mechanizmy sygnalizacji komórkowej, które...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Analiza odpowiedzi galwanotaksji komórki była ważnym wskaźnikiem funkcjonalnym dla wielu procesów migracji lub wzrostu komórek 27, 28. Tutaj używamy specjalnie wykonanej komory ze szklaną powierzchnią do filmowania dwóch linii komórek prostaty. Te linie komórkowe wykazały różne stopnie galwanotaksji i spekulujemy, że wewnątrzkomórkowa lokalizacja lub aktywacja białek pośredniczących w galwanotaksji może być zakłócona podczas procesu generowania nieśmiertelnych linii komórkowych, co skutkuje obserwowaną różnicą...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Linie komórkowe prostaty są uprzejmie dostarczane przez Dr. Ling-Yu Wang i Dr. Hsing-Jien Kung z Cancer Center, UC Davis. Ten projekt jest wspierany przez grant NIH galvanotaxis 4R33AI080604.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| komórki | |||
| pRNS-1-1 komórki | Lee, et al. (1994) | ||
| PNT2 komórki prostaty | Sigma-Aldrich | 95012613-1VL | Berthon, et al. (1995) |
| Medium i roztwory | |||
| RPMI 1640 medium | Invitrogen | 11875-093 | rozgrzać do 37 stopni C przed użyciem |
| Płodowa surowica bydlęca - Premium | Atlanta Biologicals | S11150 | 10% w PBS, rozgrzej do 37 &stopni; C przed użyciem |
| Antybiotyk-Antybiotyk (100x) | Life Technologies | 15240 | dodać 5 ml do 500 ml pożywki |
| 2-propanol | VWR | BDH1133-5GL | |
| PBS | - | - | 137 mM NaCl, 2,7 mM KCl, 4,3 mM Na2HPO4 i 1,5 mM KH2PO4 w 1,000 ml H2 O, pH do 7,4 i autoklawowane, podgrzać do 37 & stopni; C przed użyciem |
| 0,25% Trypsyna-EDTA | Invitrogen | 25200-056 | rozgrzać do 37 stopni; C przed użyciem traktuj komórki przez 3-5 minut w temperaturze 37 &; C |
| Urządzenie do galwanotaksji | |||
| komory galwanotaksyjne | Precision Plastics Inc, CA | Specjalnie zaprojektowane (1/4" x 2" x 3,5"), nietoksyczne, przezroczyste komory z PVC. Prosimy o kontakt z autorami w celu uzyskania specyfikacji projektu. | |
| Elektrody galwanotaksyjne | elektryczny UCD | Platynowe elektrody zwijane z elastycznymi przewodami Skrzynka | |
| zasilająca Galvanotaxis | Substrate Engineering, CA | Specjalnie zaprojektowana moc wyjściowa prądu stałego z woltomierzem | |
| Szkło pokrywowe mikroskopu, duże, 45 x 50 mm, nr 1.5 | Fisher | 12-544-F | |
| Szkło osłonowe mikroskopu, małe, 25 x 25 mm, nr 1 | ThermoScientific | 3307 | |
| Diamentowy marker punktowy | ThermoScientific | 750 | |
| Uszczelniacz silikonowy klasy morskiej, przezroczysty | 3M | 051135-08019 | |
| Smar wysokopróżniowy | Dow Corning | 2021846-0807 | |
| Strzykawka 6 ml | Fisher Scientific | 05-561-64 | |
| Nichiryo Strzykawka, 1,5 ml | Nichiryo | SG-M | |
| Aplikatory bawełniane | Purtian Medical Products | 806-WC | |
| Qtips | Johnson & Rury PVC Johnson | 729389 | |
| Nalgene 180 | Nalgene | 8000-9030 | 503/16 ID x 5/16 OD x 1/16 Wall |
| Bacto-Agar | Difco | 0140-01 | przygotuj 2% roztwór agaru |
| Razor Blade | Personna | 74-0001 | |
| Equipments and Software | |||
| Wirówka stołowa | Eppendorf | 5810R | obsługiwana z wirnikiem A-4-62 |
| Celometr Auto T4 | Nexcelom | Auto T4 | |
| Komory zliczające celometr | Nexcelom | CHT4-SD100-002 | obciążenie 20 μ l roztwory komórkowe do liczenia |
| Kultura Temp Płyta grzewcza | Bel-Art Scienceware | 370150000 | do utrzymywania komór galwanotaksji na poziomie 37 & stopni; C |
| Mikroskop Eclipse TE-2000 ze zmotoryzowanym stolikiem i komorą środowiskową | Obiektyw Nikon | ||
| Plan Fluor 10X/0,30 | Nikon | ||
| Retiga EX CCD | Qimaging | Chłodzony przetwornik CCD camara, monokolorowy, 12-bitowy | |
| Sprężone powietrze z 5% CO2 | Airgas | na specjalne zamówienie | |
| Volocity 6.3 | PerkinElmer | Oprogramowanie do pozyskiwania obrazów | |
| Improvision OpenLab 5.5.2 | PerkinElmer | Oprogramowanie śledzące komórki i dostosowane do pomiaru kątów migracji | |
| FileMaker Pro Advanced, 8.0 | FileMaker | ||
| Microsoft Excel 2008 dla komputerów Mac | Microsoft |
Bibliografia
- Reid, B., Nuccitelli, R., Zhao, M. Non-invasive measurement of bioelectric currents with a vibrating probe. Nat Protoc. 2 (3), 661-669 (2007).
- Cao, L., et al. Endogenous electric currents might guide rostral migration of neuroblasts. EMBO Rep. 14 (2), 184-190 (2013).
- Hotary, K. B., Robinson, K. R. Endogenous electrical currents and voltage gradients in Xenopus embryos and the consequences of their disruption. Dev Biol. 166 (2), 789-800 (1994).
- Hotary, K. B., Robinson, K. R. Evidence of a role for endogenous electrical fields in chick embryo development. Development. 114 (4), 985-996 (1992).
- Yamashita, M. Electric axon guidance in embryonic retina: galvanotropism revisited. Biochem Biophys Res Commun. 431 (2), 280-283 (2013).
- Wood, M. D., Willits, R. K. Applied electric field enhances DRG neurite growth: influence of stimulation media, surface coating and growth supplements. J Neural Eng. 6 (4), 046003(2009).
- Kucerova, R., et al. The role of electrical signals in murine corneal wound re-epithelialization. J Cell Physiol. 226 (6), 1544-1553 (2011).
- Sillman, A. L., Quang, D. M., Farboud, B., Fang, K. S., Nuccitelli, R., Isseroff, R. R. Human Dermal fibroblasts do not exhibit directional migration on collagen I in direct-current electric fields of physiological strength. Exp Dermatol. 12 (4), 396-402 (2003).
- Allen, G. M., Mogilner, A., Theriot, J. A. Electrophoresis of cellular membrane components creates the directional cue guiding keratocyte galvanotaxis. Curr Biol. 23 (7), 560-568 (2013).
- Nishimura, K. Y., Isseroff, R. R., Nuccitelli, R. Human keratinocytes migrate to the negative pole in direct current electric fields comparable to those measured in mammalian wounds. J Cell Sci. 109 (1), 199-207 (1996).
- Farboud, B., Nuccitelli, R., Schwab, I. R., Isseroff, R. R. DC electric fields induce rapid directional migration in cultured human corneal epithelial cells. Exp Eye Res. 70 (5), 667-673 (2000).
- Fang, K. S., Ionides, E., Oster, G., Nuccitelli, R., Isseroff, R. R. Epidermal growth factor receptor relocalization and kinase activity are necessary for directional migration of keratinocytes in DC electric fields. J Cell Sci. 112 (12), 1967-1978 (1999).
- Li, J., et al. Activated T lymphocytes migrate toward the cathode of DC electric fields in microfluidic devices. Lab Chip. 11 (7), 1298-1304 (2011).
- Meng, X., Arocena, M., Penninger, J., Gage, F. H., Zhao, M., Song, B. PI3K mediated electrotaxis of embryonic and adult neural progenitor cells in the presence of growth factors. Exp Neurol. 227 (1), 210-217 (2011).
- Wu, D., Ma, X., Lin, F. DC Electric Fields Direct Breast Cancer Cell Migration, Induce EGFR Polarization, and Increase the Intracellular Level of Calcium Ions. Cell Biochem Biophys. 67 (3), 1115-1125 (2013).
- Martin-Granados, C., et al. A role for PP1/NIPP1 in steering migration of human cancer cells. PLoS One. 7 (7), 40769(2012).
- Yang, H. Y., Charles, R. P., Hummler, E., Baines, D. L., Isseroff, R. R. The epithelial sodium channel mediates the directionality of galvanotaxis in human keratinocytes. J Cell Sci. 126 (9), 1942-1951 (2013).
- Zhao, M., et al. Electrical signals control wound healing through phosphatidylinositol-3-OH kinase-gamma and PTEN. Nature. 442 (7101), 457-460 (2006).
- Shanley, L. J., Walczysko, P., Bain, M., MacEwan, D. J., Zhao, M. Influx of extracellular Ca2+ is necessary for electrotaxis in Dictyostelium. J Cell Sci. 119 (22), 4741-4748 (2006).
- Zhao, M., Agius-Fernandez, A., Forrester, J. V., McCaig, C. D. Directed migration of corneal epithelial sheets in physiological electric fields. Invest Ophthalmol Vis Sci. 37 (13), 2548-2558 (1996).
- Peng, H. B., Jaffe, L. F. Polarization of fucoid eggs by steady electrical fields. Dev Biol. 53 (2), 277-284 (1976).
- Lee, M., et al. Characterization of adult human prostatic epithelial-cells immortalized by polybrene-induced DNA transfection with a plasmid containing an origin-defective sv40-genome. Int J Oncol. 4 (4), 821-830 (1994).
- Berthon, P., Cussenot, O., Hopwood, L., Leduc, A., Maitland, N. Functional expression of sv40 in normal human prostatic epithelial and fibroblastic cells - differentiation pattern of non-tumorigenic cell-lines. Int J Oncol. 6 (2), 333-343 (1995).
- Aurich-Costa, J., Vannier, A., Grégoire, E., Nowak, F., Cherif, D. IPM-FISH, a new M-FISH approach using IRS-PCR painting probes: application to the analysis of seven human prostate cell lines. Genes Chromosomes Cancer. 30 (2), 143-160 (2001).
- Tyson, D. R., Inokuchi, J., Tsunoda, T., Lau, A., Ornstein, D. K. Culture requirements of prostatic epithelial cell lines for acinar morphogenesis and lumen formation in vitro: role of extracellular calcium. Prostate. 67 (15), 1601-1613 (2007).
- Lang, S. H., Sharrard, R. M., Stark, M., Villette, J. M., Maitland, N. J. Prostate epithelial cell lines form spheroids with evidence of glandular differentiation in three-dimensional Matrigel cultures. Br J Cancer. 85 (4), 590-599 (2001).
- Babona-Pilipos, R., Popovic, M. R., Morshead, C. M. A galvanotaxis assay for analysis of neural precursor cell migration kinetics in an externally applied direct current electric field. J Vis Exp. (68), (2012).
- Meng, X., et al. Electric field-controlled directed migration of neural progenitor cells in 2D and 3D environments. J Vis Exp. (60), (2012).
- Pullar, C. E., Isseroff, R. R. Cyclic AMP mediates keratinocyte directional migration in an electric field. J Cell Sci. 118 (9), 2023-2034 (2005).
- Sheridan, D. M., Isseroff, R. R., Nuccitelli, R. Imposition of a physiologic DC electric field alters the migratory response of human keratinocytes on extracellular matrix molecules. J Invest Dermatol. 106 (4), 642-646 (1996).
- Feng, J. F., et al. Guided migration of neural stem cells derived from human embryonic stem cells by an electric field. Stem Cells. 30 (2), 349-355 (2012).
- Mukerjee, E. V., Isseroff, R. R., Nuccitelli, R., Collins, S. D., Smith, R. L. Microneedle array for measuring wound generated electric fields. Conf Proc IEEE Eng Med Biol Soc. 1, 4326-4328 (2006).
- Nuccitelli, R., Nuccitelli, P., Li, C., Narsing, S., Pariser, D. M., Lui, K. The electric field near human skin wounds declines with age and provides a noninvasive indicator of wound healing. Wound Rep. and Reg. 19, 645-655 (2011).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
