DNA i białka są specjalnie znakowane sekwencyjnie grupami reporterowymi o powinowactwie lub fluorescencyjnym za pomocą metylotransferaz DNA lub białek oraz analogów syntetycznych kofaktorów. W zależności od specyficzności kofaktora enzymów, do jedno- lub dwuetapowego znakowania stosuje się azyrydynę lub podwójnie aktywowane analogi kofaktorów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Specyficzne sekwencyjnie znakowanie kwasów nukleinowych i białek za pomocą metylotransferaz i analogów kofaktorów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
S-adenozylo-l-metionina (AdoMet) zależne od metylotransferazy (MTazy) katalizują transfer aktywowanej grupy metylowej z AdoMet do określonych pozycji w DNA, RNA, białkach i małych biomolekułach. Ta naturalna reakcja metylacji może być rozszerzona na szeroką gamę reakcji alkilacji przy użyciu syntetycznych analogów kofaktorów. Zastąpienie reaktywnego centrum sulfonowego AdoMet pierścieniem azyrydynowym prowadzi do kofaktorów, które mogą być sprzężone z DNA za pomocą różnych MTaz DNA. Te kofaktory azyrydyny mogą być wyposażone w grupy reporterowe w różnych pozycjach ugrupowania adeninowego i stosowane do specyficznego dla Ssekwencjonowania Metylotransferazy-I indukowanego L abelingu DNA (SMILing DNA). Jako typowy przykład podajemy protokół biotynylacji plazmidowego DNA pBR322 w sekwencji 5'-ATCGAT-3' z MTazą DNA M.BseCI i kofaktorem azyrydyny 6BAz w jednym kroku. Rozszerzenie aktywowanej grupy metylowej o nienasycone grupy alkilowe skutkuje powstaniem kolejnej klasy analogów AdoMet, które są stosowane do kierowanej przez metylotransferazę T frakcji G(mTAG). Ponieważ wydłużone łańcuchy boczne są aktywowane przez centrum sulfonu i wiązanie nienasycone, kofaktory te nazywane są podwójnie aktywowanymi analogami AdoMet. Analogi te funkcjonują nie tylko jako kofaktory dla MTaz DNA, takich jak kofaktory azyrydyny, ale także dla MTaz RNA, białek i małych cząsteczek. Są one zwykle używane do enzymatycznej modyfikacji substratów MTazy z unikalnymi grupami funkcyjnymi, które są znakowane grupami reporterowymi w drugim etapie chemicznym. Przykładem tego jest protokół znakowania fluorescencyjnego białka histonu H3. Mała grupa propargylowa jest przenoszona z analogu kofaktora SeAdoYn do białka przez histon H3 lizynę 4 (H3K4) MTazę Set7/9, a następnie znakowanie alkinylowanego histonu H3 azydkiem TAMRA. Znakowanie za pośrednictwem MTazy z analogami kofaktorów jest technologią umożliwiającą wiele ekscytujących zastosowań, w tym identyfikację i badanie funkcjonalne substratów MTazy, a także genotypowanie DNA i wykrywanie metylacji.
Wprowadzenie
Specyficzne znakowanie kwasów nukleinowych1,2 oraz białek3,4 jest niezwykle istotne dla charakteryzacji funkcjonalnej, diagnostyki medycznej i (nano)biotechnologii. Przedstawiamy tutaj enzymatyczną metodę znakowania tych biopolimerów, opartą na metylotransferazach (MTazach) zależnych od S-adenozylu-L-metioniny (AdoMet lub SAM). Ta klasa enzymów (EC 2.1.1.) celuje w poszczególne pozycje nukleofilowe (atomy azotu, tlenu, siarki i węgla) w konkretnych resztach kwasów nukleinowych i białek, naturalnie przenosząc aktywowaną grupę metylową z kofaktora AdoMet (Rysunek 1A)5. Ponadto MTazy mogą wykorzystywać syntetyczne analogi kofaktorów do specyficznego znakowania tagami powinowactwa, fluoroforami lub innymi znacznikami (Rysunek 1B)6. Opracowano dwie klasy analogów AdoMet: kofaktory azyrydnowe do znakowania indukowanego metylotransferazą specyficzną dla sekwencji (SMILing – Sequence-specific Methyltransferase-Induced Labeling)7 oraz podwójnie aktywowane analogi AdoMet do transferu grup aktywowanych kierowanego przez metylotransferazę (mTAG – methyltransferase-directed Transfer of Activated Groups)8.
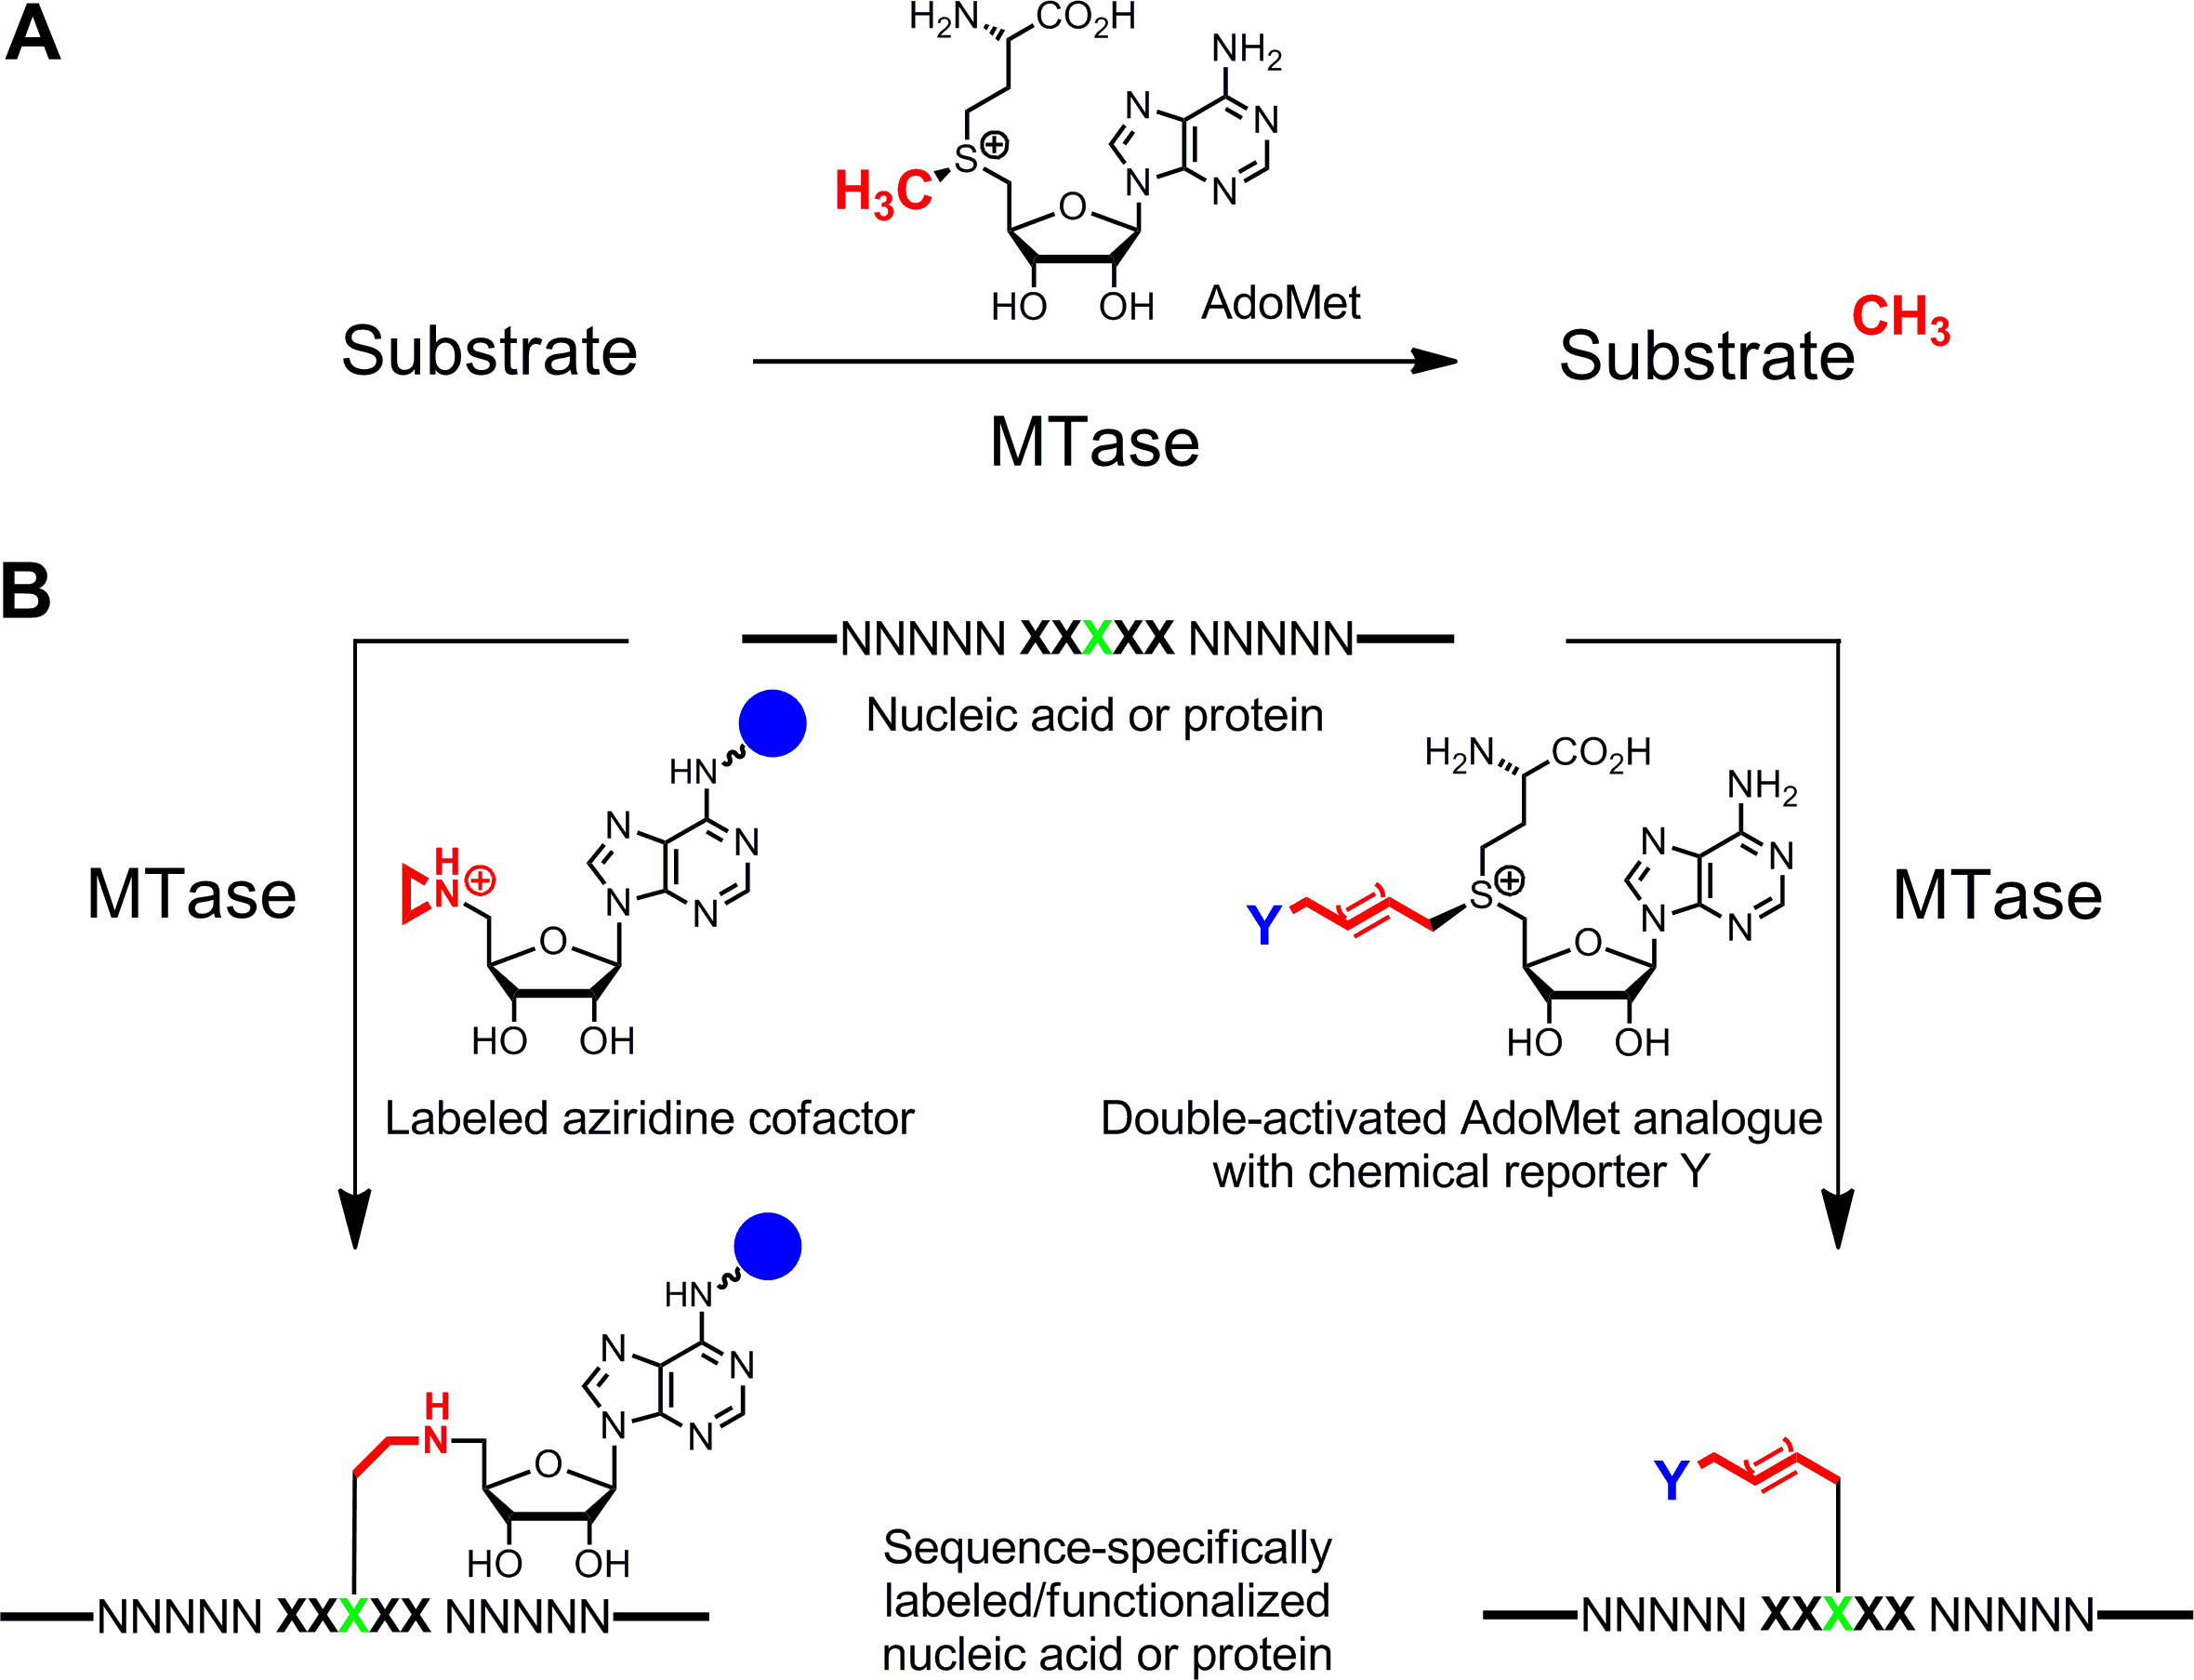
Rycina 1: Reakcje katalizowane przez metylotransferazy (MTazy). A. Przenoszenie grupy metylowej z naturalnego kofaktora AdoMet (SAM) na różne substraty, w tym DNA, RNA, białka i małe biomolekuły. B. Znakowanie/funkcjonalizacja kwasów nukleinowych i białek (NNNNN = pary zasad dla DNA, nukleotydy dla RNA i aminokwasy dla białek; XXXXX = sekwencja rozpoznawana przez MTazę z resztą docelową zaznaczoną na zielono) za pomocą syntetycznych analogów kofaktorów. Kofaktory azyrydyny zawierające grupę reporterową (niebieska sfera) przyłączoną do pierścienia adeniny są sprzęgane w sposób specyficzny dla sekwencji z resztą docelową (po lewej), a podwójnie aktywowane analogi AdoMet prowadzą do przeniesienia wydłużonych łańcuchów alkilowych niosących chemiczny reporter Y (po prawej), który może zostać oznakowany w drugim kroku za pomocą bioortogonalnej reakcji typu click. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Kofaktory azyrydynowe działają najlepiej w połączeniu z MTazami DNA. Zawierają one trójaczykły z atomem azotu9 (lub są pochodnymi N-musztardy10,11) zamiast centrum sulfoniowego jako grupy reaktywnej. Protonowanie tego atomu azotu aktywuje pierścień azyrydynowy do ataku nukleofilowego przez docelowy nukleotyd, co prowadzi do kowalencyjnego sprzężenia całego kofaktora z DNA. Poprzez dołączenie grup reporterowych do pierścienia adeniny, kofaktory azyrydynowe mogą być stosowane wraz z MTazami DNA do znakowania DNA w jednym etapie (Ryc. 1B, lewa strona)7,12. Zostało to szczegółowo zademonstrowane w przypadku biotynylacji DNA za pomocą 6BAz13–15 (kofaktora azyrydynowego z biotyną przyłączoną do pozycji 6 pierścienia adeniny) oraz specyficznej dla adeniny MTazy DNA z Bacillus stearothermophilus (M.BseCI)16 (Ryc. 2, patrz sekcja protokołu 2: Jednoetapowe znakowanie DNA via kofaktory azyrydynowe). Oprócz M.BseCI (sekwencja rozpoznawania 5’-ATCGAT-3’), z sukcesem wykorzystano do biotynylacji DNA za pomocą 6BAz MTazy DNA z Thermus aquaticus (M.TaqI, 5’-TCGA-3’), z Haemophilus heamolyticus (M.HhaI, 5’-GCGC-3’) oraz ze Spiroplasma (M.SssI, 5’-CG-3’)17. Ponadto kofaktory azyrydynowe mogą być stosowane do jednoetapowego fluorescencyjnego znakowania DNA18,19.
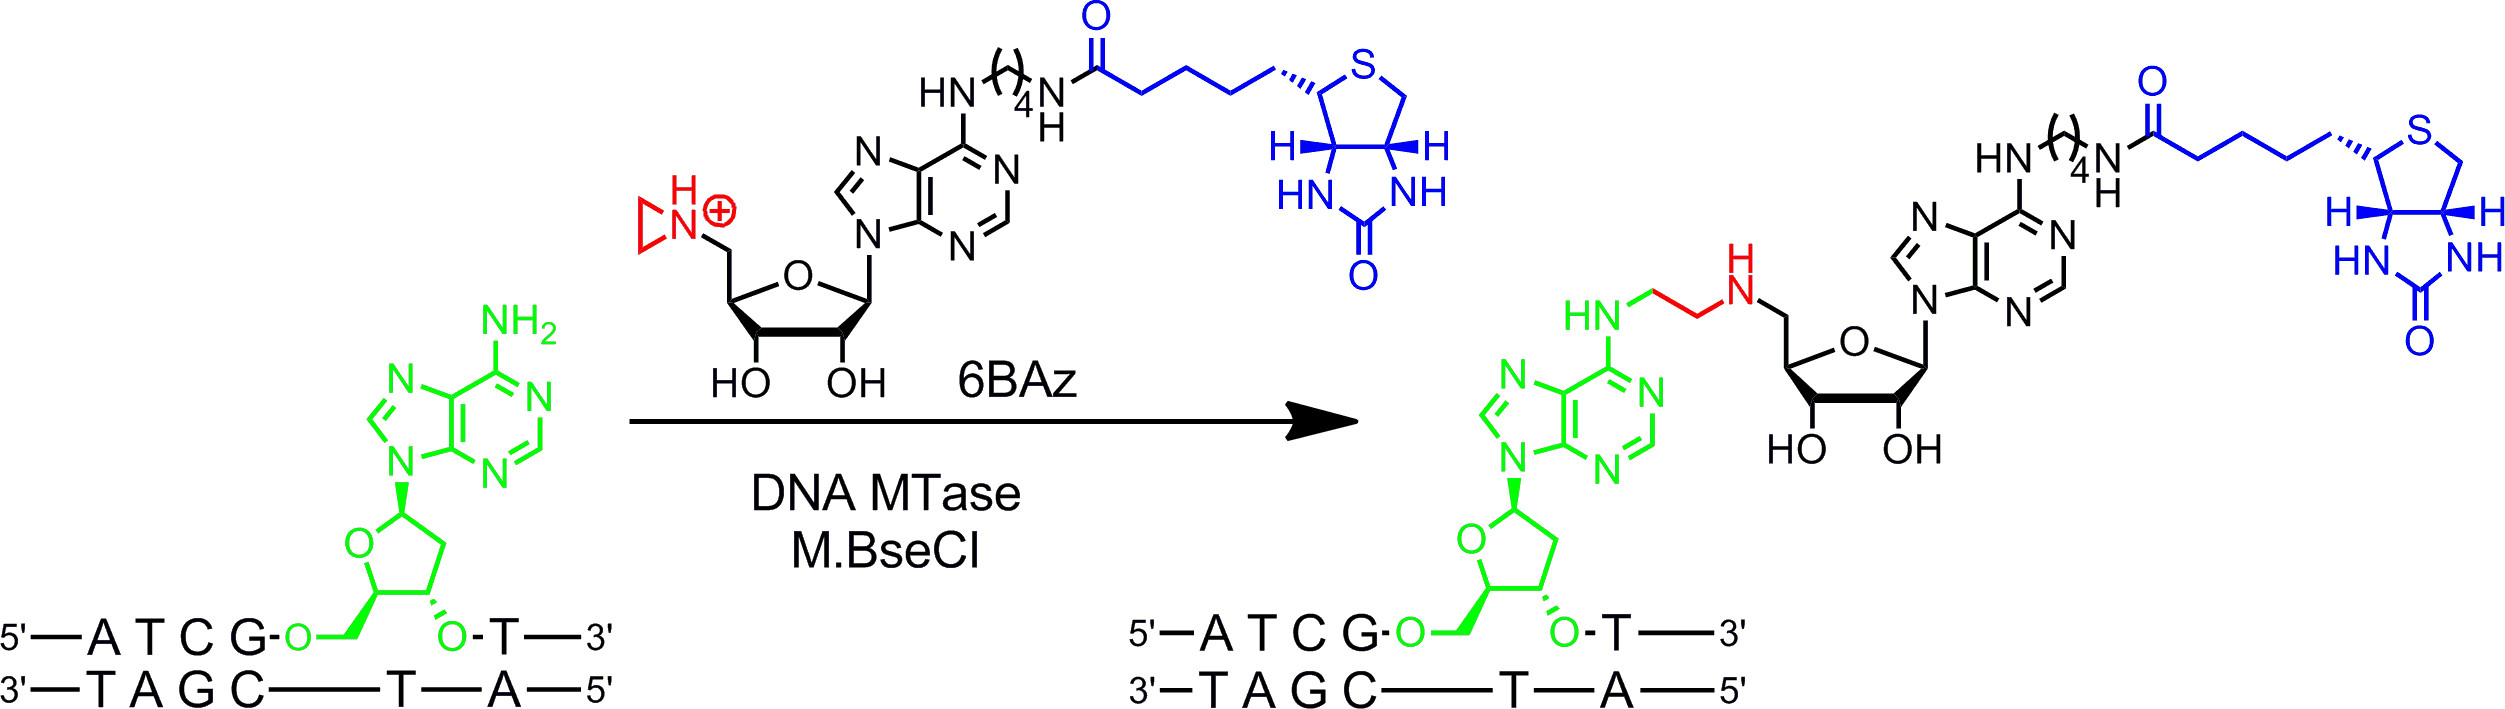
Rysunek 2: Sekwencyjnie specyficzna jednoetapowa biotynilacja DNA za pomocą M.BseCI i 6BAz. DNA MTaza M.BseCI rozpoznaje dwuniciową sekwencję DNA 5’-ATCGAT-3’ i naturalnie metyluje grupę aminową drugiego reszt adeniny (zielona) przy użyciu AdoMet. Przy zastosowaniu kofaktora azyrydynowego 6BAz przebieg reakcji ulega zmianie, a M.BseCI prowadzi do sekwencyjnie specyficznej biotynilacji DNA poprzez sprzęganie całego kofaktora wraz z biotyną (niebieska) z docelową adeniną. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Podwójnie aktywowane analogi AdoMet zawierają wydłużone nienasycone łańcuchy boczne zamiast grupy metylowej w centrum sulfoniowym (Rycina 1B, prawa strona)20. Nienasycone wiązanie podwójne lub potrójne w pozycji β względem centrum sulfoniowego elektronicznie kompensuje niekorzystne efekty steryczne w stanie przejściowym poprzez stabilizację sprzężeniową. Ponieważ zarówno centrum sulfoniowe, jak i wiązanie nienasycone aktywują łańcuch boczny do transferu enzymatycznego, kofaktory te nazwano podwójnie aktywowanymi analogami AdoMet. Zazwyczaj są one wykorzystywane do transferu łańcuchów bocznych zawierających unikalne grupy chemiczne (reportery chemiczne), takie jak grupy aminowe, alkinowe i azydowe, w celu chemoaselektywnego znakowania w drugim etapie8,21. Ogólnie rzecz biorąc, podwójnie aktywowane analogi AdoMet mogą pełnić funkcję kofaktorów nie tylko dla MTaz DNA8,20,21, ale także dla MTaz RNA22,23 i MTaz białkowych24–28, co umożliwia dodatkowe znakowanie RNA i białek. Jednak wydłużone łańcuchy boczne są bardziej wymagające sterycznie niż grupa metylowa, a w celu uzyskania efektywnych szybkości transferu często wymagane jest powiększenie centrów aktywnych MTaz poprzez inżynierię białek. Innym rozwiązaniem tego problemu jest zastosowanie analogu AdoMet z małą grupą propargylową (trzy węgle), gdzie terminalny alkin pełni dwie funkcje: 1. stabilizacji stanu przejściowego podczas transferu enzymatycznego oraz 2. pełnienia roli reaktywnego uchwytu do późniejszych modyfikacji chemicznych za pomocą chemii klik poprzez miedziowo katalizowaną cykloaddycję azydowo-alkinową (CuAAC). Okazało się, że otrzymany propargylowy analog AdoMet29 jest dość niestabilny w warunkach obojętnych lub lekko zasadowych i ma ograniczone zastosowanie. Wadę tę można wyeliminować, zastępując atom siarki selenem. Otrzymany kofaktor 5‘-[(Se)[(3S)-3-amino-3-karboksypropyl]prop-2-ynylselenonio]-5‘-deoksyadenozyna (SeAdoYn, Rycina 3) jest akceptowany przez białka typu dzikiego MTaz DNA, RNA i białkowych30–32, co w wielu przypadkach eliminuje konieczność stosowania inżynierii białek. Przykładem jest fluorescencyjne znakowanie białek za pomocą MTazy Set7/9 dla lizyny 4 histony H3 (H3K4)33 (Rycina 3, patrz sekcja protokołu 3: Dwustopniowe znakowanie białek poprzez kofaktory podwójnie aktywowane).
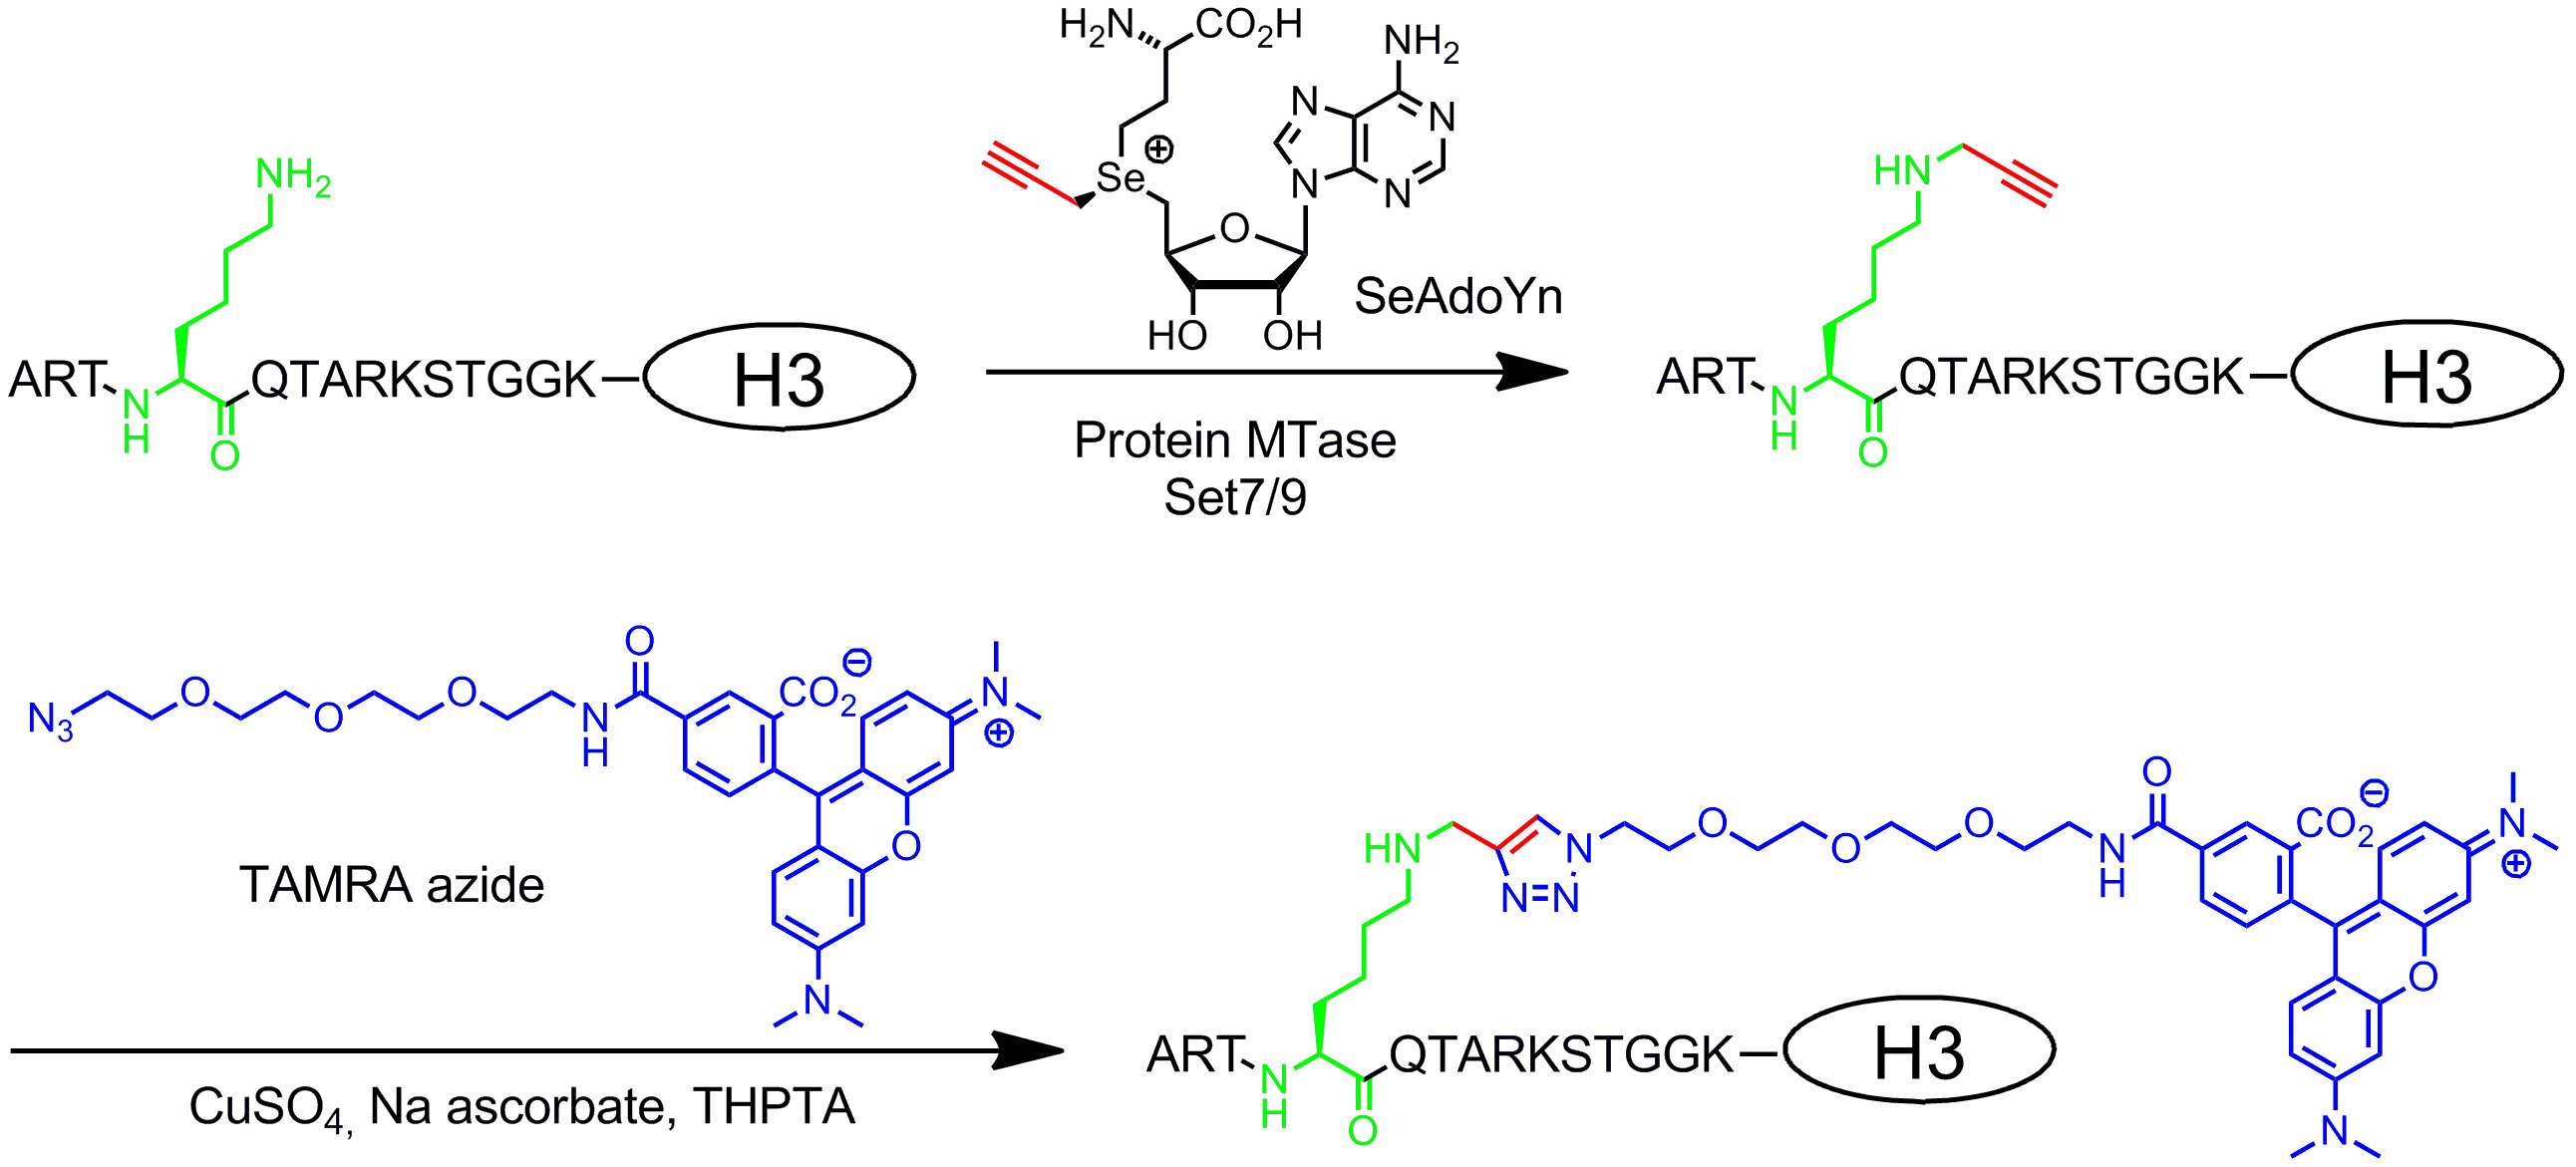
Rycina 3: Sekwencyjne dwuetapowe znakowanie fluorescencyjne histony H3 za pomocą Set7/9, SeAdoYn i azotku TAMRA. Proteinowa MTaza Set7/9 naturalnie metyluje grupę aminową lizyny 4 w histonie H3 (H3K4, zielony) przy użyciu AdoMet. Dzięki dwukrotnie aktywowanemu kofaktorowi SeAdoYn MTaza przenosi małą grupę propargylową (czerwony) na resztę lizyny. Przyłączone końcowe wiązanie potrójne jest następnie selektywnie modyfikowane w bioortogonalnej reakcji click (miedziowo-katalizowana cykloaddycja azotku z alkinem, CuAAC) z pochodną azotku fluoroforu TAMRA (tetrametylorodaminy, niebieski). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Ogólne instrukcje
- Przechowywać kofaktor azyrydyny 6BAz (w DMSO) i białkowy MTazę Set7/9 w temperaturze -80 °C oraz wszystkie inne odczynniki, w tym podwójnie aktywowany kofaktor SeAdoYn i MTazę DNA M.BseCI (w 50% glicerolu) w temperaturze -20 °C.
- Określić stężenie 6BAz i SeAdoYn za pomocą spektroskopii UV/Vis przy użyciu współczynników ekstynkcji ε269nm (6BAz) = 16 000 cm-1 M-1 i ε260 nm (SeAdoYn) = 15 400 cm-1 M-1 w wodzie dejonizowanej. Oznaczyć stężenie MTaz za pomocą testu Bradforda lub, jeśli współczynnik ekstynkcji jest dostępny, poprzez bezpośrednią absorpcję przy 280 nm.
- Należy unikać tworzenia pęcherzyków poprzez intensywne pipetowanie lub wirowanie, aby zapobiec utracie aktywności enzymu. Zamiast tego należy mieszać, delikatnie pipetując w górę i w dół.
- Dodając kofaktory azyrydyny z roztworów podstawowych w DMSO, upewnij się, że końcowe stężenie DMSO w teście jest mniejsze niż 5%. W buforze testowym należy zawsze umieszczać 10 mM jonów magnezu, aby zapobiec niespecyficznym reakcjom z DNA.
- Podczas dodawania podwójnie aktywowanych kofaktorów z kwaśnych roztworów podstawowych należy używać małych objętości (wysoce skoncentrowanych roztworów podstawowych), aby uniknąć zmian pH i upewnić się, że pH roztworu testowego nie zmienia się znacząco. Należy unikać tioli, np. β-merkaptoetanolu lub ditiotreitolu (DTT), w buforze testowym, ponieważ mogą one zakłócać reakcję kliknięcia poprzez kompleksowanie wymaganych jonów miedzi.
2. Jednoetapowe znakowanie DNA za pomocą kofaktorów azyrydyny
- Specyficzne dla sekwencji znakowanie indukowane metylotransferazą (SMILing) plazmidowego DNA za pomocą MTazy M.BseCI DNA i kofaktora azyrydyny 6BAz.
- Rozmrozić roztwór kofaktora w temperaturze 20 °C i przygotować mieszaniny reakcyjne na lodzie.
- Oprócz testu należy przeprowadzić kontrolę "kofaktora", aby uwidocznić wszelkie niespecyficzne modyfikacje, oraz kontrolę "enzymatyczną", aby upewnić się, że preparat MTazy jest wolny od naturalnego kofaktora AdoMet.
- Do testu zmieszać 2 μl 10-krotnego buforu modyfikującego (zawierającego 100 mM Tris-HCl, 100 mM MgCl2, 20 mM β-merkaptoenolu, pH 7,4), 2 μl pBR322 (0,5 μg/μl), 10 eq. M.BseCI na sekwencję rozpoznającą DNA (1 sekwencja rozpoznawcza w pBR322) i kofaktor azyrydyny 6BAz do końcowego stężenia 60 μM w całkowitej objętości 20 μl. Dodać kofaktor i DNA MTase last.
UWAGA: β-merkaptoetanol jest toksyczny, i szkodliwy dla środowiska. - Do kontroli "kofaktora" dodaj wodę dejonizowaną zamiast M.BseCI, a do kontroli "enzymatycznej" dodaj wodę dejonizowaną zamiast 6BAz.
- Wymieszaj roztwory, delikatnie pipetując w górę i w dół.
- Inkubować probówki w temperaturze 55 °C przez 1 godzinę.
- Odwirować na krótko, aby zebrać cały płyn na dnie probówek.
- Test modyfikacji restrykcji w celu weryfikacji modyfikacji DNA.
- Przygotować roztwór, mieszając 10 μl 10x buforu R.TaqI (zawierającego 100 mM Tris-HCl, 50 mM MgCl2, 1 M NaCl, 1 mg/ml albuminy surowicy bydlęcej, pH 8,0), 80 μl wody dejonizowanej i 3,3 μl endonukleazy restrykcyjnej (REazy) z Thermus aquaticus (R.TaqI, 10 U/μl). Pamiętaj, aby dodać REase w ostatnim kroku.
- Do każdej probówki z ppkt 2.1.7 dodać 2 μl 10x buforu R. TaqI i 28 μl roztworu z góry (2.2.1).
- Wymieszaj roztwory, delikatnie pipetując w górę i w dół.
- Inkubować probówki w temperaturze 65 °C przez 30 minut.
- Odwirować na krótko, aby zebrać cały płyn na dnie probówek.
- Test przesunięcia elektromobilności (EMSA) ze streptawidyną w celu weryfikacji modyfikacji funkcjonalnej.
- Pobrać 25 μl z każdej probówki (2.2.5) i dodać 2,4 μl roztworu streptawidyny (1 mM w odniesieniu do monomeru streptawidyny w buforze streptawidyny zawierającym 100 mM Na2HPO4, 100 mM NaCl, pH 7,5; 4 równoważniki całkowitej biotyny). Do pozostałych probówek dodać 2,4 μl buforu streptawidyny.
- Inkubować wszystkie probówki w temperaturze 37 °C przez 1 godzinę.
- Analiza za pomocą elektroforezy w żelu agarozowym.
- Do każdej probówki dodać 5 μl 6-krotnego buforu ładującego (0,25% błękitu bromofenolowego, 30% glicerolu).
- Delikatnie wymieszaj roztwory.
- Załaduj 10 μl każdej próbki do studzienek żelu agarozowego (1% agarozy w 0,5x buforze TBE zawierającym 1x GelRed z 10 000x roztworu podstawowego).
- Uruchom żel w buforze 0,5x TBE o napięciu 80 V przez ok. 1 godzinę.
- Wizualizacja prążków DNA na stole UV (312 nm) za pomocą kamery CCD wyposażonej w filtr (540 ± 50 nm).
UWAGA: Światło UV jest szkodliwe dla oczu i skóry.
3. Dwuetapowe znakowanie białek za pomocą podwójnie aktywowanych kofaktorów
- Kierowany metylotransferazą transfer grup aktywowanych (mTAG) z Set7/9 i podwójnie aktywowanym kofaktorem SeAdoYn do znakowania histonu H3 lizyny 4 (etap modyfikacji).
- Rozmrozić składniki i przygotować mieszaniny reakcyjne na lodzie. UWAGA: Zawsze utrzymuj SeAdoYn w chłodzie, aby uniknąć degradacji.
- Oprócz testu należy przeprowadzić kontrolę "kofaktora", aby uwidocznić wszelkie niespecyficzne modyfikacje, oraz kontrolę "enzymatyczną", aby wykluczyć niespecyficzne reakcje sondy fluorescencyjnej.
- Przygotować roztwór testowy (20 μl) zawierający bufor modyfikujący (50 mM Tris-HCl, 5% glicerolu, pH 8,5), 10 μM histon H3, 10 μM Set7/9 i 600 μM SeAdoYn (mieszanina obu epimerów w selenie). W ostatnich krokach dodaj kofaktor, a następnie MTase.
- Do kontroli "kofaktora" należy przygotować roztwór testowy jak w ppkt 3.1.3 i dodać 60 mM AdoMet, aby konkurować z kofaktorem syntetycznym. Do kontroli "enzymatycznej" dodaj wodę dejonizowaną zamiast SeAdoYn.
- Wymieszaj roztwory, powoli pipetując w górę i w dół. Sprawdź pH, dodając 1 μl każdego roztworu do górnego pola paska pH (zakres pH 5 - 10).
- Inkubować w temperaturze 37 °C przez 2 godziny.
- W międzyczasie przygotuj 12% żel poliakryloamidowy SDS (żel do biegania: 357 mM Bis-Tris pH 6,5-6,8, 0,1% (w/v) APS, 0,04% (v/v) TEMED i 12% akrylamid/bisakryloamid 37,5:1; żel nasycający: 357 mM Bis-Tris pH 6,5-6,8, 0,1% (w/v) APS, 0,04% (v/v) TEMED i 5% akrylamid/bisakryloamid 37,5:1).
UWAGA: Akrylamid/bisakryloamid jest toksyczny i niebezpieczny dla zdrowia. Podczas tej procedury należy nosić rękawiczki.
- Znakowanie chemiczne alkinylowanej lizyny 4 w histonie H3 poprzez katalizowaną miedzią cykloaddycję azydkowo-alkinową (CuAAC) (etap znakowania).
- Tuż przed zakończeniem reakcji modyfikacji należy przygotować 5-krotną mieszankę zawierającą 3 mM CuSO4, 3 mM tris(3-hydroksypropylo-triazolylometylo)aminę (THPTA), 250 mM askorbinian sodu i 6 mM azydek TAMRA o łącznej objętości 20 μl.
- Dodaj 5 μl świeżo przygotowanej mieszanki 5x click do każdej probówki, aby rozpocząć CuAAC i wygasić reakcję modyfikacji.
- Delikatnie mieszać, pipetując w górę i w dół.
- Chroń wszystkie probówki folią aluminiową przed światłem, aby uniknąć fotowybielania fluoroforu.
- Inkubować w temperaturze 20 °C przez 1 godzinę.
- Wytrącanie białek w celu usunięcia nadmiaru wolnego fluoroforu TAMRA.
- Aby uniknąć przyćmienia znakowanego fluorescencyjnie histonu H3 przez intensywną fluorescencję w żelu wolnego fluoroforu TAMRA, należy usunąć nadmiar fluoroforu przez wytrącanie białek (3.3.2 – 3.3.4)34.
- Do każdej probówki dodać 75 μl metanolu, 18,8 μl chloroformu i 50 μl wody dejonizowanej i krótko mieszać po każdym dodaniu. Wirować przy 16 000 x g przez 5 min. Usuń górną fazę, nie naruszając warstwy interfejsu, która zawiera białko.
- Dodaj 56,3 μl metanolu do pozostałej fazy w każdej probówce, wiruj i odwiruj przy 16 000 x g przez 5 minut, aby uzyskać granulki białka. Usunąć supernatant. Powtórz ten krok, aby umyć granulkę.
- Przykryj otwarte tuby niestrzępiącą się chusteczką i pozostaw do wyschnięcia na 15 – 30 minut.
- Analiza za pośrednictwem SDS PAGE.
- Rozpuścić wytrącone białka z 3.3.4 w 20 μl buforu ładującego SDS (50 mM Tris-HCl, 2,5% (w/v) SDS, 10% (v/v) glicerolu, 320 mM β-merkaptoetanolu i 0,05% (w/v) błękitu bromofenolowego, pH 6,8). Upewnij się, że pelety całkowicie się rozpuściły, przepłukując ścianki probówek pipetą.
- Próbki inkubować w temperaturze 95 °C przez 10 minut i pozostawić do ostygnięcia do temperatury 20 °C.
- Odwirować na krótko, aby zebrać cały płyn na dnie probówek.
- Załadować całą ilość każdej próbki do studzienek z żelu poliakryloamidowego SDS (3.1.7). Użyj 50 mM MOPS, 50 mM Tris-X (Tris-base), 5 mM EDTA, 0.1% (w/v) SDS jako bufor do elektroforezy.
- Uruchomić żel pod napięciem 120 V przez ok. 90 min.
- Wizualizacja fluorescencji w żelu na stole UV (312 nm) za pomocą kamery CCD wyposażonej w filtr (540 nm ± 50 nm).
UWAGA: Światło UV jest szkodliwe dla oczu i skóry.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Jednoetapowe znakowanie DNA za pomocą kofaktorów azyrydynowych
Tę przykładową reakcję przeprowadzono z użyciem DNA MTazy M.BseCI, która modyfikuje drugą resztę adeniny w dwuniciowej sekwencji 5’-ATCGAT-3’ i posiada jedną stronę rozpoznawania w plazmidzie pBR322 (Rysunek 4A). Aby przetestować znakowanie plazmidu, pBR322 poddano działaniu endonukleazy restrykcyjnej (REazy) R.TaqI (5‘-TCGA-3‘). R.TaqI posiada siedem stron w pBR322, z których jedna znajdu...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Jednoetapowe znakowanie DNA za pomocą MTaz DNA i kofaktorów azyrydyny (SMILing DNA) jest solidną metodą, ale niektóre aspekty powinny być brane pod uwagę podczas planowania eksperymentu.
Kofaktor azyrydyny: Stężenie 6BAz do znakowania DNA za pomocą M.BseCI wynosiło 60 μM. W przypadku stosowania innych MTaz DNA stężenie kofaktora powinno być zoptymalizowane, np. stężenia tak niskie jak 20 μM zostały zastosowane w przypadku MTazy DNA M.TaqI19. Niskie stężenia 6BAz ma...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy ujawniają następujące konkurencyjne interesy finansowe: E.W. jest wynalazcą powiązanych patentów.
Podziękowania
Autorzy dziękują Kerstin Glensk za przygotowanie MTaz M.BseCI i Set7/9 oraz dziękują za dofinansowanie przez Inicjatywę Doskonałości Niemieckiego Rządu Federalnego i Krajowego oraz Uniwersytet RWTH w Akwizgranie. Autorzy z przyjemnością dostarczają 6BAz i SeAdoYn lub inne analogi kofaktoryzacji do wspólnych badań.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 6BAz | Zsyntetyzowany zgodnie z Weinhold et al., numer patentu US 8,129,106, opublikowany 6 marca 2012 r. | ||
| β-Merkaptoetanol | Serva | 28625 | |
| Kwas octowy | Fisher Scientific | 10304980 | |
| Roztwór akrylamidu/bis, 37,5:1 | Serva | 10688 | |
| Ultraczysta agaroza | Invitrogen | 16500100 | |
| Nadsiarczan amonu (APS) | Serva | 13375 | |
| Bis-Tris | Gerbu | 1304 | |
| Kwas borowy | Gerbu | 1115 | |
| Błękit bromofenolowy Na sól | Serva | 15375 | |
| Siarczan miedzi(II) | Aldrich | C1297 | |
| Chloroform | Fisher Scientific | 10020090 | |
| Coomassie Brilliant Blue | Serva | 17525 | |
| EDTA sól disodowa | Gerbu | 1034 | |
| Etanol | Merck | 100983 | |
| GelRed (10 000x w wodzie) | Biotium | 41003 | |
| Glicerol (99,5%) | Gerbu | 2006 | |
| FastRuler Drabinka DNA Niskiego Zasięgu | Thermo Scientific | SM1103 | |
| Histone H3 | Plazmid ekspresyjny uzyskany od dr Philippa Voigta i prof. Danny'ego Reinberga; ekspresja i izolacja według T. J. Richmond i wsp., J. Mol. Biol. 1997, 272, 301-311. | ||
| Plazmid ekspresji M.BseCI | uzyskany od dr Michaela Kokkinidisa; ekspresja i izolacja według Kapetaniou i wsp., Acta Cryst. 2006, F63, 12-14. | ||
| Metanol | Fisher Scientific | 10675112 | |
| Chlorek magnezu sześciowodny | J.T. Baker | 4003 | |
| MOPS | Gerbu | 1081 | |
| Chlorek sodu | Gerbu | 1112 | |
| Pasek pH (Neutralit) | Merck | 1,095,330,001 | |
| pBR322 | Thermo Scientific | SD0041 | |
| R.TaqI (10 u/µ l) | Thermo Scientific | ER0671 | |
| SeAdoYn | Zsyntetyzowany według Willnow et al., ChemBioChem 2012, 13, 1167-1173. | ||
| Set7/9 | Plazmid ekspresji uzyskany od prof. Danny'ego Reinberga, ekspresja i izolacja według D. Reinberg i wsp., Genes Dev.2002, 16, 479-489. | ||
| Streptawidyna | Gerbu | 3058 | |
| (+)-L-askorbinian sodu | Sigma Life Science | A7631 | |
| SDS Granulowany | Gerbu | 1833 | |
| di-wodorofosforan sodu | Merck | 106,586 | |
| Azydek | Syntetyzowany zgodnie z numerem referencyjnym 30: Willnow i wsp., ChemBioChem 2012, 13, 1167-1173. | ||
| Bufor TaqI (10x) | Thermo Scientific | B28 | |
| N,N,N',N'-Tetrametyloetylenodiamina (TEMED) | Acros Organics | 42058 | |
| Tris-HCl | Gerbu | 1028 | |
| Tris-X (zasada TRIS) | Gerbu | 1018 | |
| Tris(3-hydroksypropylotriazolylo-metylo)amina (THPTA) | Sigma-Aldrich | 762342 |
Bibliografia
- Gottfried, A., Weinhold, E. Sequence-specific covalent labelling of DNA. Biochem. Soc. Trans. 39, 623-628 (2011).
- Zohar, H., Muller, S. J. Labeling DNA for single-molecule experiments: methods of labeling internal specific sequences on double-stranded DNA. Nanoscale. 3, 3027-3039 (2011).
- Hinner, M. J., Johnsson, K. How to obtain labeled proteins and what to do with them. Curr. Opin. Biotechnol. 21, 766-776 (2010).
- Wua, Y. -W., Goody, R. S. Probing protein function by chemical modification. J. Pept. Sci. 16, 514-523 (2010).
- Struck, A. -W., Thompson, M. L., Wong, L. S., Micklefield, J. S-Adenosyl-methionine-dependent methyltransferases: Highly versatile enzymes in biocatalysis, biosynthesis and other biotechnological applications. ChemBioChem. 13, 2642-2655 (2012).
- Klimasauskas, S., Weinhold, E. A new tool for biotechnology: AdoMet-dependent methyltransferases. Trends Biotechnol. 25, 99-104 (2007).
- Pljevaljcic, G., Schmidt, F., Weinhold, E. Sequence-specific Methyltransferase-Induced Labeling of DNA (SMILing DNA). ChemBioChem. 5, 265-269 (2004).
- Lukinavicius, G., Lapiene, V., Stasevskij, Z., Dalhoff, C., Weinhold, E., Klimasauskas, S. Targeted labeling of DNA by methyltransferase-directed Transfer of Activated Groups (mTAG). J. Am. Chem. Soc. 129, 2758-2759 (1021).
- Pignot, M., Siethoff, C., Linscheid, M., Weinhold, E. Coupling of a nucleoside with DNA by a methyltransferase. Angew. Chem. Int. Ed. 37, 2888-2891 (1998).
- Weller, R. L., Rajski, S. R. Design, synthesis, and preliminary biological evaluation of a DNA methyltransferase-directed alkylating agent. ChemBioChem. 7, 243-245 (2006).
- Du, Y., Hendrick, C. E., Frye, K. S., Comstock, L. R. Fluorescent DNA Labeling by N-Mustard Analogues of S-adenosyl-l-methionine. ChemBioChem. 13, 2225-2233 (2012).
- Pljevaljcic, G., Schmidt, F., Scheidig, A. J., Lurz, R., Weinhold, E. Quantitative labeling of long plasmid DNA with nanometer precision. ChemBioChem. 8, 1516-1519 (1002).
- Wilkinson, S., et al. Molecular scale architecture: engineered three- and four-way junctions. Bioconjugate Chem. 19, 470-475 (2008).
- Braun, G., et al. Enzyme-directed positioning of nanoparticles on large DNA templates. Bioconjugate Chem. 19, 476-479 (2008).
- Kim, S., et al. Enzymatically incorporated genomic tags for optical mapping of DNA binding proteins. Chem. Int. Ed. 51, 3578-3581 (2012).
- Rina, M., Bouriotis, V. Cloning purification and characterization of the BseCI DNA methyltransferase from Bacillus stearothermophilus. Gene. 133, 91-94 (1993).
- Sequence-specific detection of methylation in biomolecules. US Patent. , 8,129,106 (2012).
- Pljevaljcic, G., Pignot, M., Weinhold, E. Design of a new fluorescent cofactor for DNA methyltransferases and sequence-specific labeling of DNA. J. Am. Chem. Soc. 125, 3492-3410 (2003).
- Schmidt, F. H. -G., Hüben, M., Gider, B., Renault, F., Teulade-Fichou, M. -P., Weinhold, E. Sequence-specific Methyltransferase-Induced Labelling (SMILing) of plasmid DNA for studying cell transfection. Bioorg. Med. Chem. 16, 40-48 (2008).
- Dalhoff, C., Lukinavicius, G., Klimasauskas, S., Weinhold, E. Direct transfer of extended groups from synthetic cofactors by DNA methyltransferases. Nat. Chem. Biol. 2, 31-32 (2006).
- Lukinavicius, G., Tomkuviene, M., Masevicius, V., Klimasauskas, S. Enhanced chemical stability of AdoMet analogues for improved methyltransferase-directed labeling of DNA. ACS Chem. Biol. 8, 1134-1139 (2013).
- Motorin, Y., et al. Expanding the chemical scope of RNA:methyltransferases to site-specific alkynylation of RNA for click labeling. Nucleic Acids Res. 39, 1943-1952 (1943).
- Schulz, D., Holstein, J. M., Rentmeister, A. A chemo-enzymatic approach for site-specific modification of the RNA cap. Angew. Chem. Int. Ed. 52, 7874-7878 (2013).
- Peters, W., et al. Enzymatic site-specific functionalization of protein methyltransferase substrates with alkynes for click labeling. Angew. Chem. Int. Ed. 49, 5170-5173 (2010).
- Islam, K., Zheng, W., Yu, H., Deng, H., Luo, M. Expanding cofactor repertoire of protein lysine methyltransferase for substrate labeling. ACS Chem. Biol. 6, 679-684 (2011).
- Wang, R., Zheng, W., Yu, H., Deng, H., Luo, M. Labeling substrates of protein arginine methyltransferase with engineered enzymes and matched S-adenosyl-l-methionine analogues. J. Am. Chem. Soc. 133, 7648-7651 (2011).
- Islam, K., et al. Bioorthogonal profiling of protein methylation using azido derivative of S-adenosyl-l-methionine. J. Am. Chem. Soc. 134, 5909-5915 (2012).
- Islam, K., et al. Defining efficient enzyme-cofactor pairs for bioorthogonal profiling of protein methylation. Proc. Natl. Acad. Sci. U.S.A. 110, 16778-16783 (2013).
- Binda, O., Boyce, M., Rush, J. S., Palaniappan, K. K., Bertozzi, C. R., Gozani, O. A chemical method for labeling lysine methyltransferase substrates. ChemBioChem. 12, 330-334 (2011).
- Willnow, S., Martin, M., Lüscher, B., Weinhold, E. A selenium-based click AdoMet analogue for versatile substrate labeling with wild-type protein methyltransferases. ChemBioChem. 13, 1167-1173 (2012).
- Bothwell, I. R., et al. Se-Adenosyl-l-selenomethionine cofactor analogue as a reporter of protein methylation. J. Am. Chem. Soc. 134, 14905-14912 (2012).
- Tomkuviene, M., Clouet-d’Orval, B., Cerniauskas, I., Weinhold, E., Klimasauskas, S. Programmable sequence-specific click-labeling of RNA using archaeal box C/D RNP methyltransferases. Nucleic Acids Res. 40, 6765-6773 (2012).
- Nishioka, K., et al. Set9, a novel histone H3 methyltransferase that facilitates transcription by precluding histone tail modifications required for heterochromatin formation. Genes Dev. 16, 479-489 (2002).
- Clark, P. M., et al. Direct in-gel fluorescence detection and cellular imaging of O-GlcNAc-modified proteins. J. Am. Chem. Soc. 130, (2008).
- Lukinavicius, G., Lapinaite, A., Urbanaviciute, G., Gerasimaite, R., Klimasauskas, S. Engineering the DNA cytosine-5 methyltransferase reaction for sequence-specific labeling of DNA. Nucleic Acids Res. 40, 11594-11602 (2012).
- Neely, R. K., Dedecker, P., Hotta, J., Urbanaviciute, G., Klimasauskas, S., Hofkens, J. DNA fluorocode: A single molecule, optical map of DNA with nanometre resolution. Chem. Sci. 1, 453-460 (2010).
- Roberts, R. J., Vincze, T., Posfai, J., Macelis, D. REBASE-a database for DNA restriction and modification: enzymes, genes and genomes. Nucleic Acids Res. 38, 234-236 (2010).
- Petrossian, T. C., Clarke, S. G. Uncovering the human methyltransferasome. Mol. Cell. Proteomics. 10, 1-12 (2011).
- Kriukiene, E., et al. DNA unmethylome profiling by covalent capture of CpG sites. Nat. Commun. 4, 2190(2013).
- Wang, R., et al. Profiling genome-wide chromatin methylation with engineered posttranslation apparatus within living cells. J. Am. Chem. Soc. 135, 1048-1056 (2013).
- Zhang, C., Weller, R. L., Thorson, J. S., Rajski, S. R. Natural product diversification using a non-natural cofactor analogue of S-adenosyl-l-methionine. J. Am. Chem. Soc. 128, 2760-2761 (2006).
- Stecher, H., et al. Biocatalytic Fiedel-Crafts alkylation using non-natural cofactors. Angew. Chem. Int. Ed. 48, 9546-9548 (2009).
- Lee, B. W. K., Sun, H. G., Zang, T., Kim, B. J., Alfaro, J. F., Zhou, Z. S. Enzyme-catalyzed transfer of a ketone group from an S-adenosylmethionine analogue: A tool for the functional analysis of methyltransferases. J. Am. Chem. Soc. 132, 3642-3643 (2010).
- Winter, J. M., et al. Expanding the structural diversity of polyketides by exploring the cofactor tolerance of an inline methyltransferase domain. Org. Lett. 15, 3774-3777 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
znakowanie za pomocą metylotransferazysekwencyjnie specyficzne znakowanie DNAfluorescencyjne znakowanie białekanalogi kofaktora azyrydynypodwójnie aktywne analogi AdoMetmetylotransferaza DNA M.BseCIhistonowa metylotransferaza Set7/9technika SMILing DNAenzymatyczny transfer mTAGznakowanie metodą chemii klik
