Charakterystyka komórek szpikowych mózgu po udarze może być przeprowadzona za pomocą metody frakcjonowania optycznego lub za pomocą analizy cytometrycznej zawiesin leukocytów mózgu. Obie są użytecznymi technikami do przeprowadzenia dokładnego fenotypowego rozróżnienia głównych podzbiorów komórek szpikowych znajdujących się w niedokrwionym mózgu.
Artykuł metodologiczny
Charakterystyka stereologiczna i cytometrii przepływowej subpopulacji leukocytów w modelach przejściowego lub trwałego niedokrwienia mózgu
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Uważa się, że aktywacja mikrogleju, jak również wynaczynienie hematogennych makrofagów i neutrofili, odgrywają kluczową rolę w uszkodzeniach mózgu po udarze. Te subpopulacje komórek szpikowych mogą wykazywać różne fenotypy i funkcje i muszą być rozróżniane i charakteryzowane w celu zbadania ich regulacji i wkładu w uszkodzenie tkanek. Protokół ten zapewnia dwie różne metodologie charakterystyki komórek odpornościowych mózgu: precyzyjne podejście stereologiczne i analizę cytometrii przepływowej. Podejście stereologiczne opiera się na metodzie frakcjonowania optycznego, która oblicza całkowitą liczbę komórek w obszarze zainteresowania (mózg z zawałem) oszacowaną przez systematyczne losowe pobieranie próbek. Drugie podejście do charakterystyki zapewnia prosty sposób izolowania zawiesin leukocytów w mózgu i charakteryzowania ich za pomocą cytometrii przepływowej, co pozwala na scharakteryzowanie mikrogleju, naciekanych monocytów i neutrofili w tkance niedokrwionej. Ponadto szczegółowo opisano model niedokrwienia mózgu u myszy, który wpływa wyłącznie na korę mózgową, generując wysoce powtarzalne zawały o niskim wskaźniku śmiertelności, a także procedurę histologicznego przetwarzania mózgu w celu scharakteryzowania objętości zawału metodą Cavalieriego.
Wprowadzenie
Uważa się, że zmiany morfologiczne, fenotypowe i ekspresji genów mikrogleju, a także wynaczynienie i aktywacja hematogennych makrofagów i neutrofili odgrywają kluczową rolę w patofizjologicznej kaskadzie po urazie mózgu1-4. Protokół ten zapewnia dwa podejścia do oszacowania liczby różnych podzbiorów komórek szpikowych w niedokrwionym mózgu i przeprowadzenia ich charakterystyki fenotypowej. Ponadto zawiera również opis eksperymentalnego modelu niedokrwienia mózgu u myszy, który składa się z przejściowego lub trwałego podwiązania zarówno dystalnej tętnicy środkowej mózgu (MCA), jak i tętnicy szyjnej wspólnej (CCA), w tym sposobu oceny zawału za pomocą dokładnej metody Cavalieriego przy użyciu oprogramowania stereologicznego.
Pierwszym podejściem do scharakteryzowania podzbiorów komórek szpikowych niedokrwionego mózgu jest metoda stereologiczna oparta na podejściu frakcjonowania optycznego5. Jest to najczęściej stosowana sonda stereologiczna w naukach przyrodniczych i zapewnia wysoki stopień precyzji przy niskich współczynnikach błędu5-7. Jest to najlepszy wybór do oznaczania ilościowego komórek, gdy tkanka jest cięta na sekcje, ponieważ pozwala uniknąć stronniczości w szacowaniu komórek z powodu fragmentacji tkanki na sekcje. Metoda ta jest bardzo skutecznym sposobem charakteryzowania liczby, dynamiki i zmian fenotypowych naciekających subpopulacji neutrofili tkanki niedokrwiennej8.
Drugie podejście do charakterystyki opiera się na zmodyfikowanym protokole Campanelli i współpracowników9, który zapewnia prosty sposób na wyizolowanie zawiesin leukocytów w mózgu i scharakteryzowanie ich za pomocą cytometrii przepływowej. W przeciwieństwie do konwencjonalnych technik immunohistochemicznych, charakterystyka cytometrii przepływowej pozwala na różnicowanie mikrogleju (CD45loCD11b+) i naciekanych komórek szpikowych (CD45hiCD11b+) na podstawie ich różnych poziomów ekspresji CD45 9-13. Ponadto można wyróżnić monocyty prozapalne (CD45hiCD11b+Ly-6G-Ly-6C hi), neutrofile (CD45hiCD11b+Ly-6G+) i inne podzbiory leukocytów tkanki niedokrwiennej. Podejście to zapewnia wiarygodny i szybki test do oceny zapalenia nerwów w eksperymentalnych modelach niedokrwienia mózgu. Jednak przetwarzanie tkanek może wpływać na stan aktywacji i liczbę różnych populacji komórek znajdujących się w tkance niedokrwiennej, zapewniając półilościową charakterystykę.
Protokół
UWAGA: Wszystkie protokoły eksperymentalne były zgodne z wytycznymi Komitetu ds. Dobrostanu Zwierząt Universidad Complutense (zgodnie z dyrektywami UE 86/609/CEE i 2003/65/CE).
1. Model niedokrwienia mózgu
UWAGA: Model niedokrwienia mózgu w tym artykule zakłada trwałe lub przejściowe zamknięcie zarówno CCA (tętnica szyjna wspólna), jak i MCA (tętnica środkowa mózgu) poprzez podwiązanie szwem nylonowym.
- Przygotowania przedoperacyjne
- Sterylizuj wszystkie narzędzia chirurgiczne w autoklawie lub za pomocą sterylizatora z kulkami szklanymi. Zdezynfekuj również obszar operacyjny 70% etanolem.
- Znieczulij mysz odpowiednimi środkami znieczulającymi. Osiągnij indukcję za pomocą izofluranu 2,5% i utrzymuj za pomocą izofluranu 1,5% w mieszaninie 80% powietrza / 20% tlenu za pomocą parownika. Nałóż sztuczne łzy na oczy myszy, aby zapobiec wysuszeniu podczas znieczulenia.
- Umieść mysz na poduszce grzewczej, która jest połączona z urządzeniem sprzężenia zwrotnego z sondą temperatury umieszczoną w odbytnicy i ustaw temperaturę na poziomie fizjologicznym (36.5 ± 0.5 ºC) podczas zabiegu chirurgicznego.
- Niedrożność tętnicy szyjnej wspólnej przez podwiązanie
- Umieść mysz w pozycji leżącej grzbietowej i unieruchom taśmą. Zdezynfekuj skórę 70% etanolem lub jodkiem powidonu i obetnij włosy w górnej części brzusznej.
- Pod mikroskopem chirurgicznym wykonaj 1 cm nacięcie w linii środkowej wokół brzusznej powierzchni szyi.
- Rozerwij wszystkie tkanki miękkie (tkankę gruczołową, w tym gruczoły podszczękowe, podjęzykowe i ślinianki przyuszne) i zidentyfikuj lewą tętnicę szyjną wspólną (CCA), która jest zlokalizowana po stronie tchawicy. Cofnij mięśnie i odsłoń lewe CCA. Ostrożnie wypreparuj nerw błędny.
- Po wypreparowaniu należy zakryć lewe CCA za pomocą podwiązki za pomocą nylonowego szwu 6/0. Podwiązywać za pomocą węzła stałego lub węzła ślizgowego (aby umożliwić reperfuzję, jeśli pożądany jest model przejściowego niedokrwienia mózgu).
- Umieść tkankę gruczołową w jej pierwotnym położeniu i zamknij nacięcie na skórze szyi nylonowym szwem 6/0.
UWAGA: Zwierzęta podejrzane są poddawane tej samej procedurze chirurgicznej, co zwierzęta MCAO, ale CCA nie jest okludowane.
- Niedrożność dalszej tętnicy środkowej mózgu przez podwiązanie
- Ustaw mysz na prawym boku i unieruchom taśmą. Zdezynfekuj skórę głowy 70% etanolem lub jodkiem powidonu i obetnij włosy z głowy myszy (usuń włosy po obcięciu).
- Pod mikroskopem chirurgicznym wykonaj nacięcie skóry między okiem a uchem. Odsuń skórę i przytrzymaj ją taśmą.
- Wykonaj poziome nacięcie na mięśniu skroniowym od prawej do lewej. Następnie wykonaj drugie pionowe nacięcie po prawej stronie mięśnia skroniowego (uważaj, aby nie przeciąć żyły skroniowej). Odsuń mięsień skroniowy od czaszki i przytrzymaj go szwem, aby utrzymać czystą powierzchnię czaszki.
- Oczyść powierzchnię czaszki zimnym sterylnym roztworem soli fizjologicznej, aby wykryć dokładne położenie lewej tętnicy środkowej mózgu (MCA) poprzez przezroczystość czaszki. Wykonaj okrągłą kraniotomię (o średnicy 1 mm) z zadziorem ze stali nierdzewnej w płacie czołowym między łukiem jarzmowym a kością łuskową. Ostrożnie usuń czaszkę i odsłoń MCA.
- Nałóż niewielką ilość zimnego, sterylnego roztworu soli fizjologicznej na powierzchnię mózgu i usuń opony mózgowe (oponę twardą i pajęczynówkę) za pomocą kleszczy.
- Wykonaj podwiązanie lewego MCA w dystalnym tułowiu tuż przed rozwidleniem między czołową i tylną gałęzią MCA. Zatkaj lewy MCA za pomocą ligatury za pomocą nylonowego szwu 9/0. Podwiązywać za pomocą węzła stałego lub węzła ślizgowego (aby umożliwić reperfuzję, jeśli pożądany jest model przejściowego niedokrwienia mózgu). Czas między okluzją CCA i MCA wynosi około 10-20 minut, w zależności od doświadczenia operatora.
- Umieść mięsień skroniowy w jego pierwotnej pozycji i zamknij nacięcie na skórze szyi nylonowym szwem 6/0.
- Umieść mysz z powrotem w klatce, aby doszła do siebie po znieczuleniu (zwykle 5-10 min) i wstrzyknij myszu buprenorfinę dootrzewnową (IP) (0,3 mg/kg).
- Monitoruj mysz przez kilka godzin, aby wykryć dyskomfort (nie pozostawiaj myszy bez opieki, dopóki nie odzyska wystarczającej świadomości, aby utrzymać leżący mostek). Ponieważ na ogół obserwuje się utratę wagi po operacji, umieść rozgniecione jedzenie na szalce Petriego, aby ułatwić jedzenie.
- Gdy zwierzę w pełni wyzdrowieje, wróć do towarzystwa innych zwierząt.
- Jeśli pożądany jest przejściowy model MCAO, ponownie znieczulij mysz i usuń węzeł ślizgowy z CCA i MCA, aby umożliwić reperfuzję (zwykle między 0,5-2 godzinami (ryc. 1)).
UWAGA: Zwierzęta podejrzane są poddawane tej samej procedurze chirurgicznej, co zwierzęta MCAO, ale MCA nie jest okludowane.
2. Perfuzja i sekcja tkanki mózgowej
- 24 lub 48 godzin po MCAO należy pośmiać mysz ze śmiertelną dawką środka znieczulającego (np. pentobarbitalem sodu, IP86 mg/kg lub przedawkowaniem izofluranu).
- Przeprowadzić perfuzję myszy z buforem fosforanowym 0,1 M, a następnie 4% paraformaldehydem (PFA) w buforze fosforanowym (pH 7,4).
- Usuń mózg w następujący sposób:
- Odetnij głowę zwierzęciu tuż nad rdzeniem kręgowym.
- Wykonaj tylno-przednie nacięcie na skórze głowy, aby odsłonić czaszkę. Wykonaj dwa boczne nacięcia na styku ścian bocznych i podstawy czaszki i usuń mały kawałek kości.
- Wykonaj przecięcie przez czaszkę wzdłuż szwu strzałkowego.
- Usuń czaszkę pokrywającą każdą półkulę za pomocą kleszczy, aby odsłonić mózg. Użyj szpatułki, aby oddzielić mózg od czaszki i przenieś go do 4% roztworu PFA.
- Post-fix przez 3 godziny w 4% roztworze PFA w temperaturze 4 ºC.
- Usuń roztwór PFA i inkubuj mózg przez 48 godzin w 30% roztworze sacharozy, aby krioprotektorować mózg.
- Usuń roztwór sacharozy i szybko zamroź mózg w zimnym izopentanie (-40 ºC). Zamrożony mózg przechowywać w temperaturze –80 ºC.
- Uzyskać koronalne skrawki mózgu (30 μm) za pomocą mikrotomu zamrażającego. Zbierz dziesięć zestawów seryjnych w roztworze kriokonserwantu. Każdy zestaw szeregowy składa się z około 14-16 wycinków koronalnych o odległości międzywarstwowej 300 μm, które odpowiednio próbkują mózg myszy między 1,94 a -2,46 za bregmą.
3. Barwienie Nissl i szacowanie objętości zawału
- Barwienie Nissl przez fiolet krezylowy
- Zamontuj skrawki mózgu w szkiełku mikroskopowym superfrost. Do oznaczania objętości zawału metodą Cavalieriego w skrawkach barwionych Nisslem należy użyć frakcji do pobierania próbek w skali 1/20 (1/2 skrawków jednego z dziesięciu zestawów seryjnych zebranych w kroku 2.7; w przybliżeniu stosuje się łączną liczbę 7-8 odcinków o odległości międzywarstwowej 600 μm). Należy uważać, aby zachować prawidłową orientację przednio-tylną (obszar zawału znajduje się po prawej stronie).
- Wykonaj konwencjonalne barwienie Nissl w następujący sposób:
- Pozostaw sekcje montowane na suwaku do wyschnięcia na kilka godzin.
- Ponownie nawodnić sekcje montowane na szkiełku i zabarwić 0,1% roztworem fioletu krezylowego przez 5 minut.
- Odwodnić za pomocą stopniowanej serii EtOH (70%, 90% i 100%; 5 minut na zmianę). Oczyść sekcje montowane na suwaku ksylenem, dodaj materiał montażowy z plastyfikatorem ksylenowym (DPX) i przykryj szklanym szkiełkiem nakrywkowym.
- Wykorzystanie oprogramowania stereologicznego do oszacowania objętości zawału metodą Cavalieriego w odcinkach szeregowych barwionych Nisslem
- Użyj parametrów pokazanych w Tabeli 1, aby określić ilościowo objętość zawału metodą Cavalieriego14 i systemu stereologicznego, który składa się z mikroskopu wyposażonego w kamerę, zmotoryzowanego stolika komputerowego XYZ i oprogramowania stereologicznego (główne wskazówki podane poniżej dotyczą komputerów PC, ale wskazówki mogą się różnić dla innych systemów operacyjnych).
- Włącz komputer, mikroskop, kontroler sceny i kamerę w odpowiedniej kolejności. Uruchom oprogramowanie stereologiczne.
- Przesuń obiektyw 10X na miejsce i wybierz 10X z menu rozwijanego obiektywu.
- Poruszaj się po pierwszej sekcji poplamionej Nisslem i znajdź odpowiedni punkt odniesienia. Kliknij myszką, aby ustalić punkt odniesienia (aby się poruszać, należy aktywować przycisk joy free).
- Oszacuj "grubość zamontowanego przekroju" (rzeczywista grubość przekroju z uwzględnieniem skurczu). Naciśnij przycisk "Miernik pozycji ostrości" i oblicz grubość od dołu do góry sekcji.
- Utwórz narzędzie do konturowania dla obszarów przeciwprądowych i mięśniowych oraz obszaru zawału.
- Kliknij menu "Wyświetlacz" i wybierz "Ustawienia wyświetlania". Spowoduje to otwarcie okna dialogowego Ustawienia wyświetlania.
- Wybierz zakładkę "Kontury" i kliknij przycisk "dodaj typ konturu".
- Utwórz kontur dla każdego obszaru, aby określić ilościowo i uwidocznić go w menu konturu w dół. Kliknij przycisk OK.
- Utwórz narzędzie Marker dla półkul przeciwskrzydłowych i mięśniowych oraz obszaru zawału.
- Kliknij menu "Wyświetlacz" i wybierz "Ustawienia wyświetlania", aby otworzyć okno dialogowe Ustawienia wyświetlania.
- Wybierz zakładkę "Znaczniki" i zmień nazwę znaczników, klikając dwukrotnie na dostępne znaczniki. Uwidocznij je na pasku znaczników. Kliknij przycisk OK.
- Aktywuj menedżera sekcji.
- Kliknij menu "Narzędzia/Menedżer sekcji szeregowych". Dodaj nową sekcję za pomocą przycisku "nowa sekcja". Ten przycisk otwiera okno dialogowe "Ustawienia sekcji szeregowej".
- Ustaw "Wyprzedzenie bloku" na 30 μm. Ustaw "grubość zamontowanego przekroju" z wartością oszacowaną w kroku 3.2.5.
- Ustaw "Interwał oceny" na 20. Użyj frakcji próbkowania 1/20 plasterka.
- Ustaw "numer sekcji początkowej" na 1. Ustaw wartość "Osi Z dla górnej części pierwszej sekcji" na 0. Kliknij przycisk OK.
- Narysuj kontur, aby obrysować przeciwległą półkulę.
- Wybierz narzędzie Półkula przeciwdziałająca (utworzone wcześniej w kroku 3.2.6) z menu konturu w dół.
- Narysuj kontur, aby obrysować przeciwległą półkulę.
- Aby zakończyć śledzenie półkuli przeciwstawnej, kliknij prawym przyciskiem myszy i wybierz "zamknij kontur ".
- Oszacuj kontur półkuli przeciwstawnej za pomocą Cavalieri.
- Kliknij w menu "Sondy" i wybierz Estymator Cavalieri. Ustaw "Odstępy siatki" na 100 μm. Ustaw "Obrót siatki" na 0. Ustaw "Postęp bloku" na 30 μm. Kliknij OK.
- Wybierz przycisk "Półkula przeciwdziałająca" z paska znaczników. Kliknij prawym przyciskiem myszy wewnątrz konturu półkuli przeciwstawnej.
- Wybierz "Tryb malowania markerów Cavalieri". Ponownie kliknij prawym przyciskiem myszy wewnątrz konturu półkuli przeciwprądowej i wybierz "Markery malarskie w konturze".
- Dezaktywuj Kalkulator Cavalieri, klikając na sondy i Estymator Cavalieri i dezaktywuj przycisk znacznika przeciwstawnego na pasku znaczników.
- Powtórzyć tę samą procedurę dla półkuli mięśniowej i obszaru zawału (kroki 3.2.7 i 3.2.8). Zapisz dane po oszacowaniu powierzchni każdej sekcji.
- Oblicz obszary przeciwległe, izylesionowe i zawałowe w pozostałej części sekcji zabarwionej Nisslem.
- Utwórz nową sekcję, jak w kroku 3.2.6. Nie modyfikuj wartości wprowadzonych w oknie dialogowym "Ustawienia sekcji szeregowej". Kliknij przycisk OK.
- Powtórz kroki 3.2.7-3.2.8 w nowej sekcji.
- Eksportuj wyniki kwantyfikacji do pliku arkusza kalkulacyjnego.
- Kliknij "Sondy" w menu Stereo Investigator. Wybierz opcję "Wyświetl listę uruchomień sondy". Spowoduje to otwarcie okna dialogowego "Poprzednie przebiegi stereologiczne".
- Zaznacz wszystkie sekcje, klikając na nie. Naciśnij przycisk "View wyniki". Spowoduje to otwarcie "Wyników estymatora Cavalieri", w którym wyświetlany jest szacowany obszar i objętość dla każdego regionu.
- Aby wyeksportować wyniki do pliku arkusza kalkulacyjnego, kliknij przycisk "Kopiuj wszystkie wyniki do schowka" i wklej je do pliku Excela z głównymi wynikami uzyskanymi z każdego regionu (Tabela 2).
- Wyrazić objętość zawału w mm3 lub jako % półkuli przebytej (%IH) przy użyciu wzoru15 %IH = InfVol/ContrVol*100, gdzie
InfVol (objętość tkanki po zawale) = ΣInfAreai,
ContrVol (objętość półkuli przeciwstawnej) = ΣContrAreai
4. Stereologiczna kwantyfikacja naciekanych neutrofili po niedokrwieniu mózgu za pomocą frakcjonatora optycznego
- Barwienie odcinków mózgu:
- Do oszacowania całkowitej liczby naciekających neutrofili po MCAO za pomocą frakcjonatora optycznego16 należy użyć frakcji do pobierania próbek 1/10 warstwy. Barwienie immunologiczne neutrofili przy użyciu konwencjonalnych technik immunofluorescencji z szczurzym przeciwciałem anty-Ly6G (1A8) i prawym przeciwciałem drugorzędowym na swobodnie pływających odcinkach. Ponadto barwienie przeciwstawne za pomocą urządzenia do produkcji jądrowej, takiego jak DAPI lub TOPRO, chociaż nie jest konieczne do identyfikacji neutrofili, może ułatwić wykrycie obszaru zawału.
- Zamontuj skrawki mózgu w szkiełku mikroskopowym superfrost z obszarem zawału umieszczonym po prawej stronie.
- Kwantyfikacja naciekanych leukocytów w niedokrwionym mózgu za pomocą frakcjonatora optycznego
- Parametry przedstawione w Tabeli 3 należy wykorzystać do ilościowego określenia naciekanych leukocytów w niedokrwionym mózgu za pomocą optycznego frakcjonatora z systemem stereologii. Powtórz kroki 3.2.1-3.2.5 z sekcji 3.
- Utwórz narzędzie do konturowania obszaru po zawale, tak jak zostało to opisane w kroku 3.2.6 w sekcji 3.
- Utworzyć narzędzie do oznaczania neutrofili, jak to zostało opisane w kroku 3.2.7 w sekcji 3.
- Aktywuj menedżera sekcji i utwórz nową sekcję, jak w kroku 3.2.8. W takim przypadku ustaw "Interwał oceny" na 10 (do oszacowania liczby neutrofili używana jest frakcja próbkowania 1/10 wycinka).
- Wybierz narzędzie do konturowania "Obszar zawału" (utworzone wcześniej w kroku 4.2.1) z menu konturu w dół. Narysuj kontur, aby obrysować obszar zawału przy obiektywie 10X. Zmień cel na 100X, aby przeprowadzić kwantyfikację neutrofili (nie zapomnij wybrać 100X z rozwijanego menu obiektywu).
- Kliknij menu "Sondy" i wybierz "Frakcjonator optyczny". Ustaw "Rozmieszczenie XY ramek zliczania" na 230 zarówno dla rozmiaru siatki X, jak i Y. Ustaw "Obrót siatki" na 0. Ustaw "Postęp bloku" na 30 μm. Kliknij OK.
- Wybierz przycisk "neutrofile" na pasku znaczników. Zaznacz barwione neutrofile w obszarze zawału. Po zakończeniu dezaktywuj sondę frakcjonowania optycznego, klikając "Sondy" i "Frakcjonator optyczny". Wyłącz przycisk neutrofili z paska znaczników.
- Powtórzyć tę samą procedurę dla każdej sekcji (4.2.4-4.2.9).
- Eksportuj wyniki kwantyfikacji do pliku arkusza kalkulacyjnego.
- Kliknij "Sondy" w menu Stereo Investigator. Wybierz opcję "Wyświetl listę uruchomień sondy", aby otworzyć okno dialogowe "Poprzednie uruchomienia stereologiczne".
- Zaznacz wszystkie sekcje, klikając na nie. Naciśnij przycisk "View Results", aby otworzyć "Wyniki frakcjonatora optycznego", w którym wyświetlana jest szacowana liczba neutrofili.
- Wyeksportuj wyniki do pliku arkusza kalkulacyjnego, klikając przycisk "Kopiuj wszystkie wyniki do schowka" i wklej do pliku arkusza kalkulacyjnego.
5. Dysocjacja mózgu i analiza cytometrii przepływowej
UWAGA: Charakterystyka subpopulacji szpikowej za pomocą cytometrii przepływowej na świeżej tkance mózgowej może być wykorzystana jako alternatywa dla poprzedniej charakterystyki neutrofili wykonywanej na stałych i immunologicznie wycinkach mózgu.
- Dysocjacja mózgu i przygotowanie zawiesiny pojedynczej komórki
- Przygotować 10 ml/zwierzę roztworu RPMI (Roswell Park Memorial Institute)-Percoll zawierającego 8 ml RPMI, 1 ml 30% Percollu i 1 ml 10x PBS (sól fizjologiczna buforowana fosforanami).
- Usuń mózg myszy po MCAO, jak opisano w kroku 2.3.
- Pod mikroskopem wypreparuj obszary rdzenia i okołozawałowe kory ipsilateralnej z niedokrwiennej mózgu myszy (lub podobnego obszaru dla pozorowanych i naiwnych zwierząt) z mózgu. Zważ tkankę mózgową i umieść ją w 5 ml lodowatego RPMI-Percoll (krok wagowy można wykonać w celu normalizacji między grupami eksperymentalnymi).
- Zdysocjuj tkankę w zawiesinie pojedynczej komórki za pomocą młynka do tkanek typu Potter-Elvehjem z tłuczkami teflonowymi.
- Przenieść zawiesiny komórek do probówki ultrawirówki o pojemności 50 ml i dodać do próbek 5 ml roztworu RPMI-Percoll.
- Odwirować zawiesiny komórek w temperaturze 7 800 x g przez 30 minut w temperaturze 25 °C. Po odwirowaniu upewnij się, że na górze roztworu pojawia się biała warstwa odpowiadająca mielinie.
- Ostrożnie usuń warstwę mieliny i przefiltruj całe zawiesiny komórek, w tym komórki granulowane, przez sitko z nylonowej siatki o średnicy 40 μm.
- Dodaj 10 ml RPMI na sitko, aby upewnić się, że wszystkie komórki zostały przefiltrowane i umieść roztwór w probówce o pojemności 50 ml. Dodać 30 ml RPMI i odwirować 50 ml zawiesiny komórek przy 600 x g przez 10 minut w temperaturze pokojowej.
- Odrzucić supernatant i ponownie zawiesić osad leukocytów w 1 ml PBS. Dodać 4 ml buforu do lizy (150 mM NH4Cl, 10 mM NaHCO3 i 0,1 mM EDTA) i inkubować komórki przez 2-3 minuty w temperaturze pokojowej w celu lizy erytrocytów z zawiesiny komórkowej. Odwirować roztwór o stężeniu 600 x g przez 10 minut w temperaturze 4 °C.
- Barwienie komórek i cytometria przepływowa
- Przygotować koktajl do znakowania do cytometrii przepływowej, zawierający 200 μl PBS-BSA (1%) 1:100 Fc-Block, 1:40 anty-CD45-PercP szczur, 1:40 anty-Ly6G-APC, 1:40 anty CD11b-FITC szczura i 1:40 anty-Ly-6C-PE szczura na próbkę.
- Ponownie zawiesić komórki w koktajlu etykietującym i inkubować próbki przez 45 minut w lodzie.
- Przemyć koktajl do etykietowania 1 ml zimnego PBS i odwirować komórki przy 600 x g przez 10 minut w temperaturze 4 °C. Ponownie zawiesić osad za pomocą 100 μl FACS Flow i uzyskać całą zawiesinę komórek za pomocą cytometrii przepływowej.
- Użyj oprogramowania do analizy cytometrii przepływowej, aby scharakteryzować i określić ilościowo populacje komórek.
- Główne podzbiory leukocytów odpowiadające koktajlowi znakującemu przygotowanemu w tym protokole można scharakteryzować w następujący sposób: CD45loCD11b+: rezydentne komórki mikrogleju; CD45hiCD11b+Ly-6G+: neutrofile; CD45hiCD11b+Ly-6G-Ly-6Chi: prozapalne monocyty.
Wyniki
Przedstawiony tutaj model niedokrwienia mózgu generuje zawały widoczne wyłącznie w korze, bez wpływu na tkankę prążkowia, ponieważ gałęzie soczewkowato-prążkowane MCA, które unaczyniają prążkowie, nie zostają zamknięte (Rysunek 1). Dzięki barwieniu Nissla obszar uszkodzony można zidentyfikować jako hipochromatyczny obszar korowy (Rysunek 2). Model ten charakteryzuje się wysoką powtarzalnością objętości zawałów 24 h po MCAO (%IH 15,89 ± 0,28), oszacowaną metodą Cavalieriego w sekcjach barwionych metodą Nissla (Rysunek 2). Szacowanie objętości zawału metodą Cavalieriego jest dokładnym podejściem o niskim błędzie, co odzwierciedla współczynnik błędu (CE) Gundersena w półkulach przeciwstronnych do uszkodzenia i tych samych po stronie uszkodzenia, a także w obszarze zawału (Tabela 2). Objętość uszkodzonej tkanki może być wyrażona w mm3 , ale także jako % IH przy użyciu wzoru w sekcji 3.2.13. Dodatkowo, oszacowanie całkowitej objętości obszarów po stronie uszkodzenia i przeciwstronnych pozwala na obliczenie wskaźnika obrzęku w celu skorygowania objętości zawału i uniknięcia przeszacowania uszkodzonej tkanki (Tabela 2).
Biorąc pod uwagę proces seryjnego cięcia tkanki mózgowej, można to wykorzystać do dokładnej oszacowania całkowitej liczby subpopulacji komórek, takich jak infiltrujące neutrofile w obszarze niedokrwiennym, stosując metodę Optical Fractionator (Rysunek 3 i Tabela 4) z parametrami przedstawionymi w Tabeli 3. Zgodnie z tym protokołem, całkowita liczba neutrofili (komórek Ly6G-dodatnich) w obszarze zawału u myszy po pMCAO wynosi 23 328 ± 3 623 w 24. godzinie oraz 82 856 ± 8 143 w 48. godzinie (Rysunek 3D). Zgodnie z poprzednimi badaniami, infiltracja neutrofili jest bezpośrednio skorelowana z wielkością zawału (Rysunek 3E). Oszacowanie liczby neutrofili metodą Optical Fractionator jest precyzyjnym podejściem o niskim błędzie, co odzwierciedla współczynnik CE wg Gundersena (Tabela 4).
Protokół izolacji leukocytów i charakterystyki metodą cytometrii przepływowej pozwala na wyizolowanie 47 922 ± 23 174 komórek mieloidalnych z kory półkuli ipsilesjonalnej u myszy z niedokrwieniem mózgu. Stanowi to 10-30% wszystkich zdarzeń znalezionych w zawiesinie komórkowej. Zdecydowana większość zdarzeń zarejestrowanych przy użyciu tego protokołu wykazuje niski parametr FSC, co wiąże się z obecnością debris komórkowego (Rycina 4). Barwienie na CD11b wykazuje, że komórki CD11b+ mają wyższą wartość FSC (Rycina 4), co sugeruje, że debris komórkowy nie jest znakowany tym markerem i, jak wskazano wcześniej, może zostać wykluczony z dalszej analizy poprzez ustawienie progu FSC na 2009. Zmienna ilość uzyskanego tą metodą debris komórkowego sugeruje, że może to wynikać z różnic w przetwarzaniu próbek (czas, konserwacja tkanki, temperatura próbki, efektywne usuwanie mieliny, itp.). Ponadto konieczne jest zastosowanie sit komórkowych (cell strainers), aby uniknąć obecności skupisk komórkowych w próbkach; ten etap musi zostać wykonany przed barwieniem komórek. Stosując strategię bramkowania (gating strategy) przedstawioną na Rycini 5, opartą na ekspresji CD11b i CD45, możemy odróżnić rezydentne komórki mieloidalne od komórek naciekających w tkance niedokrwionej. Populacja CD11b+ zwiększa się w półkuli niedokrwionej w porównaniu z grupą naiwną oraz grupą sham, w której komórki te są w większości powiązane z niską ekspresją CD45, co wskazuje na proliferację mikrogleju po niedokrwieniu (Rycina 4, Rycina 5 oraz Tabela 5). Różnica ta wynika prawdopodobnie z infiltracji komórek z obwodu, o czym świadczy pojawienie się subpopulacji komórek CD11b+CD45hi w niedokrwionym mózgu (Rycina 4, Rycina 5 oraz Tabela 5), której liczba jest niska w mózgach naiwnych i w grupie sham. Wkład nacieków do populacji komórek CD11b+ w niedokrwieniu mózgu jest procesem bardzo dynamicznym4. W modelu MCAO z użyciem ligature może on wynosić od 30% do 60% wszystkich komórek CD11b+ w zależności od wielkości zmiany i czasu przeprowadzenia charakterystyki. Neutrofile, charakteryzowane jako komórki Ly-6G+ , są najliczniejszą populacją komórek naciekających znalezioną 24 h po MCAO w niedokrwionym mózgu myszy w tym modelu niedokrwienia mózgu, ponieważ stanowią one 70-80% komórek CD11b+CD45hi. Pozostałe komórki to głównie subpopulacja prozapalnych monocytów CD11b+CD45hiLy-6G-Ly-6Chi . W tym modelu populacja ta będzie zwiększać swoją liczebność w obszarach niedokrwienia mózgu od 24 do 48 h po MCAO.
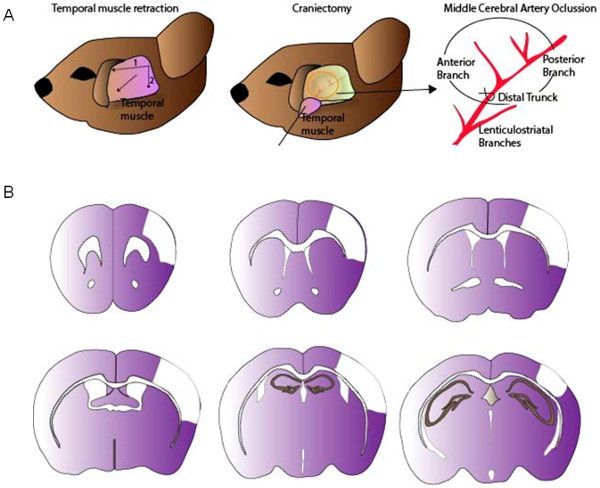
Rysunek 1: Procedura chirurgiczna ligacji MCA. (A) Po odsunięciu mięśnia skroniowego w czaszce myszy wykonuje się małą kraniotomię. MCA zostaje podwiązana za pomocą węzła lub węzła poślizgowego przy użyciu nici chirurgicznej 9/0. (B) Reprezentatywne obrazy uszkodzenia kory wywołanego modelem MCAO. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
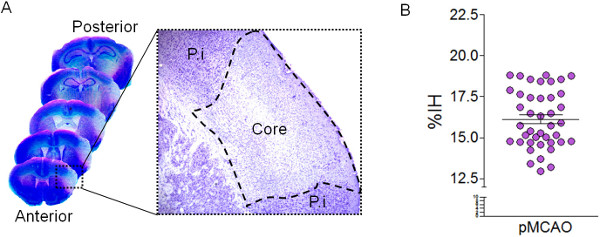
Rycina 2: Ilościowe określenie objętości zawału metodą Cavalieriego. (A) Reprezentatywne obrazy przekrojów mózgu barwionych metodą Nissla 24 h po trwałym podwiązaniu tętnicy środkowej mózgu (MCA). Duże powiększenie ukazuje obszar hipochromatyczny po barwieniu metodą Nissla, który identyfikuje obszar uszkodzony (rdzeń) po MCAO. Przedstawiono również obszar okołozawałowy (P.I). (B) Ilościowe określenie objętości zawału przedstawione jako % zawału półkuli (%IH) przy użyciu metody Cavalieriego w seryjnych przekrojach barwionych metodą Nissla, 24 h po MCAO (n = 50 myszy).
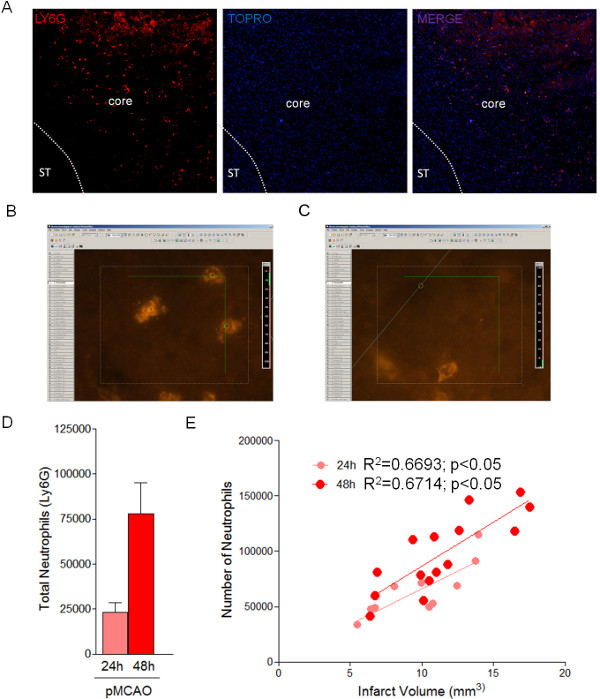
Rysunek 3: Stereologiczne ilościowe oznaczenie neutrofili w obszarze zawału 24 i 48 h po podwiązaniu, z zastosowaniem metody Optical Fractionator. (A) Reprezentatywny obraz naciekających neutrofili (komórki Ly6G-dodatnie) w obszarze niedokrwiennym 24 h po MCAO. Obrys wyznacza obszar zawału. (B, C) Przykłady dyssektora optycznego do ilościowego oznaczania neutrofili metodą optical fractionator. (D) Ilościowe oznaczenie całkowitej liczby neutrofili w obszarze zawału w 24. i 48. godzinie (n = 4 myszy). (E) Korelacja liczby neutrofili z wielkością zawału 24 i 48 h po podwiązaniu tętnicy mózgowiej środkowej. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
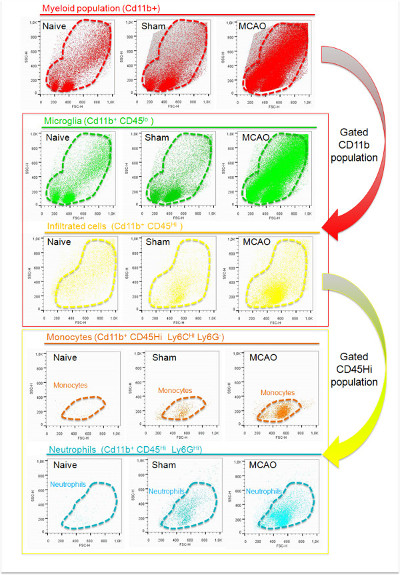
Rysunek 4: Reprezentatywna analiza rozrzutu (dot-plot) leukocytów mózgowych uzyskanych z półkul naiwnych, pozorowanych i niedokrwiennych (24 h po MCAO) na podstawie parametrów fizycznych (SSC i FSC). We wszystkich grupach zidentyfikowano populację zdarzeń wykazujących ekspresję CD11b (czerwony). Populacja ta została poddana bramkowaniu i scharakteryzowana zgodnie z ekspresją CD45. Komórki wykazujące niski poziom CD45 (zielony) występowały w niedokrwiennej i niedokrwiennej korze mózgu i odpowiadały komórkom mikrogleju. W przeciwieństwie do nich, komórki wykazujące wysoki poziom CD45 (żółty) znaleziono tylko w półkuli niedokrwiennej oraz w mniejszym stopniu w grupie pozorowanej. Dalsza analiza populacji CD11b+CD45hi wskazuje, że neutrofile (komórki Ly-6G+ , niebieski) oraz monocyty prozapalne (komórki Ly-6Chi , pomarańczowy) są głównymi subpopulacjami komórek występującymi w naciekach mózgowych 24 h po udarze.Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
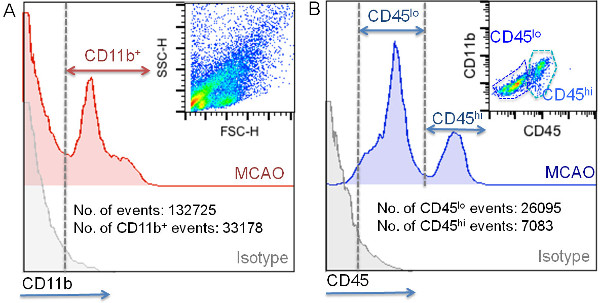
Rysunek 5: Strategie bramkowania w celu odróżnienia rezydentnych komórek mieloidalnych od tych zinfiltrowanych w tkance niedokrwiennej. Komórki CD11b+ zostały najpierw wyselekcjonowane zgodnie z intensywnością fluorescencji izotypu (A). Reprezentatywny wykres kropkowy zawiesin komórkowych z niedokrwiennego mózgu przedstawiono w prawym górnym rogu panelu. Dodatkowo pokazano typowe wartości dla całkowitej liczby zdarzeń oraz dla liczby zdarzeń CD11b+ uzyskanych za pomocą tej techniki (liczba komórek/półkula mózgu z niedokrwieniem; (A) Analiza intensywności fluorescencji CD45 dla komórek CD11b+ jest przedstawiona na panelu B. Reprezentatyczna analiza wykresu kropkowego ekspresji CD45 i CD11b dla wyselekcjonowanej subpopulacji CD11b+ znajduje się w prawym górnym rogu panelu. Dodatkowo przedstawiono typową liczbę komórek CD45lo oraz CD45hi uzyskanych na jedną półkulę mózgu z niedokrwieniem przy użyciu tej techniki (B).
| Parametry użyte w metodzie Cavalieriego | |
| Grubość przekroju (t) | 30 µm |
| Obiektyw | 10X |
| Ułamek próbkowania plastrów (ssf) | 1/20 |
| Odległość między przekrojami | 600 µm |
| Rozstaw siatki | 100 µm |
Tabela 1: Parametry wykorzystane do stereologicznej ilościowej oceny tkanki zawałowej.
| Wyniki | Strona przeciwległa do zmiany | Strona z zapadalem | Zawał |
| Powierzchnia (µm²) | 151,460,000 | 155,060,000 | 22,600,000 |
| Objętość (µm³) | 90,876,000,000 | 93,036,000,000 | 13,560,000,000 |
| Objętość skorygowana o nadprojekcję (µm³) | 89,957,100,000 | 92,046,300,000 | 13,416,600,000 |
| Współczynnik błędu (Gundersen), m=0 | 0.068 | 0.077 | 0.067 |
| Współczynnik błędu (Gundersen), m=1 | 0.015 | 0.017 | 0.015 |
| Współczynnik błędu (Gundersen), alpha(q) | 0.068 | 0.077 | 0.067 |
| % półkuli zawalonej | 14.90 | ||
| Obrzęk mózgu (Obj. Ips / Obj. Cont) | 1.02 | ||
Tabela 2: Reprezentatywne przykłady objętości przeciwstronnych, ipsilateralnych oraz objętości zawału wyznaczonych metodą Cavalieriego przy użyciu oprogramowania Stereo Investigator.
| Parametry stosowane w metodzie optycznego frakcjonatora | |
| Grubość przekroju (tsf) | 30 µm |
| Cel | 100X |
| frakcja próbkowania plastrów (ssf) | 1/10 |
| Wysokość ramki do liczenia | 40 µm |
| Szerokość ramki liczenia | 40 µm |
| Rozmiar siatki X | 230 µm |
| Rozmiar siatki X | 230 µm |
| Zabezpieczenie | 2 µm |
| Wysokość optycznego disektora | 14 µm |
Tabela 3: Parametry użyte do stereologicznego ilościowania naciekających neutrofili po niedokrwieniu mózgu z wykorzystaniem sondy optical fractionator w oprogramowaniu Stereo Investigator.
| Oszacowanie liczby neutrofili za pomocą optycznego frakcjonatora | |
| Liczba punktów poboru prób | 430 |
| Współczynnik kształtu | 6.24 |
| Całkowita liczba policzonych markerów | 166 |
| Szacowanie liczby neutrofili metodą Optical Fractionator | 117,608.03 |
| Współczynnik błędu (Gundersen), m=0 | 0.22 |
| Współczynnik błędu (Gundersen), m=1 | 0.09 |
Tabela 4: Reprezentatywny przykład szacowanej liczby zinfiltrowanych neutrofili po niedokrwieniu mózgu z wykorzystaniem sondy Optical Fractionator przy użyciu oprogramowania Stereo Investigator.
| Cd11b+ | Neutrofile | Monocyty | Mikrogliwia | |
| Naiwny | 25,863 ± 4,575.8 | 473 ± 75.8 | 525 ± 191.4 | 19,012 ± 1,523 |
| Operacja pozorowana 24 godz. | 24,563 ± 5,263 | 873 ± 192.5 | 1,124 ± 391.5 | 23,734 ± 2,910 |
| pMCAO 24 h | 47,922 ± 23,174 | 4,874 ± 748.7 | 4,826 ± 1,345 | 35,395 ± 10,833 |
Tabela 5: Reprezentatywne wyniki oszacowanej liczby komórek mieloidalnych po niedokrwieniu mózgu z zastosowaniem cytometrii przepływowej.
Dyskusja
Przedstawiony tutaj model niedokrwienia mózgu daje wysoce powtarzalne objętości zawału określone 24-48 godzin i 7 dni po podwiązaniu MCA różnymi podejściami8,15,17. Ten model MCAO ma niski wskaźnik śmiertelności (mniej niż 1%) w porównaniu z innymi, minimalizując liczbę zwierząt wykorzystywanych w badaniach. Kluczowym krokiem do uzyskania tak niskiego wskaźnika śmiertelności jest utrzymanie odpowiednich warunków aseptycznych, aby uniknąć infekcji, które mogłyby pogorszyć przeżycie po indukcji udaru. Ten model MCAO może być używany nie tylko jako stały model MCAO, który jest uważany za model klinicznie istotny dla badań translacyjnych18, ale także jako model przejściowy przez przejściowe podwiązanie CCA i MCA z węzłem ślizgowym i reperfuzją tylną w pożądanym czasie19. Metoda ta jest z powodzeniem stosowana u myszy i szczurów17,20. Wszystkie te dowody wskazują, że MCAO przez podwiązanie jest wysoce wszechstronnym modelem niedokrwienia mózgu o wielu zastosowaniach. Krytycznym etapem tej techniki jest to, że wymaga ona inwazyjnej operacji pod mikroskopem stereoskopowym; kraniotomia powinna być wykonana bardzo ostrożnie, aby nie uszkodzić kości jarzmowej, a także MCA. Jednak wykorzystanie zwierząt pozorowanych (które są poddawane zabiegowi chirurgicznemu, ale nie wykonuje się podwiązania CCA i MCA) stanowi użyteczne narzędzie do rozróżniania efektów zależnych od zabiegu chirurgicznego. Zakres uszkodzenia mózgu po zastosowaniu tej techniki można określić ilościowo za pomocą kilku metod. Nasz protokół sekcji mózgu, barwienia Nissl i późniejszego oszacowania objętości przez Cavalieri pozwala na dokładne ilościowe określenie uszkodzonego obszaru i minimalizuje liczbę myszy wykorzystywanych w tego typu badaniach, ponieważ seryjne sekcje mózgu mogą być również wykorzystywane do różnych analiz immunohistochemicznych. Aby uzyskać lepsze wyniki tej metodyki, kluczowe znaczenie ma wybór odpowiednich parametrów stosowanych w oprogramowaniu do stereologii (tabela 1), które będą niezbędne do oszacowania objętości różnych obszarów za pomocą wzoru: V = 1/ssf*af*t*ΣPi (Ssf jest frakcją próbkowania warstwy, t jest średnią grubością odcinków, af to obszar odstępu siatki, a ∑P to liczba punktów uderzających w strukturę).
Dystalne MCAO przez podwiązanie może być przydatne do scharakteryzowania naciekających subpopulacji leukocytów i komórek odpornościowych8,13 , które uczestniczą w procesie zapalnym po urazie mózgu1-4. W tym miejscu proponujemy dwie różne metodologie charakterystyki komórek odpornościowych mózgu, precyzyjne podejście stereologiczne i analizę cytometrii przepływowej w celu lepszego scharakteryzowania subpopulacji wielu leukocytów.
Korzystając z seryjnego podziału mózgu, ilościowe określenie całkowitej liczby neutrofili można osiągnąć za pomocą metody frakcjonowania optycznego16, która szacuje całkowitą liczbę komórek na podstawie liczby komórek pobranych za pomocą systematycznego zestawu losowo próbkowanych (SRS) bezstronnych wirtualnych przestrzeni zliczających obejmujących cały obszar zainteresowania, w naszym przypadku obszar zawału, z jednakową odległością między bezstronnymi wirtualnymi przestrzeniami zliczającymi w kierunkach X, Y i Z. Metoda ta zapewnia dokładne narzędzie do oszacowania całkowitej liczby neutrofili w niedokrwionym mózgu w różnych momentach po podwiązaniu. Chociaż nie wykazano tego w tym badaniu, protokół ten może być również stosowany do szacowania różnych subpopulacji neutrofili po niedokrwieniu21 oraz do dokładnej kwantyfikacji dowolnej innej populacji komórek znajdujących się w niedokrwionym mózgu, takich jak inne naciekane leukocyty (monocyty / makrofagi), a także do szacowania neuronów, które przeżyły, a nawet do kwantyfikacji neurogenezy po udarze. Najważniejszym krokiem do dokładnego oszacowania w pożądanym obszarze jest wybór odpowiednich parametrów, takich jak te przedstawione w Tabeli 3 dla kwantyfikacji neutrofili w obszarze niedokrwiennym. Parametry te zostaną wykorzystane w oprogramowaniu stereologicznym do obliczenia całkowitej dodatniej liczby komórek (N) przy użyciu równania N = ΣQ- x 1/ssf x 1/asf x 1/tsf (ΣQ- to całkowita liczba komórek zliczonych za pomocą frakcjonatora, ssf to frakcja próbkowania sekcji, asf to powierzchnia frakcji próbkowania, a tsf to grubość frakcji próbkowania)5. Chociaż metodologia ta jest wolniejsza niż inne techniki kwantyfikacji (na przykład analiza markerów neutrofili w mg tkanki, densytometria reprezentatywnych obrazów lub liczba neutrofili w polu), ma tę zaletę, że jest bezstronną i solidną techniką, która zapewnia precyzyjną kwantyfikację liczby komórek.
Metoda izolacji leukocytów w mózgu pozwala na jednoczesną identyfikację i kwantyfikację kilku podtypów komórek odpornościowych bez konieczności wypaczania systemu poprzez barwienie in vivo lub manipulacje genetyczne. Późniejsze sortowanie komórek ze scharakteryzowanych populacji szpiku lub ich separacja immunomagnetyczna może być wykorzystana do wielu dalszych zastosowań, takich jak dalsze badania nad ekspresją genów lub białek. Dokładna charakterystyka neutrofili, monocytów i mikrogleju uzyskana tą metodą zapewnia wysoką specyficzność w odniesieniu do istniejących metod, takich jak badania immunohistochemiczne, co pozwala przypisać określone funkcje różnym komórkom szpikowym, które pośredniczą w wrodzonej odpowiedzi immunologicznej mózgu. Ponadto można go dalej rozszerzyć, aby scharakteryzować inne populacje mózgu z odpowiednią etykietą, takie jak makrofagi urodzone we krwi (CD11b + CD45hiCD68 +), i może być stosowany do badania innych patologii lub urazów OUN. Dlatego technika ta stanowi niezbędne narzędzie do badania niejednorodności reakcji zapalnej w mózgu. Głównym ograniczeniem tej techniki jest przygotowanie zawiesin leukocytów ze świeżej tkanki mózgowej, które mogą zmienić stan aktywacji komórek lub ich zmianę antygenu. Chociaż technika ta pozwala na bardziej szczegółową charakterystykę jakościową w porównaniu z badaniami immunohistochemicznymi, zapewnia mniej dokładną kwantyfikację opartą na izolacji komórek. Mimo to skuteczność naszego protokołu izolacji komórek jest podobna do innych opublikowanych metodologii9 i może być skutecznie wykorzystana do wykrywania różnic w liczbie komórek odpornościowych mózgu między grupą kontrolną a grupą MCAO, a nawet między grupami MCAO poddanymi różnym zabiegom8.
Krytycznymi etapami tego protokołu są rozwarstwienie tkanki, procedura rozerwania tkanki i usunięcie mieliny. Jeśli chodzi o pobieranie tkanek, można uwzględnić etap normalizacji (poprzez zważenie pobranej tkanki), aby uniknąć zmienności spowodowanej różnymi wydajnościami sekcji. Ponadto normalizacja między różnymi grupami MCAO może również wystąpić poprzez objętość zawału (wcześniej określaną przez rezonans magnetyczny). Innym sposobem rozwiązania tego problemu jest użycie całej półkuli ipsilateralnej zarówno grupy niedokrwiennej, jak i kontrolnej, a nawet użycie przeciwległej półkuli myszy niedokrwionej jako kontroli, aby zminimalizować liczbę wykorzystywanych zwierząt. Chociaż takie podejście pozwala uniknąć różnic między każdą sekcją, ma główną wadę; Współczynnik rozcieńczenia dodaje się poprzez zwiększenie całkowitej liczby komórek, ale nie liczby komórek szpikowych, które znajdują się wyłącznie w obszarach rdzenia i okołozawałowych kory ipsilateralnej. Jeśli chodzi o rozerwanie tkanek, protokół ten ilustruje etapy mechanicznego rozerwania komórek mózgowych, unikając zabiegów enzymatycznych i zapobiegając powierzchniowej zmianie antygenu9,22, co jest istotną kwestią dla dalszej analizy jakościowej i ilościowej subpopulacji komórek zapalnych. Oprócz przygotowania zawiesiny komórkowej, która jest przedmiotem zainteresowania, usunięcie mieliny z próbek mózgu jest wysoce zalecanym krokiem w celu uniknięcia zakłóceń w dalszych zastosowaniach, takich jak immunomagnetyczna separacja komórek lub cytometria przepływowa23,24. Można to osiągnąć za pomocą różnych metod, takich jak gradienty sacharozy lub Percollu lub kulki antymielinowe. Tutaj, a także w oparciu o wcześniejsze badania, które porównują różne metody izolacji zawiesiny komórek mózgowych, zakłócenia mechaniczne w połączeniu z użyciem Percollu do usuwania mieliny są stosowane w celu poprawy wydajnościi żywotności komórek.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez dotacje z hiszpańskiego Ministerstwa Gospodarki i Konkurencyjności CSD2010-00045 (MAM), SAF2012-33216 (MAM), SAF2011-23354 (IL) i RENEVAS RD06/0026/0005 (IL), oraz od Samorządu Lokalnego Madrytu S2010/BMD-2336 (MAM) i S2010/BMD-2349 (IL). IB i MIC są stypendystami hiszpańskiego Ministerstwa Gospodarki i Konkurencyjności.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Photonic Led F1 | WPI | 571329-8 | Regulator |
| temperatury sprzętu | Panlab | HB 101/2 | Sprzęt |
| Volvere GX | NSK | Ne22L | Sprzęt |
| Mikroskop | WPI | PZMIII-BS | Sprzęt |
| Frezy ze stali nierdzewnej | FST | 19007-14 | Kleszcze do materiałów chirurgicznych |
| Dumont #5/45 | FST | 11251-35 | Materiał chirurgiczny |
| Kleszcze Dumont #5SF | FST | 11252-30 | Materiał chirurgiczny |
| Szew 6/0 | LorcaMarin | 55108 | Materiał chirurgiczny |
| Szew 9/0 | LorcaMarin | 61966 | Materiał chirurgiczny |
| Nikon Eclipse | Nikon | TE300 | Sprzęt |
| Isoflurane | Esteve | 571329-8 | Chemiczny |
| Pentobarbital sodu | Wetochinol | 570681 | Chemiczny |
| mikrotom | zamrażania Leica Microsystems GmbH | SM2000R | Sprzęt |
| Prowadnice Superfrost | Thermo Scientific | 2014-07 | Materiał laboratoryjny |
| Octan fioletu kresylowego | Sigma | C5042 | Mikroskop chemiczny |
| nbsp; | Nikon | Nikon Eclipse TE300 | Sprzęt |
| XYZ zmotoryzowany stolik komputerowy i kontroler | Ludl electronics Produkty | Sprzęt | |
| Stereo Investigator System | Microbrightfield | Wersja oprogramowania 7.003 | |
| Oprogramowanie 5 ml Młynek do tkanek, Potter-Elv z tłuczkiem teflonowym | Thomas Scientific | 0913X70 | Materiał laboratoryjny |
| Polipropylen 50 ml Dąb Ridge Probówka wirówkowa | Nalgene | 3119-0050 | Materiał laboratoryjny |
| Percoll | Sigma | p1644-100 | Chemiczny |
| RPMI 1640 | Lonza | BE12-702F | Chemiczny |
| Ultrawirówka Beckman Wyposażenie | redlic | ||
| Wirnik ultrawirówki Beckman Coulter 45 Ti | Wyposażenie redlic | ||
| Sterylne sitko komórkowe, 40 mikronów | BD | BD 352340 | Materiał laboratoryjny |
| Albumina surowicy bydlęcej | Sigma | A3733-500G | Reagment |
| FcR Odczynnik blokujący, mysz | Miltenyi | 130-092-575 | Przeciwciało |
| CD11b-FITC, ludzkie i mysie | Miltenyi | 130-098-085 | Przeciwciało |
| CD45-PE, mysz | Miltenyi | 130-102-596 | Przeciwciało |
| Anti-Ly-6G-APC, mysz | Przeciwciało Miltenyi | 130-102-936 | |
| Przeciwciało przeciw myszom Ly-6C Biolegend 128012 PerCP/Cy5.5 | |||
| BD FACS Flow | BD | 342003 | Reagment |
| BD FACSCalibur; 4-kolorowe | 342975 | oprogramowanie BD | |
| Cell Quest Pro Oprogramowanie | BD | ||
| FlowJo | Treestar inc. | oprogramowanie |
Bibliografia
- Chamorro, A., et al. The immunology of acute stroke. Nature Reviews. Neurology. 8, 401-410 (2012).
- Iadecola, C., Anrather, J. The immunology of stroke: from mechanisms to translation. Nat Med. 17, 796-808 (2011).
- Ramlackhansingh, A. F., et al. Inflammation after trauma: microglial activation and traumatic brain injury. Annals of Neurology. 70, 374-383 (2011).
- Jin, R., Yang, G., Li, G. Inflammatory mechanisms in ischemic stroke: role of inflammatory cells. J Leukoc Biol. 87, 779-789 (2010).
- West, M. J., Slomianka, L., Gundersen, H. J. Unbiased stereological estimation of the total number of neurons in thesubdivisions of the rat hippocampus using the optical fractionator. The Anatomical Record. 231, 482-497 (1991).
- Charleston, J. S. Estimating cell number in the central nervous system by stereological methods: the optical disector and fractionator. Current Protocols in Toxicology. 12 (Unit 12.6), (2001).
- Begega, A., et al. Unbiased estimation of the total number of nervous cells and volume of medial mammillary nucleus in humans. Experimental Gerontology. 34, 771-782 (1999).
- Cuartero, M. I., et al. N2 Neutrophils, Novel Players in Brain Inflammation After Stroke: Modulation by the PPARgamma Agonist Rosiglitazone. Stroke; a. Journal of Cerebral Circulation. 44 (12), 3498-3508 (2013).
- Campanella, M., Sciorati, C., Tarozzo, G., Beltramo, M. Flow cytometric analysis of inflammatory cells in ischemic rat brain. Stroke. 33, 586-592 (2002).
- Carson, M. J., Reilly, C. R., Sutcliffe, J. G., Lo, D. Mature microglia resemble immature antigen-presenting cells. Glia. 22, 72-85 (1998).
- Perego, C., Fumagalli, S., De Simoni, M. G. Temporal pattern of expression and colocalization of microglia/macrophage phenotype markers following brain ischemic injury in mice. J Neuroinflammation. 8, 174(2011).
- Denker, S. P., et al. Macrophages are comprised of resident brain microglia not infiltrating peripheral monocytes acutely after neonatal stroke. Journal of Neurochemistry. 100, 893-904 (2007).
- Ballesteros, I., et al. Rosiglitazone-induced CD36 up-regulation resolves inflammation by PPARgamma and 5-LO-dependent pathways. Journal of Leukocyte Biology. 95 (4), 587-598 (2013).
- Michel, R. P., Cruz-Orive, L. M. Application of the Cavalieri principle and vertical sections method to lung: estimation of volume and pleural surface area. J Microsc. 150, 117-136 (1988).
- Hernández-Jiménez, M., et al. Silent Information Regulator 1 Protects the Brain Against Cerebral Ischemic Damage. Stroke. 44 (8), 2333-2337 (2013).
- Gundersen, H. J., et al. The new stereological tools: disector, fractionator, nucleator and point sampled intercepts and their use in pathological research and diagnosis. APMIS. 96, 857-881 (1988).
- Godino, M. E. C., et al. Amelioration of ischemic brain damage by peritoneal dialysis. J Clin Invest. 123, 4359-4363 (2013).
- Hossmann, K. A. The two pathophysiologies of focal brain ischemia: implications for translational stroke research. J Cereb Blood Flow Metab. 32, 1310-1316 (2012).
- García-Yébenes, I., et al. Iron overload, measured as serum ferritin, increases brain damage induced by focal ischemia and early reperfusion. Neurochem Int. 61, 1364-1369 (2012).
- Sobrado, M., et al. Synthesis of lipoxin A4 by 5-lipoxygenase mediates PPARgamma-dependent, neuroprotective effects of rosiglitazone in experimental stroke. J Neurosci. 29, 3875-3884 (2009).
- Cuartero, M. I., et al. N2 Neutrophils, Novel Players in Brain Inflammation After Stroke: Modulation by the PPARγ Agonist Rosiglitazone. Stroke. 44, 3498-3508 (2013).
- Ford, A. L., Foulcher, E., Goodsall, A. L., Sedgwick, J. D. Tissue digestion with dispase substantially reduces lymphocyte and macrophage cell-surface antigen expression. Journal of Immunological Methods. 194, 71-75 (1996).
- Pfenninger, C. V., et al. CD133 is not present on neurogenic astrocytes in the adult subventricular zone, but on embryonic neural stem cells, ependymal cells, and glioblastoma cells. Cancer Research. 67, 5727-5736 (2007).
- Tham, C. S., Lin, F. F., Rao, T. S., Yu, N., Webb, M. Microglial activation state and lysophospholipid acid receptor expression. International Journal of Developmental Neuroscience : the Official Journal of the International Society for Developmental Neuroscience. 21, 431-443 (2003).
- Nikodemova, M., Watters, J. J. Efficient isolation of live microglia with preserved phenotypes from adult mouse brain. Journal of Neuroinflammation. 9, 147(2012).
Przedruki i uprawnienia
