RNA (RNAi) są podstawą badań nad Tribolium. W tym miejscu przedstawiamy przegląd naszej techniki RNAi larwalnych w Tribolium castaneum. Larwalne RNAi to prosta, ale potężna technika, która zapewnia szybki dostęp do fenotypów utraty funkcji, umożliwiając naukowcom badanie funkcji genów w różnych kontekstach.
Artykuł metodologiczny
Interferencja larwalnego RNA u chrząszcza mącznego (Tribolium castaneum)
* These authors contributed equally
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Czerwony chrząszcz mączny, Tribolium castaneum, oferuje repertuar narzędzi eksperymentalnych do badań genetycznych i rozwojowych, w tym w pełni opisaną sekwencję genomu, transgenezę opartą na transpozonach i efektywną interferencję RNA (RNAi). Wśród tych zalet, techniki knockdownu genów oparte na RNAi są podstawą badań nad tribolium. T. castaneum wykazuje silną ogólnoustrojową odpowiedź RNAi, co umożliwia wykonywanie RNAi na każdym etapie życia, po prostu wstrzykując dwuniciowy RNA (dsRNA) do jamy ciała chrząszcza.
W tym raporcie przedstawiamy przegląd naszej techniki RNAi larwalnych u T. castaneum. Protokół obejmuje (i) izolację właściwego stadium larw T. castaneum do iniekcji, (ii) przygotowanie do iniekcji oraz (iii) wstrzyknięcie dsRNA. Larwalne RNAi to prosta, ale potężna technika, która zapewnia nam szybki dostęp do fenotypów utraty funkcji, w tym fenotypów z wieloma genami, a także szeregu fenotypów hipomorficznych. Ponieważ praktycznie wszystkie tkanki T. castaneum są podatne na zewnątrzkomórkowe dsRNA, technika larwalnego RNAi pozwala naukowcom badać szeroką gamę tkanek w różnych kontekstach, w tym genetyczne podstawy reakcji organizmu na środowisko zewnętrzne. Ponadto prostota tej techniki stymuluje większe zaangażowanie uczniów w badania, co sprawia, że T. castaneum jest idealnym systemem genetycznym do użytku w klasie.
Wprowadzenie
Czerwony chrząszcz mączny, Tribolium castaneum, zyskuje popularność w różnych dziedzinach biologii, częściowo ze względu na łatwość przeprowadzania interferencji RNA (RNAi)1-3. Techniki knockdownu genów oparte na RNAi umożliwiają naukowcom przeprowadzanie analiz utraty funkcji bez stosowania skomplikowanych metod genetycznych. T. castaneum wykazuje silną odpowiedź układową RNAi, co umożliwia wykonanie RNAi na dowolnym etapie poprzez proste wstrzyknięcie dwuniciowego RNA (dsRNA) do jamy ciała chrząszcza4-6. Jednoczesny knockdown wielu genów jest również możliwy w T. castaneum poprzez wstrzyknięcie dwóch lub więcej różnych cząsteczek dsRNA w tym samym czasie7,8. Ponadto można wygenerować szereg hipomorficznych fenotypów poprzez zmniejszenie stężenia wstrzykniętego dsRNA8. Cechy te sprawiają, że techniki odwróconej genetyki oparte na RNAi są atrakcyjną alternatywą dla tradycyjnej genetyki forward u T. castaneum. Ponieważ praktycznie wszystkie tkanki T. castaneum są podatne na zewnątrzkomórkowe cząsteczki dsRNA9, technika ta pozwala naukowcom badać szeroką gamę tkanek w różnych kontekstach. Ponadto, chociaż niniejszy raport koncentruje się na wykonywaniu RNAi w T. castaneum, wiele opisanych tutaj procedur ma zastosowanie do innych owadów. Dlatego protokół ten jest przydatny dla tych, którzy chcą przeprowadzić analizy utraty funkcji w kontekście zainteresowania T. castaneum, a także dla badaczy chcących zastosować technikę opartą na RNAi do innych owadów.
Wstrzykiwanie dsRNA do larw umożliwia analizę funkcjonalną na różnych etapach życia chrząszczy, w tym w stadium larwalnym, poczwarkowym i dorosłym4,5,10. Wcześniej opisywaliśmy nasz ogólny protokół RNAi larw, w tym procedury biologii molekularnej11. W niniejszym raporcie skupiamy się na opisie procedur wstrzykiwania dsRNA, które najlepiej wyjaśnić za pomocą pomocy wizualnych. Zapewniamy szczegółowe procedury iniekcji krok po kroku, a także przykłady dobrych i złych iniekcji. Ten wizualny protokół uzupełnia nasz poprzedni protokół, a w połączeniu zapewniają bardziej wszechstronny obraz procedur RNAi larw u T. castaneum. Ponadto omawiamy parametry cząsteczek dsRNA, które mogą wpływać na powodzenie RNAi, zastosowanie testów opartych na RNAi do badań fizjologicznych, a także możliwość zastosowania protokołu RNAi larw w laboratorium dydaktycznym.
Protokół
1. T. castaneum Stada i hodowla
- Zdecyduj się na szczep T. castaneum do wykorzystania w eksperymencie.
UWAGA: Dostępnych jest kilka laboratoryjnych szczepów T. castaneum. Ga-1 (Georgia-1) to szczep rodzicielski Ga-2, który był używany do sekwencjonowania genomu3. Ponieważ Ga-1 ma większość polimorfizmów DNA (takich jak polimorfizmy pojedynczego nukleotydu, SNP) z Ga-2 i jest zdrowszy niż Ga-2 ze względu na mniejszy chów wsobny, jest idealny do eksperymentów RNAi. pu-11 to kolejny wygodny w użyciu szczep, ponieważ jego unikalna ekspresja wzmocnionego białka żółtej fluorescencji (EYFP) w przyszłych zawiązkach skrzydeł pozwala nam odróżnić ostatnie stadium larwalne od innych stadium rozwojowego (patrz rysunek S4 Clark-Hachtel i in. 201312). Ważne jest, aby udokumentować, który szczep chrząszcza został użyty w eksperymencie, ponieważ tła genetyczne wydają się znacząco wpływać na fenotypy RNAi13. - Przygotować mąkę z kultur T. castaneum, dodając 5% (wagowo) wstępnie przesianych drożdży piwnych do ekologicznej mąki pełnoziarnistej (po wymieszaniu mąkę hodowlaną przechowywać w temperaturze -20 °C). Mąkę hodowlaną (w temperaturze pokojowej) rozmieścić w plastikowych butelkach bulionowych Drosophila o pojemności 6 uncji (około 40 g / butelkę).
- Kultura T. castaneum w temperaturze 30 °C przy wilgotności 70%. Jeśli to możliwe, użyj inkubatora o kontrolowanej wilgotności. Dodaj 30-40 dorosłych osób na butelkę kultury (stosunek mężczyzn do kobiet 1:1), aby rozpocząć hodowlę.
UWAGA: Chociaż pleśń rzadko stanowi problem w temperaturze 30 °C, niższe temperatury (takie jak 25 °C) przy wilgotności 70% mogą powodować rozwój pleśni w mące hodowlanej. W takim przypadku zmniejsz wilgotność. - Przenieś dorosłe osobniki do nowej butelki hodowlanej co dwa tygodnie w celu subkulturu (patrz krok 5.2-5.5, aby dowiedzieć się, jak odizolować dorosłe osobniki od mąki hodowlanej).
UWAGA: Uzyskanie ostatnich larw w stadium rozwojowym zajmuje około trzech tygodni. Alternatywnie, kultury T. castaneum mogą być przechowywane w niższej temperaturze (20–25 °C), aczkolwiek z dłuższym okresem hodowli (czas rozwoju w temperaturze 25 °C jest w przybliżeniu dwukrotnie dłuższy niż w temperaturze 30 °C).
2. Przygotowanie roztworów i narzędzi do wstrzykiwania dsRNA larw
- Synteza cząsteczek dsRNA homologicznych do genu docelowego za pomocą transkrypcji in vitro. Przechowywać w temperaturze -80 °C. Zobacz Philip i Tomoyasu 201111, aby zapoznać się ze szczegółowymi procedurami biologii molekularnej. Zapoznaj się również z dyskusją na temat szeregu parametrów, które należy wziąć pod uwagę podczas projektowania cząsteczek dsRNA.
- Uzupełnić 10 ml 0,1 M buforu fosforanu sodu (pH 7,6 w 25 °C), mieszając 8,5 ml 1 M Na2HPO4 z 1,5 ml 1 M NaH2PO4. Sprawdź pH za pomocą pH-metru i odpowiednio dostosuj.
- Przygotować 1 ml 10-krotnego buforu do wstrzykiwań, mieszając 10 μl 0,1 M buforu fosforanowo-sodowego (pH 7,6 w 25 °C), 100 μl 0,5 M KCl, 100 μl zielonego barwnika spożywczego i 790 μl podwójnie destylowanej wody (ddH2O). Rozcieńczyć 10x bufor do wstrzykiwań, aby uzyskać 2x bufor do wstrzykiwań (200 μl 10x bufor do wstrzykiwań + 800 μl ddH2O). Przechowywać zarówno 10x, jak i 2x do wstrzykiwań w temperaturze 4 °C, aż będą potrzebne.
- Przygotuj lepkie szkiełka podstawowe.
- Przykryj całe szkiełko klejem do wstrzykiwań larwalnych, który można zmieniać. W przypadku wstrzyknięć dla dorosłych lub poczwarek należy wykonać dwa cienkie paski kleju wzdłuż dłuższych krawędzi szkiełka.
- Pozostaw klej do wyschnięcia na kilka dni, co zapewni, że klej pozostanie wystarczająco lepki, aby przylgnąć chrząszcze do szkiełka, a jednocześnie pozostanie wystarczająco giętki, aby ułatwić ich usunięcie po wstrzyknięciu.
UWAGA: Jeśli klej pozostaje zbyt lepki, użyj palca i postukaj w klej, co zmniejszy lepkość. Każda zjeżdżalnia może pomieścić do 40 lub 50 chrząszczy i może być ponownie użyta, dopóki nie zdoła bezpiecznie utrzymać zwierząt. Alternatywnie można również użyć taśmy dwustronnej, chociaż taśma czasami nie jest wystarczająco przyczepna, aby utrzymać larwy.
- Zrób kosz eteryczny.
- Wyjąć tłok z jednorazowej strzykawki o pojemności 10 ml i przeciąć strzykawkę na pół wokół linii 6 ml.
- Wyrzucić dolną połowę strzykawki. Krótko podgrzej przeciętą powierzchnię górnej części strzykawki palnikiem gazowym i szybko wepchnij stopiony plastik na kawałek nylonowej siatki, aby przykleić siatkę do strzykawki. Odetnij nadmiar siatki, gdy plastik stwardnieje.
- Przygotuj butelkę z eterem. Dodać 30 ml eteru do szklanej butelki o pojemności 100 lub 250 ml z wąskim otworem. Dodaj kilka kawałków bibuły, aby zwiększyć parowanie eteru.
UWAGA: Eter stanowi zagrożenie pożarowe, a także jest szkodliwy. Zawsze należy obchodzić się z eterem pod wyciągiem. Zamknij szczelnie pokrywę, gdy nie jest używana.
UWAGA: Lód może być stosowany jako bezpieczniejsza alternatywa (np. w klasie), chociaż sedacja jest mniej skuteczna.
3. Przygotowanie aparatu do wstrzykiwania larw
- Umieść stolik mechaniczny X-Y na mikroskopie preparacyjnym.
UWAGA: Stoliki mechaniczne XY są dostępne w głównych firmach produkujących mikroskopy. Alternatywnie, niedrogie stoliki mikroskopowe mogą być również używane do większości mikroskopów preparacyjnych z pewnymi modyfikacjami (patrz na przykład tabela materiałów). - Umieść mechaniczny manipulator igłowy w pobliżu XY mechanicznego stage.
- Zmontować strzykawkę do wstrzykiwań. Za pomocą czterokierunkowego zaworu odcinającego (ze złączami Luer) podłączyć jednorazową strzykawkę o pojemności 30 ml do szklanego uchwytu na igłę, co umożliwia manipulowanie strzykawką do wstrzykiwań bez wpływu na ciśnienie w igle do wstrzykiwań (szczegółowe informacje na temat montażu strzykawki iniekcyjnej znajdują się w Philip i Tomoyasu 201111).
4. Ciągnięcie igieł iniekcyjnych
- Igły ze szkła borokrzemianowego (B100-50-15, średnica zewnętrzna: 1 mm, średnica wewnętrzna: 0,5 mm, długość 15 cm) należy ciągnąć za pomocą ściągacza igłowego.
UWAGA: W przypadku Sutter P-87 lub P-97 użyj ustawienia "Ciepło = 770, Ciągnięcie = 45, Vel = 75, Czas = 90" lub postępuj zgodnie z rozdziałem 2 książki kucharskiej pipet: Adherent Cell, C. elegans, Drosophila i Danio pręgowany – zalecane programy. Optymalne ustawienia różnią się w zależności od modelu ściągacza igłowego. Ustawienie generycznej igły do wstrzykiwań Drosophila jest dobrym punktem wyjścia. - Wyciągnięte igły przechowuj w plastikowym etui (np. plastikowym pudełku na płyty CD) i zabezpiecz wyjmowaną szpachlą montażową.
5. Izolacja i selekcja larw
- Umieść sito #25 na odbiorniku sita.
- Umieść zawartość butelki z kulturą (chrząszcze i mąkę hodowlaną) na sicie i natychmiast przesiej zawartość. Nie zostawiaj zawartości na sicie bez przesiania, ponieważ larwy szybko spróbują przekopać się przez sito i utknąć. Agresywnie przesiej zawartość, aby mąka przesypała się i pozostaw starsze larwy (zwykle larwy 6 i 7 stadium), poczwarki i dorosłe osobniki (wraz z ich odrzuconymi skórkami, wysiękami) na wierzchu sita.
- Przenieś materiały pozostałe na sicie (chrząszcze i wysięki) do miski nasiennej. Kontynuuj stukanie w patelnię, aby zapobiec ucieczce chrząszczy.
- Usuń wysięk i cząstki mąki pozostające na powierzchni chrząszczy, delikatnie na miskę nasienną.
- Postukaj w miskę nasienną, aby przesunąć zawartość na dno patelni. Następnie pozostaw patelnię nienaruszoną na kilka sekund. Poczekaj, aż dorosłe osobniki, które są bardziej ruchliwe niż inne etapy, wyjdą ze stosu. Usuń dorosłe osobniki za pomocą pędzla artystycznego (np. o szerokości 1 cm).
- Oddziel poczwarki, delikatnie uderzając w miskę nasienną, trzymając usta patelni lekko w dół, ponieważ poczwarki mają tendencję do szybszego toczenia się w kierunku ust. Użyj pędzla, aby usunąć poczwarki, pozostawiając tylko larwy na misce nasiennej.
- Umieść izolowane larwy na czystej szalce Petriego. Wybrać odpowiednie stadium larw do wstrzyknięcia i umieścić je na osobnej szalce Petriego.
UWAGA: Larwy we wczesnym stadium rozwoju (1-2 dni po ostatnim linieniu larwalnym) są często odpowiednie do analizy wpływu RNAi na morfologie dorosłych, a także na metamorfozę. Czasami jednak konieczne jest wykonanie RNAi w przedostatnim (lub nawet wcześniejszym) etapie, aby ocenić wczesną funkcję genu (np. Ryc. 3E-3H. Zobacz także Clark-Hachtel i in., 2013,12). Użyj poczwarek jako odniesienia do wielkości, aby zidentyfikować stadium larw. Larwy ostatniego stadium rozwojowego są nieco dłuższe niż poczwarki. Alternatywnie, pu-11 może być użyty do identyfikacji ostatnich larw w stadium rozwojowym, a także do określenia przebiegu w czasie rozwoju larw ostatniego stadium rozwojowego (ryc. S4 Clark-Hachtel i in. 201312). - Trzymaj wybrane larwy na szalce Petriego do czasu eteryzacji. Resztę larw i inne stadia chrząszczy (takie jak poczwarki i osobniki dorosłe) umieść z powrotem w butelce hodowlanej z mąką i włóż ją z powrotem do inkubatora.
6. Przygotowanie igieł iniekcyjnych
- Umieść wcześniej wyciągniętą szklaną igłę na szklanym szkiełku mikroskopowym za pomocą kleju lub taśmy dwustronnej. Za pomocą kleszczy przetestuj naciągnięty koniec igły, patrząc przez mikroskop preparacyjny, aby zobaczyć, gdzie wygina się końcówka. Chwyć obszar lekko w kierunku strony końcówki, w której igła zgina się kleszczykami, i przekręć, aby złamać.
- Zachowaj dobre igły i wyrzuć inne. Rozważ, że dobra igła ma otwór, który nie jest ani za duży, ani za mały (około 0,05 mm średnicy. Ryc. 1A i 1B) i jest ustawiony pod kątem, aby ułatwić penetrację naskórka larwy (ryc. 1B i 2A-2B). Uznaj, że zła igła jest (i) zbyt mała, co utrudnia wchłanianie roztworu dsRNA do igły (krok 7) (ryc. 1D i 2D), (ii) zbyt duża, powodująca uszkodzenie larw i możliwą śmiertelność po wstrzyknięciu (ryc. 1C i 2F), (iii), co utrudnia penetrację naskórka i zwiększa obrażenia.
- Włożyć igłę do uchwytu igły.
- Najpierw odkręć końcówkę uchwytu igły i umieść tylny koniec igły w końcówce uchwytu. Następnie umieść gumową uszczelkę pod końcówką uchwytu (co najmniej 1 cm od tylnego końca szklanej igły).
- Włóż tylną część igły do uchwytu, z gumową uszczelką całkowicie włożoną w otwór uchwytu igły. Przykręć końcówkę z powrotem do uchwytu.
- Umieścić zmontowany uchwyt igły na manipulatorze igły. Trzymać uchwyt igły blisko pozycji poziomej. Dostosuj położenie manipulatora tak, aby końcówka igły znajdowała się w środku view podczas patrzenia przez mikroskop.
7. Wstępne ładowanie roztworu dsRNA do igły
- Przygotować roztwór do wstrzykiwań dsRNA tuż przed wstrzyknięciem, dostosowując stężenie za pomocąddH2Oi mieszając roztwór dsRNA z równymi objętościami 2x buforu do wstrzykiwań (krok 2.3). Mieszany roztwór należy przechowywać na lodzie. Zobacz dyskusję dotyczącą stężenia dsRNA.
- Odetnij końcówkę jednorazowej końcówki do pipety o pojemności 20 μl. Odmierzyć pipetą 10 μl roztworu do przyciętej końcówki pipety. Ostrożnie wyjmij końcówkę pipety z pipety, trzymając płyn na końcówce, zapewniając przeciwciśnienie. Alternatywnie, ostrożnie wyjmij końcówkę, a następnie przenieś roztwór na koniec końcówki, wywierając nacisk palcem.
- Umieścić końcówkę pipety z roztworem dsRNA na stoliku mikroskopu, używając lepkiego przyklejenia tak, aby otwór był skierowany w stronę końcówki igły.
- Patrząc przez mikroskop, powoli przesuwaj obciążoną końcówkę w kierunku igły, aż końcówka igły znajdzie się tuż wewnątrz załadowanej końcówki pipety i znajdzie się w roztworze.
- Patrząc przez mikroskop, delikatnie pociągnąć do tyłu tłok strzykawki do wstrzykiwań, aby powoli wciągnąć roztwór dsRNA do igły.
UWAGA: Nie przeciążać igły. Gdy koniec roztworu dsRNA zbliża się do końcówki igły, zwolnij tempo ciągnięcia i przestań ładować roztwór, zanim końcówka igły dotrze do powietrza. Jeśli powietrze dotrze do końcówki, roztwór zostanie szybko wciągnięty do uchwytu igły, co spowoduje poważne problemy z zanieczyszczeniem. Szczegółowe procedury czyszczenia uchwytu igły są opisane w Philip i Tomoyasu 2011:11. - Usunąć ciśnienie ze strzykawki do wstrzykiwań i uchwytu igły, otwierając zawór odcinający. Następnie odsunąć końcówkę pipety od końcówki igły. Podnieś igłę ze sceny, aby zapobiec przypadkowemu uszkodzeniu igły podczas umieszczania larw na scenie. Wyjmij opróżnioną końcówkę pipety ze stolika.
8. Wstrzyknięcie dsRNA
- Umieść larwy w koszu do eteryzacji. Użyj mniej niż 10 larw, jeśli uczysz się tej techniki. Użyj 30-40 larw w jednej rundzie, gdy poczujesz się komfortowo z techniką.
- Umieść kosz z larwami w butelce z eterem i zamknij pokrywkę.
UWAGA: Eter stanowi zagrożenie pożarowe, a także jest szkodliwy. Wykonaj ten krok pod wyciągiem. - Eteryzuj larwy przez około 3 minuty. Po 3 minutach sprawdź, czy larwy się poruszają. Umieść je z powrotem w butelce z eterem na kolejne 30 sekund, jeśli nadal się poruszają. Nie eteryzuj dłużej niż 5 minut, ponieważ może to zwiększyć śmiertelność.
UWAGA: Optymalny czas eteryzacji może się różnić w zależności od temperatury i wilgotności. - Przenieś eteryzowane larwy z kosza na nieprzywierającą krawędź szklanego lepkiego szkiełka. Za pomocą kleszczy i patrząc przez mikroskop, podnieś każdą larwę jedna po drugiej i umieść je na szkiełku. Połóż je na boku i delikatnie postukaj kleszczami w ich ciała od głowy do ogona, lekko je rozciągając, aby upewnić się, że są przymocowane do zjeżdżalni.
- Umieść lepkie szkiełko z larwami na stoliku mikroskopu.
- Delikatnie włóż igłę załadowaną dsRNA w grzbietową stronę larw, aby uniknąć uszkodzenia OUN. Unikaj również grzbietowej linii środkowej, ponieważ znajduje się tu serce larwy. W tym i kolejnych krokach zawsze używaj stolika, aby przesunąć larwy do igły (zamiast używać manipulatora igieł do przesuwania igły).
UWAGA: Konkretne miejsce wstrzyknięcia nie ma znaczenia, ponieważ RNAi w T. castaneum wydaje się być ogólnoustrojowe. Jednak zwykle najłatwiej jest wstrzyknąć w grzbietową stronę odcinka piersiowego lub brzusznego. - Po wkłuciu igły w larwy należy ją lekko odciągnąć do tyłu, aby umożliwić dsRNA przedostanie się do jamy ciała larw.
- Delikatnie naciskać strzykawkę do wstrzykiwań, aż larwy zmienią kolor na zielony (lub zmienią kolor buforu do wstrzykiwań) i będą wyglądały na rozciągnięte i pełne.
UWAGA: Jeśli uczysz się tej techniki, staraj się wstrzykiwać jak najwięcej, aby określić ilość roztworu, którą można wstrzyknąć larwie bez znaczącej śmiertelności. Na ogół jest to około 0,5-0,7 μl. - Usuń igłę z larw. Podczas wyjmowania igły należy lekko odciągnąć strzykawkę do wstrzykiwań, aby uniknąć utraty dsRNA (należy również uważać, aby nie wciągnąć powietrza).
- Wstrzyknąć wszystkie larwy na szkiełku. Upewnij się, że usunąłeś larwy, które nie zostały pomyślnie wstrzyknięte. Pełne wstrzyknięcie należy wykonać przed przebudzeniem larw (po około 10 minutach).
- Usunąć szkiełko z wstrzykniętymi larwami z mikroskopu iniekcyjnego i pozostawić szkiełko na kolejne 5 minut, aż wszystkie larwy wyzdrowieją po eteryzacji.
- Za pomocą kleszczy i pod mikroskopem preparacyjnym delikatnie podnieś larwy od głowy do ogona, aby uwolnić je z lepkiego szkiełka. Umieść nowo uwolnione larwy na czystej szalce Petriego. Pozostawić larwy na szalce Petriego na 10-15 minut, aby rana po wstrzyknięciu mogła się zakrzepnąć.
- Umieść larwy w nowej butelce z czystą mąką i odpowiednio oznacz, podając nazwę szczepu, rodzaj wstrzykniętego dsRNA, stężenie dsRNA, liczbę wstrzykniętych larw i datę.
- Hodowla wstrzykniętych larw w temperaturze 30 °C i wilgotności 70%. Regularnie obserwuj larwy pod kątem fenotypów RNAi.
UWAGA: Ostatnie larwy w stadium rozwojowym przepoczwarzają się w ciągu 7 dni. Następnie, po 7 dniach poczwarki zamkną się w dorosłe osobniki (jeśli nie ma nieprawidłowości w czasie spowodowanych przez RNAi).
9. Potwierdzenie knockdownu i analiz fenotypowych
- Rozważ ocenę skuteczności knockdown RNAi za pomocą kilku różnych technik biologii molekularnej, takich jak ilościowy PCR z odwrotną transkrypcją (qRT-PCR) i Western Blotting. Zobacz Miller et al. 20127 oraz Philip i Tomoyasu 201111, aby uzyskać szczegółowe informacje na temat protokołu qPCR i Western Blot.
- Analizuj fenotypy związane z RNAi.
UWAGA: Fenotypy związane z RNAi można obserwować na kilku różnych etapach i w różnych warunkach hodowli, w zależności od genów, które były celem ataku. RNAi może wpływać na morfologię, metamorfozę, fizjologię i zachowanie chrząszcza. To, jak często sprawdzana jest obecność fenotypu i w jakich warunkach chrząszcze są hodowane, powinno być dostosowane do konkretnych zagadnień badanych za pomocą RNAi.
Wyniki
Jednym z kluczowych kroków dla powodzenia iniekcji jest odpowiednie przygotowanie igły. Zgodnie z opisem w kroku 6, końcówka igły musi zostać przełamana przed wykonaniem iniekcji u T. castaneum. Przykłady odpowiednio i nieprawidłowo przygotowanych igieł przedstawiono na Rysunku 1. Prawidłowo przygotowana igła ma ostrą i sztywną końcówkę z otworem o średnicy około 0,05 mm (Rysunek 1B).
Rysunek 2 przedstawia udane wstrzyknięcie (Rysunki 2A i 2B) oraz kilka przypadków nieudanych wstrzyknięć (Rysunki 2C-2F). Przy zastosowaniu igły o odpowiedniej rozmiarze końcówka igły penetruje kutykulę larwy przy minimalnym oporze (Rysunek 2A), a roztwór dsRNA (kolor zielony) wpływa do larwy bez żadnych wycieków (Rysunek 2B). Należy unikać nadmiernego wstrzykiwania, ponieważ spowoduje to przelanie roztworu dsRNA nawet przy użyciu igły o odpowiednim rozmiarze (Rysunek 2C). Jeśli końcówka igły jest zbyt cienka, często nie udaje się przebić kutykuli larwy i dochodzi do zgięcia igły, co utrudnia wstrzyknięcie (Rysunek 2D). W takim przypadku pomocne może być przycięcie końcówki igły. Większe igły są często nadal użyteczne, choć wiąże się to z pewnymi trudnościami w penetracji kutykuli larwy (Rysunek 2E). Jednakże duża ilość roztworu dsRNA jest łatwo wypychana z igły nawet przy niewielkim nacisku na strzykawkę, co często prowadzi do przelania roztworu dsRNA (Rysunek 2F).
Podczas przeprowadzania RNAi istotne jest zastosowanie kontroli pozytywnej w celu oceny, czy RNAi działa prawidłowo, oraz kontroli negatywnej, aby zweryfikować, czy zaobserwowany efekt nie jest nieswoistym działaniem dsRNA lub następstwem procedur wstrzykiwania (takich jak uraz spowodowany iniekcją lub nieprawidłowości wynikające z eteryzacji). Wstrzyknięcie dsRNA celującego w EYFP może służyć jako dobra kontrola pozytywna przy użyciu szczepu pu-115,7. Po wstrzyknięciu dsRNA EYFP w ostatnim stadium larwalnym, znaczną redukcję sygnału EYFP w przyszłych prymordiach skrzydeł można zaobserwować już jeden dzień po iniekcji (Rysunek 3A). Knockdown EYFP jest całkowity dwa dni po wstrzyknięciu dsRNA EYFP (Rysunek 3B) i utrzymuje się on przez stadium poczwarki (Rysunki 3C i 3D) oraz przez całe życie chrząszcza, jeśli stężenie dsRNA jest odpowiednio wysokie (np. 1 μg/μl)7. dsRNA EYFP może być również stosowane jako kontrola negatywna, ponieważ jest to nieendogenna sekwencja genu i nie powinna powodować zaburzeń morfologicznych ani fizjologicznych (Rysunki 3A-3D).
Przedstawiliśmy obrazy RNAi w stadium larwalnym dla genu vestigial (vg), kluczowego genu skrzydeł12, jako kolejny przykład skuteczności tej techniki RNAi opartej na wstrzykiwaniu u T. castaneum. Po wstrzyknięciu dsRNA dla vg do larw w przedostatnim stadium (jedno stadium przed ostatnim stadium larwalnym), w stadium poczwarki można zaobserwować całkowity zanik struktur skrzydeł (Ryciny 3E oraz 3F). Powstały osobnik dorosły również całkowicie pozbawiony jest struktur skrzydeł (Ryciny 3G oraz 3H). Wynik RNAi dla vg obrazuje zarówno odporność, jak i systemowy charakter RNAi u T. castaneum.
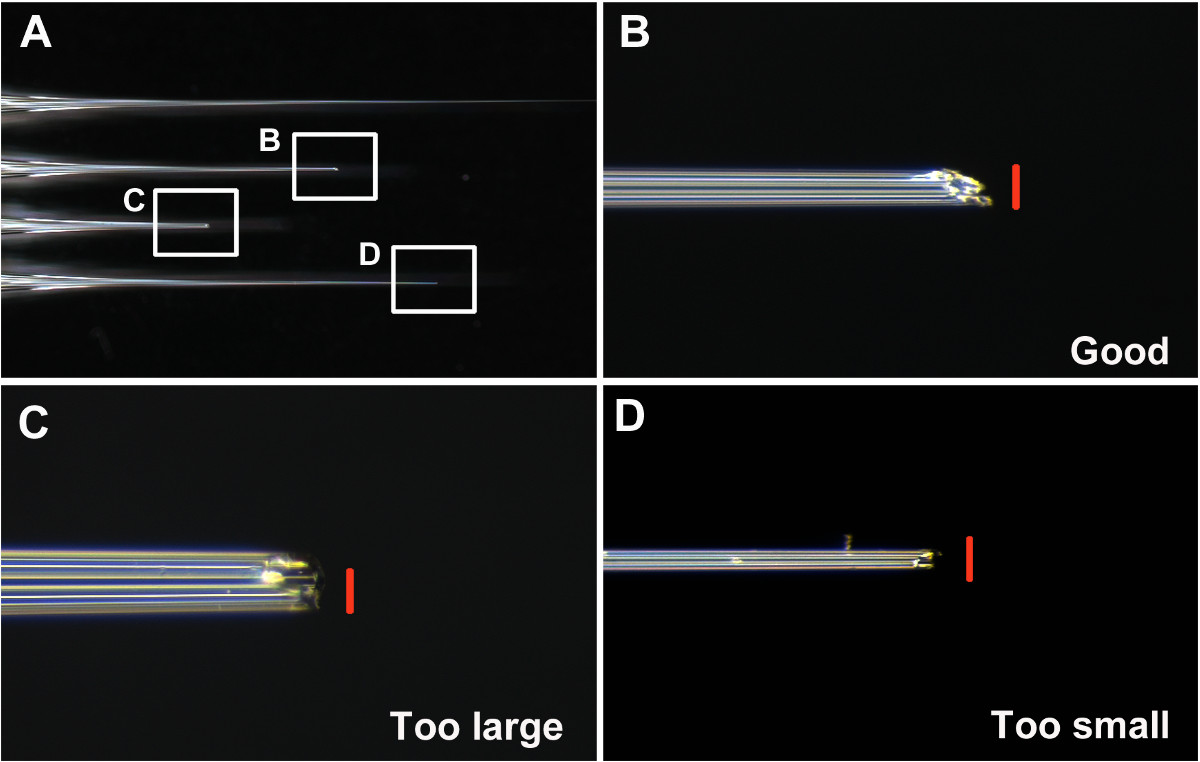
Rysunek 1: (A) Przykłady igieł nieprzełamanych, prawidłowych i wadliwych. (B) Końcówka prawidłowo przełamanej, dobrej igły. (C) Końcówka przełamanej igły, która jest zbyt duża i tępa. (D) Końcówka przełamanej igły, która jest zbyt cienka. Paski skali (czerwone) wynoszą 0,05 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
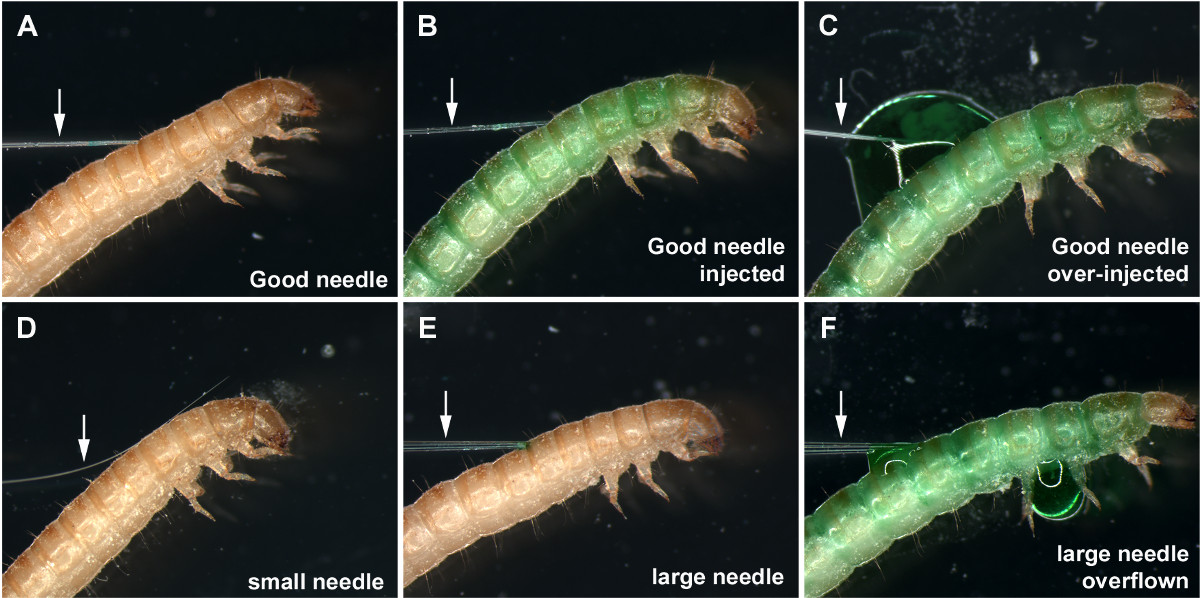
Rysunek 2: (A) Igła do iniekcji o odpowiednim rozmiarze wprowadzona do larwy ostatniego stadium. (B) Larwa prawidłowo poddana iniekcji roztworem zielonego dsRNA. (C) Wyciek roztworu dsRNA w miejscu iniekcji spowodowany podaniem zbyt dużej objętości. (D) Cienka igła, która nie przebiła kutykuli larwy. (E) Duża igła do iniekcji wprowadzona do larwy ostatniego stadium. (F) Larwa poddana iniekcji dużą igłą, co spowodowało przelanie i wyciek roztworu dsRNA. Strzałki wskazują igły. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
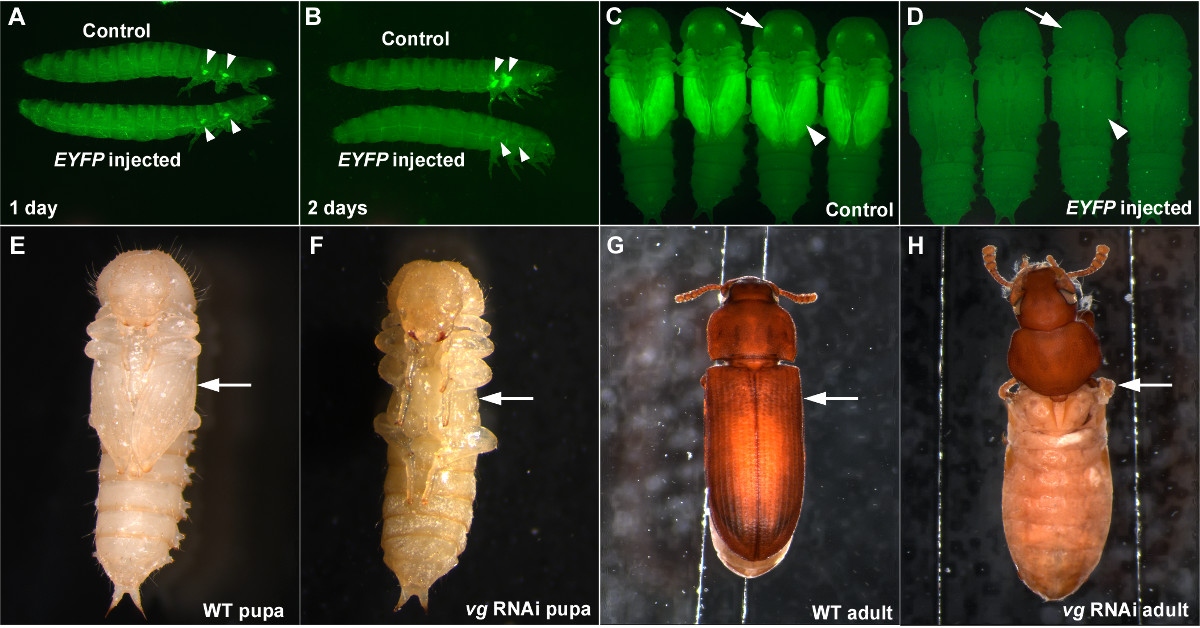
Rysunek 3: Przykłady skutecznego RNAi u T. castaneum. (A-D) Ostatnie wtryskiwanie dsRNA dla EYFP do larw skutkuje redukcją ekspresji EYFP. (A) Larwy jeden dzień po wtryskaniu. (B) Larwy dwa dni po wtryskaniu. (C) Poczeki kontrolne. (D) Poczeki powstałe po wtryśnięciu dsRNA dla EYFP do larw. Kontrolami negatywnymi są wtryskiwanie buforu (A, B) oraz wtryskiwanie dsRNA dla dsRed (C, D). Groty strzałek i strzałki wskazują odpowiednio ekspresję EYFP lub jej brak w primordiach skrzydeł i oczach. (E-H) Przedostatnie RNAi w larwach dla vg. (E) Poczek typu dzikiego. (F) Poczek po RNAi dla vg. Brak struktur skrzydeł jest już widoczny na etapie poczek (strzałka). G) Imago typu dzikiego. (H) Imago po RNAi dla vg. Struktury związane ze skrzydłami są całkowicie nieobecne (strzałka). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Istnieje szereg ważnych kwestii, które należy wziąć pod uwagę, aby zagwarantować sukces RNAi, w tym długość i stężenie cząsteczek dsRNA, konkurencja między różnymi cząsteczkami dsRNA (podczas próby wielokrotnego knock-downu) oraz możliwość wystąpienia efektów off-target (OTE).
Długość dsRNA
Długość cząsteczek dsRNA wpływa na skuteczność ogólnoustrojowej odpowiedzi RNAi, przy czym dłuższe dsRNA jest bardziej skuteczne w wyzwalaniu RNAi7,14,15 (chociaż dłuższa granica dsRNA jest obecnie nieznana). Długość dsRNA musi być dłuższa niż 50 pz, aby indukować efektywne RNAi w T. castaneum7. dsRNA między 150 pz a 500 pz wydaje się być idealne do eksperymentów RNAi. Chociaż można również stosować dłuższe cząsteczki dsRNA, będą one miały zwiększoną szansę na TOO, a etap klonowania genów będzie coraz trudniejszy.
Stężenie dsRNA
W zależności od stężenia dsRNA można osiągnąć różne stopnie knockdownu genów. 1 μg/μl wydaje się być rozsądnym stężeniem początkowym, które często prowadzi do prawie zerowego fenotypu (może się różnić w zależności od interesującego genu (genów). RNAi można wykonać przy wyższym stężeniu (np. 7-8 μg/μl), aby uzyskać silniejszy fenotyp RNAi. RNAi z seryjnym rozcieńczeniem dsRNA może czasami być korzystne dla wytworzenia serii hipomorficznych fenotypów (dane uzupełniające Tomoyasu i in. 20098 oraz niepublikowane dane Borràs-Castells).
Konkurs RNAi
Knockdown wielu genów można osiągnąć w T. castaneum poprzez jednoczesne wstrzyknięcie kilku różnych cząsteczek dsRNA. Wiadomo jednak również, że obecność kilku różnych cząsteczek dsRNA w organizmie często powoduje konkurencję między dsRNA o dostęp do składników RNAi7,14. Ważne jest, aby używać tej samej długości i tego samego stężenia dla wszystkich dsRNA podczas próby knockdownu wielu genów, aby uniknąć sytuacji, w której jeden dsRNA konkuruje z innymi (chociaż dalsze dostosowania długości i stężenia dsRNA mogą być wymagane, gdy poziomy ekspresji znacznie różnią się między genami docelowymi). My, jak również inni, z powodzeniem przeprowadziliśmy podwójny i potrójny knockdown (np. Tomoyasu i in. 200516, Tomoyasu i in. 200917 oraz Yang i wsp. 200918). Chociaż jest to wykonalne, poczwórne RNAi (lub więcej) może być wyzwaniem, ponieważ prawdopodobnie spowodowałoby znaczne zmniejszenie wydajności RNAi dla wszystkich czterech docelowych genów.
Niezgodne z kierowaniem
OTE jest nieodłącznym problemem dla podejść opartych na RNAi. Jednym ze sposobów zminimalizowania OTE jest identyfikacja regionów w genie docelowym, które mają podobne sekwencje z innymi genami i unikanie tych regionów podczas projektowania dsRNA. Prosta analiza BLAST w odniesieniu do przewidywanego zestawu genów T. castaneum może zidentyfikować takie regiony. Kilka narzędzi online umożliwia również ocenę potencjalnego OTE (np. E-RNAi19). Wykonanie RNAi dla dwóch nienakładających się na siebie regionów docelowego genu jest łatwym i skutecznym sposobem na wyeliminowanie możliwości, że obserwowane fenotypy są spowodowane przez OTE. Możliwość OTE jest zminimalizowana, jeśli RNAi dla dwóch nienakładających się regionów wytwarza te same fenotypy (chyba że dwa nienakładające się regiony mają podobną sekwencję).
Ocena knockdownu genów za pomocą środków innych niż analizy fenotypowe ma często kluczowe znaczenie dla skutecznego prezentowania danych związanych z RNAi. Dwa główne sposoby oceny knockdownu genów to qRT-PCR i analiza western blot. qRT-PCR jest wygodnym sposobem pomiaru poziomu docelowego mRNA i był stosowany w wielu badaniach związanych z RNAi, w tym w T. castaneum (patrz Miller i wsp. 2012 7 na przykład). Należy jednak zachować ostrożność, ponieważ ostatnio widzieliśmy przypadki, w których docelowy poziom mRNA jest regulowany w górę przez RNAi (chociaż produkt białkowy jest regulowany w dół) (niepublikowane dane Borràs-Castells). Obecnie nie wiadomo, czy ta indukowana przez RNAi regulacja w górę mRNA może być powszechna lub unikalna dla niektórych genów. Analiza Western blot to kolejny sposób na potwierdzenie knockdownu genu. Ta metoda jest dość wiarygodna, ponieważ mierzy ilość końcowego produktu białkowego. Wymóg specyficznego przeciwciała przeciwko produktowi białkowemu genu docelowego jest wadą tego podejścia. Wykorzystanie wielu niezależnych pomiarów oprócz analizy fenotypowej zwiększy pewność danych fenotypowych uzyskanych w wyniku analizy opartej na RNAi.
Od momentu powstania w T. castaneum, RNAi jest używany przede wszystkim do badania funkcji genów w rozwoju i tworzeniu wzorców. Te badania rozwojowe T. castaneum były bardzo udane w charakteryzowaniu ewolucyjnie zachowanych i rozbieżnych funkcji genów (przegląd w Denell 20081 i Klingler 20042). Jednak badania oparte na RNAi na T. castaneum nie ograniczają się do biologii rozwoju. Na przykład RNAi może być wykorzystywane do badania funkcji genów w szerokim zakresie reakcji fizjologicznych i behawioralnych, w tym tolerancji na stres, drapieżnictwa, agresji, wyboru partnera, wzorców aktywności i mechanizmów obronnych.
Jedną z trudności w zastosowaniu RNAi w tych kontekstach jest prawdopodobieństwo wystąpienia efektów plejotropowych. Często geny będące przedmiotem zainteresowania będą pełnić różne role w całym cyklu życiowym T. castaneum , co utrudnia usunięcie genów bez niezamierzonych skutków fenotypowych. Jednak zdolność do łatwego wykonywania RNAi na różnych etapach może być często skuteczną strategią unikania tych plejotropowych efektów. Na przykład, wykonywanie RNAi u dorosłych zamiast larw lub poczwarek może pozwolić nam uniknąć niezamierzonej śmiertelności spowodowanej knockdownem genu we wczesnym okresie rozwoju. Elastyczność odpowiedzi RNAi u T. castaneum sprawia, że model ten jest atrakcyjnym wyborem do adaptacji RNAi do eksperymentów dotyczących funkcji genów w reakcjach fizjologicznych i behawioralnych.
System T. castaneum idealnie nadaje się również do stosowania w laboratorium dydaktycznym. T. castaneum można łatwo hodować na mieszance mąki i drożdży w temperaturze pokojowej (25 °C) bez częstego hodowania, a techniki RNAi w T. castaneum są na tyle proste, że można je zaadaptować do laboratorium z młodymi, uczącymi się naukowcami. Ponieważ RNAi staje się podstawową techniką w różnych dziedzinach biologii, ważne jest, aby studenci byli narażeni na tę technikę. Prosty charakter techniki RNAi larwalnych u T. castaneum zachęca również więcej uczniów do zaangażowania się w badania, co czyni T. castaneum głównym kandydatem na system genetyczny zorientowany w klasie.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Centrum Bioinformatyki i Genomiki Funkcjonalnej (CBFG) na Uniwersytecie Miami za wsparcie techniczne. Prace te były wspierane przez Miami University start-up grant (YT) oraz National Science Foundation (YT: IOS 0950964).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ekologiczna mąka pszenna pełnoziarnista | Heartland Mill Inc. Kansas | G1 | |
| Browar s | drożdże MP Biomedicals | 2903312 | Przed użyciem przesiej drożdże za pomocą sita ze stali nierdzewnej #35. Załóż maskę ochronną i przykryj sito folią, ponieważ przesiane drożdże są drobnymi cząstkami i stanowią zagrożenie dla dróg oddechowych. |
| 6 uncji plastikowych butelek Drosophila | Fisher Scientific | 11-888 | |
| Sito | Fisher Scientific | 04-881N | Średnica 8 cali x 2 cale Użyj #25 (Nominalne otwarcie 710 µ m) dla larw, poczwarek i osobników dorosłych. |
| Sito | Fisher Naukowe | 04 881 10P | 8 in. średnica #35 (Nominalny otwór seive: 600 µ m) Sita ze stali nierdzewnej, 8 cali. średnica x 2 cale To sito jest idealne do usuwania grudek z proszku drożdżowego. |
| Odbiornik sita | Fisher Scientific | 04-866B | Średnica 8 cali |
| 1,5 litra miska na próbkę z wylewką | Sprzęt Seedburo Co. | Patelnia zbiorcza | model 33 |
| Inkubator | BioCold Environmental Inc | BC26-IN | Zachowaj 30 & stopni; C o wilgotności 70%. |
| Na2HPO4 | Fisher Scientific | ||
| NaH2PO4 | Fisher Scientific | S397-500 | |
| KCl | Fisher Scientific | P217-500 | |
| Barwnik spożywczy | Kroger | preferowany zielony, niebieski lub czerwony | |
| Szkiełko mikroskopowe | Fisher Naukowy | 22-038-103 | |
| Tack-It Over& Nad | klejem | Repositionable do lepkich slajdów. Jako alternatywę można zastosować taśmę dwustronną, jednak stwierdziliśmy, że przyczepność jest różna. | |
| Plastikowe pudełko na płyty CD | Amazon | ||
| Kapilara ze szkła boroslilickanego | Sutter Instrument | BF100-50-15 | OD 1 mm, ID 0,5 mm, 15 cm. Bez filamentu |
| Ściągacz igieł | Sutter Instrument | P-87 lub P-97 | |
| Zdejmowana szpachlówka montażowa | Loctite Fun-Tak | ||
| Szczypce do sprężonego gazu | OfficeMax | OM96091 | |
| Kleszcze Fine Science Tool | 11231-30 | Dumoxel #3 (do manipulowania chrząszczami) | |
| Kleszcze | Fine Science Tool | 11252-20 | INOX #5 (do łamania końcówek igieł) |
| Eter etylowy, bezwodny | Fisher Naukowy | E138-500 | |
| Siatka nylonowa | Muchy/Genessee Scientific | 57-102 | 120 &mikro; m wielkość porów/49% otwarta przestrzeń |
| Butelka na nośnik, 100 ml | VWR | 89000-926 | |
| Stereomikroskop | Zeiss | SteREO Discovery V12. Mikroskop iniekcyjny. | |
| Mikroskop stereoskopowy | Fisher/Zeiss | 12-070-513 | Stemi2000. Użyj, aby złamać igłę i umieścić larwy na lepkim szkiełku. |
| Stolik mechaniczny X-Y | Zeiss | 4354600000000000 | |
| Stopień mechaniczny X-Y | Microscopenet.com | A512 | Niedroga alternatywa |
| Manipulator | Narishige | M-152 | |
| Stojak magnetyczny | Narishige | GJ-1 | |
| Szklany uchwyt kapilarny | Narishige | IM-H1 | |
| 30 ml Strzykawka jednorazowa | Strzykawka BD | 309650 | BD Luer-Lok Końcówka |
| Czterokierunkowy kran odcinający | Cole-Parmer Instrument Co. | EW-30600-03 | Kranki z przyłączami Luer; 4-drożne; męski pędzel |
| do malowania | Zestaw pędzli olejnych i akrylowych Amazon Art Advantage, 24-częściowy | Każdy ogólny pędzel będzie działał. |
Bibliografia
- Denell, R. Establishment of Tribolium as a genetic model system and its early contributions to evo-devo. Genetics. 180, 1779-1786 (2008).
- Klingler, M. Tribolium. Curr Biol. 14, R639-R640 (2004).
- Richards, S., et al. The genome of the model beetle and pest Tribolium castaneum. Nature. 452, 949-955 (2008).
- Bucher, G., Scholten, J., Klingler, M. Parental RNAi in Tribolium (Coleoptera). Curr Biol. 12, 85-86 (2002).
- Tomoyasu, Y., Denell, R. E. Larval RNAi in Tribolium (Coleoptera) for analyzing adult development. Dev Genes Evol. 214, 575-578 (2004).
- Tomoyasu, Y., et al. Exploring systemic RNA interference in insects a genome-wide survey for RNAi genes in Tribolium. Genome biology. 9, R10(2008).
- Miller, S. C., Miyata, K., Brown, S. J., Tomoyasu, Y. Dissecting systemic RNA interference in the red flour beetle Tribolium castaneum parameters affecting the efficiency of RNAi. PLoS ONE. 7, e47431(2012).
- Tomoyasu, Y., Arakane, Y., Kramer, K. J., Denell, R. E. Repeated co-options of exoskeleton formation during wing-to-elytron evolution in beetles. Curr Biol. 19, 2057-2065 (2009).
- Miller, S. C., Brown, S. J., Tomoyasu, Y. Larval RNAi in Drosophila. Dev Genes Evol. 218, 505-510 (2008).
- Brown, S. J., Mahaffey, J. P., Lorenzen, M. D., Denell, R. E., Mahaffey, J. W. Using RNAi to investigate orthologous homeotic gene function during development of distantly related insects. Evolutio., & development. 1, 11-15 (1999).
- Philip, B. N., Tomoyasu, Y. Gene knockdown analysis by double-stranded RNA injection. Methods Mol Biol. 772, 471-497 (2011).
- Clark-Hachtel, C. M., Linz, D. M., Tomoyasu, Y. Insights into insect wing origin provided by functional analysis of vestigial in the red flour beetle. Tribolium castaneum, Proceedings of the National Academy of Sciences of the United States of America. 110, 16951-16956 (2013).
- Kitzmann, P., Schwirz, J., Schmitt-Engel, C., Bucher, G. RNAi phenotypes are influenced by the genetic background of the injected strain. BMC genomics. 14, 5(2013).
- Parrish, S., Fleenor, J., Xu, S., Mello, C., Fire, A. Functional anatomy of a dsRNA trigger differential requirement for the two trigger strands in RNA interference. Molecular cell. 6, 1077-1087 (2000).
- Winston, W. M., Molodowitch, C., Hunter, C. P. Systemic RNAi in C elegans requires the putative transmembrane protein SID-1. 295, Science. New York, NY. 2456-2459 (2002).
- Tomoyasu, Y., Wheeler, S. R., Denell, R. E. Ultrabithorax is required for membranous wing identity in the beetle Tribolium castaneum. Nature. 433, 643-647 (2005).
- Trauner, J., et al. Large-scale insertional mutagenesis of a coleopteran stored grain pest, the red flour beetle Tribolium castaneum, identifies embryonic lethal mutations and enhancer traps. BMC Biol. 7, 73 (2009).
- Yang, X., et al. Probing the Drosophila retinal determination gene network in Tribolium (II) The Pax6 genes eyeless and twin of eyeless. Developmental biology. 333, 215-227 (2009).
- Horn, T., Boutros, M. E-RNAi a web application for the multi-species design of RNAi reagents--2010 update. Nucleic acids research. 38, 332-339 (2010).
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: Larval RNA Interference in the Red Flour Beetle, Tribolium castaneum
Posted by JoVE Editors on 10/01/2015. Citeable Link.
An erratum was issued for Larval RNA Interference in the Red Flour Beetle, Tribolium castaneum. There was a typo in the settings for Sutter P-87 in step 4.1.
