Mechanizmy molekularne, które koordynują powstawanie hamujących synaps GABA-ergicznych podczas ontogenezy, są w dużej mierze nieznane. Aby zbadać te procesy, opracowaliśmy system modelu kohodowli, który obejmuje embrionalne średnio kolczaste neurony GABA-ergiczne hodowane razem ze stabilnie transfekowanymi ludzkimi embrionalnymi komórkami nerkowymi 293 (HEK293) wyrażającymi funkcjonalne receptoryGABA A.
Artykuł metodologiczny
Hamujące tworzenie synaps w modelu kokultury obejmującym średnie neurony kolczaste GABA-ergiczne i komórki HEK293 stabilnie eksprymujące receptory GABAA
W tym artykule
Podsumowanie
Streszczenie
Neurony hamujące działają w ośrodkowym układzie nerwowym, regulując dynamikę i czasoprzestrzenną koordynację sieci neuronowych. GABA (kwas γ-aminomasłowy) jest dominującym neuroprzekaźnikiem hamującym w mózgu. Jest uwalniany z zakończeń presynaptycznych neuronów hamujących w wysoce wyspecjalizowanych połączeniach międzykomórkowych znanych jako synapsy, gdzie wiąże się z receptoramiGABA A (GABAARs) obecnymi na błonie plazmatycznej neuronów odbierających synapsy, postsynaptycznych. Aktywacja tych kanałów jonowych bramkowanych GABA prowadzi do napływu chlorków, co powoduje postsynaptyczne zmiany potencjału, które zmniejszają prawdopodobieństwo, że te neurony będą generować potencjały czynnościowe.
Podczas rozwoju, różne typy neuronów hamujących o różnych cechach morfologicznych, elektrofizjologicznych i neurochemicznych mają zdolność rozpoznawania swoich docelowych neuronów i tworzenia synaps, które zawierają specyficzne podtypy GABAARs. Ta zasada selektywnego unerwienia celów neuronalnych rodzi pytanie, w jaki sposób właściwi partnerzy synaptyczni identyfikują się nawzajem.
Aby wyjaśnić podstawowe mechanizmy molekularne, stworzono nowy system modelowy współhodowli in vitro, w którym średnio kolczaste neurony GABA-ergiczne, wysoce jednorodna populacja neuronów wyizolowanych z embrionalnego prążkowia, były hodowane ze stabilnie transfekowanymi liniami komórkowymi HEK293, które wyrażają różne GABAAPodtypy R. Synapsy tworzą się w tym systemie szybko, wydajnie i selektywnie i są łatwo dostępne do oceny ilościowej. Nasze wyniki wskazują, że różne podtypy GABAAR różnią się zdolnością do promowania tworzenia synaps, co sugeruje, że ten zredukowany system modelowy in vitro może być wykorzystany do odtworzenia, przynajmniej częściowo, warunków in vivo wymaganych do rozpoznania odpowiednich partnerów synaptycznych i tworzenia specyficznych synaps. Tutaj najpierw opisano protokoły hodowli średnich neuronów kolczastych i generowania linii komórek HEK293 wyrażających GABAARs, a następnie szczegółowe instrukcje, jak połączyć te dwa typy komórek we wspólnej hodowli i analizować tworzenie kontaktów synaptycznych.
Wprowadzenie
GABA jest jednym z najwcześniejszych neuroprzekaźników występujących w embrionalnym mózgu, poprzedzającym najliczniejszy neuroprzekaźnik pobudzający glutaminian1. Podczas rozwoju GABA depolaryzuje i pobudza niedojrzałe neurony, odgrywając kluczową rolę w regulacji proliferacji komórek, migracji i tworzenia sieci neuronalnych bez wywoływania ekscytotoksyczności. W dorosłym mózgu potencjał odwrócenia kanałów receptora GABAA jest przesunięty na bardziej ujemny potencjał z powodu spadku wewnątrzkomórkowego stężenia chlorku. Ta zmiana jest spowodowana regulacją w górę kotransportera chlorku potasu (KCC2), który transportuje chlorek z komórki, i równolegle regulacją w dół transportera chlorku sodu i potasu (NKCC1), co ma odwrotny efekt2.
W mózgu, GABA przede wszystkim wiąże się z receptorami GABAA lub GABAB, aby pośredniczyć odpowiednio w szybkim lub wolnym hamowaniu synaptycznym. GABA,A, Rs to klasa receptorów znanych również jako heteropentameryczne, jonotropowe lub bramkowane ligandem kanały jonowe pętli Cys. Do aktywacji receptora potrzebne są dwie cząsteczki GABA, który jest przepuszczalny dla jonów chlorkowych i w mniejszym stopniu jonów wodorowęglanowych. Wzrost przewodnictwa chlorkowego zmniejsza skuteczność depolaryzujących, pobudzających zdarzeń w aktywacji neuronu postsynaptycznego3.
Różnorodność strukturalna GABAARs od dawna jest uznawana za kluczowy czynnik decydujący o ich szerokim zakresie funkcjonalnych i farmakologicznych właściwości. Natywne GABAARs to hetero-pentamery złożone z podjednostek z wieloma izoformami sklasyfikowanymi jako: α (1-6), β (1-3), γ (1-3), δ, ε, π i θ3, ze wspólną topologią transbłonową obejmującą dużą N-końcową domenę zewnątrzkomórkową, cztery domeny transbłonowe (TM) i główną domenę wewnątrzkomórkową między TM 3 i 44. Podjednostki β3 i γ2 są niezbędne do hamowania synaps i przetrwania organizmu, ponieważ myszy z genetyczną delecją tych podjednostek umierają po urodzeniu5,6. W przeciwieństwie do tego, poszczególne izoformy podjednostki α są ważne dla funkcji określonych połączeń synaptycznych w mózgu związanych z różnymi zachowaniami, takimi jak lęk, uspokojenie, pobudzenie i inne, ale indywidualnie nie są niezbędne do życia7-9. GABAARs są głównymi miejscami działania różnych leków o silnym działaniu uspokajającym, nasennym, przeciwlękowym i przeciwdrgawkowym, takich jak benzodiazepiny, barbiturany, neurosteroidy i środki znieczulające7,10,11.
Synaptyczne GABAAR zazwyczaj zawierają podjednostkę γ2, dwie podjednostki β (najczęściej β2 lub β3) i dwie podjednostki α (α1, α2, α3 lub α5)12,13. Dominująca klasa receptorów pozasynaptycznych zawiera podjednostkę δ w połączeniu z dwiema podjednostkami α (α4 lub α6) i dwiema podjednostkami β (β2 lub β3)14. Subkomórkowa lokalizacja GABAARs do aksonów, dendrytów lub somy oraz insercja do błony plazmatycznej są zależne od obecności podjednostek β15,16. Jednak selektywne włączanie różnych podtypów GABAAR do różnych typów synaps dobrze koreluje z obecnością określonych podjednostek α (α1, α2, α3 lub α5)7,17,18. Co ważne, delecja podjednostki α1 lub α2 u myszy powoduje zmiany ultrastrukturalne w synapsach hamujących19. Sugeruje to, że same GABAARs mogą odgrywać bezpośrednią rolę w regulacji tworzenia synaps.
Dowody wskazują, że rozwój synaps GABA-ergicznych to precyzyjnie skoordynowana sekwencja zdarzeń, w której zarówno cele neuronalne, z którymi stykają się różne typy aksonów hamujących, jak i receptory skupione w każdej klasie synaps hamujących są selektywne i funkcjonalnie dostrojone17,20-22. Ta podstawowa zasada specyficzności w synapsach GABA-ergicznych rodzi pytanie, w jaki sposób partnerzy pre- i postsynaptyczni rozpoznają się nawzajem podczas inicjacji kontaktów synaptycznych.
Testy in vitro z powodzeniem zastosowano do badania niektórych mechanizmów powstawania synaps i do testowania roli poszczególnych białek synaptycznych obejmujących rozszczep w tym procesie. Jedną z powszechnych kombinacji białek oddziałujących trans-synaptycznie, które działają dwukierunkowo, pośrednicząc w tworzeniu i dojrzewaniu synaps, są neureksyny (Nrxns) i neuroliginy (NL). Nrxns są białkami presynaptycznymi, które wykazują alternatywny splicing w obrębie swoich domen białkowych wiążących lamininę-neureksynę-hormon płciowy, powodując powstanie wielu różnych izoform23. Podczas gdy Nrxns oddziałują również z innymi białkami, uważa się, że NL są ich wszechobecnymi postsynaptykami24. Razem białka te przyczyniają się do utrzymywania błon presynaptycznych i postsynaptycznych w ścisłym i sztywnym ułożeniu25. Dwie najliczniejsze izoformy to NL-1 i NL-2, które są obecne odpowiednio w synapsach pobudzających i hamujących26. Jeden z najwcześniejszych systemów modelowych kokultur, zaprojektowany do badania interakcji białek transsynaptycznych, wykorzystywał różne typy komórek nieneuronalnych, najczęściej nieśmiertelne linie komórkowe, takie jak 293 komórki ludzkiej embrionalnej nerki (HEK), do nadekspresji NL-2. Kiedy komórki te były hodowane z neuronami mostu, zaobserwowano nagromadzenie białek presynaptycznych w bliskiej odległości od powierzchni komórek HEK, co wskazuje na tworzenie się kontaktów podobnych do synaps. Dodanie rozpuszczalnej β-neureksyny do tych kokultur hamowało tworzenie kontaktów, co sugeruje, że interakcje transsynaptyczne między Nrxns i NL są niezbędne do tworzenia kontaktu synaptycznego27. Co więcej, przejściowa ekspresja β-neureksyny w komórkach COS (CV-1 (symij) w Origin i przenoszących materiał genetyczny SV40) hodowanych wspólnie z dysocjowanymi neuronami glutaminergicznymi i GABA-ergicznymi hipokampa indukowała ekspresję postsynaptycznego białka gefryiny i podjednostek GABAAR γ2 i α2 w punktach styku między tymi dwoma typami komórek28. Inny przykład modelu kokultury stosowanego do badania tworzenia synaps obejmował komórki HEK293, przejściowo transfekowane podjednostkami GABAAR α2 / β3 / γ2 i NL-2 oraz mieszaną populację neuronów podwzgórza29. W badaniu tym stwierdzono, że ekspresja NL-2 jest bezwzględnym wymogiem do tworzenia synaps hamujących.
Jednak w niedawnym badaniu z udziałem kokultur, stabilnie transfekowane α1/β2/γ2 GABAARs w komórkach HEK293 okazały się wystarczające do indukowania funkcjonalnych synaps podczas wspólnej hodowli z GABA-ergicznymi średnimi neuronami kolczastymi, bez potrzeby stosowania dodatkowych trans-synaptycznych lub postsynaptycznych białek adhezyjnych. Jednak wyraźny wzrost tworzenia i siły synaps zaobserwowano, gdy NL-2 był jednocześnie wyrażany z GABAARs30. Wskazuje to, że ten system modelowy kokultur ma przewagę nad poprzednio opisanymi systemami modelowymi, najbardziej ewidentnie zwiększoną czułość i niezawodność wykrywania kontaktów synaptycznych. Dwa ważne czynniki przyczyniające się do ogólnej poprawy wykrywania kontaktów synaptycznych to: i) Zastosowanie stabilnie transfekowanych linii komórkowych HEK293 o wysokiej i stałej ekspresji podjednostek GABAAR na powierzchni poszczególnych komórek. Ta spójność ułatwia ilościowe porównania między różnymi warunkami współkultury. ii) Zastosowanie czystej populacji średnich neuronów kolczastych GABA-ergiczny wyhodowanych z prążkowia embrionalnego31 usuwa komplikacje i niejasności wynikające z zastosowania mieszanych populacji neuronów i umożliwia, na przykład, wybór najbardziej odpowiednich postsynaptycznych typów GABAAR, które można porównywać ze sobą podczas tworzenia synaps.
Uważa się, że tworzenie synaps obejmuje wiele sygnałów transsynaptycznych w pre- i postsynaptycznych kompleksach adhezyjnych komórek. Ze względu na dwukierunkowy charakter sygnalizacji synaptycznej i samą liczbę cząsteczek adhezyjnych komórek, trudno jest zidentyfikować kluczowe składniki zaangażowane w tworzenie synaps. Tak więc transfekcja białka adhezyjnego pojedynczej komórki do komórki nieneuronalnej (w tym przypadku dwóch najbardziej rozpowszechnionych celów postsynaptycznych dla średnich neuronów kolczastych GABAergiczne in vivo, α1 / β2 / γ2 lub α1 / β3 / γ2 GABAARs32) znacznie zmniejsza złożoność sygnałów transsynaptycznych dostępnych na powierzchni postsynaptycznej i umożliwia precyzyjną analizę ilościową skuteczności tego białka w promowaniu tworzenia synaps.
Protokół
Szczury Sprague-Dawley lub myszy wsobne BAB/c (Harlan, UK; liczba użytych ciężarnych samic wynosiła 30) były trzymane i uśmierzane zgodnie z wytycznymi brytyjskiego Ministerstwa Spraw Wewnętrznych [i dyrektywy Rady Wspólnot Europejskich z 24 listopada 1986 r. (86/609/EWG)]. Projekt został formalnie zatwierdzony przez Komisję Etyki UCL School of Pharmacy
.1. Przygotowanie instrumentów, podłoża hodowlanego i potraw
- Włącz i wyczyść okap z przepływem laminarnym 70% etanolem, aby przez cały czas pracować w sterylnych warunkach.
- Przygotuj pożywkę do hodowli komórkowych HEK293, zawierającą zmodyfikowane podłoże Eagle Medium firmy Dulbecco o pH 7,4 (DMEM, 500 ml), L-glutaminę (2 mM), penicylinę (50 jednostek/ml), streptomycynę (50 μg/ml) i płodową surowicę bydlęcą (10%).
UWAGA: penicylina i streptomycyna są substancjami drażniącymi. - Przygotuj pożywkę do hodowli neuronów bez surowicy, zawierającą pożywkę Neurobasal pH 7,4 (500 ml), suplement witaminy B27 (25 ml), L-glutaminę (2 mM), penicylinę (50 jednostek/ml), streptomycynę (50 μg/ml) i glukozę (6 mM).
- Przygotować 500 ml buforowanego przez HEPES roztworu soli fizjologicznej (HBSS), zawierającego HBSS 10x bulion (50 ml), HEPES (1 M) (5 ml) i wodę (445 ml), pH 7,4.
- Autoklaw buforowany roztworem soli fizjologicznej (PBS, pH 7,4; 1 l), wodą (1 l), szkiełkami nakrywkowymi (o średnicy 13 mm) i szklanymi pipetami Pasteura do sterylizacji.
2. Przygotowanie stabilnej linii komórkowej HEK293 wyrażającej α1/β3/γ2-GABAARs
- Umieścić 2x10⁶ komórek HEK293 na sterylnej płytce do hodowli tkankowej o średnicy 10 cm i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% dwutlenku węgla (CO2) (inkubator CO2 ) w celu osiągnięcia 70-90% zbiegu przez noc.
- Następnego dnia transfekowane komórki HEK293 z podjednostką cDNA GABAAR α1 w wektorze ekspresyjnym pcDN 3,1 (+) zawierającym gen oporności na dwusiarczan G418 (Tabela 1) i podjednostkę GABAAR β3 cDNA w wektorze ekspresyjnym zawierającym fleomycynę D1 (Tabela 1) gen oporności (oba pod regulacją ludzkiego promotora wirusa cytomegalii (CMV)), przy użyciu preparatu liposomów kationowych, który kompleksuje się z ujemnie naładowanymi cząsteczkami kwasu nukleinowego (tabela 1) zgodnie z protokołem producenta.
- Na krótko dodać 500 μl zredukowanej pożywki surowicy (pH 7,4; Tabela 1) i 7,5 μg każdego konstruktu cDNA do sterylnej probówki wirówkowej o pojemności 15 ml, a następnie 15 μl odczynnika buforującego do transfekcji liposomalnej i delikatnie wymieszać przed pozostawieniem w temperaturze pokojowej na 5 minut.
- Do tej mieszaniny dodać 8,75 μl odczynnika do transfekcji liposomalnej i delikatnie wymieszać przed pozostawieniem w temperaturze pokojowej na 30 min. Następnie dodać 3 ml pożywki do hodowli komórkowych HEK293 (bez antybiotyków), dwukrotnie pipetować zawartość probówki wirówkowej w górę i w dół, przenieść kroplami na komórki rosnące w 10-centymetrowym naczyniu do hodowli tkankowej i inkubować przez 48 godzin w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ).
- Delikatnie przemyć komórki HEK293 sterylnym PBS o pH 7,4 i rozcieńczyć transfekowane komórki HEK293 na nowych 10 cm szalkach do hodowli tkankowych w następujących proporcjach: 1:3, 1:5, 1:7, 1:10, 1:15 i 1:20. Gwarantuje to, że komórki nie staną się nadmiernie zlewne.
- Rozpocznij selekcję komórek HEK293 wykazujących ekspresję obu podjednostek GABAAR od dodania 800 μg / ml każdego markera selekcji antybiotyków, G418, i fleomycyny D1 do pożywki hodowlanej. Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) i wymieniać pożywkę zawierającą antybiotyk (10 ml) co 2 dni.
- Kiedy zaczną tworzyć się małe białe kolonie (zwykle po około 7 dniach), ostrożnie wybierz pojedynczą kolonię z każdej z szalek i zbierz ją za pomocą sterylnej końcówki pipety P1000. Przenieść go do jednego dołka na 24-dołkowej płytce do hodowli tkankowej zawierającej 500 μl pożywki i ostrożnie zawiesić, pipetując pożywkę w górę i w dół. Upewnij się, że do każdej studzienki przeniesiono dokładnie jedną kolonię (zaleca się w sumie 5-20 kolonii). Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze o stężeniu 5 % CO2 (inkubator CO2 ) i wymieniać pożywkę zawierającą antybiotyk co 2 dni.
- Gdy kolonie osiągną zlewanie się w 70-80%, delikatnie odpipetuj pożywkę w górę iw dół, aby usunąć komórki z dna 24-dołkowej płytki do hodowli tkankowej. Przenieś i podziel zawiesinę komórek między 2 dołki na 6-dołkowej płytce do hodowli tkankowej. Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) i wymieniać pożywkę zawierającą antybiotyk co 2 dni.
- Gdy 70 - 80% zlewa się, zbierz komórki z 1 z 2 studzienek zawierających komórki pochodzące z tej samej pojedynczej kolonii i przygotuj lizaty białkowe. Na krótko umyj komórki 2x PBS, pH 7,4 i dodaj 200 μl 2% dodecylosiarczanu sodu (SDS) w PBS, pH 7,4. Zebrać lizat i przenieść go do probówki do mikrowirówki. Zmierzyć stężenie białka za pomocą odczynnika białkowego BCA (patrz Tabela 1) zgodnie z protokołem producenta. Analizuj ekspresję podjednostek α1 i β3 receptorów GABAA za pomocą SDS/PAGE i immunoblottingu przy użyciu przeciwciał specyficznych dla podjednostek (królicze przeciwciała anty-α1-specyficzne i królicze anty-β3-specyficzne dla GABAAR, patrz tabela 1 w celu uzyskania informacji na temat tych przeciwciał).
- Usunąć i przenieść tylko dodatnie klony z pozostałych studzienek do większych 6 cm naczyń do hodowli tkankowych. Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) i wymieniać pożywkę zawierającą antybiotyk co 2 dni.
- Stopniowo rozszerzaj kolonie komórek poddanych selekcji antybiotyków, przenosząc je do 10 cm szalek do hodowli tkankowych, a na końcu do kolb do kultur tkankowych (kolby T-75). Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) i wymieniać pożywkę zawierającą antybiotyk co 2 dni.
- Umieść 70 000 komórek z każdej kolonii na szklanych szkiełkach nakrywkowych (o średnicy 13 mm) i utrwal komórki, aby przeanalizować ekspresję powierzchni komórki i kolokalizację podjednostek GABAAR przez immunofluorescencję.
- Wybrać dodatni klon komórek HEK293 wykazujących wysoki poziom podjednostek α1 i β3 receptorów GABAA, umieścić 2 x 10⁶ komórek w sterylnym naczyniu do hodowli tkankowej o średnicy 10 cm i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) przez noc. Upewnij się, że komórki są przez cały czas inkubowane w pożywce zawierającej antybiotyki (G418 i fleomycyna D1).
- Następnego dnia transfekowane komórki HEK293 z podjednostką cDNA GABAAR γ2s w wektorze ekspresyjnym pcDNA™ 3.1 (+) zawierającym gen oporności na higromycynę B przy użyciu nieliposomalnego odczynnika do transfekcji lipidów (Tabela 1).
nuta: Ta metoda transfekcji pozwala na lepsze przeżycie i wyższą wydajność ekspresji obcych białek w wolno rosnących stabilnych liniach komórkowych, które są poddawane ciągłej selekcji antybiotykami. - W sterylnej probówce wirówkowej o pojemności 15 ml dodać 250 μl wzmacniacza i buforu kondensacyjnego DNA (Tabela 1) oraz 1,4 μg podjednostki cDNA receptora γ2s GABA. Dodaj 11,2 μl Enhancera i wiruj przez 1 sekundę przed pozostawieniem w temperaturze pokojowej na 5 minut.
- Dodać 35 μl nieliposomalnego odczynnika do transfekcji lipidów i wirować przez 10 sekund przed pozostawieniem w temperaturze pokojowej na 10 minut. Dodać 3 ml pożywki zawierającej G418/Phleomycynę D1 i dwukrotnie pipetować zawartość probówki wirówkowej w górę i w dół przed przeniesieniem jej kroplami na komórki rosnące na 10-centymetrowej płytce do hodowli tkankowej. Inkubować komórki przez 48 godzin w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ).
- Delikatnie przemyć komórki sterylnym PBS i rozcieńczyć je w nowych 10 cm szalkach do hodowli tkankowych w następujących proporcjach: 1:3, 1:5, 1:7, 1:10, 1:15 i 1:20.
- Rozpocznij selekcję komórek α1/β3-HEK293 wykazujących ekspresję podjednostki γ2s, dodając 800 μg/ml markera selekcji antybiotyków Hygromycyny B do pożywki zawierającej G418/fleomycynę D1. Stare podłoże należy wymieniać na świeże podłoże zawierające G418/Fleomycynę D1/Higromycynę B (10 ml) co 2 dni.
- Powtórzyć kroki 2.7-2.12, w ramach ciągłej selekcji w pożywce do hodowli komórkowych zawierających G418/Fleomycynę D1/Higromycynę B.
- Dodatnie klony należy przechowywać w temperaturze -140 °C w pożywce do hodowli komórkowych bez antybiotyków i 10% dimetylosulfotlenku (DMSO) do wykorzystania w przyszłości.
- Zbadaj poziom ekspresji podjednostek α1, β3 i γ2s GABAAR za pomocą immunoblottingu i immunofluorescencji w każdym klonie po rozmrożeniu, ponieważ ekspresja może się zmienić z powodu zmniejszonej przeżywalności komórek pod wpływem selekcji antybiotyków.
3. Utrzymanie linii komórkowych HEK293
- Rozmrozić fiolkę z komórkami kontrolnymi HEK293 lub komórkami wykazującymi ekspresję α1/β2/γ2-GABAARs (Tabela 1) lub α1/β3/γ2-GABAARs (opisanymi powyżej) w 10 ml pożywki do hodowli komórkowych w sterylnej probówce wirówkowej o pojemności 15 ml. Wirować przy 440 x g przez 5 minut, aby usunąć nadmiar DMSO.
- Usunąć supernatant i ponownie zawiesić komórki w 1 ml świeżej pożywki do hodowli komórkowych.
- Najpierw dodać 9 ml pożywki do hodowli komórkowych świeżej pożywki do 10 cm naczynia do hodowli tkankowej pokrytej poli-D-lizyną (0,1 mg/ml), a następnie 1 ml zawieszonych komórek. Mieszać delikatnie, z boku na bok, w celu rozproszenia komórek i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ).
- Następnego dnia odessać pożywkę, aby usunąć wszelkie resztki komórek i zastąpić ją 10 ml świeżej pożywki do hodowli komórkowych HEK293.
- Wybierz stabilne linie komórkowe z antybiotykami, aby usunąć wszelkie komórki, które nie wykazują ekspresji podjednostek GABA, A, R, a zatem nie mają również ekspresji markerów oporności na antybiotyki. W przypadku stabilnej linii komórkowej α1/β2/γ2 należy zastąpić normalną pożywkę pożywką ze świeżych komórek zawierającą G418 (800 μg/ml). W przypadku linii komórkowej α1/β3/γ2 należy zastąpić ją świeżą pożywką do hodowli komórkowych zawierającą G418 (800 μg/ml), fleomycynę D1 (800 μg/ml) i higromycynę B (800 μg/ml). ostrożność! G418 jest substancją drażniącą, a higromycyna B jest, toksyczna i drażniąca.
- Przenieść komórki do nowego naczynia do hodowli tkankowej poprzez wysiew o mniejszej gęstości, gdy osiągną one zlewność >70%. Odessać 10 ml pożywki do hodowli komórkowych i dwukrotnie krótko przemyć PBS o pH 7,4. Dodać 1 ml roztworu trypsyny-EDTA, roztwór proteazy trypsyny (0,05% trypsyny) i chelatora Ca2+ EDTA (0,02%) w PBS, pH 7,4, aby odłączyć komórki od naczynia. ostrożność! Roztwór trypsyny-EDTA działa drażniąco.
- Dodać 10 ml pożywki do hodowli komórkowych zawierającej odpowiednie antybiotyki do naczynia i odessać komórki. Odwirować komórki w temperaturze 440 x g przez 5 minut i ponownie zawiesić je w 5 ml pożywki do hodowli komórkowych.
- Przenieść komórki w rozcieńczeniu 1:10 do nowej kolby do hodowli tkankowej (kolby T-75) zawierającej świeżą pożywkę do hodowli komórkowych i odpowiednie antybiotyki. Inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) i wymieniać pożywkę co dwa dni. Przepuszczać komórki, gdy > zlewają się w 70 % (patrz krok 2.8).
4. Przygotowanie GABA-ergicznej hodowli średniego neuronu kolczastego
- W sterylnych warunkach przygotować 24-dołkową płytkę z szkiełkami nakrywkowymi pokrytymi poli-L-lizyną (0,1 mg/ml) (o średnicy 13 mm) i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5 % CO2 (inkubator CO2 ).
- Następnego dnia odessać pipetą nadmiar poli-L-lizyny i zmyć szkiełka nakrywkowe dwoma krótkimi 10-sekundowymi i dwoma 5-minutowymi płukaniami sterylną wodą. Dodać lamininę (0,01 mg/ml) przez noc i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ).
- Zdezynfekuj obszar sekcji 70% etanolem i zbierz szereg narzędzi preparacyjnych, takich jak zakrzywione i proste kleszcze do tkanek, nożyczki i pęsety, a następnie umieść w 70% etanolu, aby w pełni wysterylizować narzędzia preparacyjne.
- Ciężarną szczura/mysz poddaną eutanazji CO2 należy położyć na plecach i oczyść skórę na brzuchu 70% etanolem. Uszczypnij skórę pęsetą i przetnij wokół brzucha przez skórę, mięśnie i otrzewną, aby wyraźnie odsłonić narządy wewnętrzne i macicę z zarodkami. Pobrać zarodki (E16-17) z macicy i umieścić je na szalce Petriego ze schłodzonym PBS.
- Umieść zarodki w kapturze z przepływem laminarnym i odetnij im głowy, zbierając głowy na nowej szalce Petriego ze schłodzonym HBSS.
- Pod mikroskopem preparacyjnym wypreparuj mózgi za pomocą zakrzywionych i prostych kleszczy. Umieść mózgi na nowej szalce Petriego zawierającej schłodzony HBSS.
- Oddziel dwie półkule mózgowe i ostrożnie usuń opony mózgowe. Przetnij wzdłuż linii hipokampa i oderwij korę, aby odsłonić prążkowie. Obserwuj prążkowie jako prążkowaną białą strukturę w przedniej części półkuli.
- Rozciąć prążkowie i pokroić je na bardzo małe kawałki (o średnicy 1 - 2 mm) i za pomocą polerowanej ogniowo pipety Pasteura zebrać materiał do sterylnej probówki wirówkowej o pojemności 15 ml o całkowitej objętości 1 ml. Polerowanie ogniowe zapewnia, że materiał zostanie zebrany bez uszkodzenia.
- Za pomocą wypolerowanej na gorąco końcówki pipety Pasteura zassać komórki i uwolnić je 8 - 10 razy. Biorąc nową pipetę z końcówką do polerowania ogniotrwałego o długości około 30% jej pierwotnej średnicy (1 mm), rozcierać roztwór jeszcze 4 - 6 razy, aż stanie się jednorodny.
- Przefiltruj komórki za pomocą nylonowego sitka o średnicy 100 μm do świeżej sterylnej probówki wirówkowej.
- Policz komórki za pomocą hemocytometru i umieść 70 000 komórek w 500 μl pożywki do hodowli neuronalnej na dołek na 24-dołkowej płytce do hodowli tkankowej. Mieszać studzienki od lewej do prawej i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) przez 14 dni in vitro (DIV).
- Po 7 dniach sprawdź czystość kultur neuronalnych i, jeśli obecne są komórki glejowe, dodaj cytozynę β-D-arabinozyd (Ara-C; 5 μM) do studzienek, aby zatrzymać ich proliferację. W tym celu należy usunąć 250 μl pożywki do hodowli neuronów (pH 7,4) z każdej studzienki i dodać 250 μl świeżej pożywki zawierającej Ara-C. ostrożność! Ara-C działa drażniąco.
5. Przygotowanie do wspólnej kultury
- W 11 dniu hodowli neuronalnej pokryć 6-dołkową płytkę poli-D-lizyną (0,1 mg/ml) w sterylnych warunkach i inkubować przez noc w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2).
- Następnego dnia (12 dzień hodowli neuronalnej) odessać nadmiar poli-D-lizyny i przemyć studzienki 2x krótko i 2x przez 5 minut sterylną wodą przed dodaniem świeżej pożywki do hodowli komórkowych (bez antybiotyków) w celu pokrycia studzienek niewielką ilością surowicy z pożywki.
- Odessać pożywkę z kolby do hodowli tkankowej (T-75). Przepłukać komórki dwukrotnie PBS przed dodaniem 1 ml czynnika chelatującego Ca2+/Mg2+ EDTA (0,48 mM), który delikatnie i nieenzymatycznie dysocjuje komórki. Poruszyć komórki, aby oderwać je od dna kolby tkankowej.
- Dodać 10 ml pożywki do hodowli komórkowych (bez antybiotyków, ponieważ może to zakłócić transfekcję), odessać komórki i umieścić w sterylnej probówce wirówkowej. Granulki o gramaturze 440 x g przez 5 minut za pomocą wolnoobrotowej wirówki stołowej.
- Usunąć supernatant i ponownie zawiesić komórki w 1 ml świeżej pożywki do hodowli komórkowych. Za pomocą hemocytometru policz komórki i płytkę o gęstości 3 x 10⁵ komórek na dołek na płytce 6-dołkowej. Delikatnie mieszać i inkubować przez 24 godziny w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ).
- Następnego dnia (13 dzień hodowli neuronalnej) przejściowo transfekować komórki HEK293 cDNA mCherry w konstrukcie ekspresji pcDNA3 za pomocą odczynnika do transfekcji liposomalnej. Krótko mówiąc, do sterylnej probówki do mikrowirówki dodać 500 μl zredukowanej pożywki surowicy i 5 μg cDNA mCherry. Dodać 5 μl liposomalnego odczynnika buforowego i delikatnie wymieszać przed pozostawieniem w temperaturze pokojowej na 5 minut.
- Dodać 8,75 μl odczynnika do transfekcji liposomalnej i delikatnie wymieszać przed pozostawieniem w temperaturze pokojowej na 30 minut. Dwukrotnie pipetować zawartość probówki mikrowirówkowej w górę i w dół, przenieść kroplami do każdego dołka na 6-dołkowej płytce do hodowli tkankowej i inkubować w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2).
- Następnego dnia (14 dzień hodowli neuronalnej) odessać pożywkę do hodowli komórkowych HEK293 z każdej z 6 studzienek i przemyć każdą studzienkę dwa razy krótko PBS (pH 7,4). Dodać 300 μl Ca2+/Mg2+-czynnika chelatującego EDTA (0,48 mM) i 200 μl roztworu trypsyny-EDTA (0,02 - 0,48 mM) do każdej studzienki i inkubować w temperaturze 37 °С przez 5 min.
- Dodać 1 ml świeżej pożywki do hodowli komórkowych HEK293 do dołka (to wygasza trypsynę) i odessać oderwane komórki do sterylnej probówki wirówkowej o pojemności 15 ml. Odwirować komórki o sile 440 x g przez 5 minut w temperaturze pokojowej i usunąć supernatant. Zawiesić osad w 500 μl pożywki do hodowli neuronów (pH 7,4).
- Za pomocą hemocytometru policz komórki i nasiona o gęstości 30 000 komórek na studzienkę w 24-dołkowej płytce do hodowli tkankowej zawierającej neurony. Mieszać płytkę w celu rozproszenia komórek i inkubować kokultury w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2 ) przez 24 godziny.
6. Analiza kontaktów synaptycznych i ich aktywności
- Po 23 godzinach w kohodowli zbadaj tworzenie "aktywnych" kontaktów między średnimi neuronami kolczastymi GABA-ergiczne a komórkami HEK293 za pomocą zależnego od aktywności wychwytu przeciwciała specyficznego dla domeny luminalnej antysynaptotagminy sprzężonego z barwnikiem fluorescencyjnym (Cy5, patrz Tabela 1).
nuta: Przeciwciało uzyska dostęp do domeny świetlnej synaptotagminy, z którą wiąże się tylko wtedy, gdy istnieje ciągłość między światłem pęcherzyka synaptycznego a przestrzenią zewnątrzkomórkową. Dzieje się tak szczególnie podczas uwalniania neuroprzekaźników, co czyni to przeciwciało doskonałym markerem aktywnych zakończeń presynaptycznych. - Najpierw przepłukać kokultury pożywką neuronalną (pożywka Neurobasal A, pH 7,4; patrz Tabela 1) i dodać mysie przeciwciało antysynaptotagminne znakowane Cy5, rozcieńczone w stosunku 1:50 w pożywce neuronalnej (pożywka Neurobaseal A, pH 7,4), do kultur przez 30 minut. W tym czasie inkubować komórki w temperaturze 37 °С w wilgotnej atmosferze 5% CO2 (inkubator CO2).
- Aby usunąć dostęp przeciwciała, należy krótko przemyć kokultury trzy razy: najpierw zimnym normalnym PBS (pH 7,4), drugim zimnym PBS (pH 7,4) zawierającym 200 mM NaCl, a trzecim zimnym normalnym PBS (pH 7,4)
- Utrwalić komórki za pomocą 300 μl 4% paraformaldehydu/4% sacharozy w PBS (PFA, pH 7,4) przez 10 minut z mieszaniem. Umyj komórki krótko dwa razy PBS (pH 7,4), a następnie dwoma dłuższymi 10-minutowymi płukaniami.
- Dodać glicynę (0,3 M) do każdej studzienki na 10 minut z mieszaniem w celu ugaszenia PFA.
- Przemyć komórki krótko dwa razy PBS (pH 7,4), a następnie dwoma dłuższymi 10-minutowymi płukaniami przed dodaniem 300 μl roztworu blokującego (1% (w/v) albuminy surowicy bydlęcej (BSA) w PBS, pH 7,4) w celu zmniejszenia nieswoistego wiązania przeciwciał.
- Odessać roztwór blokujący i dodać przez noc przeciwciało anty-GABAAR-γ2 skierowane przeciwko N-końcowej domenie γ233 (1:3,000 w PBS, pH 7,4) w temperaturze 4 °С.
- Następnego dnia odessać pierwotne przeciwciało z dołków i krótko przemyć komórki dwa razy PBS, a następnie dwoma dłuższymi 10-minutowymi płukaniami.
- Przepuszczalność komórek za pomocą Triton X-100 (0,1%) w roztworze blokującym przez 30 minut w temperaturze pokojowej.
- Umyj komórki krótko dwa razy PBS (pH 7,4), a następnie dwoma dłuższymi 10-minutowymi płukaniami przed dodaniem mysiego przeciwciała dekarboksylazy kwasu antyglutaminowego () 65 (1:4 000, Tabela 1) lub mysiego przeciwciała anty-synapsyny I (1:1 000, Tabela 1) przez 120 minut w temperaturze pokojowej.
- Przemyć komórki krótko dwa razy PBS (pH 7,4), a następnie dwoma dłuższymi 10-minutowymi płukaniami, a następnie dodać roztwór blokujący na 30 minut w temperaturze pokojowej.
- Odwirować odpowiednie przeciwciała drugorzędowe (zazwyczaj kozie przeciwciała IgG przeciwko śwince morskiej sprzężone z Cy5, kozie przeciwciała anty-mysie IgG skoniugowane z Alexa Fluor 488 lub kozie przeciwciała anty-mysie IgG Alexa Fluor 405, wszystkie w stężeniu 2 μg/ml) w celu usunięcia agregatów przeciwciał przy 21,910 x g przez 10 minut i dodać przeciwciała (1:750) do roztworu blokującego. Nakładaj do odpowiednich studzienek na 1 godzinę i przykryj folią aluminiową, aby chronić fluorofory przed ekspozycją na światło i wynikającym z tego fotowybielaniem.
- Na koniec przemyj komórki krótko dwa razy PBS (pH 7,4), a następnie dwoma dłuższymi 10-minutowymi płukaniami w celu usunięcia wszelkich niezwiązanych przeciwciał drugorzędowych i zamontuj szkiełka nakrywkowe za pomocą odczynnika montażowego (Prolong Gold, Tabela 1) około 10 μl na szkiełko nakrywkowe. Odczekaj 24 godziny na ustawienie temperatury pokojowej, chroniąc przed światłem, przed przeniesieniem do 4 °С w celu długotrwałego przechowywania.
- Analizuj próbki za pomocą laserowego skaningowego mikroskopu konfokalnego z obiektywem olejowym 63X. Upewnij się, że poziom światła i wzmocnienie detektora są wyregulowane, aby uniknąć nasycenia.
- Obserwuj potencjalne kontakty podobne do synaps jako regiony kolokalizacji między zakończeniami presynaptycznymi dodatnimi dla GAD65, synapsyny I lub antysynaptotagminy znakowanej Cy5 a postsynaptoksycznymi komórkami HEK293 uwidocznionymi przez DIC lub przez wskaźnik fluorescencyjny mCherry.
- Policz potencjalne kontakty podobne do synaps za pomocą serii sekcji optycznych Z-stack (8 - 10) na głębokości 4 - 5 μm na komórkę za pomocą oprogramowania do obrazowania.
Wyniki
Protokół dla tego systemu modelu współhodowli komórek neuron-HEK293 został precyzyjnie dostrojony, aby umożliwić optymalne przetrwanie komórek. W tym systemie tworzenie kontaktów podobnych do synaps i ich analiza opiera się na stabilnej i spójnej ekspresji wszystkich trzech podjednostek GABA,A, R które łączą się w funkcjonalny receptor. Dlatego ważne jest, aby zastosować analizę immunocytochemiczną do zbadania ekspresji podjednostek na powierzchni komórki HEK293 przed dodaniem ich do kultur neuronalnych. W tych eksperymentach ekspresję powierzchniową komórki podjednostek α1, β2 i γ2 (Figura 1A) lub podjednostek α1, β3 i γ2 (Figura 1B) wykryto przy użyciu przeciwciał specyficznych dla podjednostek, które wiążą się z zewnątrzkomórkowymi epitopami tych podjednostek. Wykazano wysoki stopień kolokalizacji pomiędzy tymi podjednostkami na powierzchni HEK293.
Po potwierdzeniu ekspresji powierzchniowej i kolokalizacji podjednostek GABAAR w komórkach HEK293, przygotowano kokultury przy użyciu komórek HEK293 wyrażających podjednostki α1/β2/γ2 GABAAR i średnich neuronów kolczastych hodowanych przez 14 dni (14 dni in vitro (DIV)). Komórki w kohodowli inkubowano przez 24 godziny, utrwalano i analizowano za pomocą immunocytochemii i mikroskopii konfokalnej. Analiza kontaktów wykazała, że GAD65-dodatnie zakończenia aksonów GABAergiczne tworzyły tylko sporadyczne kontakty z kontrolnymi komórkami HEK293 (Figura 2A, 2B). Liczba kontaktów wykrytych po 4 godzinach wynosiła 7,3 ± 0,9 na komórkę HEK293, a liczba ta zmniejszyła się do 5,5 ± 0,5 połączeń (średnio ± SEM) na komórkę HEK293 po 24 godzinach po dodaniu komórek HEK293 do hodowanych neuronów. W przeciwieństwie do tego, GAD65-dodatnie zakończenia aksonów GABAergiczne tworzyły liczne kontakty podobne do synaps z komórkami HEK293 eksprymującymi GABAARs. Liczba kontaktów uzyskanych po 4 godzinach po dodaniu komórek HEK293 wynosiła 28,3 ± 4,7 na komórkę HEK293, a liczba ta została następnie zwiększona do 52,1 ± 6,3 (średnia ± SEM) na komórkę HEK293 po 24 godzinach w kohodowli (Figura 2A, 2B).
Aby ustalić, czy te podobne do synaps kontakty były 'aktywne', tj. wspierały uwalnianie przekaźnika pęcherzykowego, po 23 godzinach inkubacji do pożywki dodane zostało przeciwciało anty-synaptotagminne Cy5 specyficzne dla domeny pęcherzykowej. Przeciwciało to jest włączane do presynaptycznych zakończeń nerwowych tylko wtedy, gdy tworzy się por między światłem pęcherzyka synaptycznego a płynem zewnątrzkomórkowym w szczelinie synaptycznej podczas uwalniania neuroprzekaźnika. Po uwolnieniu por zamyka się, pozostawiając przeciwciało fluorescencyjne sprzężone z synaptotagminą Cy5 przyłączone do synaptotagminy wewnątrz pęcherzyka. W ten sposób tylko pęcherzyki aktywnie zaangażowane w uwalnianie neuroprzekaźników są znakowane przeciwciałem. W tych eksperymentach niewiele, jeśli w ogóle, kontaktów między kontrolnymi komórkami HEK293 a średnimi zakończeniami neuronów kolczastych było "aktywnych", o czym świadczy brak kolokalizacji między presynaptyczną fluorescencją GAD65 / synaptotagminy a fluorescencją mCherry w komórkach HEK293 (Figura 3A). W przeciwieństwie do tego, wiele "aktywnych" kontaktów powstało między średnimi zakończeniami neuronów kolczastych a komórkami HEK293 wykazującymi ekspresję α1 / β2 / γ2, co ujawnia wysoki stopień kolokalizacji między GAD65 / synaptotagminą a mCherry, wyrażany specyficznie w komórkach HEK293 (Figura 3B).
Aby sprawdzić, czy inny podtyp GABAAR może również promować tworzenie synaps in vitro, mamy wspólnie hodowane komórki α1/β3/γ2 z ekspresją HEK293 ze średnimi neuronami kolczastymi. Ponownie, kontrolne komórki HEK293 rzadko otrzymywały kontakty z zakończeniami presynaptycznymi dodatnimi synapsyną, osiągając 10,8 ± 0,48 (średnio ± SEM) kontaktów na komórkę HEK293 po 24 godzinach w kohodowli (Figura 4A po lewej, 4B). Jednak komórki HEK293 eksprymujące α1 / β3 / γ2 GABAARs tworzą znacznie więcej kontaktów podobnych do synaps z zakończeniami presynaptycznym dodatnich średnich neuronów kolczastych, osiągając 25,3 ± 0,27 (średnio ± SEM) kontaktów na komórkę HEK293 po 24 godzinach w kohodowli (Figura 4A po prawej, 4B). Oznacza to, że α1 / β3 / γ2GABA ARs wyrażane w komórkach HEK293 są również w stanie promować tworzenie kontaktu synaptycznego, chociaż ich siła działania jest niższa niż siła działania GABAARs zawierającego α1 / β2 / γ2.
Te eksperymenty wskazują, że opracowany w naszym laboratorium system modelowy kokultur pozwala na ilościową analizę powstawania kontaktów synaptycznych in vitro, jak również ocenę skuteczności różnych podtypów GABAARs w tym procesie. Eksperymenty te pokazują ponadto, że GABAARs, oprócz tego, że są krytycznymi funkcjonalnymi składnikami synaps GABA-ergicznych, mogą odgrywać kluczową rolę w procesie rozpoznawania i tworzenia kontaktów synaptycznych między neuronami hamującymi a odpowiednimi neuronalnymi komórkami docelowymi, niezależnie od innych synaptycznych białek adhezyjnych.

Rysunek 1. Immunocytochemiczna analiza ekspresji GABAAR α1/β2/γ2 lub α1/β3/γ2 w stabilnych liniach komórkowych HEK293. Przeciwciała rozpoznające domeny zewnątrzkomórkowe podjednostek GABAAR wykorzystano do znakowania receptorów wyrażanych na powierzchni komórki. (A) Linia komórkowa HEK293 wykazująca ekspresję α1 (Alexa Fluor 488), β2 (Alexa Fluor 555) i γ2 (Cy5) na wysokich poziomach. (B) Linia komórkowa HEK293 eksprymująca podjednostki α1 (Alexa Fluor 488), β2 (Alexa Fluor 555) i γ2 (Cy5) na wysokich poziomach. Podziałka: 10 μm. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.

Rysunek 2. Średnie neurony kolczaste GABA-ergiczne tworzą kontakty podobne do synaps z komórkami HEK293 wykazującymi ekspresję α1 / β2 / γ2 we wspólnej hodowli. (A) Fluorescencyjne znakowanie zakończeń presynaptycznych przeciwciałami anty-GAD65 (na zielono) i komórek HEK293 za pomocą mCherry (na czerwono, po lewej) lub podjednostce GABAAR γ2 (na niebiesko, po prawej), ujawniło punkty kolokalizacji między tymi markerami wskazujące na tworzenie kontaktów podobnych do synaps po 4 lub 24 godzinach w kohodowli. Pasek skali: 10 μm. (B) Analiza ilościowa kontaktów podobnych do synaps. Komórki HEK293 zidentyfikowano na podstawie ich kształtu ujawnionego przez obrazowanie DIC i / lub ekspresję mCherry, a liczbę kontaktów między dodatnim punktcem-65 (na zielono) a powierzchnią komórek HEK293 policzono na oko w każdej sekcji optycznej serii stosu Z (8 - 10) na komórkę za pomocą oprogramowania do obrazowania i wyrażono jako liczbę kontaktów / komórkę. Wykres przedstawia liczbę kontaktów między średnimi neuronami kolczastymi a komórkami kontrolnymi HEK293 (jasnoszarymi) lub komórkami α1/β2/γ2-HEK293 (czarnymi) po 4 i 24 godzinach we wspólnej hodowli (średnia ± SEM, n = 8 w każdym stanie z dwóch niezależnych eksperymentów). Rysunek ten został zmodyfikowany na podstawie Fuchs et al. (2013)30. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.

Rysunek 3. GABAARs sprzyjają tworzeniu aktywnych kontaktów synaptycznych. Znakowanie immunologiczne kontaktów podobnych do synaps utworzonych po 24 godzinach we wspólnej hodowli między średnimi zakończeniami neuronów kolczastych dodatnimi dla GAD65 (Alexa Fluor 405 cyjan) i (A) kontrolnych komórek HEK293 lub (B) komórek HEK293-α1 / β2 / γ2, oba przejściowo transfekowane konstruktem mCherry (czerwony). Aktywne kontakty są identyfikowane przez kolokalizację między przeciwciałem antysynaptotagminnym specyficznym dla domeny luminalnej pęcherzyka (Cy5) a przeciwciałem specyficznym dla GAD65 zarówno w zakończeniach presynaptycznych, jak i mCherry ulegającym ekspresji w komórkach HEK293. Podziałka skali: 10 μm. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
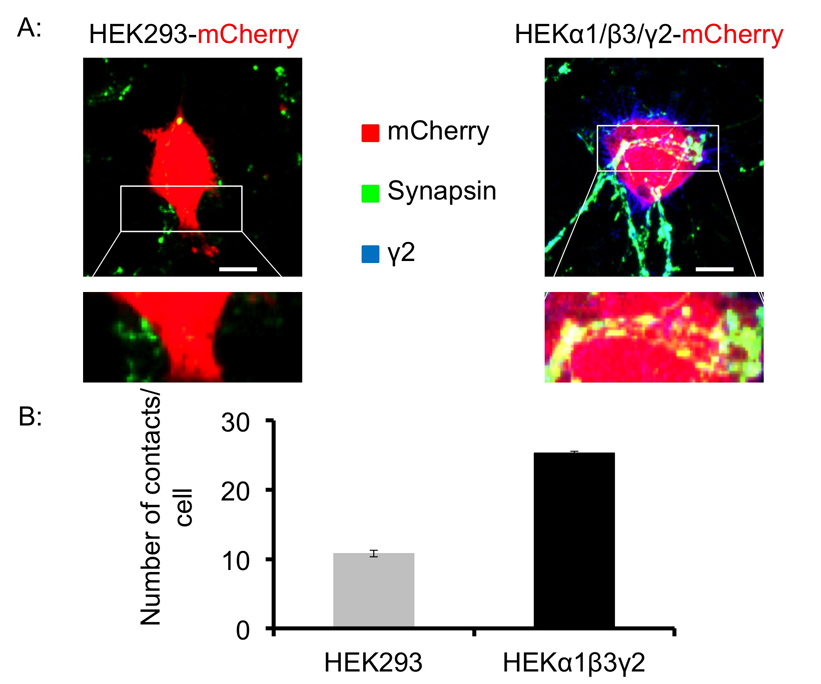
Rysunek 4. Średnie neurony kolczaste GABA-ergiczne tworzą kontakty podobne do synaps z podjednostką α1 / β3 / γ2- eksprymującą komórki HEK293 w kohodowli. (A) Fluorescencyjne znakowanie zakończeń presynaptycznych przeciwciałami anty-synapsyny I (na zielono) i kontrolnymi komórkami HEK293 (po lewej) lub komórkami HEK293 eksprymującymi α1 / β3 / γ2, obie przejściowo transfekowane mCherry (na czerwono), ujawniło punkty kolokalizacji między tymi markerami wskazujące na tworzenie kontaktów podobnych do synaps po 24 godzinach w kohodowli. Pasek skali: 10 μm. (B) Analiza ilościowa kontaktów podobnych do synaps. Komórki HEK293 zidentyfikowano na podstawie ekspresji mCherry, a liczbę kontaktów między punktą synapsyny I-dodatniej (na zielono) a powierzchnią komórek HEK293 policzono na oko w każdej sekcji optycznej serii stosu Z (8 - 10) na komórkę za pomocą oprogramowania do obrazowania i wyrażono jako liczbę kontaktów / komórkę. Wykres przedstawia liczbę kontaktów między średnimi neuronami kolczastymi a komórkami kontrolnymi HEK293 (jasnoszare) lub komórkami α1/β3/γ2-HEK293 (czarne) po 24 godzinach w kohodowli (średnia ± SEM, n = 8-12 komórek w każdym stanie, z dwóch niezależnych eksperymentów). Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
Dyskusja
Chociaż protokół ten nie jest technicznie trudny do wykonania, istnieje kilka krytycznych kroków, które należy wykonać, aby uzyskać najdokładniejsze i najbardziej powtarzalne testy współhodowli. Po pierwsze, hodowane średnie neurony kolczaste muszą być wysiewane w optymalnej gęstości. Jeśli neurony są wysiewane zbyt rzadko, mają tendencję do bardzo powolnego rozwoju, a przeżywalność jest znacznie zmniejszona. Z drugiej strony, jeśli neurony są zbyt gęsto rozsiane, mają tendencję do agregacji, co utrudnia analizę kontaktów z komórkami HEK293. Po drugie, zaleca się przejściową ekspresję fluorescencyjnego reportera, GFP lub mCherry w komórkach HEK293 stabilnie eksprymujących GABAARs, przed posiewem ich do kokultury. Pozwala to na niezawodne rozpoznawanie komórek HEK293, które mogą być zagrożone przez podobieństwo kształtu i wielkości między tymi komórkami a rzadkimi komórkami glejowymi, które przetrwały w kulturach neuronalnych. Aby osiągnąć wydajną transfekcję za pomocą GFP lub cDNA mCherry, linie komórkowe HEK293 muszą znajdować się w fazie wzrostu wykładniczego i być wysiewane w odpowiedniej gęstości na płytkach 6-dołkowych. Rzadkie wysiewanie, po którym następuje transfekcja, spowoduje, że komórki będą słabo rosły, podczas gdy nadmierne wysiewanie uniemożliwi komórkom pobieranie cDNA. Idealnie, komórki powinny być wysiane tak, aby w dniu transfekcji zlewały się w 70 - 90%. Po trzecie, transfekcja musi być zoptymalizowana dla każdej użytej linii komórkowej, ponieważ niektóre linie komórkowe są bardziej wrażliwe niż inne. Dzieje się tak, ponieważ konstytutywna ekspresja GABAAR w komórkach HEK293 zmniejsza przeżycie komórek i zdolność komórek do regeneracji po transfekcji. Co więcej, przeżycie zależy od rodzaju GABAARs wyrażonego w komórkach HEK293, przy czym niektóre linie komórkowe są znacznie bardziej wrażliwe niż inne. Transfekcja przy użyciu odczynnika liposomalnego jest optymalną metodą ekspresji obcych białek w szybko rosnących liniach komórkowych, zapewniając zarówno wysoką wydajność transfekcji, jak i poziom ekspresji. Jednak odczynnik ten powoduje zbyt duże uszkodzenia wolno rosnących linii komórkowych, do których regularnie używamy odczynnika do transfekcji nieliposomalnej. Działa to w podobny sposób jak odczynnik liposomalny, ale ilość DNA wymagana do skutecznej transfekcji jest znacznie zmniejszona. Pozwala to na większą przeżywalność komórek (około 80 - 90% w porównaniu z 60% przy użyciu odczynnika liposomalnego), ale przy niższej skuteczności transfekcji (60%). Wreszcie, należy zoptymalizować liczbę kontrolnych komórek eksprymujących HEK293 lub α1/β2/γ2 HEK293 dodanych do kultur neuronalnych. Dodanie zbyt małej liczby komórek zagraża udanej analizie kontaktów między komórkami HEK293 a neuronami, ponieważ stają się one bardzo rzadkie. I odwrotnie, dodanie zbyt wielu komórek HEK293 powoduje śmierć komórek neuronalnych w ciągu kilku godzin.
Hodowle embrionalnych średnich neuronów kolczastych najlepiej przygotować przy użyciu tkanki prążkowia wypreparowanej od 15 do 17 roku życia embrionalnego. Często jednak zdarza się, że zarodki są nieco młodsze lub starsze niż optymalny wiek. W takim przypadku liczba neuronów zasianych w kulturze będzie musiała być zróżnicowana. Tkanka młodsza niż E15 może wymagać wysiewu o nieco mniejszej gęstości, podczas gdy tkanka starsza niż E17 może wymagać wysiewu o większej gęstości, aby umożliwić optymalne przeżycie komórek. Ponadto arabinozyd cytozyny (Ara-C) może wymagać dodania do starszych kultur, aby zapobiec wzrostowi gleju, który jest bardziej obfity w starszych tkankach.
Podczas tworzenia kokultur ważne jest, aby uzyskać zoptymalizowaną liczbę transfekowanych komórek eksprymujących HEK293 lub α1/β2/γ2 HEK293, jak wspomniano powyżej. Jednak może być konieczne określenie tego dla każdej pojedynczej linii komórkowej ze względu na różnice w ich przeżyciu. Zazwyczaj 30 000 komórek w maksymalnej objętości 50 μl powinno być dodane do każdej studzienki 24-dołkowej płytki, która zawiera już 500 μl pożywki do hodowli neuronów, ponieważ zapewnia to, że kondycjonowane podłoże neuronalne nie jest zbyt rozcieńczone i że warunki w każdym dołku pozostają w miarę stałe, np. stężenie czynników wzrostu. Dodanie objętości większej niż 50 μl do każdego dołka na ogół zabija neurony.
Jedną z głównych wad techniki kohodowli jest to, że kultury neuronalne są tworzone z zdysocjowanych komórek hodowanych jako monowarstwa, co oznacza, że neurony zostały usunięte ze swojego normalnego mikrośrodowiska i nie są w stanie ustalić swojej normalnej organizacji anatomicznej. W związku z tym brakuje im odpowiednich połączeń, danych wejściowych i cząsteczek wydzielanych z innych komórek, które mogą wpływać na początkowe etapy rozwoju synaps. Na przykład in vivo średnie neurony kolczaste są gęsto unerwione przez glutaminergiczne dane wejściowe z kory, wzgórza i innych obszarów mózgu34, jednak w naszych kulturach neuronalnych synapsy glutaminergiczne nie powstają, ponieważ te wejścia są uszkadzane podczas rozwarstwiania tkanki prążkowia. W jaki sposób brak funkcjonalnych synaps glutaminergiczny w hodowanych średnich neuronach kolczastych wpływa na ich zdolność do tworzenia synaps GABA-ergicznych ze sobą i/lub komórkami HEK293 eksprymującymi GABAARs pozostaje kwestią otwartą. Na to pytanie można łatwo odpowiedzieć poprzez hodowlę średnich neuronów kolczastych wraz z korowymi neuronami glutaminergicznymi, umożliwiając im w ten sposób tworzenie funkcjonalnych synaps35 przed dodaniem komórek HEK293. Alternatywnym podejściem byłoby zaprojektowanie systemu modelowego współkultur opartego na organotypowych kulturach warstwowych, które zachowują część cytoarchitektury, która może być ważna dla dojrzewania i tworzenia synaps. Jednak organotypowe kultury plastrów mają gęsty i niejednorodny neuropil, który może zagrozić przeprowadzonej tutaj analizie. Inną ważną wadą stosowania testów kokulturowych jest to, że GABAARs wyrażany na powierzchni komórek HEK293 nie jest zgrupowany, jak w neuronach, chociaż wydaje się, że nie jest to konieczne do tworzenia synaps przy wystarczająco wysokiej ekspresji powierzchniowej30. Na przykład w mózgu gryzoni i w kulturach hipokampa podjednostka α1 GABAAR znajduje się w większości synaps GABA-ergicznych we wszystkich domenach postsynaptycznych komórek piramidowych. Jednak α2 jest specyficznie zlokalizowany w podzbiorze synaps na somatach i dendrytach, ale jest wysoce wzbogacony w początkowym segmencie aksonu, co ujawniono za pomocą immunofluorescencji i mikroskopii elektronowej36. Biorąc pod uwagę, że tworzenie synaps w kokulturach może być nadal wiarygodnie wykrywane i analizowane30, sugeruje to, że gęstość GABAARs na powierzchni komórek HEK293 może być podobna, a nawet wyższa niż gęstość tych receptorów w klastrach synaptycznych w neuronach. Może to wyjaśniać, przynajmniej częściowo, dlaczego synaptyczne białka adhezyjne, takie jak neuroligina, i białka o gęstości postsynaptycznej, takie jak gefiryna, nie są niezbędne do tworzenia synaps w kokulturach, jeśli odpowiednio złożone GABAAR są obecne w wystarczającej gęstości.
Jest dobrze udokumentowane, że GABAAR są strukturalnie i funkcjonalnie niejednorodne, a skład podjednostek receptora determinuje ich lokalizację subkomórkową i właściwości farmakologiczne. Na przykład, wiadomo, że włączenie 2 podjednostek jest warunkiem wstępnym synaptycznej lokalizacji GABAARs, podczas gdy podjednostka jest prawie wyłącznie obecna w pozasynaptycznym GABAARs. Uważa się również, że receptory, które zawierają tylko kombinacje αβ, są głównie zlokalizowane w domenach pozasynaptycznych12-14. To, czy ta specyficzność jest utrzymywana w naszym systemie kohodowli, można łatwo sprawdzić, przejściowo transfekując 2 lub podjednostki cDNA do linii komórkowych HEK293 stabilnie eksprymujących α i β podjednostek, przed dodaniem ich do kultur neuronalnych. Nasze wstępne eksperymenty z zastosowaniem tego podejścia sugerowały, że kontakty synaptyczne są łatwo tworzone tylko w obecności podjednostki 2, co wskazuje, że swoistość obserwowana in vivo prawdopodobnie zostanie zachowana in vitro (dane nie pokazane).
Co więcej, GABAARs zawierające różne podjednostki α są selektywnie zlokalizowane w kontaktach synaptycznych utworzonych z określonymi typami neuronów presynaptycznych. Na przykład w gałki bladej α1-GABAARs zwykle znajdują się w synapsach prążkowiowo-pallidalnych (str-GP) i palliopallidalnych (GP-GP), które znajdują się odpowiednio na dendrytach i regionach somatycznych średnich neuronów kolczastych. α3-GABAAR znajdują się w regionach perysomatycznych średnich neuronów kolczastych i kontaktują się z lokalnymi pobocznymi aksonami GP, podczas gdy α2-GABAARs znajdują się na dystalnych dendrytach tych neuronów i kontaktują się głównie przez dane wejściowe z prążkowia32. Ekspresję specyficznych podjednostek α w różnych typach synaps i w różnych przedziałach neuronalnych wykazano również w innych obszarach mózgu, takich jak hipokamp21 i kora nowa18,20. Odkrycia te rodzą pytanie, w jaki sposób w mózgu powstają specyficzne synapsy hamujące. Czy adhezja określonego typu zakończenia presynaptycznego indukuje wprowadzenie określonych podtypów GABAAR do punktów kontaktu? Czy receptory są transportowane do określonych lokalizacji subkomórkowych zgodnie ze składem ich podjednostek, gdzie ich insercja do błony plazmatycznej jest warunkiem wstępnym adhezji zakończeń aksonalnych określonego pochodzenia? Do dziś pytania te pozostają bez odpowiedzi. Zastosowanie zredukowanych systemów modelowych, takich jak system modelu kohodowli, pozwala nam zacząć odpowiadać na te złożone pytania, ponieważ system jest łatwo podatny na transfekcję konstruktów DNA i zastosowanie odczynników i, co ważne, nadaje się do analizy obrazowania żywych komórek30. Tak więc, korzystając z tego systemu modelowego, możemy zacząć testować rolę poszczególnych cząsteczek, w tym różnych typów GABAARs, o których wiadomo, że są obecne w kontaktach synaptycznych. Kolejną zaletą jest to, że synapsy w tym systemie modelowym tworzą się szybko, w ciągu kilku minut do godzin, co skraca czas trwania eksperymentów. Podobne systemy modelowe współhodowli zostały z powodzeniem wykorzystane w przeszłości do badań przesiewowych pod kątem nowych cząsteczek synaptogennych27,37,38.
Zrozumienie, w jaki sposób ośrodkowy układ nerwowy rozwija się, dojrzewa i tworzy połączenia między neuronami tak misternie, aby kontrolować, na przykład, zachowanie lub poznanie, ma fundamentalne znaczenie. Ten odległy cel zostanie osiągnięty jedynie poprzez nakreślenie mechanizmów molekularnych, które rządzą poszczególnymi etapami rozpoznawania i komunikacji międzykomórkowej podczas rozwoju. Ze względu na ogromną złożoność, szczegóły molekularne tych wielorakich interakcji komórkowych mogą być obecnie badane z precyzją tylko w zredukowanych systemach. Jednak zdolność do zwiększania złożoności tych systemów poprzez ekspresję wielu kombinacji białek i badanie ich interakcji ma pewne zalety w porównaniu z, na przykład, podejściami do delecji genetycznej. Dzieje się tak dlatego, że dokładna interpretacja skutków delecji pojedynczego genu jest często zagrożona przez zmiany związane z mechanizmami kompensacyjnymi maskującymi skutki pierwotnych zmian, szczególnie w rozwijającym się mózgu. Opisana tutaj prosta, ale pouczająca technika współhodowli pozwoliła na odkrycie strukturalnej roli GABAARs w tworzeniu synaps i otworzyła możliwość zbadania, w jaki sposób GABAA, Rs i inne cząsteczki adhezyjne komórek i/lub białka macierzy synaptycznej oddziałują ze sobą podczas synaptogenezy. Białka macierzy synaptycznej są szczególnie interesujące, biorąc pod uwagę, że niedawno wykazano, że odgrywają kluczową rolę w tworzeniu synaps glutaminergicznych39. Dalszy rozwój modeli współkultur jest ważny, ponieważ mają one potencjał, aby poszerzyć naszą wiedzę na temat mechanizmów molekularnych, które kierują "normalnym" rozwojem mózgu, a tym samym zwiększyć naszą wiedzę na temat tego, w jaki sposób mechanizmy te są zmieniane w wielu chorobach neurorozwojowych, takich jak padaczka, schizofrenia, zaburzenia ze spektrum autyzmu i wiele innych.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Chcielibyśmy podziękować za wsparcie finansowe ze strony MRC UK (G0800498). Chcielibyśmy również podziękować profesorowi J-M Fritschy z Uniwersytetu w Zurychu za dostarczenie przeciwciała γ2 swoistego dla podjednostki GABAA-R oraz profesorowi R. Harveyowi z UCL School of Pharmacy za dostarczenie wektorów ekspresyjnych pcDNA 3.1 (+) zawierających geny oporności na antybiotyki do produkcji stabilnie transfekowanych linii komórkowych HEK293.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM (Dulbecco's Modified Eagle Medium) | Life Technologies | 11960-044 | Ciepła kąpiel wodna w temperaturze 37 &; C przed użyciem |
| L-Glutamina | Life Technologies | 25030-024 | |
| Penicylina/Streptomycyna | Life Technologies | 15070-063 | Niebezpieczeństwo: drażniące |
| FBS (płodowa surowica bydlęca) | Life Technologies | 10106-169 | |
| Neuralbasal | Life Technologies | 21103-049 | Ciepła kąpiel wodna w temperaturze 37 &; C przed użyciem |
| B27 Suplement | Life Technologies | 17504-044 | |
| Glukoza | Sigma-Aldrich | G8769 | |
| HBSS (10X) | Life Technologies | 14180-046 | |
| HEPES (1M) | Life Technologies | 15630-056 | |
| PBS (1X) | Life Technologies | 10010-031 | |
| pcDNA 3.1(+) Wektor ekspresyjny ssaków (selekcja genetycyna) | Life Technologies | V790-20 | |
| pcDNA 3.1(+) Wektor ekspresji ssaków (selekcja zeocyny) | Life Technologies | V860-20 | |
| pcDNA 3.1(+) Wektor ekspresyjny ssaków (selekcja higromycyny) | Life Technologies | V870-20 | |
| Stabilny HEK i alfa; 1β 2γ 2 linia | Sanofi-Synthelabo, Paryż | ||
| Poli-D-lizyna | Sigma-Aldrich | P1149 | |
| G418 sól dwusiarczanowa (Geneticin) | Sigma-Aldrich | G5013 | Niebezpieczeństwo: drażniące |
| Fleomycyna D1 (Zeocyna) | Life Technologies | R25001 | |
| Hygromycyna B | Life Technologies | 10687-010 | Niebezpieczeństwo: toksyczne, drażniące i |
| Trypsin-EDTA | Life Technologies | 25300-054 | Ciepła kąpiel wodna w temperaturze 37 & stopni; C przed użyciem. Niebezpieczeństwo: drażniące. |
| Poli-L-lizyna | Sigma-Aldrich | P6282 | |
| Laminin | Sigma-Aldrich | L2020 | |
| 100 μ m Nylonowy filtr siatkowy | VWR | 734-0004 | |
| Cytozyna β-D-arabinofuranozyd (Ara-C) | Sigma-Aldrich | C1768 | Niebezpieczeństwo: drażniący |
| czynnik chelatujący (Versene) | Life Technologies | 15040-033 | |
| Odczynnik do transfekcji liposomalnej (Lipofectamina LTX) z odczynnikiem buforującym do transfekcji liposomalnej (odczynnik PLUS). | Life Technologies | 15338-100 | Alternatywna metoda transfekcji: Odczynnik Effectene |
| Odczynnik do transfekcji nieliposomalnej (odczynnik Effectene) | Qiagen | 301425 | |
| Zredukowana pożywka surowicy (Opti-MEM) | Life Technologies | 11058-021 | |
| Mysie przeciwciało anty-Synaptotagmin sprzężone z układami synaptycznymi Cy5 | 105311C5 | ||
| Neurobaseal A | Life Technologies | 10888-022 | |
| Chlorek sodu (NaCl) | VWR | 27810.364 | |
| Glicyna | Sigma-Aldrich | G1726 | |
| BSA (albumina surowicy bydlęcej) | Sigma-Aldrich | A3294 | |
| Anty-&gamma świnki morskiej; 2 Przeciwciało receptora GABAA | Prof. Jean Marc Fritschy | N/A | (Instytut w Zurychu, Szwajcaria) Fritschy, JM i Mohler, H. J. Comp. Neurol. 359 (1), 154-194 (1995). |
| Triton X-100 | Promega | H5141 | |
| Mysie przeciwciało antyglutaminianu dekarboksylazy ()65 | Merck Millipore | MAB351 | |
| Mysie przeciwciało antysynapsynowe Synaptic | Systems | 106-011 | |
| Mysie przeciwciało anty-β Przeciwciało 2/3 (BD17) | Merck Millipore | MAB341 | |
| Królik anty-&alfa; 1 przeciwciało receptora GABAA | Profesor Anne Stephenson | N/A | (UCL School of Pharmacy, Londyn) FA Stephenson et al. J. Comp. Neurol. 416 (2), 158-172 |
| Kozia świnka morska skoniugowana z przeciwciałem Cy5 | Merck Millipore | AP1085 | |
| Kozia przeciwciało anty-mysie Alexa Fluor 488 | Merck Millipore | AP124S | |
| Kozie przeciwciało anty-mysie Alexa Fluor 405 | Life Technologies | A31553 | |
| Kozie przeciwciało anty-mysie Alexa Fluor 555 | Life Technologies | A21422 | |
| Kozie przeciwciało anty-królicze Alexa Fluor 488 | Life Technologies | A11008 | |
| Odczynnik montażowy (Prolong Gold) | Life Technologies | P36930 | Stosować w temperaturze pokojowej |
Bibliografia
- Wang, D. D., Kriegstein, A. R. Defining the role of GABA in cortical development. J Physiol. 587, 1873-1879 (2009).
- Ben-Ari, Y., Khalilov, I., Kahle, K. T., Cherubini, E. The GABA excitatory/inhibitory shift in brain maturation and neurological disorders. The Neuroscientist : a review journal bringing neurobiology, neurology and psychiatry. 18, 467-486 (2012).
- Structure Sieghart, W. pharmacology, and function of GABAA receptor subtypes. Adv Pharmacol. 54, 231-263 (2006).
- Unwin, N. Neurotransmitter action: opening of ligand-gated ion channels. Cell. 72, 31-41 (1993).
- Homanics, G. E., et al. Mice devoid of gamma-aminobutyrate type A receptor beta3 subunit have epilepsy, cleft palate, and hypersensitive behavior. Proceedings of the National Academy of Sciences of the United States of America. 94, 4143-4148 (1997).
- Gunther, U., et al. Benzodiazepine-insensitive mice generated by targeted disruption of the gamma 2 subunit gene of gamma-aminobutyric acid type A receptors. Proceedings of the National Academy of Sciences of the United States of America. 92, 7749-7753 (1995).
- Mohler, H. GABA(A) receptor diversity and pharmacology. Cell Tissue Res. 326, 505-516 (2006).
- Low, K., et al. Molecular and neuronal substrate for the selective attenuation of anxiety. Science. 290, 131-134 (2000).
- Rudolph, U., et al. Benzodiazepine actions mediated by specific gamma-aminobutyric acid(A) receptor subtypes. Nature. 401, 796-800 (1999).
- Rudolph, U., Knoflach, F. Beyond classical benzodiazepines: novel therapeutic potential of GABAA receptor subtypes. Nat Rev Drug Discov. 10, 685-697 (2011).
- Hulst, C., Atack, J. R., Kooy, R. F. The complexity of the GABAA receptor shapes unique pharmacological profiles. Drug Discov Today. 14, 866-875 (2009).
- Essrich, C., Lorez, M., Benson, J. A., Fritschy, J. M., Luscher, B. Postsynaptic clustering of major GABAA receptor subtypes requires the gamma 2 subunit and gephyrin. Nat Neurosci. 1, 563-571 (1998).
- Schweizer, C., et al. The gamma 2 subunit of GABA(A) receptors is required for maintenance of receptors at mature synapses. Mol Cell Neurosci. 24, 442-450 (2003).
- Belelli, D., et al. Extrasynaptic GABAA receptors: form, pharmacology, and function. The Journal of neuroscience : the official journal of the Society for Neuroscience. 29, 12757-12763 (2009).
- Connolly, C. N., Wooltorton, J. R., Smart, T. G., Moss, S. J. Subcellular localization of gamma-aminobutyric acid type A receptors is determined by receptor beta subunits. Proceedings of the National Academy of Sciences of the United States of America. 93, 9899-9904 (1996).
- Connolly, C. N., Krishek, B. J., McDonald, B. J., Smart, T. G., Moss, S. J. Assembly and cell surface expression of heteromeric and homomeric gamma-aminobutyric acid type A receptors. J Biol Chem. 271, 89-96 (1996).
- Klausberger, T., Roberts, J. D., Somogyi, P. Cell type- and input-specific differences in the number and subtypes of synaptic GABA(A) receptors in the hippocampus. The Journal of neuroscience : the official journal of the Society for Neuroscience. 22, 2513-2521 (2002).
- Thomson, A. M., Jovanovic, J. N. Mechanisms underlying synapse-specific clustering of GABA(A) receptors. Eur J Neurosci. 31, 2193-2203 (2010).
- Fritschy, J. M., Panzanelli, P., Tyagarajan, S. K. Molecular and functional heterogeneity of GABAergic synapses. Cell Mol Life Sci. 69, 2485-2499 (2012).
- Ali, A. B., Thomson, A. M. Synaptic alpha 5 subunit-containing GABAA receptors mediate IPSPs elicited by dendrite-preferring cells in rat neocortex. Cereb Cortex. 18, 1260-1271 (2008).
- Thomson, A. M., Bannister, A. P., Hughes, D. I., Pawelzik, H. Differential sensitivity to Zolpidem of IPSPs activated by morphologically identified CA1 interneurons in slices of rat hippocampus. Eur J Neurosci. 12, 425-436 (2000).
- Nyiri, G., Freund, T. F., Somogyi, P. Input-dependent synaptic targeting of alpha(2)-subunit-containing GABA(A) receptors in synapses of hippocampal pyramidal cells of the rat. Eur J Neurosci. 13, 428-442 (2001).
- Treutlein, B., Gokce, O., Quake, S. R., Sudhof, T. C. Cartography of neurexin alternative splicing mapped by single-molecule long-read mRNA sequencing. Proceedings of the National Academy of Sciences of the United States of America. 111, 1291-1299 (2014).
- Siddiqui, T. J., Craig, A. M. Synaptic organizing complexes. Current opinion in neurobiology. 21, 132-143 (2011).
- Tanaka, H., et al. Higher-order architecture of cell adhesion mediated by polymorphic synaptic adhesion molecules neurexin and neuroligin. Cell reports. 2, 101-110 (2012).
- Krueger, D. D., Tuffy, L. P., Papadopoulos, T., Brose, N. The role of neurexins and neuroligins in the formation, maturation, and function of vertebrate synapses. Current opinion in neurobiology. 22, 412-422 (2012).
- Scheiffele, P., Fan, J., Choih, J., Fetter, R., Serafini, T. Neuroligin expressed in nonneuronal cells triggers presynaptic development in contacting axons. Cell. 101, 657-669 (2000).
- Graf, E. R., Zhang, X., Jin, S. X., Linhoff, M. W., Craig, A. M. Neurexins induce differentiation of GABA and glutamate postsynaptic specializations via neuroligins. Cell. 119, 1013-1026 (2004).
- Dong, N., Qi, J., Chen, G. Molecular reconstitution of functional GABAergic synapses with expression of neuroligin-2 and GABAA receptors. Mol Cell Neurosci. 35, 14-23 (2007).
- Fuchs, C., et al. GABA(A) receptors can initiate the formation of functional inhibitory GABAergic synapses. Eur J Neurosci. 38, 3146-3158 (2013).
- Ventimiglia, R., Lindsay, R. Culturing nerve cells: Rat striatal neurons in low-density, serum-free culture. , 2nd edn, MIT Press. 371-393 (1998).
- Gross, A., et al. Differential localization of GABA(A) receptor subunits in relation to rat striatopallidal and pallidopallidal synapses. Eur J Neurosci. 33, 868-878 (2011).
- Fritschy, J. M., Mohler, H. GABAA-receptor heterogeneity in the adult rat brain: differential regional and cellular distribution of seven major subunits. J Comp Neurol. 359, 154-194 (1995).
- Doig, N. M., Moss, J., Bolam, J. P. Cortical and thalamic innervation of direct and indirect pathway medium-sized spiny neurons in mouse striatum. The Journal of neuroscience : the official journal of the Society for Neuroscience. 30, 14610-14618 (2010).
- Lalchandani, R. R., Vicini, S. Inhibitory collaterals in genetically identified medium spiny neurons in mouse primary corticostriatal cultures. Physiological reports. 1, (2013).
- Nusser, Z., Sieghart, W., Benke, D., Fritschy, J. M., Somogyi, P. Differential synaptic localization of two major gamma-aminobutyric acid type A receptor alpha subunits on hippocampal pyramidal cells. Proceedings of the National Academy of Sciences of the United States of America. 93, 11939-11944 (1996).
- Linhoff, M. W., et al. An unbiased expression screen for synaptogenic proteins identifies the LRRTM protein family as synaptic organizers. Neuron. 61, 734-749 (2009).
- Pettem, K. L., Yokomaku, D., Takahashi, H., Ge, Y., Craig, A. M. Interaction between autism-linked MDGAs and neuroligins suppresses inhibitory synapse development. J Cell Biol. 200, 321-336 (2013).
- Wit, J., et al. Unbiased discovery of glypican as a receptor for LRRTM4 in regulating excitatory synapse development. Neuron. 79, 696-711 (2013).
Przedruki i uprawnienia
