Obecne badanie opisuje rozwój i zastosowania genetycznie modyfikowanego systemu testowego opartego na transfekcji komórek białaczki bazofilnej szczurów z genem FcεRIα konia. Transfekowane komórki wyrażają funkcjonalny receptor, w którym uwalnianie mediatorów odpowiedzi alergicznej może być aktywowane przez IgE i antygen.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Opracowanie systemu modelowego in vitro do badania interakcji Equus caballus IgE z jego receptorem o wysokim powinowactwie FcεRI
W tym artykule
Podsumowanie
Streszczenie
Interakcja IgE z jego receptorem Fc o wysokim powinowactwie (FcεRI), po której następuje prowokacja antygenowa, jest główną ścieżką w reakcjach alergicznych zależnych od IgE. W wyniku wysokiego powinowactwa wiązania między IgE i FcεRI, wraz z ciągłym wytwarzaniem IgE przez limfocyty B, alergie zwykle utrzymują się przez całe życie, a obecnie nie ma trwałego lekarstwa. Konie, zwłaszcza konie wyścigowe, które są powszechnie wsobne, to gatunek ssaków, który jest bardzo podatny na rozwój reakcji nadwrażliwości, co może poważnie wpłynąć na ich wydajność. Fizjologiczne reakcje na uczulenie alergiczne u koni odzwierciedlają reakcje obserwowane u ludzi i psów. W niniejszej pracy opisano rozwój systemu testów in situ do ilościowej oceny uwalniania mediatorów odpowiedzi alergicznej odnoszącej się do układu koniowatych. W tym celu gen kodujący końskie FcεRIα został transfekowany i poddany ekspresji na powierzchni rodzicielskich komórek białaczki bazofilowej szczura (RBL-2H3.1). Produkt genu transfekowanego łańcucha α koni utworzył funkcjonalny kompleks receptorowy z endogennymi łańcuchami β i γ szczura 1. Powstały w ten sposób system testowy ułatwił ocenę ilości mediatora wydzielanego z transfekowanych komórek RBL-2H3.1 koni transfekowanych FcεRIα po uczuleniu na IgE koni i prowokacji antygenowej przy użyciu uwalniania β-heksozaminidazy jako odczytu 2, 3. Uwalnianie mediatora osiągnęło szczyt na poziomie 36,68% ± 4,88% przy 100 ng ml-1 antygenu. Test ten został zmodyfikowany w stosunku do poprzednich testów stosowanych do badania reakcji alergicznych ludzi i psów 4, 5. Wykazaliśmy również, że ten rodzaj systemu testowego ma wiele zastosowań w opracowywaniu narzędzi diagnostycznych i ocenie bezpieczeństwa potencjalnych strategii interwencji terapeutycznej w chorobach alergicznych 6, 2, 3.
Wprowadzenie
Alergia jest znana od tysiącleci. Leczenie astmy zostało opisane w starożytnym egipskim tekście medycznym znanym jako papirus Ebersa (~1550 p.n.e.) i omówiono ziołowe środki lecznicze do jej leczenia 7.
Dzisiaj alergia jest klasyfikowana jako reakcja nadwrażliwości typu I, gdzie ramię układu odpornościowego limfocytu T pomocniczego typu 2 (TH2) steruje produkcją przeciwciał immunoglobuliny E (IgE) w odpowiedzi na antygeny środowiskowe zwane alergenami. Są to różnorodne substancje, które często wchodzą w interakcje z komórkami układu odpornościowego i stymulują syntezę i wydzielanie cytokin prozapalnych, w tym interleukiny-4 i interleukiny-13 8, 9, podobnie jak cząsteczki dymu papierosowego lub cząstek spalin z silników wysokoprężnych, które zwiększają syntezę IgE 10.
Wzrost objawów alergicznych w krajach uprzemysłowionych w ciągu ostatnich 50 lat został przypisany połączeniu efektu zanieczyszczeń środowiska i tendencji do bardziej oczyszczonego środowiska, które razem przesuwają odpowiedź immunologiczną w kierunku profilu zdominowanego przez cytokiny TH2, jak proponuje 'Hipoteza Higieny' 11.
Jak wspomniano powyżej, ludzie nie są jedynymi ssakami dotkniętymi alergią. Warto zauważyć, że konie i psy mogą również rozwijać klasyczne reakcje alergiczne, a badanie przeprowadzone przez 12 wykazało, że podobnie jak u ludzi, alergia na konie jest przypisywana czynnikom genetycznym i środowiskowym. W związku z tym zwierzęta te stanowią dobre modele do badania wzajemnych oddziaływań między genetycznymi i środowiskowymi przyczynami alergii, jej progresji od uczulenia do choroby oraz możliwych strategii interwencyjnych po wystąpieniu objawów klinicznych
W 1887 roku Stömmer był pierwszą osobą, która opisała podobieństwo między astmą ludzką i końską 13, wpływ histaminy na układ sercowo-naczyniowy koni jest bardzo podobny do wpływu na ludzki układ krążenia 14. Konie są również kamieniem węgielnym branży wyścigów konnych, która jest warta 72 miliardy dolarów, a obroty zakładami wynoszą 115 miliardów dolarów rocznie 15.
Większość współczesnych koni wyścigowych to potomkowie niewielkiej liczby koni arabskich hodowanych przez Lady Anne Blunt od 1878 roku. Współczesne konie wyścigowe są powszechnie hodowane wsobnie w celu selekcji pod kątem zdolności wydajnościowych. Są podatne na zaburzenia genetyczne, z których jedną jest podatność na narastanie reakcji alergicznych. Mają również 1000 razy wyższy poziom IgE w surowicy niż nawet najciężej uczuleni ludzie16. Reakcje alergiczne koni objawiają się zwykle nadwrażliwością na ukąszenia owadów (IBH) 17, 18. IBH powoduje zapalenie skóry z powodu ukąszeń owadów z rodzaju Culicoides. Inną formą choroby alergicznej koni jest nawracająca niedrożność dróg oddechowych (RAO), która objawia się w płucach i drogach oddechowych. Charakteryzuje się świszczącym oddechem i utrudnionym oddechem. RAO często występuje w odpowiedzi na zarodniki pleśni, a wysokie poziomy IgE specyficzne dla alergenu odnotowano u koni cierpiących na RAO w jednym z badań 19, chociaż inne badanie tego nie potwierdziło 20.
Badania nad alergią koni koncentrowały się na próbie monitorowania i neutralizacji IgE koni poprzez opracowanie przeciwciał monoklonalnych anty-końskich IgE (mAbs) 21, 22. Ponadto w badaniu przeprowadzonym przez 23 omówiono wytwarzanie domen zewnątrzkomórkowych receptora łańcucha α receptora Fc o wysokim powinowactwie (FcεRIα) w celu wykrycia i ilościowego określenia IgE w surowicy koni. Powiązane badanie przeprowadzone przez Ledin24 omawia nowe podejście mające na celu neutralizację IgE w surowicy poprzez pobudzanie układu odpornościowego za pomocą immunogenu własnego/niewłasnego. We wszystkich tych badaniach brakowało jednak skutecznego testu, który przetestowałby bezpieczeństwo i skuteczność ich protokołów. W niniejszym artykule przedstawiamy teraz taki system testowy mający zastosowanie w badaniu strategii diagnostycznych i terapeutycznych istotnych dla układu koniowatych, w którym na komórkach RBL-2H3.1 wykazujących ekspresję FcεRIα oceniano uwalnianie β-heksozaminidazy, jako wskaźnika degranulacji mediatora komórkowego. Protokół ten opiera się na wcześniejszych publikacjach 25, 4, 5, 2, 3 opisujących inżynierię komórek RBL transfekowanych genem kodującym domenę wiążącą IgE receptora o wysokim powinowactwie do IgE różnych gatunków. Protokół wyjaśnia, jak przeprowadzić test uwalniania β-heksozaminidazy, którego wyniki przedstawiono jako średnią ± odchylenie standardowe z potrójnych eksperymentów.
Test uwalniania został po raz pierwszy opracowany przez Siraganian i Hook 25 do badania alergii u ludzi. Grupa laboratoryjna kierowana przez dr Reubena Siraganiana opracowała również linię komórkową RBL. Te komórki RBL zostały opracowane w celu ekspresji ludzkiego FcεRIα, a protokół został opublikowany przez 4. Ostatnim elementem testu było opracowanie plazmidu pSV w artykule Neuberger 26, który opisał wytwarzanie przeciwciał IgE poprzez klonowanie genu łańcucha ciężkiego poniżej genu myszy dla regionu zmiennego IgE, który jest ukierunkowany na hapten 4-hydroksy-3-nitro-fenacetyl (NP), powstałe przeciwciało chimeryczne było w pełni funkcjonalne. Zdolność do opracowania dowolnej IgE ukierunkowanej na ten sam hapten, przy jednoczesnym klonowaniu jego receptora na powierzchni komórek RBL, zaowocowała standaryzacją testu, dzięki czemu jest on użytecznym protokołem do pomiaru degranulacji komórek bazofilowych.
Test ma swoje plusy i minusy. Zaletą testu jest jego zdolność adaptacji do stosowania w dowolnym systemie ssaków, nasze laboratorium wykorzystało go zatem do testowania degranulacji w systemach ludzkich, psich i konnych, a jest to osiągalne po prostu poprzez syntezę IgE organizmu i klonowanie jego receptora na powierzchni komórek RBL.
Z drugiej strony, wadą testu jest to, że komórki RBL są bardzo wrażliwe na zmiany termiczne, mechaniczne i pH, co sprawia, że dają różne poziomy degranulacji w ramach tego samego testu. W związku z tym zdecydowanie zaleca się, aby testy były zawsze powtarzane w trzech egzemplarzach, a następnie pobierana była z nich średnia. Co więcej, komórki RBL mają tendencję do przesuwania się w kierunku fenotypu nieuwalniającego, jeśli są pozostawione w hodowli tkankowej przez dłuższy czas (>10 tygodni) 27, co sprawia, że ich utrzymanie jest uciążliwe. Są również podatne na infekcje bakteriami mykoplazmowymi, które nie są widoczne pod mikroskopem świetlnym i nie zmieniają morfologii komórki, ale drastycznie zmieniają jej poziom degranulacji. W związku z tym konieczne są regularne badania na obecność mykoplazmy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1) Przygotowanie linii komórkowej:
- Opracowanie linii komórkowej RBL-2H3.1 wykazującej ekspresję konnego FcεRIα:
- Stosując podstawowe techniki hodowli tkankowych dla linii komórkowych monowarstwowych, należy przeprowadzić transfekcję rodzicielskich komórek RBL-2H3.1 przy użyciu plazmidu pEE6 zawierającego gen konnego FcεRIα (GenBank: Y18204.1) 28. Do 0,8 ml komórek o zagęszczeniu 1,2 x10⁷ cells ml-1 należy dodać 2 μg μl-1 plazmidowego DNA. Komórki należy poddać elektroporacji przy 250 V 960 μF, używając elektrokubety o szerokości 0,4 cm, a następnie bezzwłocznie inkubować na lodzie przez 10 min.
- Komórki transformowane należy wyselekcjonować, stosując podłoże zawierające 0,4 g siarczanu genetycyny G418, a następnie pozostałe żywe komórki należy posortować metodą FACS, znakując je fluorescencynym przeciwciałem IgE. Otrzymaną linię komórkową RBL-2H3.1 wykazującą ekspresję konnego FcεRIα należy wykorzystać do badania 2, 3.
- Sensytyzacja przeciwciałami przed analizą:
- Komórki RBL-2H3.1 wykazujące ekspresję konnego FcεRIα należy zebrać z konfluentnej szalki Petriego. Po przemyciu komórki należy ponownie zawiesić w podłożu hodowlanym do zagęszczenia 5x10⁵ cell ml-1.
- Do zawiesiny komórkowej należy dodać odpowiednie IgE do stężenia końcowego 1 ng ml-1, a następnie nanieść 100 μl komórek na płytkę 96-dołkową w kolumnach 1-6 i inkubować w 37 °C + 5% CO2 + 90% wilgotności względnej przez 16 hr. Po czasie inkubacji, a przed przeprowadzeniem testu uwalniania, należy sprawdzić dołki pod mikroskopem pod kątem konfluencji i adhezji komórek.
2) Analiza uwalniania:
- Przemywanie komórek:
- Podgrzać bufor uwalniający (25 mM PIPES, 120 mM chlorku sodu, 5 mM chlorku potasu, 0,04 mM chlorku magnezu i 1 mM chlorku wapnia) do 37 °C w celu umożliwienia delikatnego przemycia komórek.
- Przemyć komórki, energicznie potrząsając płytką, aby usunąć medium hodowlane, a następnie dodać 100 μl ciepłego (37 °C) buforu uwalniającego. Powtórzyć czynność dwukrotnie.
- Stymulacja antygenem:
- Przygotować rozcieńczenia szeregowe antygenu (NIP-HSA lub DNP-HSA) o stężeniach 0 ng ml-1, 0,1 ng ml-1, 1 ng ml-1, 10 ng ml-1, 100 ng ml-1, 1 000 ng ml-1 i 10 000 ng ml-1 w buforze uwalniającym i podgrzać do 37 °C.
- Po drugim przemyciu komórek usunąć medium i zastąpić je 100 μl roztworów antygenu. Należy upewnić się, że do studni w tym samym rzędzie (np. A1-6) dodano tę samą stężenie antygenu.
- Przygotować kontrolę negatywną w rzędzie A, dodając antygen o stężeniu 0 ng ml-1. W kolejnych rzędach (B-G) dodawać rosnące stężenia antygenu, a w rzędzie H dodać bufor z Tritonem-X (5% Triton X-100), aby zlizować komórki, które będą służyć jako kontrola pozytywna. Inkubować w temperaturze 37 °C przez 20 min, aby umożliwić komórkom uwolnienie mediatorów.
- Przygotowanie kontroli dla poszczególnych studni:
- Po inkubacji przenieść 50 μl supernatantu z komórkami do drugiej połowy płytki (ze studni A1-6 do studni A7-12 itd.). Pozostałe 50 μl supernatantu usunąć i zastąpić 50 μl buforu z Tritonem-X, aby umożliwić pomiar ilości uwolnionych mediatorów w każdej studni w kolumnach 7-12 jako procentu całkowitej ilości mediatorów wewnątrz komórek w kolumnach 1-6.
- Substrat enzymatyczny:
- Do wszystkich studni dodać 50 μl substratu β-heksosaminidazy (50 mM 4-nitrofenylo N-acetyl-β-D-glukozaminidu przygotowanego w DMSO i rozcieńczonego do 2 mM w buforze cytrynianowym: 0,2 M kwasu cytrynowego i 0,2 M octanu sodu, pH 4,5), aby umożliwić konwersję substratu do 4-nitrofenolu przez enzym β-heksosaminidazę. Inkubować płytki w temperaturze 37 °C przez 2 h.

- Zatrzymanie reakcji:
- Przerwij reakcję poprzez dodanie 150 μl buforu Tris (1 M Tris-HCl, pH 9) do każdego dołka; wysokie pH buforu zatrzymuje reakcję i powoduje, że 4-nitrofenol przybiera żółty kolor.
- Odczyt i analiza wyników:
- Odczytaj płytkę za pomocą spektrofotometru do płytek przy 405 nm, aby zmierzyć absorbancję żółtego koloru. Oblicz procent uwolnionej β-heksosaminidazy, korzystając z następującego wzoru:
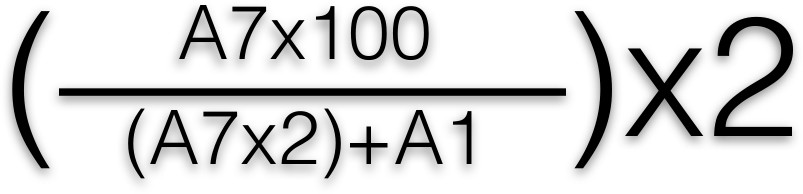
- Zastosuj ten wzór do każdej studzienki, a następnie oblicz średnią dla każdego rzędu. A1 i A7 oznaczają położenie studzienek w płytce 96-dołkowej. Przedstaw na wykresie zależność procentowego uwalniania β-heksosaminidazy (które odpowiada całkowitemu uwalnianiu mediatorów) od stężenia antygenu 2, 3.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Komórki rodzicielskie RBL-2H3.1 oraz komórki przetransfekowane genem receptora FcεRIα konia zostały najpierw uwrażliwione mysim przeciwciałem IgE przeciwko DNP-HSA, a następnie stymulowane antygenem DNP-HSA. Mysie IgE wiąże się z endogennym szczurzym receptorem w obu liniach komórkowych, pełniąc tym samym funkcję kontrolną w celu sprawdzenia zdolności obu linii do uwalniania mediatorów (Rysunek 1 A). Jest to istotna weryfikacja, którą należy przeprowadzać rutynowo, ponieważ przy przedłużonym pasażowaniu ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Podsumowując, wyniki tego badania wykazały, że gdy komórki RBL-2H3.1 eksprymujące FcεRIα koni są uwrażliwione na IgE koni i prowokowane antygenem, dają szczytowe uwalnianie mediatora na poziomie 36,68% ± 4,88% całkowitej ilości mediatora wewnątrz komórek, w porównaniu z komórkami rodzicielskimi RBL-2H3.1 bez ekspresji FcεRIα koni.
W związku z tym test ten stanowi użyteczne narzędzie do badania i badania reakcji alergicznych koni in vitro. Pozwala to na określenie ilości mediatora uwal...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych w niniejszej pracy.
Podziękowania
Autorzy dziękują dr Lyndzie Partridge za udzielanie porad i zaplecze laboratoryjne.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| RBL-2H3.1 Ekspresja Fc i epsilonu koni; RI&alfa; | - | Wyprodukowano w laboratorium | |
| IgE koni anty NIP-HSA | - | Wyprodukowano w laboratorium | |
| 96 Well Plate | Sigma | CLS3595-Multi | |
| Channel Pipette | Anachem | - | |
| Inkubator | Galaxy R | - | |
| Kwas 4hydroksy-5-jodo-3-nitrofenylooctowy | Cambridge Research Biochemicals | N-1070-1 | NIP-OH został sprzężony z albuminą surowicy ludzkiej w celu wytworzenia NIP-HSA w laboratorium |
| Dinitrofenyl sprzężony z albuminą surowicy ludzkiej | Sigma | A6661 | Skrócony spektrofotometr płytkowy DNP-HSA |
| Anthos Labtec HT2 | - | ||
| -Rury | Sigma | P1851-Chlorek | |
| sodu | Sigma | S7653-Chlorek | |
| potasu | Sigma | P9333-Chlorek | |
| magnezu | Sigma | M2670-Chlorek | |
| wapnia | Sigma | C1016-Triton | |
| x100 | Sigma | ||
| N-acetylo-β-D-glukozaminid | Sigma | N9376 | Roztwór podstawowy zwany substratem β-heksozaminidazy został przygotowany w 50mM przygotowanym w DMSO |
| Dimethyl Sulfoxide | Sigma | D2650-Kwas | |
| cytrynowy | Sigma | 251275-octan | |
| sodu | Sigma | S7670-Tris | |
| Sigma | T5941 | - |
Bibliografia
- Taudou, G., et al. Expression of the Alpha Chain of Human FcεRI in Transfected Rat Basophilic Leukemia Cells: Functional Activation after Sensitization with Human Mite-Specific IgE. Int Arch Allergy Immunol. 100 (4), 344-350 (1993).
- Sabban, S. Development of an in Vitro Model System for Studying the Interaction of EquuscaballusIgE with Its High-Affinity FcεRI Receptor. , The University of Sheffield. Sheffield. (2011).
- Sabban, S., Ye, H., Helm, B. A. Development of an in Vitro Model System for Studying the Interaction of EquuscaballusIgE with Its High-Affinity Receptor FcεRI. Vet ImmunolImmunopathol. 153 (1-2), 6-10 (2013).
- Wilson, A. P. M., Pullar, C. E., Camp, A. M., Helm, B. A. Human IgE mediates stimulus secretion coupling in rat basophilic leukemia cells transfected with the a chain of the human high-affinity receptor. Eur J Immunol. 23, 240-244 (1993).
- Hunter, M. J., Vratimos, A. P., Housden, J. E. M., Helm, B. A. Generation of canine-human Fc IgE chimeric antibodies for the determination of the canine IgE domain of interaction with FcεRIα. MolImmunol. 45 (8), 2262-2268 (2008).
- Rashid, A., et al. Review: Diagnostic and therapeutic applications of rat basophilic leukemia cells. MolImmunol. 52 (3-4), 224-228 (2012).
- Cohen, S. G. Asthma in antiquity: the Ebers Papyrus. Allergy Proc. 13 (3), 147-154 (1992).
- Dudler, T., et al. A link between catalytic activity, IgE-independent mast cell activation, and allergenicity of bee venom phospholipase A2. J. Immunol. 155, 2605-2613 (1995).
- Machado, D. C., Horton, D., Harrop, R., Peachell, P. T., Helm, B. A. Potential allergens stimulate the release of mediators of the allergic response from cells of mast cell lineage in the absence of sensitization with antigen-specific IgE. Eur J Immunol. 26 (12), 2972-2980 (1996).
- Smyth, L. J., et al. Assessment of the molecular basis of pro-allergenic effects of cigarette smoke. Environ Sci Technol. 34 (7), 1370-1374 (2000).
- Okada, H., Kuhn, C., Feillet, H., Bach, J. F. The 'hygiene hypothesis' for autoimmune and allergic diseases: an update. ClinExpImmunol. 160 (1), 1-9 (2010).
- Eder, C., et al. Influence of environmental and genetic factors on allergen-specific immunoglobulin-E levels in sera from Lipizzan horses. Equine Vet J. 33 (7), 714-720 (2001).
- Cook, W. R., Rossdale, P. D. The syndrome of 'Broken Wind' in the horse. Proceedings of the Royal Society of Medicine. 56, 972-977 (1963).
- Eyre, P., Lewis, A. J. Acute systemic anaphylaxis in the horse. Br. J. Pharmacol. 48 (3), 426-437 (1973).
- Bruggink, M. Global betting stable, but some countries suffer recession. , International Federation of Horseracing Authorities. Available from: http://www.horseracingintfed.com/Default.asp?section=Resources&area=0&story=664 (2009).
- Wagner, B. IgE in horses: occurrence in health and disease. Vet ImmunolImmunopathol. 132 (1), 21-23 (2009).
- Hellberg, W., et al. Equine insect bite hypersensitivity: immunoblot analysis of IgE and IgG subclass responses to Culicoidesnubeculosus salivary gland extract. Vet. Immunol. Immunopathol. 113 (1-2), 99-112 (2006).
- Schaffartzik, A., et al. Equine insect bite hypersensitivity: what do we know. Vet ImmunolImmunopathol. 147 (3-4), 113-126 (2012).
- Künzle, F., et al. IgE-bearing cells in bronchoalveolar lavage fluid and allergen-specific IgE levels in sera from RAO-affected horses. J Vet Med A PhysiolPatholClin Med. 54 (1), 40-47 (2007).
- Tahon, L., et al. In vitro allergy tests compared to intradermal testing in horses with recurrent airway obstruction. Vet ImmunolImmunopathol. (1-2), 85-93 (2009).
- Wagner, B., Radbruch, A., Rohwer, J., Leibold, W. Monoclonal anti-equine IgE antibodies with specificity for different epitopes on the immunoglobulin heavy chain of native IgE. Vet ImmunolImmunopathol. 92 (1-2), 45-60 (2003).
- Wilson, A. D., Harwood, L., Torsteinsdottir, S., Marti, E. Production of monoclonal antibodies specific for native equine IgE and their application to monitor total serum IgE responses in Icelandic and non-Icelandic horses with insect bite dermal hypersensitivity. Vet ImmunolImmunopathol. 112 (3-4), 156-170 (2006).
- McAleese, S. M., et al. Cloning and expression of the extra-cellular part of the alpha chain of the equine high-affinity IgE receptor and its use in the detection of IgE. Vet ImmunolImmunopathol. 110 (1-2), 187-191 (2006).
- Ledin, A., et al. Generation of therapeutic antibody responses against IgE in dogs, an animal species with exceptionally high plasma IgE levels. Vaccine. 24 (1), 66-74 (2006).
- Siraganian, R. P., Hook, W. A. Histamine release and assay methods for the study of human allergy. Manual of Clinical Immunology. , American Society for Microbiology. Washington, D. C. (1980).
- Neuberger, M. S., et al. A hapten-specific chimaericIgE antibody with human physiological effector function. Nature. 314 (6008), 268-270 (1985).
- Bingham, B. R., Monk, P. N., Helm, B. A. Defective Protein Phosphorylation and Ca2+ Mobilization in a low secreting variant of the rat basophilic leukemia cell line. The Journal of Biological Chemistry. 269 (30), 19300-19306 (1994).
- McAleese, S. M., Halliwell, R. E., Miller, H. R. Cloning and sequencing of the horse and sheep high-affinity IgE receptor alpha chain cDNA. Immunogenetics. 1 (51), 878-881 (2000).
- Hongtu, Y. Study of the structure/function relationship in canine and human IgE as the basis for the development of rational therapeutic intervention strategies in allergic disease. , The University of Sheffield. (2010).
- Sabban, S., et al. Towards a pan-anti-allergy vaccine. JIBTVA. 2 (2), 15-27 (2013).
- Moran, G., Burgos, R., Araya, O., Folch, H. In vitro bioassay to detect reaginic antibodies from the serum of horses affected with recurrent airway obstruction. Vet Res Commun. 34, 91-99 (2010).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
