Zdolność do oceny funkcji wykonawczych, takich jak elastyczność behawioralna u szczurów, jest przydatna do badania neurobiologii funkcji poznawczych zarówno u nienaruszonych zwierząt, jak i w modelach chorób. W tym miejscu opisujemy zautomatyzowane zadania do oceny zmiany strategii i odwróconego uczenia się, które są szczególnie wrażliwe na zakłócenia w sieciach kory przedczołowej.
Artykuł metodologiczny
Procedury instrumentalne do oceny elastyczności behawioralnej u szczurów
W tym artykule
Podsumowanie
Streszczenie
Funkcje wykonawcze składają się z wielu procesów poznawczych wysokiego poziomu, które napędzają generowanie reguł i selekcję zachowań. Emergentną właściwością tych procesów jest zdolność do dostosowywania zachowania w odpowiedzi na zmiany w otoczeniu (tj. elastyczność behawioralna). Procesy te są niezbędne do normalnego zachowania człowieka i mogą być zakłócone w różnych stanach neuropsychiatrycznych, w tym schizofrenii, alkoholizmie, depresji, udarze i chorobie Alzheimera. Zrozumienie neurobiologii funkcji wykonawczych zostało znacznie posunięte naprzód dzięki dostępności zadań na zwierzętach do oceny dyskretnych składników elastyczności behawioralnej, w szczególności zmiany strategii i uczenia się odwróconego. Chociaż opracowano kilka rodzajów zadań, większość z nich jest niezautomatyzowana, pracochłonna i pozwala na testowanie tylko jednego zwierzęcia na raz. Niedawny rozwój zautomatyzowanych, opartych na instrumentach zadań do oceny elastyczności behawioralnej usprawnia testowanie, standaryzuje prezentację bodźców i rejestrację danych oraz znacznie poprawia przepustowość. W tym miejscu opisujemy zautomatyzowane zadania zmiany i odwrócenia strategii, wykorzystujące komory operacyjne kontrolowane przez specjalnie napisane programy. Korzystając z tych zadań, wykazaliśmy, że przyśrodkowa kora przedczołowa zarządza zmianą strategii, ale nie odwróceniem uczenia się u szczurów, podobnie jak dysocjacja obserwowana u ludzi. Co więcej, zwierzęta z noworodkowym uszkodzeniem hipokampa, neurorozwojowym modelem schizofrenii, są selektywnie upośledzone w zadaniu zmiany strategii, ale nie w zadaniu odwrócenia. Zadanie zmiany strategii pozwala również na identyfikację odrębnych typów błędów wydajności, z których każdy można przypisać odrębnym substratom neuronalnym. Dostępność tych zautomatyzowanych zadań oraz dowody potwierdzające dysocjowalny wkład oddzielnych obszarów przedczołowych sprawiają, że są one szczególnie dobrze przystosowane do badania podstawowych procesów neurobiologicznych, a także odkrywania leków i badań przesiewowych w modelach chorób.
Wprowadzenie
Procesy poznawcze wysokiego poziomu, w tym generowanie reguł, selekcja zachowań i ocena strategii, są zbiorczo określane jako "funkcja wykonawcza" lub "elastyczność behawioralna1." Takie procesy są kluczowe dla prawidłowych funkcji poznawczych i mogą być upośledzone w tak różnych zaburzeniach jak schizofrenia, alkoholizm, depresja, udar mózgu i choroba Alzheimera2-7. W regulacji procesów funkcji wykonawczych pośredniczą przede wszystkim obszary kory czołowej, w tym grzbietowo-boczna kora przedczołowa i kora oczodołowo-czołowa u ludzi8-10.
Opracowanie zadań do oceny funkcji wykonawczych i/lub elastyczności behawioralnej u zwierząt innych niż ludzie, szczególnie u gryzoni, znacznie poszerzyło zrozumienie neurobiologii funkcji poznawczych11-14. Takie zadania umożliwiły oddzielne mierzenie różnych komponentów elastyczności behawioralnej, w tym zmiany strategii i uczenia się odwróconego. Zmiana strategii odnosi się do zdolności do aktywnego tłumienia wcześniej wyuczonej strategii reagowania przy jednoczesnym nabywaniu nowej, konkurencyjnej strategii, szczególnie w różnych wymiarach bodźca (przesunięcie międzywymiarowe) – np. przejście od dyskryminacji opartej na wzroku (czerwony kontra zielony, gdzie czerwony jest "poprawny", a bodźce dotykowe są nieistotne) do wykonywania dyskryminacji dotykowej (gładki vs. szorstki, gdzie gładkość jest "poprawna", a bodźce wzrokowe są teraz nieistotne). Z drugiej strony, uczenie odwrócone również wiąże się ze zmianą strategii reagowania, ale w tym samym wymiarze bodźca – np. w przykładzie "czerwony kontra zielony", jeśli czerwony był wcześniej poprawny, odwrócenie dyktowałoby, że zielony jest teraz poprawny, podczas gdy bodźce dotykowe pozostałyby nieistotne.
Kilka zadań zostało opracowanych w celu zbadania elastyczności behawioralnej u gryzoni. Zadanie polegające na przechodzeniu przez labirynt wymaga od zwierzęcia najpierw nauczenia się zasady opartej na kierunku (np. "zawsze skręcaj w prawo") lub zasady opartej na wzroku (np. "zawsze skręcaj w kierunku wizualnej wskazówki") do określonego kryterium wydajności. Następnie, zwierzę musi nieoczekiwanie przestawić się albo w poprzek modalności na przeciwną regułę (zmiana strategii, pierwotnie określana jako "zmiana nieodwracalna"15), albo w obrębie modalności na przeciwną ewentualność (uczenie się odwrócone)13,14,16. Takie zadania są wrażliwe na zakłócenia w sieciach korowych i podkorowych, obejmujących korę przedczołową, wzgórze i prążkowie1,13,14,16-18. Inny rodzaj zadania polegającego na zmianie nastawienia uwagi (czasami nazywanego zadaniem kopania) wymaga szkolenia zwierząt w rozróżnianiu dwóch pojemników, które różnią się między sobą wzdłuż dwóch lub trzech wymiarów bodźca (podłoże do kopania, zapach i/lub tekstura zewnętrzna). Podobnie jak w przypadku zadania w labiryncie, zwierzęta muszą przemieszczać się między wymiarami (zmiana strategii) lub w obrębie tego samego wymiaru (uczenie się odwrócone), a zadania te są podobnie wrażliwe na manipulacje kory czołowej11,19. Zaletą tego zadania jest to, że podczas zmiany strategii pozawymiarowej, szczurom prezentowane są nowe zestawy bodźców (wzorce), co zapewnia, że upośledzenie wydajności na tym etapie jest prawdopodobnie spowodowane zakłóceniami w zdolności do przenoszenia uwagi na różne aspekty bodźców złożonych, a nie upośledzoną zdolnością do zaprzestania zbliżania się do określonego bodźca wcześniej związanego z nagrodą. Cecha ta utrudnia jednak również ustalenie specyfiki deficytu podczas ustalonej zmiany.
Chociaż zadania opisane powyżej zostały dobrze udokumentowane w literaturze, oba mają szereg wad proceduralnych, przede wszystkim czas potrzebny na testowanie zwierząt. Zarówno w zadaniu polegającym na przechodzeniu przez labirynt, jak i w kopaniu, tylko jedno zwierzę może być badane na raz; Co więcej, testy muszą być przeprowadzane w czasie rzeczywistym przez dedykowanego eksperymentatora i mogą trwać do kilku godzin dziennie na zwierzę. Ponadto prezentacja bodźców i rejestrowanie reakcji behawioralnych w obu typach zadań są ręcznie kontrolowane przez eksperymentatora, a tym samym są podatne na błąd ludzki i subiektywną interpretację.
Tutaj opisujemy zautomatyzowaną metodę oceny zmiany strategii i odwrócenia uczenia się u szczura, wykorzystując procedury instrumentalne, które usprawniają kontrolę bodźców i prezentację danych, a także znacznie poprawiają szybkość zbierania danych i przepustowość20,21. Opisano metody stosowane do kształtowania i szkolenia szczurów, a także elementy składowe samego zadania i analizę uzyskanych danych. Odkryliśmy, że podobnie jak zadania związane z przechodzeniem przez labirynt i kopaniem, te zautomatyzowane zadania są wrażliwe na zakłócenia w obwodach przedczołowych i podkorowych, a także na manipulację neurorozwojową, która modeluje schizofrenię20-23.
Protokół
UWAGA: Wszystkie opisane tutaj procedury zostały zatwierdzone przez Institutional Animal Care and Use Committee (IACUC) w St. Mary’s College of Maryland lub Canadian Council on Animal Care na University of British Columbia.
1. Zwierzęta
- Należy użyć dorosłych samców szczurów Sprague-Dawley lub dorosłych samców szczurów Long-Evans.
UWAGA: Choć różnice w wynikach między tymi dwiema szczepami nie zostały formalnie przetestowane, szczury Long-Evans mają tendencję do nieco szybszego nabywania zdolności dyskryminacji wskazówek wizualnych (opisanej poniżej) niż szczury Sprague-Dawley (Floresco, niepublikowane obserwacje). - Po przybyciu do hodowli, dorosłe szczury należy kwaterować pojedynczo lub w grupach, w zależności od potrzeb eksperymentu i ograniczeń placówki. W przypadku eksperymentów, w których zwierzęta poddawane są restrykcji pokarmowej, należy stosować kwaterowanie pojedyncze, aby zapewnić lepszą kontrolę nad spożyciem pokarmu. Należy pozwolić zwierzętom na aklimatyzację w hodowli (bez manipulacji i restrykcji pokarmowej) przez co najmniej 3 dni po przybyciu.
UWAGA: Niedawny raport sugeruje, że płeć eksperymentatora może niekorzystnie wpływać na pomiary bólu i zachowań lękowych24, co może odnosić się również do innych zachowań wrażliwych na stres, w tym do funkcji poznawczych. W naszych badaniach nie zaobserwowano wyraźnych różnic w wynikach szczurów trenowanych przez opiekunów płci męskiej i żeńskiej, choć nie ocenialiśmy tego formalnie. - Zwierzęta należy codziennie manipulować przez około 3-5 min każde, przez co najmniej 3 dni przed rozpoczęciem testów behawioralnych. Pierwszego dnia manipulacji należy zmierzyć masę ciała każdego szczura przy swobodnym dostępie do pokarmu. Masa docelowa dla restrykcji pokarmowej, jeśli zostanie ona zastosowana, będzie wynosić 85-90% tej masy początkowej. Masę docelową należy odnotować, np. w dzienniku laboratoryjnym lub na karcie klatki zwierzęcia. W niektórych przypadkach restrykcja pokarmowa może nie być wymagana, jeśli użyty wzmocnienie jest bardzo smaczne (np. słodzone mleko), choć zwierzęta mogą zbyt szybko osiągnąć sytość przy użyciu takich wzmocnień.
- Każdego dnia manipulacji, po zakończeniu pracy z danym zwierzęciem, należy umieścić około 10-20 granulek nagrody w klatce domowej zwierzęcia, aby aklimatyzować szczury (które zazwyczaj wykazują neofobię) do wzmocnienia, które będzie stosowane w zadaniu (patrz sekcja 2.1.3 poniżej).
- W ciągu trzech dni manipulacji należy stopniowo ograniczać dzienne spożycie pokarmu przez zwierzęta, aby doprowadzić je do masy docelowej. Należy pamiętać o zaznaczeniu na kartach klatek lub w innej dokumentacji, że zwierzęta są obecnie na diecie ograniczonej.
UWAGA: Restrykcja pokarmowa w szczególności wymaga zatwierdzenia przez instytucjonalną komisję IACUC lub inny organ regulacyjny przed rozpoczęciem jakichkolwiek procedur. Poniższe ogólne procedury zostały zatwierdzone przez odpowiednie agencje instytucjonalne autorów; należy zapoznać się z odpowiednimi wytycznymi lokalnymi i/lub krajowymi w celu sprawdzenia dodatkowych wymagań w poszczególnych instytucjach. - Zwierzęta należy ważyć co najmniej dwa razy w tygodniu, aby monitorować stan ich zdrowia i upewnić się, że ich masa nie spadnie znacznie poniżej masy docelowej. Należy zapewnić stały i swobodny dostęp do wody.
2. Sprzęt i oprogramowanie
- Do tych zadań należy wykorzystać komory operacyjne wyposażone (co najmniej) w dwie chowane dźwignie, dwie lampki bodźcowe, lampkę pokojową oraz dozownik wzmocnień.
- Dźwignie należy umieścić po obu stronach centralnego obszaru podawania wzmocnienia, z jedną lampką bodźcową znajdującą się nad każdą z dźwigni.
- Należy upewnić się, że lampka pokojowa oświetla całą komorę, nie zakłócając jednocześnie wykrywania świateł bodźcowych, np. umieszczając lampkę pokojową na ścianie przeciwległej do dźwigni i lampek bodźcowych.
- Jako wzmocnienie należy zastosować smaczną karmę (np. pelety sacharozowe20,21 lub roztwory sacharozy25). W każdym miejscu, w którym poniżej wskazano, aby „wzmocnić zwierzę”, należy podać jeden pelet sacharozowy o masie 45 mg lub określoną ilość roztworu sacharozy.
- Prezentację bodźca, obsługę dźwigni oraz gromadzenie danych należy kontrolować za pomocą interfejsu z komputerem. W celu uzyskania szczegółowych informacji na temat programów zadań napisanych w oprogramowaniu MED-PC, przeznaczonym specjalnie do testów behawioralnych i zbierania danych, należy skontaktować się z autorami.
UWAGA: Kluczową funkcją programów stosowanych w testach behawioralnych jest rejestrowanie kluczowych zmiennych dla każdej próby, w tym pozycji lampki sygnałowej, dźwigni wybranej przez zwierzę, informacji, czy zwierzę udzieliło odpowiedzi prawidłowej, błędnej czy nie udzieliło odpowiedzi (pominięcie), a także czasu reakcji do momentu dokonania wyboru. Dane te są krytyczne dla oceny konkretnych rodzajów błędów popełnianych podczas różnych etapów sekwencji wyboru, co zostanie opisane poniżej. - Na początku wstępnego treningu należy przypisać każde zwierzę do komory operacyjnej, w której będzie ono testowane każdego dnia w trakcie trwania eksperymentu. Zwierzęta należy testować mniej więcej o tej samej porze dnia przez cały czas trwania eksperymentu.
- Komory operacyjne należy regularnie czyścić (co najmniej raz w tygodniu) wodą z mydłem i/lub roztworem przeciwdrobniczym.
3. Pretrening
UWAGA: Gdy zwierzęta osiągną docelową masę ciała wynikającą z ograniczenia pokarmowego, mogą rozpocząć proces kształtowania zachowań w komorach operantowych. Procedury wstępnego treningu trwają zazwyczaj od 10 do 20 dni, przy czym występuje znaczna zmienność między szczurami. Przegląd procedur przedstawiono na Rysunku 1C.
- Kształtuj zachowanie zwierząt w celu wypracowania naciskania dźwigni.
- Trenuj zwierzęta w schemacie wzmacniania o stałym stosunku (FR)-1, t. j., jedno wzmocnienie jest podawane za każde naciśnięcie dźwigni. Kształtowanie można przeprowadzać albo przy wysuniętych obu dźwigniach (wzmocnieniu podlega naciśnięcie dowolnej z nich), albo po jednej dźwigni na raz (np., jedna dźwignia dziennie), z kolejnością (lewa/prawa) zrównoważoną pomiędzy zwierzętami i/lub warunkami eksperymentalnymi.
- W przypadku kształtowania z oboma wysuniętymi dźwigniami, należy kontynuować sesje kształtowania (jedna 30-minutowa sesja dziennie), aż zwierzęta spełnią kryterium minimum 50–60 naciśnięć na sesję przez dwa kolejne dni. Zazwyczaj trwa to od 3 do 6 dni.
- W przypadku kształtowania reakcji na każdej dźwigni z osobna, należy kontynuować sesje na pierwszej dźwigni, dopóki zwierzęta nie zareagują na nią co najmniej 50–60 razy. Kolejne sesje kształtowania powinny odbywać się z wykorzystaniem przeciwległej dźwigni, aż szczur ponownie osiągnie to kryterium. Zazwyczaj drugie kryterium jest osiągane szybko po tym, jak szczury nauczą się naciskać pierwszą dźwignię.
UWAGA: Kształtowanie reakcji na jednej dźwigni na raz potrwa dłużej (zwierzę musi dwukrotnie spełnić kryterium, raz dla każdej z dźwigni), ale zapewni, że zwierzęta zdobędą doświadczenie w reagowaniu na obie dźwignie i naprzemiennym korzystaniu z nich, co jest kluczowym elementem opisanych poniżej zadań.
- Trenuj zwierzęta w schemacie wzmacniania o stałym stosunku (FR)-1, t. j., jedno wzmocnienie jest podawane za każde naciśnięcie dźwigni. Kształtowanie można przeprowadzać albo przy wysuniętych obu dźwigniach (wzmocnieniu podlega naciśnięcie dowolnej z nich), albo po jednej dźwigni na raz (np., jedna dźwignia dziennie), z kolejnością (lewa/prawa) zrównoważoną pomiędzy zwierzętami i/lub warunkami eksperymentalnymi.
- Przeprowadź sesje treningowe z wykorzystaniem chowanych dźwigni, aby oswoić zwierzęta z wysuwaniem i chowaniem się dźwigni oraz upewnić się, że szczury popełniają stosunkowo mało pominięć (zazwyczaj <5) zanim przejdą do głównych faz testowych zadania.
- W każdej próbie należy określić, którą dźwignię wysunąć. Wysuwanie dźwigni należy przeprowadzać naprzemiennie w kolejności pseudolosowej, tak aby odbyło się 45 prób z lewą dźwignią i 45 prób z prawą dźwignią, przy czym w nie więcej niż dwóch kolejnych próbach wysuwana jest ta sama dźwignia.
- Wysuń wybraną dźwignię. Wzmocnij zwierzę za naciśnięcie tej dźwigni w ciągu 10 s, po czym dźwignia zostaje wciągnięta.
- Jeśli zwierzę nie zareaguje w ciągu 10 s, wycofaj dźwignię i odnotuj brak odpowiedzi.
- Rozpoczynaj próby co 20 s przez całą sesję.
UWAGA: Podczas treningu z dźwignią chowaną, wstępna ekspozycja na światła bodźca (podświetlenie obu świateł bodźca, lewego i prawego, przy każdym wysunięciu dźwigni) może zastosowane w celu zmniejszenia nowości i istotności świateł panelu, a tym samym zwiększenia trudności w kolejnym zadaniu z przesunięciem zestawu (set-shifting)20Zastosowanie tej procedury znacząco zwiększy liczbę prób wymaganych do osiągnięcia kryterium wydajności w opisanym poniżej rozróżnianiu wskazówek wizualnych, a zwierzęta mogą potrzebować wielu dni na opanowanie tej reguły w tych warunkach. - Kontynuować sesje treningowe z chwytakiem zwrotnym (jedna 30-minutowa sesja dziennie) przez określoną liczbę dni lub do momentu, gdy zwierzęta spełnią kryterium minimum pięciu lub mniej pominięć przez dwa kolejne dni. Zazwyczaj trwa to od 5 do 10 dni.
- W badaniach wykorzystujących manipulacje o charakterze ostrym (np., badania toksykologiczne), należy zastosować określoną liczbę dni (np., 5 dni), aby zapewnić, że wszystkie szczury zostaną w podobny sposób wystawione na działanie dźwigni.
- Oceń preferencje zwierząt co do strony.
- Przeprowadź test preferencji strony bezpośrednio po ostatniej sesji treningu z chowanymi dźwigniami (tego samego dnia; zobacz Rycina 1C). Zadanie preferencji strony składa się z siedmiu prób, z których każda obejmuje od dwóch do ośmiu podprób rozdzielonych stałym 20-sekundowym odstępem międzypróbkowym (ITI).
- W każdej podpróbie wysuń obie dźwignie do komory na 10 s lub do momentu wystąpienia reakcji w postaci naciśnięcia dźwigni. W tej fazie treningu nie zapalaj świateł bodźca.
- Wzmocnij reakcję na dowolną z dźwigni podczas pierwszej podpróby każdego badania i zarejestruj ją jako „reakcję początkową”.
- Nie należy wzmacniać reakcji na tej samej dźwigni w kolejnych podpróbach w ramach tej samej próby. Dopuszcza się do sześciu kolejnych reakcji na tej samej dźwigni w ramach jednej próby, po których należy zastosować podpróbę wymuszoną. Podpróba wymuszona polega na wysunięciu wyłącznie przeciwległej dźwigni na 10 s lub do momentu wystąpienia reakcji.
- Po pierwszej reakcji w każdej próbie należy wzmocnić pierwszą reakcję na przeciwległej dźwigni, a następnie zakończyć tę próbę. W związku z tym, w ramach każdej próby (zawierającej do ośmiu podprób), zwierzę musi zareagować co najmniej raz na każdej z dźwigni.
- Preferencję strony każdego zwierzęcia należy zdefiniować jako stronę, po której nastąpiła większość początkowych reakcji (co najmniej cztery z siedmiu prób).
- Jeśli jednak zwierzę w trakcie całej sesji reaguje nieproporcjonalnie na jedną z dźwigni (definiowane jako stosunek większy niż 2:1), należy zapisać tę stronę jako preferowaną przez zwierzę.
- Rozpocząć testowanie następnego dnia po teście preferencji strony.
UWAGA: W naszym doświadczeniu większość zwierząt nie wykazuje silnej preferencji strony. W przypadku osobników, które ją wykazują, wymuszenie naciskania dźwigni przeciwnej do ich preferencji podczas treningu dyskryminacji reakcji zapewnia, że uczą się one specyficznych zależności między reakcją a nagrodą związanych z tą dźwignią, a nie jedynie reagują za pomocą preferowanej dźwigni.
4. Testowanie
UWAGA: Zwierzęta mogą być badane w jednej z trzech sekwencji, z których każda obejmuje dwa różne zadania. Zmianę strategii ocenia się za pomocą (1) przesunięcia zestawu z sygnału na reakcję i/lub (2) przesunięcia zestawu z reakcji na sygnał; uczenie odwracania ocenia się za pomocą (3) odwrócenia reakcji. (Czwarta możliwa sekwencja, odwrócenie sygnału, nie jest zalecana z powodów omówionych poniżej).
- Informacje ogólne dotyczące zadań i sekwencji.
- Każdą sekwencję należy przeprowadzać w kolejnych dniach. Każda sekwencja potrwa co najmniej dwa dni (początkowa nauka dyskryminacji, a następnie zmiana lub odwrócenie).
- W jednym zadaniu należy zastosować maksymalnie od 150 do 200 prób, w zależności od charakteru eksperymentu. (Należy pamiętać, że zastosowanie większej liczby prób nieuchronnie wydłuży całkowity czas sesji do 60 min lub więcej, co może być czynnikiem istotnym w przypadku testów farmakologicznych z użyciem związków o krótszym czasie działania).
- W każdej sekwencji zwierzęta są testowane najpierw w jednym zadaniu („Set”), a następnie w drugim zadaniu („Shift” lub „Reversal”). Zwierzęta testuje się maksymalnie przez 3 dni (tj. 450–600 prób) w każdym zadaniu, łącznie maksymalnie przez 6 dni.
- Z eksperymentu należy wykluczyć zwierzęta, które nie osiągnęły kryterium w ciągu 3 dni w pierwszym zadaniu („Set”).
- W przypadku zwierząt, które nie osiągnęły kryterium w ciągu 3 dni w drugim zadaniu („Shift” lub „Reversal”), należy przypisać maksymalny wynik dla prób do osiągnięcia kryterium, odpowiadający liczbie przeprowadzonych prób (tj. 450 prób dla 3 dni po 150 prób każdy).
- Jeśli parametry zadania zostały zmodyfikowane tak, aby zwierzęta kontrolne mogły osiągnąć kryterium wykonania w ciągu jednego dnia, należy zmodyfikować zadanie tak, aby wszystkie szczury miały tylko jedną sesję testową, a tym, które nie osiągną kryterium w wyznaczonej liczbie prób, przyznać maksymalny wynik (150–200 prób, w zależności od konfiguracji zadania).
- Podczas zadania zmiany (shift) lub odwrócenia (reversal) zwierzęta powinny albo rozpocząć sesję od natychmiastowego wykonywania nowej reguły, albo otrzymać 20 prób „przypominających”, w których wykonują zadanie zgodnie z regułą wyuczoną w pierwszej fazie treningu, a następnie reguła zostaje zmieniona w trakcie sesji22.
UWAGA: Ta druga procedura jest szczególnie użyteczna w eksperymentach oceniających potencjalne związki prokognitywne, które mogą poprawiać elastyczność, ponieważ pozwala ona wyjaśnić, czy lepsze wyniki podczas zmiany/odwrócenia wynikają konkretnie ze zwiększonej elastyczności, czy z upośledzonego przywoływania poprzedniej reguły, co może ułatwić naukę nowej reguły podczas zmiany.
- Zmiana zestawu (Set-shifting): od zadania sygnałowego (Cue Task) do zadania reakcyjnego (Response Task).
- Rozpocząć testowanie zwierząt w zadaniu sygnałowym (patrz Rycina 1A), w którym zwierzęta są wzmacniane za naciśnięcie dźwigni znajdującej się pod podświetlonym światłem bodźca (sygnałem). Zadanie sygnałowe jest zadaniem „Set” w tej sekwencji.
- Każdą próbę należy rozpoczynać z obiema wciągniętymi dźwigniami.
- Podświetlić lewe lub prawe światło bodźca przez 3 sec; następnie wysunąć obie dźwignie do komory na 10 sec lub do momentu wystąpienia reakcji.
- Wzmacniać tylko poprawną reakcję na dźwigni sygnalizowanej. Po reakcji na dowolnej dźwigni należy wciągnąć dźwignie.
- Próby należy rozpoczynać co 20 sec w trakcie całej sesji. Kolejność prób należy ustalić pseudolosowo tak, aby nie więcej niż dwie kolejne próby odbywały się przy podświetlonym tym samym świetle bodźca (lewym lub prawym).
- Próby należy kontynuować do czasu, aż zwierzę osiągnie kryterium (wykona 10 kolejnych poprawnych reakcji) i ukończy minimum 30 prób, lub do momentu wykonania 150–200 prób bez osiągnięcia kryterium.
- Jeśli kryterium nie zostanie osiągnięte w pierwszym dniu, należy ponownie przetestować zwierzę w zadaniu sygnałowym w drugim dniu, rezygnując z wymogu ukończenia minimum 30 prób. Jeśli kryterium nie zostanie osiągnięte w drugim dniu, należy przetestować zwierzę w trzecim dniu zgodnie z tą samą procedurą.
- W dniu następującym po osiągnięciu kryterium w zadaniu sygnałowym, należy przenieść zwierzęta do zadania reakcyjnego (patrz Rycina 1B), w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do ich preferowanej strony, niezależnie od podświetlenia światła bodźca (sygnału). Zadanie reakcyjne jest zadaniem „Shift” w tej sekwencji.
- Każdą próbę należy rozpoczynać z obiema wciągniętymi dźwigniami.
- Podświetlić lewe lub prawe światło bodźca przez 3 sec; następnie wysunąć obie dźwignie do komory na 10 sec lub do momentu wystąpienia reakcji. (Należy pamiętać, że położenie światła bodźca jest nieistotne w tym zadaniu).
- Wzmacniać tylko reakcję na dźwigni w poprawnej pozycji (lewej lub prawej, przeciwnej do preferowanej strony zwierzęcia). Po reakcji na dowolnej dźwigni należy wciągnąć dźwignie.
- Próby należy rozpoczynać co 20 sec w trakcie całej sesji. Kolejność prób należy ustalić pseudolosowo tak, aby nie więcej niż dwie kolejne próby odbywały się przy podświetlonym tym samym świetle bodźca (lewym lub prawym).
- Próby należy kontynuować do czasu, aż zwierzę osiągnie kryterium (wykona 10 kolejnych poprawnych reakcji) lub do momentu wykonania 150 prób bez osiągnięcia kryterium.
- Jeśli kryterium nie zostanie osiągnięte w pierwszym dniu, należy ponownie przetestować zwierzę w zadaniu reakcyjnym w drugim dniu. Jeśli kryterium nie zostanie osiągnięte w drugim dniu, należy przetestować zwierzę w trzecim dniu zgodnie z tą samą procedurą.
- Rozpocząć testowanie zwierząt w zadaniu sygnałowym (patrz Rycina 1A), w którym zwierzęta są wzmacniane za naciśnięcie dźwigni znajdującej się pod podświetlonym światłem bodźca (sygnałem). Zadanie sygnałowe jest zadaniem „Set” w tej sekwencji.
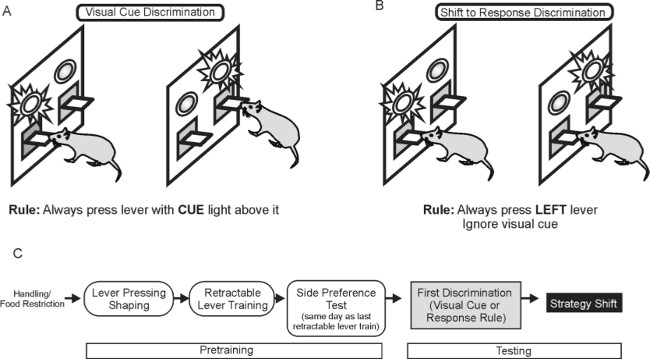
Rysunek 1: Zadania dyskryminacyjne wykorzystane w sekwencji zmiany zestawu (set-shifting). Na rysunku przedstawiono zadania realizowane w sekwencji sygnał-reakcja (Cue-to-Response); należy zauważyć, że w sekwencji reakcja-sygnał (Response-to-Cue) zadania są identyczne, lecz występują w odwrotnej kolejności. (A) Podczas uczenia dyskryminacji sygnału wizualnego zwierzęta są nagradzane za naciśnięcie dźwigni pod zapalonym światłem stymulującym. (B) Podczas uczenia dyskryminacji reakcji zwierzęta są nagradzane za reakcję na jednej z dźwigni (lewej lub prawej), niezależnie od położenia światła stymulującego. (C) Schemat blokowy przedstawiający sekwencję faz treningowych w typowym eksperymencie zmiany strategii, od wstępnego treningu do testowania. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
- Zmiana zestawu (set-shifting): Reakcja na sygnał.
UWAGA: Ta sekwencja w największym stopniu zyskuje dzięki dodaniu warunku wstępnej ekspozycji na światło sygnałowe do wstępnego treningu20,21 (patrz Krok 3.2.4 powyżej). Poprzednie badania wykazały, że wstępna ekspozycja szczurów na światła podczas treningu z chowanymi dźwigniami utrudnia zmianę reakcji na sygnał i czyni ją zależną od przyśrodkowej kory przedczołowej. Odwrotnie, inaktywacja kory przedczołowej nie upośledza tego typu zmiany, jeśli nie zastosowano tych procedur wstępnego treningu20.- Rozpocząć testowanie zwierząt w zadaniu Reakcja (Response), w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do ich preferowanej strony, niezależnie od podświetlenia światła bodźca (sygnału). Zadanie Reakcja jest zadaniem „ustawiającym” (Set) w tej sekwencji.
- Przeprowadzić testowanie zgodnie ze szczegółami opisanymi w Kroku 4.2.2 (zadanie Reakcja) powyżej.
- Zwierzęta muszą ukończyć minimum 30 prób w tym zadaniu, ponieważ jest to zadanie „ustawiające”.
- Następnego dnia po osiągnięciu kryterium w zadaniu Reakcja, przenieść zwierzęta do zadania Sygnał (Cue), w którym zwierzęta są wzmacniane za reakcję na dźwigni znajdującej się pod zapalonym światłem bodźca (sygnałem). Zadanie Sygnał jest zadaniem „zmiany” (Shift) w tej sekwencji.
- Przeprowadzić testowanie zgodnie ze szczegółami opisanymi w Kroku 4.2.1 (zadanie Sygnał) powyżej. W przypadku gdy zadanie to jest zadaniem „zmiany”, nie jest wymagane ukończenie minimum 30 prób.
- Rozpocząć testowanie zwierząt w zadaniu Reakcja (Response), w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do ich preferowanej strony, niezależnie od podświetlenia światła bodźca (sygnału). Zadanie Reakcja jest zadaniem „ustawiającym” (Set) w tej sekwencji.
- Odwrócenie Reakcji.
- Rozpocząć testowanie zwierząt w zadaniu Reakcja, w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do ich preferowanej strony, niezależnie od podświetlenia światła bodźca (sygnału). Zadanie Reakcja jest zadaniem „ustawiającym” w tej sekwencji.
- Przeprowadzić testowanie opisane w Kroku 4.2.2 (zadanie Reakcja) powyżej.
- Zwierzęta muszą ukończyć minimum 30 prób w tym zadaniu, ponieważ jest to zadanie „ustawiające”.
- Następnego dnia po osiągnięciu kryterium w zadaniu Reakcja, przetestować zwierzęta w odwróconym zadaniu Reakcja, w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do tej z pierwszego zadania, t.j. na dźwigni odpowiadającej ich pierwotnej preferencji strony. To nowe zadanie Reakcja jest zadaniem „odwrócenia” (Reversal) w tej sekwencji.
- Przeprowadzić testowanie zgodnie ze szczegółami opisanymi w Kroku 4.2.2 powyżej, z wyjątkiem tego, że wzmacniana pozycja dźwigni jest teraz zgodna z pierwotną preferencją strony u zwierzęcia.
- Rozpocząć testowanie zwierząt w zadaniu Reakcja, w którym zwierzęta są wzmacniane za reakcję na dźwigni przeciwnej do ich preferowanej strony, niezależnie od podświetlenia światła bodźca (sygnału). Zadanie Reakcja jest zadaniem „ustawiającym” w tej sekwencji.
5. Pomiary behawioralne
- Zarejestruj liczbę prób do kryterium zarówno w zadaniu „Set”, jak i w zadaniu „Shift”. Liczba prób do kryterium jest główną miarą dokładności, zdefiniowaną jako liczba prób wymaganych do ukończenia 10 prób z rzędu, wliczając te 10 prób. Należy pamiętać, że liczba pominięć powinna zostać wykluczona z tej miary (np.jeśli szczur wymaga 100 prób do osiągnięcia kryterium i popełnia 10 pominięć, to rzeczywista liczba prób do osiągnięcia kryterium wynosi 90).
- Oblicz liczbę błędów popełnionych przed osiągnięciem kryterium zarówno w zadaniu „Set”, jak i w zadaniu „Shift”. Liczba błędów do kryterium jest komplementarnym miernikiem dokładności, który może być bardziej czuły niż liczba prób do kryterium i nie jest on wpływany przez zwiększoną częstość pominięć.
- W przypadku typów błędów przesunięcia należy przeprowadzić dalszą analizę rodzajów błędów popełnionych w zadaniu „Shift” (przesunięcie) w sekwencji przełączania zestawów.
- Błąd należy zakwalifikować jako „typ perseveratywny/regresywny”, gdy zwierzę odpowie błędnie w zadaniu „Shift” zgodnie z regułą, która była poprawna w zadaniu „Set” z dnia poprzedniego. Następnie należy zastosować poniższe wytyczne, aby odpowiednio podzielić błędy tego typu na perseveratywne i regresywne.
- Podziel sesję „Shift” na bloki po 16 kolejnych ukończonych prób (nie uwzględniaj prób pominiętych). W obrębie każdego bloku określ, które błędy odpowiadają definicji tego typu, t.j.szczur udzielił błędnej odpowiedzi odpowiadającej regule zadania „Set”. W każdym bloku 16 prób może wystąpić maksymalnie 8 błędów tego typu.
- Oznacz zidentyfikowane błędy jako perseveracyjne, dopóki w obrębie jednego bloku nie zostanie popełnionych mniej niż sześć takich błędów.
- Zaczynając od następnego bloku i kontynuując aż do końca zadania, błędy tego typu należy oceniać jako regresywne.
- Jeśli zwierzę było badane w zadaniu „Shift” przez więcej niż jeden dzień, należy kontynuować ocenę błędów tak, jakby bloki były następujące po sobie.
- Błąd należy uznać za „nigdy niewzmocniony”, gdy zwierzę w zadaniu „Shift” udzieli niepoprawnej odpowiedzi, która nie była poprawna ani w zadaniu „Set”, ani w zadaniu „Shift”.
- Błąd należy zakwalifikować jako „typ perseveratywny/regresywny”, gdy zwierzę odpowie błędnie w zadaniu „Shift” zgodnie z regułą, która była poprawna w zadaniu „Set” z dnia poprzedniego. Następnie należy zastosować poniższe wytyczne, aby odpowiednio podzielić błędy tego typu na perseveratywne i regresywne.
- W przypadku typów błędów odwrócenia należy przeprowadzić dalszą analizę rodzajów błędów popełnionych w zadaniu „Odwrócenie” (Reversal) sekwencji uczenia się z odwróceniem. Błędy odwrócenia są dzielone według dwóch wymiarów: (1) na błędy perseveracyjne i regresywne oraz (2) na błędy skierowane w stronę dystraktora i błędy skierowane z dala od dystraktora.
- Podziel całkowitą liczbę błędów na perseveracyjne i regresyjne.
- Podziel sesję „Odwrócenia” na bloki po 16 kolejnych ukończonych prób. Policz liczbę błędów w każdym bloku (maksymalna możliwa liczba błędów wynosi 16).
- Oznaczaj błędy jako perseveracyjne do momentu, gdy w obrębie jednego bloku zostanie popełnionych mniej niż 10 takich błędów.
- Od następnego bloku i aż do końca zadania, błędy należy oceniać jako regresywne.
- Jeśli zwierzę było badane w zadaniu „Odwrócenie” (Reversal) przez więcej niż jeden dzień, należy kontynuować ocenę błędów tak, jakby bloki następowały bezpośrednio po sobie.
- Podziel całkowitą liczbę błędów na błędy w stronę dystraktora (światło bodźca zapaliło się nad błędnie naciśniętą dźwignią) oraz błędy z dala od dystraktora (światło bodźca zapaliło się nad poprawną, nienaciśniętą dźwignią).
- Podziel całkowitą liczbę błędów na perseveracyjne i regresyjne.
- Należy odnotować liczbę pominiętych prób, aby uzyskać ogólną miarę poziomu motywacji zwierzęcia.
- Należy analizować wyniki pominięć po każdej codziennej sesji testowej, aby wykluczyć usterkę sprzętu, która może objawiać się wysokimi wynikami pominięć.
- W przypadku braku awarii sprzętu, należy wykluczyć dane dotyczące pominięć u zwierząt z nienaturalnie wysoką liczbą pominięć (zazwyczaj ≥3 odchylenia standardowe powyżej średniej) w którymkolwiek z zadań.
- Rejestruj opóźnienia reakcji, mierząc czas, jaki upłynął między wysunięciem dźwigni a wystąpieniem reakcji. Opóźnienia stanowią przybliżoną miarę funkcji motorycznych i/lub szybkości przetwarzania.
Wyniki
Ostre, odwracalne wyłączenie kory przedczołowej można osiągnąć poprzez infuzję miejscowego środka znieczulającego, chlorowodorku bupiwakainy (0,75%, 0,5 µl), do obszaru prelimbicznego za pomocą chirurgicznie wszczepionej kaniuli infuzyjnej20 około 10 min przed testem. Ponadto można ocenić skutki wyłączenia podczas pierwszego zadania („Set”) lub drugiego zadania („Shift” lub „Reversal”), aby zbadać ewentualne ogólne efekty wpływające na uczenie się. Rycina 2 ilustruje wyniki takich wyłączeń u zwierząt wykonujących sekwencję zmiany strategii sygnał-odpowiedź (Cue-to-Response). Wyłączenie kory przedczołowej pierwszego dnia, podczas zadania sygnał/„Set”, nie upośledziło wyników (Rycina 2A), co sugeruje, że przyśrodkowa kora przedczołowa nie jest niezbędna do wstępnej nauki dyskryminacji. Jednakże wyłączenie kory przedczołowej drugiego dnia, podczas zadania odpowiedź/„Shift”, znacząco upośledziło wyniki, ponieważ zwierzęta wymagały znacznie większej liczby prób do osiągnięcia kryterium wykonania zadania (Rycina 2B). W przypadku wyłączenia kory przedczołowej zwierzęta popełniały więcej błędów o charakterze perseveracyjnym niż błędów typu „nigdy nie nagradzany” w zadaniu Shift (Rycina 2C). Wyniki te powielają wcześniejsze dane dotyczące znaczenia przyśrodkowej kory przedczołowej dla zmiany strategii i w szczególności dla hamowania wcześniej wyuczonej strategii13,20.
Z kolei zwierzęta przeszkolone w sekwencji odwrócenia reakcji (Reversal of Response) nie wykazały tej zależności od kory przedczołowej. Zwierzęta, u których dokonano inaktywacji kory przedczołowej w dniu „odwrócenia” (Reversal), nie różniły się od zwierząt otrzymujących sól fizjologiczną ani w początkowej dyskryminacji reakcji (Rycina 3A), ani w następującym po niej odwróceniu (Rycina 3B)20. Wyniki te są zgodne z wcześniejszymi badaniami wykazującymi, że to kora oczodołowo-czołowa, a nie przyśrodkowa kora przedczołowa, reguluje uczenie się odwracania w różnych zadaniach12,19,26, w tym w zadaniu operacyjnym podobnym do opisanego w niniejszej pracy27.

Rycina 2. Inaktywacja kory przedczołowej upośledza zmianę strategii. A, Liczba prób do osiągnięcia kryterium w początkowym zadaniu dyskryminacji wskazówek („Set”) u szczurów otrzymujących infuzje soli fizjologicznej lub bupiwakainy (Bupi) do przyśrodkowej kory przedczołowej w dniu ustalenia reguły. Inaktywacja przedczołowa nie miała wpływu na początkową akwizycję. B, Liczba prób do osiągnięcia kryterium przy przejściu do zadania reakcji („Shift”) po infuzjach soli fizjologicznej lub bupiwakainy do przyśrodkowej kory przedczołowej w dniu zmiany reguły. Inaktywacja kory przedczołowej upośledziła zmianę strategii na zadanie reakcji. C, Typy błędów popełnianych przez zwierzęta w dniu zmiany reguły. Inaktywacja przedczołowa przed zadaniem zmiany („grupa sal-bupi”) doprowadziła do zwiększenia liczby błędów o charakterze perseweracyjnym. *, p < .05 vs. sól fizjologiczna-sól fizjologiczna. Rycina została zmodyfikowana na podstawie pracy Floresco et al.20 Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 3. Inaktywacja kory przedczołowej nie wpływa na uczenie się odwracania. A, Liczba prób do osiągnięcia kryterium podczas wstępnego treningu dyskryminacji reakcji u szczurów, które w dalszej kolejności otrzymały infuzje soli fizjologicznej lub bupiwakainy (Bupi) do przyśrodkowej kory przedczołowej przed treningiem odwracania. Nie zaobserwowano różnic. B, Liczba prób do osiągnięcia kryterium podczas odwracania dyskryminacji reakcji po infuzjach soli fizjologicznej lub bupiwakainy do przyśrodkowej kory przedczołowej. Inaktywacja kory przedczołowej nie upośledziła uczenia się odwracania. Rycina została zmodyfikowana na podstawie pracy Floresco et al.20
Dane przedstawione na Rysunku 4 stanowią przykład tego, jak wymaganie od szczurów wykonania prób „przypominających” z zastosowaniem starej reguły przed zmianą strategii może pomóc w interpretacji danych. W tym badaniu (Enomotor i Floresco, niepublikowane obserwacje) szczury zostały dopasowane pod kątem wyników nabywania reguły wskazówki wizualnej w dniu 1 (Rysunek 4A). W dniu 2 szczury otrzymały nośnik lub haloperidol w dawce 0,2 mg/kg. Na początku sesji testowej w dniu 2 przeprowadzono 20 prób, w których szczury musiały reagować zgodnie z regułą wskazówki wizualnej nabytej w dniu 1, po czym w trakcie sesji reguła została zmieniona na dyskryminację reakcji. Jak pokazano na Rysunku 4B, traktowanie to upośledziło wydobycie reguły wskazówki wizualnej podczas pierwszych 20 prób przypominających w sesji. Następnie szczury leczone haloperidolem wymagały mniejszej liczby prób do osiągnięcia kryterium (Rysunek 4C) i popełniały mniej błędów perseveracyjnych (Rysunek 4D) podczas zmiany strategii. Należy zauważyć, że gdybyśmy nie zastosowali prób przypominających przed zmianą, dane te mogłyby zostać zinterpretowane jako poprawa zmiany zestawu pod wpływem haloperidolu. Jednak upośledzenie w fazie wydobywania reguły sugeruje, że efekty te należy raczej rozumieć jako upośledzenie pamięci o wcześniej nabytej regule, co mogło doprowadzić do mniejszego konfliktu reakcji, gdy od szczurów wymagano nauki nowej reguły, a tym samym do szybszej zmiany.
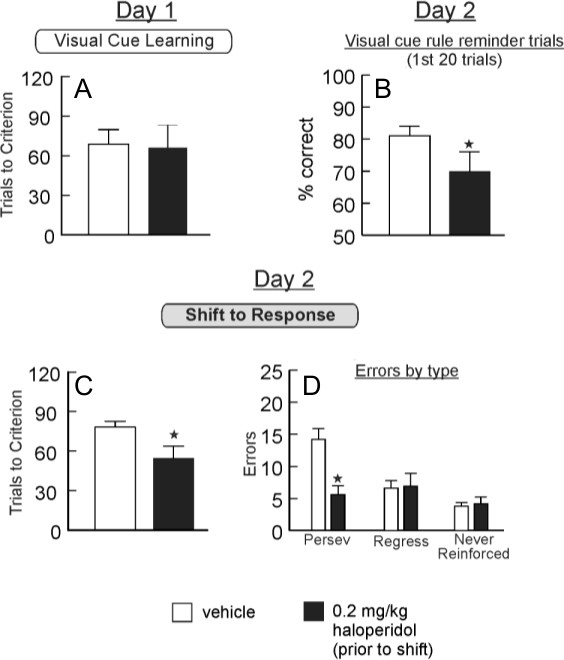
Rycina 4. Upośledzenie wydobywania reguły i ułatwiona zmiana strategii wywołana leczeniem haloperidolem. A, Liczba prób do osiągnięcia kryterium w dyskryminacji sygnałów wizualnych u szczurów, które miały otrzymać nośnik (sól fizjologiczną) lub antagonistę dopaminy D2, haloperidol (0.2 mg/kg), przed sekwencją zmiany strategii w dniu następnym. Zwierzęta w obu grupach wykazały porównywalne wyniki przed podaniem leku. B, Na początku testów w dniu 2. szczury przeszły 20 prób przypominających, w których wymagano od nich dalszego reagowania zgodnie z regułą sygnału wizualnego z dnia 1. Leczenie haloperidolem znacząco obniżyło dokładność podczas tych prób przypominających. C, Po 20 próbach przypominających, w połowie sesji nastąpiła zmiana reguły na dyskryminację reakcji. Szczury leczone haloperidolem wymagały mniejszej liczby prób do osiągnięcia kryterium podczas zmiany. D. Leczenie haloperidolem zredukowało również błędy perseweracyjne. Chociaż dane te mogłyby sugerować poprawę wyników, upośledzenie wydobywania reguły przedstawione w punkcie B wskazuje, że pozorne „usprawnienie zmiany strategii” jest prawdopodobnie bardziej związane z mniejszą interferencją z wcześniej nabytą regułą. Enomoto i Floresco, niepublikowane obserwacje. *, p < .05 względem nośnika.
Manipulacja polegająca na tworzeniu noworodkowej zmiany w brzusznej części hipokampa (NVHL) była stosowana do modelowania niektórych aspektów schizofrenii u szczurów28, w szczególności zaburzeń poznawczych29,30. W skrócie, u 7-dniowych szczurów wywołuje się zmianę ekscytotoksyczną w hipokampie, a testy przeprowadza się u osobników dorosłych (powyżej 60 dni po urodzeniu). Modeluje to hipotetyczną trajektorię rozwojową schizofrenii28. Rysunek 5 ilustruje wyniki szczurów NVHL oraz kontrolnych w wersji z wstępną ekspozycją sekwencji Set-Shifting: Response to Cue. Szczury NVHL nie wykazują zaburzeń podczas nauki pierwszej reguły (Response/”Set”, Rysunek 5A), ale są drastycznie upośledzone w przełączaniu się na nową regułę (Cue/”Shift”), co objawia się zwiększeniem liczby prób wymaganych do osiągnięcia kryterium (Rysunek 5B). Co więcej, deficyt ten wynikał przede wszystkim ze wzrostu liczby błędów perseveracyjnych, jak pokazano na Rysunku 5C, co sugeruje nieprawidłowości w korze przedczołowej20,21. Wyniki te potwierdzają wcześniejsze odkrycia dotyczące zaburzeń zmiany strategii u zwierząt NVHL w zadaniu z labiryntem krzyżowym (cross-maze)29.
Podobnie jak w przypadku danych od zwierząt z dezaktywacją kory przedczołowej przedstawionych powyżej, zwierzęta NVHL nie wykazywały zaburzeń w uczeniu odwracaniu (Rycina 6A,B), choć reagowały wolniej (Rycina 6C,D). Ten negatywny wynik sugeruje, że zaobserwowane deficyty w zmianie strategii nie wynikają z prostej niezdolności do przełączania się między bodźcami21.
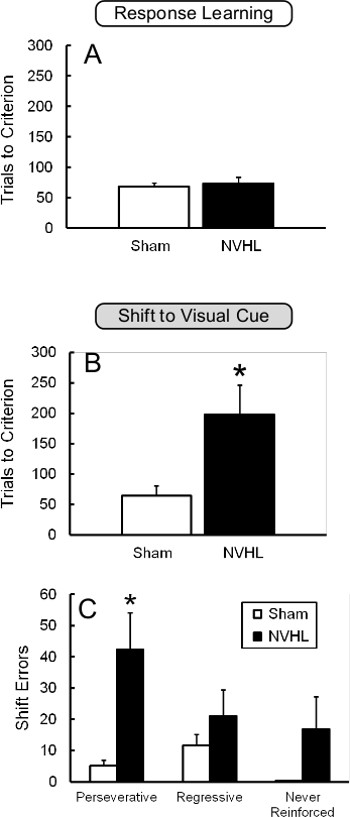
Rysunek 5. Upośledzenie przełączania zestawów w modelu schizofrenii NVHL. Wyniki w wersji wstępnie wyeksponowanej sekwencji przełączania zestawów (reakcja na wskazówkę) u zwierząt NVHL oraz w grupie kontrolnej sham. A, Zwierzęta NVHL nie wykazywały upośledzeń w zadaniu reakcyjnym („zestaw”). B, Jednakże zwierzęta NVHL wymagały znacznie większej liczby prób niż grupa sham, aby osiągnąć kryterium w zadaniu ze wskazówką wizualną („zmiana”). C, Błędy w dniu „zmiany”. Zwierzęta NVHL popełniały więcej błędów perseveracyjnych niż zwierzęta sham, ale nie różniły się liczbą błędów regresywnych ani błędów nigdy niewzmocnionych. *, p < .05 vs. sham. Rysunek zmodyfikowany na podstawie pracy Placek et al.21
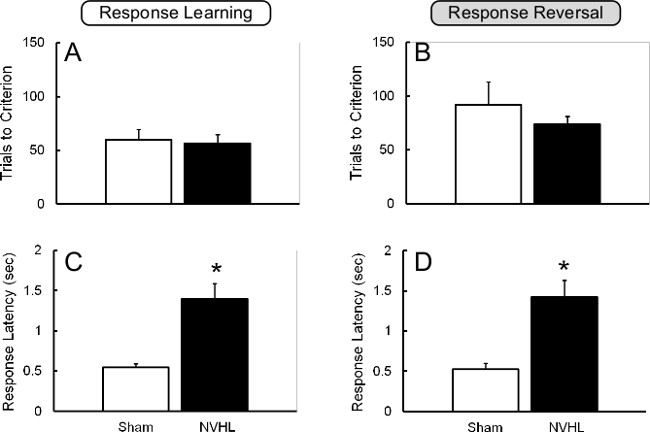
Rycina 6. Brak upośledzenia uczenia się odwracania reakcji w grupie NVHL. A,B, Zwierzęta z NVHL i grupą pozorowaną (sham) nie różniły się w zdolności do opanowania ani początkowego zadania uczenia się odpowiedzi („Set”), ani odwracania reakcji (Response Reversal). C,D, Zwierzęta z NVHL wykazywały dłuższy czas reakcji niż grupa pozorowana w obu zadaniach: „Set” oraz „Reversal”. Rycina została zmodyfikowana na podstawie pracy Placek et al.21
Wreszcie, testy pilotażowe wykazały, że zwierzęta są praktycznie niezdolne do nauczenia się odwrócenia zadania Cue, i.e., naciskania dźwigni znajdującej się po stronie przeciwnej do podświetlonego bodźca świetlnego. Pięć z sześciu przebadanych zwierząt ukończyło 450 prób odwrócenia (3 dni) bez osiągnięcia kryterium, a szóste zwierzę wymagało 418 prób (Brady, niepublikowane obserwacje; dane nie przedstawiono). Prawdopodobnie wynika to z faktu, że światła bodźca są bardzo wyraźnymi i atrakcyjnymi wskazówkami, co sprawia, że szczurom bardzo trudno jest skierować reakcję z dala od nich. W związku z tym, taka sekwencja testów nie jest zalecana.
Dyskusja
Rozwój zadań behawioralnych w celu pomiaru konstruktów poznawczych wyższego rzędu u gryzoni jest niezbędny do pogłębienia wiedzy na temat neurobiologii poznania. Dzięki dobrze skonstruowanym i zatwierdzonym zadaniom gryzonie mogą być oceniane pod kątem zadań o złożoności rywalizującej z zadaniami naczelnych, a nawet ludzi. Tutaj pokazaliśmy, w jaki sposób dwa aspekty funkcji wykonawczych, zmiana strategii i uczenie się zwrotne, mogą być badane u gryzoni przy użyciu zautomatyzowanych technik operacyjnych. Korzystając z tych zautomatyzowanych zadań, powtórzyliśmy wcześniejsze odkrycia w zadaniach cross-maze i diggingu dotyczących neuronalnych substratów uczenia się z przesunięciem i odwróceniem11,13,18-21,27,29, co sugeruje, że zadania instrumentalne są ważnymi ocenami tych konstruktów.
Te zautomatyzowane zadania mają wiele zalet i zalet w porównaniu z istniejącymi niezautomatyzowanymi zadaniami krzyżowania labiryntów i kopania. Najbardziej przekonująca jest lepsza szybkość zbierania danych w zautomatyzowanej wersji operacyjnej. Codzienny trening lub test trwa tylko 30-60 minut i jest w pełni sterowany komputerowo, wymagający minimalnego nadzoru ze strony eksperymentatora. Co więcej, kilka zwierząt może być testowanych jednocześnie za pomocą wielokomorowej konfiguracji operacyjnej. Każda seria zadań, od kształtowania do końcowych testów, może zostać zrealizowana w ciągu około 2-3 tygodni. Kolejną ważną zaletą zautomatyzowanych zadań jest precyzyjna kontrola prezentacji bodźców, co minimalizuje możliwość błędu eksperymentatora. Na przykład, kolejność prezentacji lokalizacji wskazówek w każdej próbie jest losowa i kontrolowana przez komputer, a nie przez eksperymentatora ręcznie przeglądającego listę prób po próbach. Czas między próbami jest precyzyjnie mierzony i spójny, i nie jest zakłócony przez czas potrzebny eksperymentatorowi, aby np. usunąć szczura z labiryntu lub przestawić pojemniki do kopania. Dostarczanie zbrojenia odbywa się automatycznie i nie jest obarczone błędem eksperymentatora (np. zapomnienie o zanęceniu odpowiedniego ramienia labiryntu krzyżowego). Gromadzenie danych jest podobnie ulepszone dzięki automatycznemu rejestrowaniu wzorców odpowiedzi, w tym pomiarowi dokładnych opóźnień odpowiedzi. W przypadku braku innych nieprawidłowości motorycznych, zmiany w opóźnieniach odpowiedzi można wykorzystać do wnioskowania o zmianach prędkości przetwarzania i/lub oceny poziomu złożoności poznawczej zadania21,22.
Zautomatyzowane zadania zachowują również jedną ważną zaletę zadań między labiryntami: możliwość przeprowadzenia szczegółowej analizy rodzajów błędów popełnionych w dniu zmiany lub odwrócenia. Rozróżnienie między błędami zmiany zestawów, które powielają strategię z poprzedniego dnia (błędy perseweracyjne lub regresywne) a błędami, które reprezentują wcześniej niewypróbowane strategie (błędy nigdy nie wzmocnione) może pomóc w scharakteryzowaniu konkretnych deficytów elastyczności behawioralnej. W szczególności błędy persewerywne występujące na wczesnym etapie badań odzwierciedlają niezdolność zwierzęcia do porzucenia poprzedniej strategii, podczas gdy późniejsze błędy regresywne odzwierciedlają niezdolność zwierzęcia do utrzymania nowej strategii po ustaniu perseweracji20. Błędy, które nigdy nie zostały wzmocnione, mogą wskazywać na niepowodzenie w przyswojeniu nowej strategii lub niezdolność do systematycznego reagowania zgodnie z regułą20. Wcześniejsze odkrycia16,17,20 wykazujące dysocjowalne neuroanatomiczne podstawy tego typu błędów są również cenne w interpretacji wyników tych zadań.
Nasze procedury zostały opracowane i zoptymalizowane do stosowania u szczurów. Biorąc to pod uwagę, inne grupy stosowały podobne procedury do testowania zdolności zmiany zestawu u myszy31. Jednak pewne modyfikacje muszą być zastosowane u myszy, aby dostosować się do różnic gatunkowych. Obejmują one dłuższą prezentację wizualnej lampki ostrzegawczej przed wysunięciem dźwigni, trening przez wiele dni przy użyciu 30 prób dziennie oraz wprowadzenie kary za przerwę w grze po nieprawidłowych wyborach. Chociaż te modyfikacje sprawiają, że test ten jest mniej podatny na stosowanie w przypadku wyzwań farmakologicznych, może okazać się przydatny do oceny elastyczności poznawczej u genetycznie zmienionych myszy (chociaż nie jest jasne, czy te modyfikacje zachowałyby wrażliwość kory czołowej zadania).
Oczywiście istnieją również ograniczenia dotyczące tych zadań. Niektóre z tych ograniczeń wynikają ze zautomatyzowanego charakteru zadania, podczas gdy inne są związane z parametrami samego zadania. Jeśli chodzi o to ostatnie, opisane tutaj zadanie polegające na zmianie zestawu (jak również zadanie26 polegające na zmianie zestawu w labiryncie) wykorzystuje ograniczony zestaw bodźców i reakcji. W przeciwieństwie do zadania polegającego na kopaniu, w którym nowe przykłady (np. nieznane zapachy lub media do kopania) mogą być używane do konstruowania nowych zestawów uwagi na każdym etapie11,19, zadanie instrumentalnego zmieniania zestawu z konieczności wymaga wyboru między dwoma bodźcami, które są znane zwierzęciu – albo lewą i prawą lampką wskazującą, albo pozycją lewą i prawą. Oznacza to, że zadania związane z operacyjnym i międzylabiryntowym przerzucaniem zbiorów obejmują zarówno konflikt reakcji, jak i zmianę strategii, chociaż koncepcja przeniesienia strategii do nowego, wcześniej nieistotnego wymiaru bodźca jest zachowana20,23. W związku z tym, opisane tutaj zadania operacyjne polegające na przesunięciu i odwróceniu zestawu nie pozwalają na trzeci wymiar bodźca, jak w zadaniu kopania, które może obejmować kopanie mediów, zapachu i tekstury11,19. Nie uważamy tego jednak za śmiertelną wadę, ponieważ zadanie instrumentalnej zmiany ustawienia nadal wymaga od zwierzęcia stłumienia wcześniej istotnej strategii dyskryminacji i zwrócenia uwagi na wcześniej ignorowany wymiar bodźca. Ponadto wydaje się możliwe, że modyfikacje parametrów sprzętu i zadania mogłyby wspierać dodanie trzeciego wymiaru bodźca, takiego jak sygnały słuchowe lub zapach, chociaż te dodatki prawdopodobnie utrudniłyby uczenie się i byłyby mniej podatne na jednodniowe testy farmakologiczne.
Wreszcie, potencjalnym ograniczeniem każdego zadania opartego na instrumentach jest utrata bezpośrednich informacji na temat zachowania szczurów – tj. eksperymentator nie obserwuje już szczura. Uważamy, że korzyści w zakresie obiektywności i szybkości gromadzenia danych, jakie daje automatyzacja, z nawiązką rekompensują tę stratę, a kamery zamontowane w komorach operacyjnych są stosunkowo łatwym sposobem na przywrócenie indywidualnego dostępu wizualnego w razie potrzeby.
Istnieje kilka kroków, które można podjąć, aby zmaksymalizować sukces przy użyciu tych zadań operacyjnych. Po pierwsze, nie można przecenić znaczenia obchodzenia się ze zwierzętami przed rozpoczęciem treningu; Podobnie jak w przypadku każdego zadania behawioralnego, dobrze traktowane zwierzęta są łatwiejsze w obsłudze, są mniej zestresowane i mają tendencję do generowania mniej zmiennych danych. Po drugie, niektóre testy pilotażowe mogą być konieczne w celu określenia najlepszej pory dnia na przeprowadzenie testów; Testujemy podczas cyklu świetlnego i stwierdzamy, że wydajność jest optymalna, gdy zwierzęta są testowane pod koniec tego cyklu (np. około 16:00 w przypadku cyklu świetlnego kończącego się o 19:00). Po trzecie, należy zadbać o potwierdzenie, że stabilna wydajność jest ustalana na każdym etapie przygotowania do następnego etapu, zanim zwierzę przejdzie do następnego etapu. Na przykład, konsekwentna i solidna wydajność na etapie szkolenia z wysuwaną dźwignią jest doskonałym predyktorem biegłej wydajności w "ustawionym" zadaniu dyskryminacji. Jeśli chodzi o sprzęt, chociaż wszystkie kroki są zautomatyzowane, konieczna jest interwencja eksperymentatora, aby potwierdzić, że wszystkie komponenty są sprawne. Na przykład kontrola sprzętu powinna być przeprowadzana codziennie (lub częściej niż raz dziennie, jeśli testowana jest duża liczba zwierząt), aby upewnić się, że wszystkie światła, dźwignie i systemy dostarczania nagród są sprawne. W szczególności awarie systemów dostarczania nagród (zwłaszcza dozowników granulek) mogą drastycznie wpłynąć na wydajność. Niezwykle duża liczba pominięć w danym dniu może wskazywać na problem ze sprzętem do dostarczania nagrody, dlatego dane wyjściowe powinny być sprawdzane codziennie przez eksperymentatora zaznajomionego z zadaniem i oczekiwanymi poziomami wydajności. W przypadku braku awarii sprzętu, duża liczba pominięć może wskazywać na inne problemy z motywacją lub zdrowiem zwierząt. Jeśli zwierzę jest poza tym zdrowe, ograniczenie pokarmu może zostać zwiększone, aby doprowadzić zwierzę do 80-85% masy ciała podczas karmienia na luzie przez krótki czas, aż do powrotu do sprawności.
Te zadania polegające na przesunięciu i odwróceniu zbiorów mogą być używane w różnych paradygmatach eksperymentalnych. Na przykład można badać skutki manipulacji, takich jak zmiany chorobowe, terapie rozwojowe, manipulacje dietetyczne, długoterminowe leczenie farmakologiczne lub modyfikacje genetyczne. Podczas gdy wpływ leczenia na etap zmiany lub odwrócenia serii może być głównym zainteresowaniem, należy zauważyć, że ponieważ takie przewlekłe lub stałe leczenie musi być koniecznie zastosowane przed rozpoczęciem treningu, należy również zbadać wpływ na wiele etapów wydajności (szczególnie na początkową dyskryminację lub "zestaw")21. Stosowanie ostrych manipulacji, takich jak leczenie farmakologiczne lub tymczasowe inaktywacje neuroanatomiczne, jest szczególnie dobrze przystosowane do tych zadań. W takich przypadkach przydatne jest dodanie trzeciej grupy (jak pokazano na rysunku 2); W ten sposób pierwotna grupa eksperymentalna otrzymuje manipulację będącą przedmiotem zainteresowania w dniu zmiany lub odwrócenia, podczas gdy jedna grupa kontrolna otrzymuje manipulację w dniu początkowej dyskryminacji lub "zestawu" w celu przetestowania szerokiego wpływu na uczenie się, a druga grupa kontrolna nie otrzymuje żadnych manipulacji (lub pozorowanych zabiegów) w obu dniach20,22. Należy zauważyć, że w przypadku takich badań nad ostrą manipulacją wskazane jest dopasowanie szczurów pod kątem wydajności podczas uczenia się początkowego zestawu i przypisanie ich odpowiednio do grupy eksperymentalnej i (drugiej) grupy kontrolnej. Minimalizuje to prawdopodobieństwo, że różnice w wydajności wywołane leczeniem mogą być zakłócone przez indywidualne różnice w tym, jak łatwo szczury uczą się rozróżniać bodźce. Ponadto, jeśli eksperyment wymaga testowania wielu kohort przez tygodnie lub miesiące, każda kohorta powinna obejmować zwierzęta ze wszystkich grup eksperymentalnych. Na przykład badanie testujące skutki ostrych manipulacji farmakologicznych podczas zmiany może wymagać łącznie 48 szczurów i 3 grup eksperymentalnych, testowanych w trzech kohortach po 16 zwierząt każda. W takim przypadku każda kohorta powinna zawierać 5-6 szczurów w każdej grupie eksperymentalnej. Idealnie byłoby, gdyby analizy statystyczne zawierały czynnik, który potwierdza, że nie było różnic w wydajności w każdej kohorcie szczurów. Wreszcie, te zadania instrumentalne mogą być szczególnie przydatne do stosowania technik rejestracji in vivo , w tym mikrodializy, woltamperometrii i elektrofizjologii, ze względu na takie elementy, jak kontrolowane środowisko, precyzyjny czas prezentacji bodźca i reakcji oraz ograniczone ruchy zwierząt, które nie są dostępne lub praktyczne w zadaniach związanych z przechodzeniem przez labirynt lub kopaniem.
Oświadczenia
Publikacja i bezpłatny dostęp do tego manuskryptu były wspierane przez Med Associates, Inc.
Podziękowania
Badania opisane tutaj były wspierane przez grant z Natural Sciences and Engineering Research Council of Canada dla S.B.F.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Pakiet komory behawioralnej z wysuwanymi dźwigniami | Med Associates, Inc. | MED-008-B2 | Wymagane komponenty to dwie wysuwane dźwignie, dwie lampki stymulacyjne, oświetlenie domu i system dostarczania wzmocnienia |
| Oprogramowanie MED-PC | Med Associates, Inc. | Oprogramowanie SOF-735 | |
| MPC2XL | firmy Med Associates, Inc. | SOF-731 | Narzędzie do przesyłania danych do importu surowych danych do formatu Excel |
| Bezpyłowe granulki precyzyjne, 45 mg, cukier | Bio-Serv | F0042 |
Bibliografia
- Floresco, S. B., Zhang, Y., Enomoto, T. Neural circuits subserving behavioral flexibility and their relevance to schizophrenia. Behav Brain Res. 204, 396-409 (2009).
- McKirdy, J., et al. Set shifting and reversal learning in patients with bipolar disorder or schizophrenia. Psychological medicine. 39, 1289-1293 (2009).
- Leeson, V. C., et al. Discrimination learning, reversal, and set-shifting in first-episode schizophrenia: stability over six years and specific associations with medication type and disorganization syndrome. Biol Psychiatry. 66, 586-593 (2009).
- Sullivan, E. V., Rosenbloom, M. J., Pfefferbaum, A. Pattern of motor and cognitive deficits in detoxified alcoholic men. Alcoholism, clinical and experimental research. 24, 611-621 (2000).
- Snyder, H. R. Major depressive disorder is associated with broad impairments on neuropsychological measures of executive function: a meta-analysis and review. Psychological bulletin. 139, 81-132 (2013).
- Cumming, T. B., Marshall, R. S., Lazar, R. M. Stroke, cognitive deficits, and rehabilitation: still an incomplete picture. International journal of stroke : official journal of the International Stroke Society. 8, 38-45 (2013).
- Weintraub, S., Wicklund, A. H., Salmon, D. P. The neuropsychological profile of Alzheimer disease. Cold Spring Harbor perspectives in medicine. 2, a006171(2012).
- Lie, C. H., Specht, K., Marshall, J. C., Fink, G. R. Using fMRI to decompose the neural processes underlying the Wisconsin Card Sorting Test. NeuroImage. 30, 1038-1049 (2006).
- Smith, A. B., Taylor, E., Brammer, M., Rubia, K. Neural correlates of switching set as measured in fast, event-related functional magnetic resonance imaging. Human brain mapping. 21, 247-256 (2004).
- Fellows, L. K., Farah, M. J. Ventromedial frontal cortex mediates affective shifting in humans: evidence from a reversal learning paradigm. Brain. 126, 1830-1837 (2003).
- Birrell, J. M., Brown, V. J. Medial frontal cortex mediates perceptual attentional set shifting in the rat. Journal of Neuroscience. 20, 4320-4324 (2000).
- Bissonette, G. B., et al. Double dissociation of the effects of medial and orbital prefrontal cortical lesions on attentional and affective shifts in mice. J Neurosci. 28, 11124-11130 (2008).
- Ragozzino, M. E., Detrick, S., Kesner, R. P. Involvement of the prelimbic-infralimbic areas of the rodent prefrontal cortex in behavioral flexibility for place and response learning. Journal of Neuroscience. 19, 4585-4594 (1999).
- Floresco, S. B., Magyar, O., Ghods-Sharifi, S., Vexelman, C., Tse, M. T. Multiple dopamine receptor subtypes in the medial prefrontal cortex of the rat regulate set-shifting. Neuropsychopharmacology. 31, 297-309 (2006).
- Mackintosh, N. J., Holgate, V. Serial reversal training and nonreversal shift learning. Journal of comparative and physiological psyhology. 67, 89-93 (1969).
- Floresco, S. B., Ghods-Sharifi, S., Vexelman, C., Magyar, O. Dissociable roles for the nucleus accumbens core and shell in regulating set shifting. Journal of Neuroscience. 26, 2449-2457 (2006).
- Block, A. E., Dhanji, H., Thompson-Tardif, S. F., Floresco, S. B. Thalamic-prefrontal cortical-ventral striatal circuitry mediates dissociable components of strategy set shifting. Cereb Cortex. 17, 1625-1636 (2007).
- Stefani, M. R., Moghaddam, B. Systemic and prefrontal cortical NMDA receptor blockade differentially affect discrimination learning and set-shift ability in rats. Behav.Neurosci. 119, 420-428 (2005).
- McAlonan, K., Brown, V. J. Orbital prefrontal cortex mediates reversal learning and not attentional set shifting in the rat. Behav. Brain Res. 146, 97-103 (2003).
- Floresco, S. B., Block, A. E., Tse, M. T. Inactivation of the medial prefrontal cortex of the rat impairs strategy set-shifting, but not reversal learning, using a novel, automated procedure. Behav Brain Res. 190, 85-96 (2008).
- Placek, K., Dippel, W. C., Jones, S., Brady, A. M. Impairments in set-shifting but not reversal learning in the neonatal ventral hippocampal lesion model of schizophrenia: Further evidence for medial prefrontal deficits. Behav Brain Res. 256C, 405-413 (2013).
- Enomoto, T., Tse, M. T., Floresco, S. B. Reducing prefrontal gamma-aminobutyric acid activity induces cognitive, behavioral, and dopaminergic abnormalities that resemble schizophrenia. Biol Psychiatry. 69, 432-441 (2011).
- Haluk, D. M., Floresco, S. B. Ventral striatal dopamine modulation of different forms of behavioral flexibility. Neuropsychopharmacology. 34, 2041-2052 (2009).
- Sorge, R. E., et al. Olfactory exposure to males, including men, causes stress and related analgesia in rodents. Nature methods. 11, 629-632 (2014).
- Trantham-Davidson, H., et al. Chronic alcohol disrupts dopamine receptor activity and the cognitive function of the medial prefrontal cortex. J Neurosci. 34, 3706-3718 (2014).
- Ghods-Sharifi, S., Haluk, D. M., Floresco, S. B. Differential effects of inactivation of the orbitofrontal cortex on strategy set-shifting and reversal learning. Neurobiol Learn Mem. 89, 567-573 (2008).
- Boulougouris, V., Dalley, J. W., Robbins, T. W. Effects of orbitofrontal, infralimbic and prelimbic cortical lesions on serial spatial reversal learning in the rat. Behav Brain Res. 179, 219-228 (2007).
- Tseng, K. Y., Chambers, R. A., Lipska, B. K. The neonatal ventral hippocampal lesion as a heuristic neurodevelopmental model of schizophrenia. Behavioral Brain Research. 204, 295-305 (2009).
- Brady, A. M. Neonatal ventral hippocampal lesions disrupt set-shifting ability in adult rats. Behav Brain Res. 205, 294-298 (2009).
- Brady, A. M., Saul, R. D., Wiest, M. K. Selective deficits in spatial working memory in the neonatal ventral hippocampal lesion rat model of schizophrenia. Neuropharmacology. 59, 605-611 (2010).
- Ortega, L. A., Tracy, B. A., Gould, T. J., Parikh, V. Effects of chronic low- and high-dose nicotine on cognitive flexibility in C57BL/6J mice. Behav Brain Res. 238, 134-145 (2013).
Przedruki i uprawnienia
