Elektroencefalografia o wysokiej gęstości (dEEG) jest coraz częściej stosowana do badania rozwoju i plastyczności mózgu we wczesnych latach życia. W tym artykule przedstawiamy zastosowanie zaawansowanych technik analizy, które opierają się na tradycyjnym zapisie EEG, aby zrozumieć dynamikę oscylacyjną szybkiego przetwarzania słuchowego w mózgu niemowlęcia.
Artykuł metodologiczny
Przetwarzanie słuchowe u niemowląt i oscylacje mózgu związane ze zdarzeniami
W tym artykule
Podsumowanie
Streszczenie
Szybkie przetwarzanie słuchowe i zdolność wykrywania zmian akustycznych odgrywają kluczową rolę w umożliwieniu ludzkim niemowlętom efektywnego przetwarzania drobnych zmian spektralnych i czasowych, które są charakterystyczne dla ludzkiego języka. Umiejętności te stanowią podstawę skutecznego przyswajania języka; Niemowlęta mogą skupić się na dźwiękach ich języka ojczystego. Inwazyjne procedury na zwierzętach i potencjały rejestrowane na skórze głowy u dorosłych ludzi sugerują, że jednoczesna, rytmiczna aktywność (oscylacje) między obszarami mózgu i w ich obrębie ma fundamentalne znaczenie dla rozwoju sensorycznego; określanie rozdzielczości, z jaką analizowane są przychodzące bodźce. W tej chwili niewiele wiadomo na temat dynamiki oscylacyjnej w rozwoju niemowląt u ludzi. Jednak neurofizjologia zwierząt i dane EEG dorosłych stanowią podstawę do silnej hipotezy, że szybkie przetwarzanie słuchowe u niemowląt odbywa się za pośrednictwem synchronizacji oscylacyjnej w dyskretnych pasmach częstotliwości. Aby to zbadać, zbadano 128-kanałowe odpowiedzi EEG o dużej gęstości u 4-miesięcznych niemowląt na zmianę częstotliwości w parach tonów, przedstawione w dwóch warunkach szybkości (Rapid: 70 ms ISI i Control: 300 ms ISI). Aby określić pasmo częstotliwości i wielkość aktywności, średnie reakcje słuchowe wywołane zostały najpierw zarejestrowane razem z odpowiednimi do wieku szablonami mózgu. Następnie zidentyfikowano i zlokalizowano główne składniki odpowiedzi za pomocą dwudipolowego modelu aktywności mózgu. Jednopróbowa analiza mocy oscylacyjnej wykazała solidny wskaźnik przetwarzania zmian częstotliwości w wybuchach aktywności pasma Theta (3 - 8 Hz) zarówno w prawej, jak i lewej korze słuchowej, przy czym aktywacja lewej strony jest bardziej widoczna w stanie Rapid. Metody te przyniosły dane, które są nie tylko jednymi z pierwszych zgłoszonych analiz oscylacji wywołanych u niemowląt, ale także, co ważne, są produktem dobrze ugruntowanej metody rejestrowania i analizowania czystych, skrupulatnie zebranych EEG i ERP niemowląt. W tym artykule opisujemy naszą metodę aplikacji siatki EEG u niemowląt, rejestrowania, dynamicznej analizy odpowiedzi mózgu i reprezentatywnych wyników.
Wprowadzenie
W szerokim spektrum zaburzeń rozwojowych, staje się coraz bardziej jasne, że kluczem do wczesnej identyfikacji i ostatecznie leczenia jest zrozumienie wczesnych mechanizmów, które wchodzą w grę, gdy rozwijający się mózg tworzy funkcjonalne sieci. W związku z tym rośnie zainteresowanie zrozumieniem czasowej dynamiki wzorców neuronalnych, które wpływają na poznanie. W szczególności specyficzne funkcje poznawcze są różnie skorelowane z aktywnością oscylacyjną w określonych pasmach częstotliwości (np. cykliczne fluktuacje potencjałów błonowych pojedynczej komórki lub populacji) 1. Wcześniejsze badania wykazały, że dynamika oscylacyjna odgrywa kluczową rolę w zależnej od aktywności samoorganizacji rozwijających się sieci2-4, kontroluje pobudliwość neuronów5,6 i integruje bodźce sensoryczne7,8. Uważa się, że oscylacyjna aktywność mózgu jest metabolicznie korzystna9,10, zwiększając wydajność różnych funkcji przetwarzania sensorycznego i koordynację funkcji wyższego poziomu, takich jak poznanie i język. Jednak systematyczne badania roli synchronizacji neuronalnej w zależności od wieku i powiązań z wynikami behawioralnymi u ludzkich niemowląt nie zostały jeszcze zakończone. Ważnym krokiem w kierunku osiągnięcia tego celu jest osiągnięcie głębszego zrozumienia powstawania i dojrzewania dynamiki czasowej i mechanizmów oscylacyjnych, które wspierają rozwój procesów poznawczych, w tym wczesnego języka.
Kluczowym elementem rozwoju języka jest zdolność do dokładnego przetwarzania i kategoryzowania sygnałów akustycznych, które zmieniają się szybko: często rzędu zaledwie kilkudziesięciu milisekund. Na przykład dynamika akustyczna słów "tata" i "zły" różni się akustycznie tylko przez pierwsze 40 ms sylaby, a mimo to mają one bardzo różne znaczenia i skojarzenia. Wcześniejsze badania wskazują na dojrzałą trajektorię zdolności receptywnej na różnice akustyczne i językowe. Już w wieku 2 miesięcy niemowlęta wykazują zdolność do rozróżniania szybkich zmian częstotliwości (np. < 100 ms); sugerując, że istnieje "sprzęt" do wykrywania różnicy między dwiema akustycznie podobnymi sylabami. W ciągu najbliższych kilku miesięcy niemowlęta potrafią rozróżniać coraz mniejsze różnice, rozwijają percepcję kategoryczną i wykazują specjalizację korową w zakresie dźwięków sylab języka ojczystego11-14. Ponieważ złożona percepcja dźwięku opiera się na funkcji podstawowych mechanizmów przetwarzania, uważa się, że deficyty w zdolności do postrzegania szybko zmieniających się różnic akustycznych – nawet w przypadku prostych dźwięków, takich jak tony – mogą być wczesnymi wskaźnikami późniejszego upośledzenia językowego.
Poprzednia praca Choudhury i Benasich w tym laboratorium zdecydowanie wspiera tę hipotezę, pokazując, że zdolność niemowlęcia do przetwarzania bardzo szybkich zmian w prostych dźwiękach (np. tonach) może przewidywać 3- i 4-letnie zdolności językowe i poznawcze16,17. Dane te potwierdzają, że reakcje mózgu niemowląt w wieku przedjęzykowym mogą stanowić wymierny wskaźnik przetwarzania słuchowego i postępu rozwojowego. Przedstawione tu badania i metody badają kluczowe aspekty mechanizmu leżącego u podstaw tej zależności. Kilka kierunków badań wskazuje obecnie, że szczytowe opóźnienie i amplituda fal ERP powstają w wyniku sumowania dynamiki spektrotemporalnej w oscylacjach EEG wielu generatorów18-23. Analiza spektrotemporalna pozwala również na rozdzielenie informacji o fazie i mocy. Aktywność synchronizowana fazowo odzwierciedla część odpowiedzi neuronalnej, która jest wywoływana przez bodziec. Ten typ informacji jest podobny do tego, co można uzyskać z ERP, ponieważ odpowiedzi są uśredniane względem zdarzenia zablokowanego w czasie. Jednak czas pewnej aktywności neuronalnej może się różnić w zależności od próby. W analizie ERP czynność ta jest "uśredniana"; Jednak w analizie zmian mocy z próby na próbę, informacje te można odzyskać i przeanalizować. W związku z tym analiza spektroczasowa fazy i mocy może dostarczyć dodatkowych informacji na temat odpowiedzi neuronalnej w porównaniu z konwencjonalnym ERP. Jeśli chodzi o rozwój niemowląt, istnieje wiele dowodów na to, że oscylacje przyczyniają się do rozwoju obwodów nerwowych w modelach zwierzęcych2,3, ale mechanizmy te dopiero zaczynają być badane w populacji ludzkiej. Prace z tego laboratorium wykazały oscylacyjne korelaty theta i gamma specjalizacji języka ojczystego w wieku 6 miesięcy24. Podkreśla to funkcjonalność hierarchii oscylacyjnych w okresie niemowlęcym.
Globalna hipoteza, oparta na dowodach przedstawionych powyżej, mówi, że synchronizacja wywołanych oscylacji w korze słuchowej wspiera rozwój mózgu niemowlęcia. Jako pierwszy krok w testowaniu tej hipotezy uzyskano "punkt odniesienia" przetwarzania we wczesnym dzieciństwie; Mianowicie 4-miesięczny wiek życia, który obecnie uważa się za poprzedzający "zawężenie percepcyjne" w przypadku specjalizacji języka ojczystego25,26. W związku z tym przeprowadziliśmy jednopróbową analizę częstotliwości danych EEG niemowląt zarejestrowanych podczas biernego słuchania par tonów o zmiennej wysokości i niezmiennej wysokości dźwięku przedstawionych w "dziwacznym paradygmacie" składającym się z dwóch warunków szybkości (Warunek kontrolny: 300 ms interwał między bodźcami; Stan szybki: 70 ms interwał między bodźcami).
Tutaj ilustrujemy tę metodę za pomocą bodźców z badań skupiających się na szybkim przetwarzaniu słuchowym. W tych badaniach zastosowano "paradygmat dziwaczny" do oceny aktywności neuronalnej wobec nieprzewidywalnych, ale rozpoznawalnych zdarzeń. W tym paradygmacie reakcja mózgu na nieprzewidywalne lub "dziwne" bodźce jest często nazywana reakcjami "dewiacyjnymi", podczas gdy reakcja na przewidywalny bodziec, prezentowana przez większość czasu, jest zwykle nazywana "standardową" reakcją mózgu. Reakcje na bodźce prezentowane w dziwacznym paradygmacie mogą być automatycznie wywoływane bez skupienia uwagi, co sprawia, że paradygmat ten jest łatwy w użyciu u bardzo małych niemowląt. Wszystkie bodźce słuchowe są prezentowane przez głośniki w polu swobodnym w odstępach czasu, które różnią się w zależności od badania. Jak wspomniano wcześniej, w niniejszym badaniu wykorzystano dźwięki, które wskazują na zdolności szybkiego przetwarzania słuchowego (RAP), czyli dźwięki zawierające dziesiątki milisekund zmiany akustycznej16,17,27,28. Można zauważyć, że wiele innych typów bodźców jest przydatnych do testowania dyskryminacji neurofizjologicznej, w tym dźwięki spółgłoskowo-samogłoskowe (CV), a także dewiacje odzwierciedlające zmiany częstotliwości lub czasu trwania, z wstawioną przerwą i/lub rosnącymi lub malejącymi częstotliwościami. Na koniec zalecamy również nagrywanie spontanicznego EEG podczas "cichej zabawy", w której nie występuje żaden bodziec słuchowy. Dane te mogą być następnie wykorzystane do pomiaru sprzężenia oscylacyjnego i koherencji w przypadku braku powtarzającej się stymulacji.
Rejestrowanie aktywności EEG z populacji niemowląt stanowi zestaw wyjątkowych wyzwań. Na przykład współpraca z umieszczeniem elektrod i pozostawieniem ich na miejscu na czas trwania eksperymentu, zminimalizowanie ruchu w celu zapobieżenia artefaktom EEG oraz utrzymanie zaangażowania i rozproszenia uwagi dziecka za pomocą cichych zabawek stanowią wyzwania. Ponadto dane dotyczące niemowląt nie nadają się łatwo do prostego zastosowania protokołów opracowanych na podstawie danych dorosłych/starszych dzieci. W wielu przypadkach związek między komponentami obserwowanymi w EEG u niemowląt a potencjałami związanymi ze zdarzeniami (ERP) nie jest tak jednoznaczny i nie zawsze odzwierciedla to, co jest akceptowane u osoby dorosłej. Podczas gdy badania rozwojowe mają ogromny potencjał w zrozumieniu genezy typowych i zaburzonych funkcji mózgu, rejestrowanie wiarygodnych i możliwych do zinterpretowania reakcji mózgu u ludzkich niemowląt wymaga wysokiego poziomu biegłości zarówno w sferze technicznej, jak i interpersonalnej. Wyzwania te można jednak przezwyciężyć, a wiarygodne dane EEG i ERP mogą być rejestrowane od niemowląt w różnym wieku przy użyciu różnych paradygmatów. Poniżej opisujemy ogólną metodę analizy wykorzystującą dostępne na rynku oprogramowanie do rejestracji i analizy ERP w połączeniu z bezpłatnym pakietem analiz ERP o otwartym kodzie źródłowym, który działa w środowisku MATLAB29.
Zastosowanie metod analizy oscylacyjnej do zapisów reakcji mózgu niemowlęcia pozwala na eksplorację bardziej mechanistycznych pytań o rozwój synchronizacji neuronów w odniesieniu do przyswajania języka i przypuszczalnych mechanizmów leżących u podstaw, gdy ta synchronizacja jest zagrożona. Powiązane wysiłki z wykorzystaniem innych bodźców, takich jak sylaby mowy24 oraz analiza spontanicznych lub "spoczynkowych"oscylacji1 w analizach podłużnych lub w połączeniu z wczesnymi paradygmatami treningowymi, oferują wgląd w czasową, przestrzenną i spektralną dynamikę typowych i nieuporządkowanych trajektorii rozwojowych. Mamy nadzieję, że wysiłki te poszerzą naszą wiedzę na temat podstaw rozwoju słuchowego i plastyczności oraz pomogą w identyfikacji i strategiach korygowania rozwojowych zaburzeń językowych.
Protokół
Wszelka praca z ludźmi wymaga zgody i nadzoru Instytucjonalnej Komisji Rewizyjnej. Opisane tutaj metody, gdy są stosowane w badaniach, zostały zweryfikowane i zatwierdzone przez Program Ochrony Ludzi za pośrednictwem Rutgers Arts and Sciences Institutional Review Board (IRB).
1. Przygotowanie
- Zaplanuj dziecko na 1 godzinę badania w komorze wyciszonej i ekranowanej elektrycznie. Protokół badania przedstawiony w tym artykule, który przyniósł reprezentatywne dane, obejmuje 20 - 30 minut badania EEG.
- Przydziel trzy osoby na sesję testową: jeden "główny tester", jeden "asystent sieciowy" i jeden "artysta estradowy".
- Do zapisu EEG niemowląt o dużej gęstości należy użyć co najmniej 64-kanałowej siatki. Dla prezentowanych tutaj reprezentatywnych danych wykorzystano 128-kanałową sieć czujników.
2. Aplikacja sieciowa
- Ustaw następujące materiały w komorze nagraniowej: samoprzylepną taśmę pakową Coban, taśmę mierniczą, pisak do znakowania, 2 ręczniki i pipety. Skalibruj dźwięki do poziomu testowego (np. dB SPL, HL itp.).
- Przygotuj roztwór elektrolitu (woda destylowana, chlorek potasu i szampon dla dzieci) na długo przed szacowaną godziną przyjazdu rodziny. Aby upewnić się, że siatka nie jest zbyt zimna na głowie dziecka, podgrzej 8 uncji wody, którą należy dodać do roztworu tuż przed aplikacją.
- Po przyjeździe rodziny uzyskaj zgodę za pomocą formularzy zatwierdzonych przez IRB.
- W komorze testowej posadź niemowlę na kolanach opiekuna i poproś animatora, aby zaczął bawić się z niemowlęciem. Jeśli jest to pierwsza wizyta, wyjaśnij procedurę składania wniosków netto.
- Zmierz obwód głowy niemowlęcia w najszerszym miejscu głowy i na podstawie tego pomiaru wybierz rozmiar siatki. Aby uzyskać najlepsze dopasowanie, wybierz siatkę o mniejszym rozmiarze, jeśli obwód jest zbliżony do minimalnego rozmiaru dla jednego wieku. Zanurz wybraną siatkę w roztworze elektrolitu.
- Zmierz nasiona do nasion i zaznacz skórę głowy na 1/2 całkowitego pomiaru. Zrób to samo dla pomiaru od ucha do ucha. Ostatnim znakiem jest Cz (wierzchołek).
- Usuń nadmiar roztworu z siatki, kładąc go na suchym ręczniku. Niech asystent sieci odwróci siatkę i chwyć elektrodę Cz; Trzymając siatkę tak, aby główny tester mógł ustawić palce z przodu siatki.
- Odwróć siatkę i umieść siatkę na głowie niemowlęcia, podczas gdy asystent siatki przesuwa pasek podbródkowy i kolorowe nici przednie (łączące elektrodę podbródkową i pasek podbródkowy) na zewnątrz siatki.
- Dostosuj pozycję siatki na głowie niemowlęcia, umieszczając Cz w znaku wierzchołka skóry głowy. Ustawij/wyrównaj każdą z elektrod, zaczynając od tyłu i kierując się do przodu, upewniając się, że między każdą elektrodą a powierzchnią głowicy jest kąt prosty.
- Zbierz przewody, wyreguluj pasek podbródkowy, zabezpiecz przewody taśmą Coban i podłącz złącze sieciowe.
- Zmierz impedancję elektrody przy progu < 50 KOhms lub zgodnie z instrukcjami systemu. Jeśli niektóre elektrody mają wysoką impedancję, ponownie namocz elektrodę pipetą wypełnioną elektrolitem i delikatnie przesuń włosy spod elektrody.
3. Prezentacja bodźców i zapis EEG
- Prezentuj bodźce słuchowe w polu swobodnym z głośnikami w równej odległości od głowy niemowlęcia.
UWAGA: Reprezentatywne parametry bodźca badanego były następujące: pary tonów 70 ms z częstotliwością podstawową 800 lub 1200 Hz i 15 harmonicznych (6 dB roll-off na oktawę) są przedstawione w dwóch blokach (interwał między bodźcami 70 lub 300 ms). Pary niskie-wysokie (800 Hz - 1200 Hz) są przedstawiane jako odchylenia (15% = 125 prób) wśród standardów low-low (800 Hz - 800 Hz) (85% = 708 prób). - Zapisz EEG zgodnie z instrukcjami sprzętowymi i programowymi. Dla reprezentatywnych danych należy użyć następujących parametrów: Częstotliwość próbkowania: 250 Hz, Dolnoprzepustowy filtr sprzętowy: 100 Hz, Eliptyczny, Filtr górnoprzepustowy: 0,1 Hz, Auto: ustawiony na Nyquist, Wzmocnienie płytki: 1.
- Zapewnij niemowlęciu spokojne, ciche i umiarkowanie angażujące środowisko podczas nagrywania. Zaangażuj niemowlę, odtwarzając odpowiedni dla jego wieku niemy film lub ciche zabawki (np. puszczaj bańki, wskazuj obrazki w książkach, zabawa kukiełkami). Wyposażenie opiekuna w słuchawki do słuchania muzyki pozwala uniknąć niezamierzonej ingerencji opiekuna w reakcję niemowlęcia. Jeśli niemowlę jest niespokojne, co ma wpływ na EEG, wstrzymaj prezentację bodźca i zapis EEG do czasu, aż będzie można przywrócić spokojne środowisko.
- Po zakończeniu eksperymentu delikatnie zdejmij siatkę i osusz włosy i głowę niemowlęcia.
- Zapisz i wykonaj kopię zapasową surowych, niefiltrowanych danych EEG przed zamknięciem programów na koniec sesji testowej.
4. Przetwarzanie danych - ERP
Wizualnie sprawdź surowe dane EEG i odrzuć segmenty z artefaktem o wysokiej amplitudzie.
UWAGA: Odrzucaj kanały o dużej amplitudzie i interpoluj. Maksymalny procent odrzuconych kanałów powinien być ustawiony na 30%. Alternatywne metody (np. ICA, PCA, zob. również odniesienie 30) mogą być stosowane w celu zmniejszenia lub odrzucenia artefaktów obecnych w danych.
- Filtruj dane za pomocą wstępnie ustalonych parametrów, które są zgodne z aktywnością kory mózgowej. W przypadku niemowląt należy użyć filtra pasmowoprzepustowego off-line o częstotliwości 1 - 15 Hz.
- Segmentuj dane ciągłe, aby utworzyć epoki wokół "czasu 0" (początek bodźca) zgodnie z instrukcjami oprogramowania. W przypadku segmentacji należy uwzględnić wystarczającą ilość czasu przed bodźcem, aby ustalić aktywność wyjściową, oraz czas po bodźcu, aby uchwycić całą odpowiedź.
- Odrzuć hałaśliwe epoki zgodnie z odpowiednimi kryteriami odrzucenia (np. +/- 200 μV dla niemowląt). Ustaw maksymalny procent odrzuconych epok na 30%.
- Uśrednij epoki dla każdej osoby i każdego warunku, a następnie połącz te średnie według grupy i warunku, aby uzyskać średnie końcowe.
- Jeśli liczba epok zawartych w każdej średniej różni się w zależności od badanych, należy zważyć liczbę epok tak, aby osoby z większą/mniejszą liczbą epok były jednakowo cenione.
- Aby zważyć średnią główną, oblicz indywidualną średnią z każdego warunku jako n razy przebieg, gdzie n równa się liczbie epok składających się na średnią, a następnie podziel przez całkowitą liczbę epok dla wszystkich badanych. Ta metoda nadaje każdej próbie równą wagę w końcowej średniej.
5. Przetwarzanie danych – lokalizacja źródłowa
W przypadku danych dotyczących niemowląt należy zarejestrować jednocześnie każdy indywidualny i średni plik ERP z odpowiednim dla wieku szablonem MR lub indywidualnym skanem MR (patrz poprzednie publikacje 31,32).
UWAGA: W procesie korejestracji pozycje elektrod i zrekonstruowana głowica są rejestrowane w jednym układzie współrzędnych. Do zdefiniowania modelu dipola można użyć średnich średnich.
Oszacuj liczbę i lokalizację źródeł bazowych, które mają być dopasowane do danych. Dla paradygmatu słuchowego użyj dwóch dipoli z dowolnym położeniem i obrotem.
UWAGA: Oszacowanie źródła jest następnie automatycznie prowadzone przez minimalizację funkcji kosztu, która jest ważoną kombinacją 4 kryteriów dopasowania resztkowego w celu uzyskania lokalizacji "najlepszego dopasowania" do interesującego Cię okna czasowego.
- Upewnij się, że stosuje się parametry odpowiednie do wieku dla grubości skóry głowy, grubości czaszki, szerokości przestrzeni podpajęczynówkowej i przewodnictwa kostnego, ponieważ czynniki te zmieniają się szybko podczas rozwoju. Dla danych reprezentatywnych parametry są następujące: czaszka: 1,5 mm; skóra głowy: 2,5 mm; przestrzeń podpajęczynówkowa: 1,7 mm; Przewodność kostna: 0,0581.
- Zaczynając od średniej końcowej ERP, wybierz interesujące Cię okno czasowe odpowiadające szczytowi. Parametry konserwatywne to zazwyczaj +/- 20 ms wokół szczytu zainteresowania 31.
- Sprawdź "dobroć dopasowania" dla rozwiązania dipolowego, korzystając z danych wyjściowych oprogramowania o wariancji resztkowej. Jest to ilość sygnału, która pozostaje niewyjaśniona w danym oknie czasowym dopasowania przez obecny model dipolowy. Dostosuj okno czasu, aby zminimalizować wariancję resztkową. Użyj rozproszonego modelu źródłowego (CLARA), aby sprawdzić rozwiązanie w rozszerzonym regionie działania.
- Zapisz rozwiązanie źródła dipolowego i przebiegi dla każdego warunku i szczytu.
- Powtórz tę procedurę dla każdego pojedynczego pliku średniej.
- Do analizy statystycznej lokalizacji źródła należy użyć wartości szczytowego opóźnienia, amplitudy i współrzędnych lokalizacji w kierunkach X (przyśrodkowo-bocznym), Y (przednio-tylnym) i Z (górny-dolny) dla każdego dipola z każdego pojedynczego uśrednionego roztworu pliku. W przedstawionym tutaj przypadku 2X2 Powtarzane pomiary ANOVA (bodziec (standardowy, odchylenie) X Półkula (po lewej, po prawej) dla amplitudy i opóźnienia źródeł mogą być przydatne do przyjrzenia się sile i taktowaniu generatorów. Współrzędne źródłowe można ocenić w ten sam sposób (do wglądu, 31,32).
6. Przetwarzanie danych – analiza czasowo-częstotliwościowa w przestrzeni źródłowej
- Zastosuj roztwór modelu dipolowego do surowych, niefiltrowanych, ciągłych danych EEG.
- Nałóż roztwór źródłowy (zapisany w kroku 5.6.) do pliku z surowymi danymi EEG jako wirtualny montaż elektrody.
UWAGA: Zastosowanie modelu dipolowego w ten sposób nakłada stały filtr przestrzenny na nagranie kanału powierzchniowego (przestrzeń sensoryczna) w celu przekształcenia ciągłego EEG o dużej gęstości w wirtualny montaż 2-źródłowy (przestrzeń źródła mózgu).
- Nałóż roztwór źródłowy (zapisany w kroku 5.6.) do pliku z surowymi danymi EEG jako wirtualny montaż elektrody.
- Przekształć sygnał źródłowy pojedynczej próby w dziedzinie czasu w dziedzinę częstotliwości czasowej (rysunek 1).
UWAGA: Obecnie można zastosować kilka podejść do przekształcenia danych z pojedynczej próby w dziedzinę czasu-częstotliwości, w tym analizę falkową i zastosowanie transformaty Hilberta do filtrowanych danych. Chociaż porównanie tych metod wykracza poza zakres tego artykułu, kilka opublikowanych artykułów dokładnie opisało te metody 33-36. Analiza czasowo-częstotliwościowa przy użyciu złożonej procedury demodulacji, którą można znaleźć w dostępnym na rynku oprogramowaniu do koherencji 37, oblicza chwilową amplitudę obwiedni i fazę każdej aktywności mózgu w funkcji częstotliwości i czasu 37-39. W ten sposób powstają pomiary chwilowych przesunięć mocy (Temporal Spectral Evolution, TSE) i synchronizacji fazowej (Inter-trial Phase Locking, ITPL).- Użyj następujących parametrów: przedziały częstotliwości o szerokości 1 Hz od 2 do 80 Hz i rozdzielczość czasowa 50 ms od -1 500 do 1 500 ms. Okno czasowe epoki powinno być wystarczająco długie, aby umożliwić filtrowanie lub przetwarzanie z najniższą żądaną częstotliwością bez powodowania artefaktów 40,41.
- Wizualizuj szczyty częstotliwości aktywności w EEG, aby uniknąć interpretacji możliwych fałszywych oscylacji związanych z artefaktami lub kołem 41,42.
- Wykonaj testy permutacji i analizę skupień, aby określić regiony o znaczących różnicach między warunkami i grupami 24,43.
Wyniki
Potencjały wywołane zdarzeniami u niemowląt
Potencjały wywołane (ERP) u niemowląt są zazwyczaj większe niż u dorosłych i w zależności od wieku mogą wykazywać mniejszą lub większą liczbę szczytów aktywacji w porównaniu z odpowiedziami dojrzałymi 44. Poniżej przedstawiamy reprezentatywne średnie odpowiedzi (Grand Average) od dwudziestu trzech 4-miesięcznych niemowląt 43 (Rysunek 2). Paradygmat oddball pozwala ustalić, czy mózg niemowlęcia potrafi rozpoznać różnicę między dwoma zdarzeniami. W reprezentatywnych wynikach odpowiedź na ton zmienny, dewiający (DEV, 800-1,200Hz, czerwona linia), wywołuje dodatkowy szczyt aktywacji w porównaniu z parami tonów niezmiennych (STD, 800-800Hz, czarna linia). Wynik ten jest widoczny zarówno w warunkach tempa kontrolnego (ISI 300 msec, lewa strona), jak i tempa szybkiego (ISI 70 msec, prawa strona). Przedstawiono przykładowe odpowiedzi z elektrod Fz (linia środkowa czołowa), C3 (centralna, prawa) i C4 (centralna, lewa). Wyliczona fala różnicowa (Dewiająca minus Standardowa) jest również przedstawiona szarymi liniami. Dodatkowy szczyt aktywacji sugeruje, że mózg niemowlęcia w tym wieku potrafi rozróżnić różnicę między tonami przy obu tempach prezentacji.
Kształty fal źródłowych niemowląt
Aktywność źródła z niewielką wariancją szczątkową powinna odpowiadać szczytom ERP, co oznacza „dobre dopasowanie” między danymi oryginalnymi a zlokalizowanymi danymi przekształconymi z poziomu źródła. Na reprezentatywnych danych przedstawiamy lokalizację modelu źródłowego o najlepszym dopasowaniu dwóch dipoli dla średniej ERP niemowląt w warunku STD (tonowo-niezmiennym) w rozłożeniu na modelu CLARA (Rysunek 3). Obliczenia wyraźnie wskazują na lewostronną i prawostronną aktywację słuchową w warunkach Control i Rapid Rate.
Szczyty aktywności z modelu dwudipolowego (Rysunek 4) bardzo dobrze odpowiadały odpowiedzi ERP. Czas wystąpienia oraz morfologia szczytów przebiegów ERP, przedstawione na panelu (i), pokrywają się z czasem i morfologią przebiegów źródeł pokazanych na panelu (ii) (szczegóły znajdują się w oryginalnym artykule, 43). Przebiegi źródeł z tego eksperymentu wyjaśniły 97,9% wariancji aktywności nad elektrodami skalpowymi. Analiza statystyczna latencji szczytów źródeł wykazała, że aktywność prawej półkuli była szybsza niż lewej w obu warunkach, a odpowiedzi przy szybkim tempie były późniejsze w obu półkulach niż w warunku kontrolnym. Różnice półkulowe nie zostały zaobserwowane przy użyciu danych ERP, co sugeruje, że techniki lokalizacji źródeł umożliwiły uzyskanie dodatkowych informacji z odpowiedzi.
Oscylacje wywołane zdarzeniami u niemowląt
Ogólnie analizy czasowo-częstotliwościowe danych u dorosłych i zwierząt wykazują, że bodźce wywołują wzorzec synchronii neuronalnej typu 1/f (np. malejącą moc wraz ze wzrostem częstotliwości). W reprezentatywnych danych, wywołanych parami tonów słuchowych, pokazujemy, że niemowlęta również wykazują ten wzorzec (Rysunek 5). W tym przypadku początek bodźca wywołuje synchroniczne impulsy mocy w pasmach theta (5-6 Hz), beta (20-25 Hz) i gamma (35-45 Hz) w prawym i lewym obszarze słuchowym mózgu.
Modele zwierzęce oraz eksperymenty na osobnikach dorosłych sugerują, że synchronia oscylacyjna, a w szczególności oscylacje o niskiej i średniej częstotliwości (np. 1-8 Hz), stanowią główny wkład w potencjały wywołane 45. Analiza natychmiastowych przesunięć mocy (ewolucja widmowa w czasie, TSE) w oscylacjach u niemowląt z naszej poprzedniej publikacji 43 wykazała większą moc indukowaną dla tonu zmiennego w pasmie theta (6-8 Hz) w stosunku do tonu niezmiennego. Efekt ten zaobserwowano w obu warunkach częstotliwości podawania bodźców, szczególnie nad prawym obszarem słuchowym w warunku kontrolnym (Rysunek 6). Prezentacja w szybkim tempie spowodowała bardziej bilateralnie symetryczną aktywność, co sugeruje zwiększone zaangażowanie lewej kory podczas przetwarzania słuchowego szybko występujących bodźców, a w szczególności podczas przetwarzania zmian akustycznych.
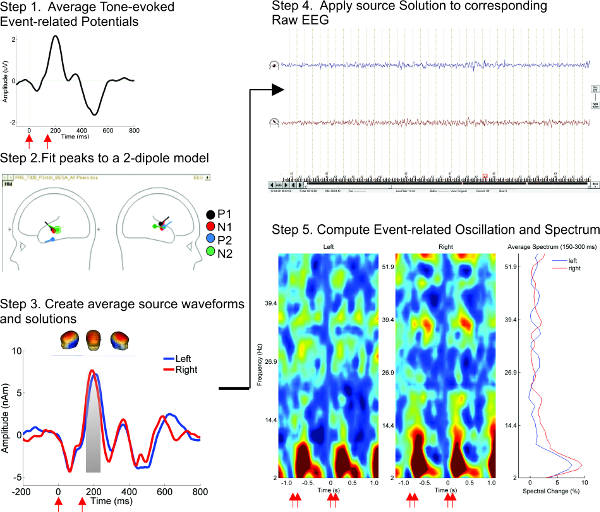
Rysunek 1. Etapy analizy czasowo-częstotliwościowej. Metoda analizy czasowo-częstotliwościowej została przedstawiona na przykładzie danych średnich dla całej grupy (n = 12) u 4-miesięcznych niemowląt podczas warunku bodźców dźwiękowych z ISI 70 msec. Początki bodźców są oznaczone czerwonymi strzałkami pod osią czasu. Etapy analizy: (1) Dla każdego kanału tworzone są uśrednione ERP (potencjały wywołane), przedstawione dla elektrody Cz. (2) Lokalizacja źródła generatorów ERP, pokazana na schemacie głowy, jest uzyskiwana przy użyciu modelu 2-dipolowego w danych zmapowanych na szablon MRI niemowlęcia. (3) Indywidualne i uśrednione przebiegi falowe źródeł są uzyskiwane z dopasowania dipoli lewego i prawego. Modele głowy niemowlęcia pokazują mapy napięć odpowiadające wybranemu pikiem (na szaro). (4) Montaż źródłowy jest stosowany do danych skalpowych z 128 kanałów, a amplitudy są obliczane i zapisywane dla dwóch kanałów źródłowych. (5) Oscylacje związane z zdarzeniem są obliczane z pojedynczych prób i uśredniane w okresie odpowiedzi. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
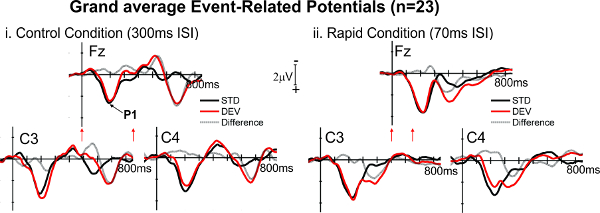
Rysunek 2. Morfologia potencjałów wywołanych. Przedstawiono średnie wielkie (n = 23) odpowiedzi w warunkach szybkich (70 msec ISI) i kontrolnych (300 msec ISI) na pary tonów standardowych (STD, linie czarne) i odchylonych (DEV, linie czerwone), zarejestrowane w elektrodach czołowych linii środkowej oraz centralnych lewej i prawej. Ujemność jest skierowana w górę. Momenty rozpoczęcia bodźców zaznaczono czerwonymi strzałkami pod osią czasu w Fz. P1 pokazano w panelu Fz za pomocą czarnej strzałki. Fala różnicowa (odpowiedź na DEV minus odpowiedź na STD) jest przedstawiona szarymi liniami (Adaptowano z 43). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
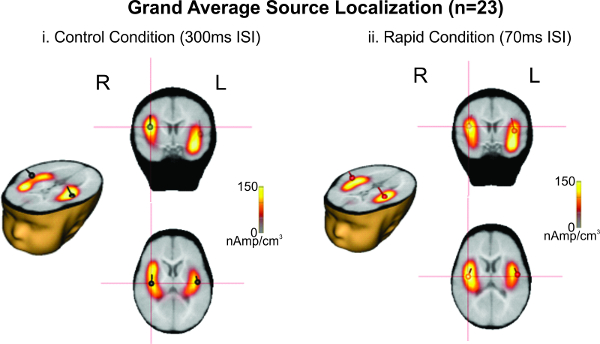
Rycina 3. Wyniki lokalizacji źródła. Dwu-dipolowy model źródła o „najlepszym dopasowaniu” został nałożony na rozproszoną aktywność z modelu źródła. Wyraźna aktywność lewa i prawa jest widoczna nad obszarami lewego i prawego płata skroniowego. (Zaadaptowano z 43). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
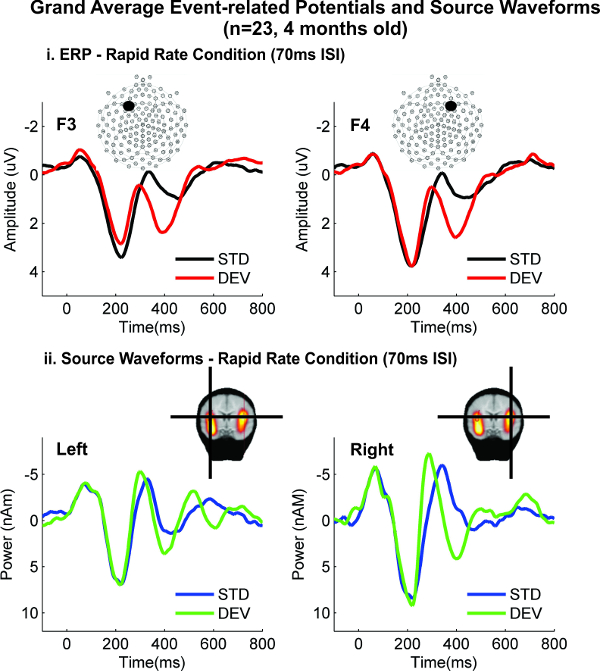
Rysunek 4. Porównanie potencjałów ERP i kształtów fal źródłowych. (i) Przykładowe ERP z czołowych elektrod lewej i prawej (F3 i F4) wykazują piki aktywacji w odpowiedzi na pary tonów o niezmiennym i zmiennym częstotliwości podstawowej (odpowiednio STD i DEV). Zmiana częstotliwości wywołuje większe piki około 400 msec (DEV, czerwona linia) w porównaniu do sytuacji, gdy częstotliwości pozostają niezmienione (STD, czarna linia). (ii) Latencja piki aktywacji jest podobna dla aktywności dipola zlokalizowanej źródłowo, co sugeruje dobrą zgodność między analizą ERP a analizą kształtu fal źródłowych. Duży pik przy 400 msec jest szczególnie zauważalny w prawej półkuli w danych z lokalizacją źródła. Dla uproszczenia przedstawiono jedynie odpowiedzi dla warunku szybkiego tempa (Rapid Rate), jednak podobna zgodność między ERP a kształtami fal źródłowych została zaobserwowana również dla odpowiedzi w warunku tempa kontrolnego (Control Rate). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
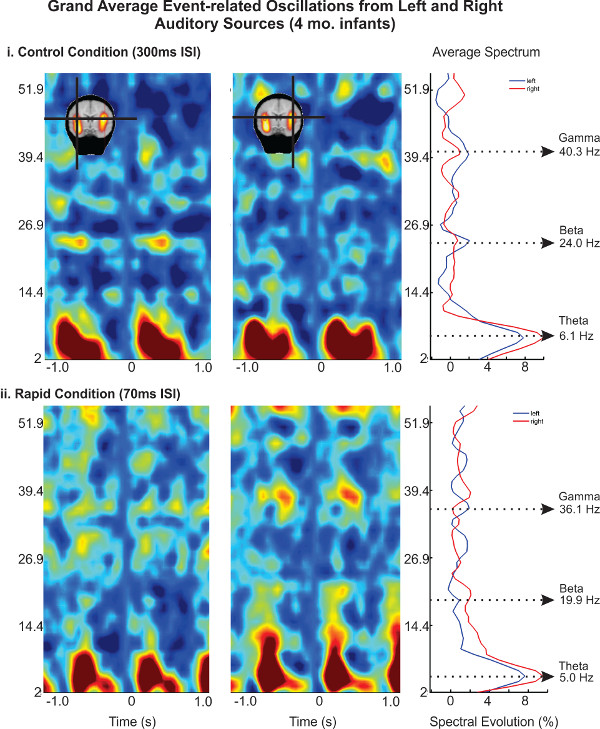
Rysunek 5. Połączone mapy TSE wyrażone jako procentowa zmiana widmowa w epoce czasowej od -1 do 1 s dla generatorów lewego i prawego. (i) Tony w warunku ISI 300 msec wywołują oscylacje powiązane z bodźcem w koherentnych pasmach częstotliwości wokół początku bodźca (np. -1,140 msec i 0 msec). Zastosowano długą epokę bodźca, aby zwizualizować więcej danych i zapewnić wystarczająco długą próbkę do dekompozycji częstotliwościowej. Panel prawy przedstawia średnie widmo w początkowym piku przetwarzania (150 - 300 msec). Średnie widmo wykazuje ogólny przebieg widmowy 1/f z dyskretnymi pikami synchronizacji w określonych pasmach częstotliwości. (ii) Podobny wzorzec obserwuje się dla warunku ISI 70 msec. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
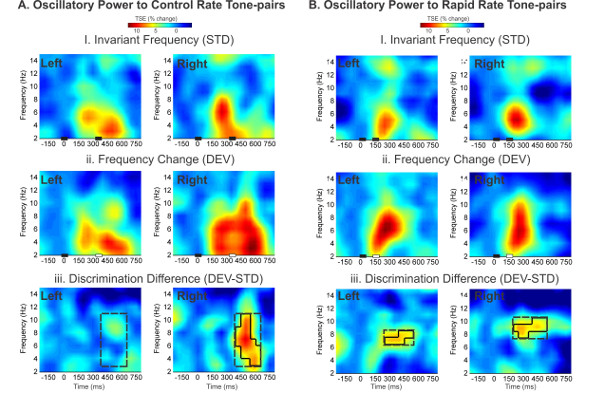
Rycina 6. Analiza czasowo-częstotliwościowa oscylacji związanych z zdarzeniem u 4-miesięcznych niemowląt.Zmiana mocy oscylacyjnej przedstawiona jest na wykresach średnich czasowo-widmowych (TSE) dla 4-miesięcznych niemowląt w warunkach kontrolnych (A) oraz w warunkach szybkiego tempa (B). Czarne paski na osi x obrazują początek i czas trwania tonów. Aktywność źródła lewego i prawego zaznaczono w lewym górnym rogu każdego wykresu. Pierwszy rząd: (i) Odpowiedzi na pary tonów o niezmiennej częstotliwości (STD) wykazują zmiany mocy w zakresie delta-theta. Środkowy rząd: (ii) Odpowiedzi na pary tonów ze zmianą częstotliwości w drugim tonie (DEV) wykazują zwiększoną moc w zakresie delta-theta przy drugim tonie w stosunku do odpowiedzi STD, szczególnie w prawym obszarze słuchowym w warunkach kontrolnych. Trzeci rząd: Wykresy różnic między odpowiedziami STD i DEV wykazują prawostronny wzrost mocy w tempie kontrolnym (A.iii) oraz obustronną różnicę mocy w tempie szybkim (B.iii). Istotne różnice między odpowiedziami STD i DEV w domenie czasowo-częstotliwościowej zaznaczono czarnym obrysem. (Adaptowano z 43). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Opisana tutaj metoda badawcza opisuje, w jaki sposób można ułatwić głębsze zrozumienie dynamiki spektrotemporalnej i anatomicznej lokalizacji odpowiedzi mózgu EEG i ERP o dużej gęstości wywołanych słuchowo u niemowląt. W tym protokole znajdują się cztery krytyczne kroki, które ułatwiają analizę. Po pierwsze, właściwa aplikacja i pozycjonowanie siatki przy minimalnym stresie opiekuna i niemowlęcia jest podstawą do rejestrowania czystego EEG w paradygmatach bez sedacji. Właściwy pomiar głowy i dobór rozmiaru siatki, a także korzystanie z asystenta sieciowego i konferansjera podczas procesu aplikacji jest kluczem do wykonania tego etapu. Po drugie, ważne jest, aby podczas sesji testowej stworzyć spokojną, cichą i zabawną atmosferę dla rodziny, co jest warunkiem ułatwionym przez głównego testera, asystenta sieciowego i animatora, który angażuje niemowlę w cichą zabawę. Po trzecie, do analizy danych bardzo ważne jest, aby do lokalizacji źródła używać odpowiednich do wieku modeli głowicy MRI. Rozmiar głowy, kości i skóry oraz przestrzeni mózgowo-rdzeniowej muszą być dokładne dla badanego wieku, aby uzyskać jak najdokładniejsze wyniki lokalizacji. Wreszcie, ogólnie rzecz biorąc, w przypadku reakcji korowych bardzo ważne jest również użycie sieci o dużej gęstości (np. co najmniej 64 kanały danych) w celu optymalizacji szans na uzyskanie nagrań o niskiej zawartości artefaktów.
Jednym z ograniczeń tej techniki jest to, że lokalizacja źródłowa danych EEG nie jest złotym standardem dla testów aktywności w miejscu pracy. Należy pamiętać, że przyszłościowy model lokalizacji, nawet z najlepszymi modelami głowy i pomiarami, nadal jest szacunkiem lokalizacji aktywności. W związku z tym konieczne jest zaprojektowanie eksperymentu w taki sposób, aby informacje dotyczące aktywności źródła mogły być porównywane w różnych warunkach lub grupach doświadczalnych. Ponadto badania niemowląt w ogóle, a w szczególności badania podłużne, mogą być obarczone niekompletnymi lub brakującymi zestawami danych. Rozwiązaniem tego problemu jest: a) utrzymywanie relacji z rodzinami uczestniczącymi w programie; b) zoptymalizować cichą, spokojną atmosferę nagrywania dla niemowlęcia i opiekuna; oraz c) przecenić pulę tematów. W naszych rękach, z doświadczonym zespołem pediatrycznym, osiągnęliśmy niski wskaźnik rezygnacji i minimalny wskaźnik utraty danych. W podłużnej próbie 211 sesji nagrywania niemowląt z 57 uczestnikami wykazaliśmy 98,6% retencji danych (np. 208 sesji, które zaowocowały użytecznymi danymi) i 10% wskaźnik rezygnacji (np. 6 uczestników nie było w stanie kontynuować po rozpoczęciu eksperymentu). Przewagą EEG nad innymi technikami, takimi jak MEG i NIRS, jest to, że aktywność odchylona podkorowo jest dostępna przy użyciu różnych pasm filtrów. Ponadto łatwiej jest kontrolować ruch, ponieważ elektrody poruszają się wraz z głowicą.
Po opanowaniu tego protokołu istnieje wiele eksperymentalnych zastosowań EEG u niemowląt i dynamiki oscylacyjnej. Oczywiste jest, że musimy najpierw zrozumieć typowo rozwijające się sieci korowe, aby zidentyfikować te, które są nietypowo zorganizowane. Sugeruje to potrzebę stworzenia modelu, w którym integralność wczesnych mechanizmów przetwarzania słuchowego (w tym oscylacji) odgrywa rolę w generowaniu i plastyczności reprezentacji dźwiękowej w miarę włączania doświadczeń słuchowych i, w idealnej sytuacji, uczenia się. Zgodnie z tym modelem, deficyty przetwarzania niejęzykowego mogą być związane z objawami na lata, a w niektórych przypadkach dziesiątki lat przed postawieniem formalnej diagnozy.
Potrzebne są dalsze badania, aby zrozumieć dalsze szczegóły, w tym funkcję dynamiki oscylacyjnej specyficznej dla pasma częstotliwości, sprzężenie fazowe między częstotliwościami oraz regionalne wzorce hamowania/pobudzania we wczesnym okresie rozwoju. Ponadto aktywność podkorowa i testowanie w różnych stanach, takich jak sen, są potrzebne, aby dać pełniejszy obraz typowego rozwoju. Wierzymy, że badania z wykorzystaniem tej techniki dostarczą ważnych informacji na temat procesu, w którym "neurotypowa" i nietypowa dynamika oscylacyjna organizuje się i współdziała z pojawiającymi się zdolnościami poznawczymi i językowymi.
Oświadczenia
Autorzy nie mają żadnych ujawnień, do których mogliby się przyznać.
Podziękowania
Autorzy dziękują za wsparcie dla tych badań przez Centrum Badań Neurorozwojowych Elizabeth H. Solomon oraz grant NSF #SMA-1041755 dla Centrum Temporalnej Dynamiki Uczenia się, Centrum Nauki o Uczeniu się NSF. Szczególne podziękowania należą się również rodzinom, które wzięły udział w projekcie, a także członkom Pracowni Badań nad Niemowlęctwem za ich praktyczny i intelektualny wkład. Specjalne podziękowania dla Jarmo Hämäläinena za opracowanie źródłowego protokołu lokalizacji oraz dla Naseem Choudhury za jej wkład intelektualny.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Wzmacniacze EEG | EGI | 1301281 | |
| Sieci czujników | EGI | C-GSN-128-1011-110 | Rozmiary siatek różnią się w zależności od wieku, miesiąca |
| Oprogramowanie do zapisu EEG | Net Station | 4604200 | |
| Komputer prezentacyjny | Dell | 4608161 | |
| Oprogramowanie do prezentacji | Eprime | 13102456-50 | |
| Podgrzewacz do butelek dla niemowląt | Avent | Target lub dowolny sklep dla niemowląt | |
| Rozpuszczalność elektrolitu (potas Chlorek suchy) | EGI | A-A-CC-KLL-1000-000 | |
| Samoprzylepna taśma owijająca | Coban | 595573 | |
| Taśma | Target lub dowolny sklep dla dzieci | ||
| Zmywalne markery | Target lub dowolny sklep dziecięcy Pipety | ||
| W zestawie konfiguracja wzmacniacza EGI | |||
| Komputer analityczny | Oprogramowanie analityczne Dell | ||
| BESA | 3955054 | v5.3 | |
| Oprogramowanie analityczne II | Brain Voyager | 3955054 | |
| Oprogramowanie do analizy III | EEGLAB/ERPLAB/ MassUnivariate Toolbox | Freeware Oprogramowanie analityczne MatLAB v2007b | |
| IV | Statystyki BESA |
Bibliografia
- Gou, Z., Choudhury, N., Benasich, A. A. Resting frontal gamma power at 16, 24 and 36 months predicts individual differences in language and cognition at 4 and 5 years. Behavioural brain research. 220, 263-270 (2011).
- Uhlhaas, P. J., Roux, F., Rodriguez, E., Rotarska-Jagiela, A., Singer, W. Neural synchrony and the development of cortical networks. Trends in cognitive sciences. 14, 72-80 (2010).
- Singer, W. Development and plasticity of cortical processing architectures. Science. 270, 758-764 (1995).
- Singer, W. Mechanisms of experience dependent self-organization of neuronal assemblies in the mammalian visual system. Archivos de biologia y medicina experimentales. 16, 317-327 (1983).
- Lakatos, P., et al. An oscillatory hierarchy controlling neuronal excitability and stimulus processing in the auditory cortex. Journal of neurophysiology. 94, 1904-1911 (2005).
- Jacobs, J., Kahana, M. J., Ekstrom, A. D., Fried, I. Brain oscillations control timing of single-neuron activity in humans. The Journal of neuroscience. 27, 3839-3844 (2007).
- Schroeder, C. E., Lakatos, P. Low-frequency neuronal oscillations as instruments of sensory selection. Trends Neurosci. 32, 9-18 (2009).
- Schroeder, C. E., Lakatos, P., Kajikawa, Y., Partan, S., Puce, A. Neuronal oscillations and visual amplification of speech. Trends in cognitive sciences. 12, 106-113 (2008).
- Basar, E. Oscillations in 'brain-body-mind'-A holistic view including the autonomous system. Brain Res. 1235, 2-11 (2008).
- Buzsaki, G. Large-scale recording of neuronal ensembles. Nature. 7, 446-451 (2004).
- Aslin, R. N. Discrimination of frequency transitions by human infants. The Journal of the Acoustical Society of America. 86, 582-590 (1989).
- Eilers, R. E., Morse, P. A., Gavin, W. J., Oller, D. K. Discrimination of voice onset time in infancy. The Journal of the Acoustical Society of America. 70, 955-965 (1981).
- Irwin, R. J., Ball, A. K., Kay, N., Stillman, J. A., Rosser, J. The development of auditory temporal acuity in children. Child development. 56, 614-620 (1985).
- Jusczyk, P. W., Pisoni, D. B., Walley, A., Murray, J. Discimination of relative onset time of two-component tones by infants. The Journal of the Acoustical Society of America. 67, 262-270 (1980).
- Bishop, D. V. M., Hardiman, M. J., Barry, J. G. Auditory Deficit as a Consequence Rather than Endophenotype of Specific Language Impairment Electrophysiological Evidence. Plos One. 7, e35851(2012).
- Benasich, A. A., et al. The infant as a prelinguistic model for language learning impairments: Predicting from event-related potentials to behavior. Neuropsychologia. 44, 396-411 (2006).
- Choudhury, N., Benasich, A. A. Maturation of auditory evoked potentials from 6 to 48 months: prediction to 3 and 4 year language and cognitive abilities. Clinical neurophysiology : official journal of the International Federation of Clinical Neurophysiology. 122, 320-338 (2011).
- Lakatos, P., et al. Timing of pure tone and noise-evoked responses in macaque auditory cortex. Neuroreport. 16, 933-937 (2005).
- Shah, A. S., et al. Neural dynamics and the fundamental mechanisms of event-related brain potentials. Cerebral cortex. 14, 476-483 (2004).
- Fries, P. A mechanism for cognitive dynamics: neuronal communication through neuronal coherence. Trends Cogn Sci. 9, 474-480 (2005).
- Buzsaki, G. Rhythms of the Brain. , Oxford University Press. New York. (2006).
- Buzsaki, G., Draguhn, A. Neuronal oscillations in cortical networks. Science. 304, 1926-1929 (2004).
- Whittingstall, K., Logothetis, N. K. Frequency-band coupling in surface EEG reflects spiking activity in monkey visual cortex. Neuron. 64, 281-289 (2009).
- Ortiz-Mantilla, S., Hämäläinen, J. A., Musacchia, G., Benasich, A. A. Enhancement of gamma oscillations indicates preferential processing of native over foreign phonemic contrasts in infants. The Journal of neuroscience : the official journal of the Society for Neuroscience. 33, 18746-18754 (2013).
- Palmer, S. B., Fais, L., Golinkoff, R. M., Werker, J. F. Perceptual narrowing of linguistic sign occurs in the 1st year of life. Child. 83, 543-553 (2012).
- Werker, J. F., Tees, R. C. Speech perception as a window for understanding plasticity and commitment in language systems of the brain. Dev Psychobiol. 46, 233-251 (2005).
- Benasich, A. A. Impaired processing of brief, rapidly presented auditory cues in infants with a family history of autoimmune disorder. Developmental neuropsychology. 22, 351-372 (2002).
- Benasich, A. A., Tallal, P. Infant discrimination of rapid auditory cues predicts later language impairment. Behavioural brain research. 136, 31-49 (2002).
- Lopez-Calderon, J., Luck, S. J. ERPLAB: an open-source toolbox for the analysis of event-related potentials. Front Hum. Neurosci. 8, 213(2014).
- Delorme, A., Sejnowski, T., Makeig, S. Enhanced detection of artifacts in EEG data using higher-order statistics and independent component analysis. NeuroImage. 34 (4), 1443-1449 (2007).
- Hämäläinen, J. A., Ortiz-Mantilla, S., Benasich, A. A. Source localization of event-related potentials to pitch change mapped onto age-appropriate MRIs at 6 months of age. NeuroImage. 54, 1910-1918 (2011).
- Ortiz-Mantilla, S., Hämäläinen, J. A., Benasich, A. A. Time course of ERP generators to syllables in infants: A source localization study using age-appropriate brain templates. NeuroImage. 59, 3275-3287 (2012).
- Canolty, R. T., et al. High gamma power is phase-locked to theta oscillations in human neocortex. Science. 313, 1626-1628 (2006).
- Delorme, A., Makeig, S. EEGLAB: an open source toolbox for analysis of single-trial EEG dynamics including independent component analysis. Journal of neuroscience. 134, 9-21 (2004).
- Delorme, A., et al. ERICA: new tools for advanced EEG processing. Computational intelligence and neuroscience. 2011, 130714(2011).
- Makeig, S. Auditory event-related dynamics of the EEG spectrum and effects of exposure to tones. Electroencephalography and clinical neurophysiology. 86, 283-293 (1993).
- Hoechstetter, K., et al. BESA source coherence: a new method to study cortical oscillatory coupling. Brain topography. 16, 233-238 (2004).
- Papp, N., Ktonas, P. Critical evaluation of complex demodulation techniques for the quantification of bioelectrical activity. Biomedical sciences instrumentation. 13, 135-145 (1977).
- Yoon, H., Yeom, W., Kang, S., Hong, J., Park, K. A multiple phase demodulation method for high resolution of the laser scanner. The Review of scientific instruments. 80, 056106(2009).
- Wang, Z., Maier, A., Leopold, D. A., Logothetis, N. K., Liang, H. Single-trial evoked potential estimation using wavelets. Comput Biol Med. 37 (4), 463-473 (2007).
- Kramer, M. A., Tort, A. B., Kopell, N. J. Sharp edge artifacts and spurious coupling in EEG frequency comodulation measures. J Neurosci Methods. 170 (2), 352-357 (2008).
- Kriegeskorte, N., Simmons, W. K., Bellgowan, P. S., Baker, C. I. Circular analysis in systems neuroscience: the dangers of double dipping. Nat Neurosci. 12 (5), 535-540 (2009).
- Musacchia, G., et al. Oscillatory support for rapid frequency change processing in infants. Neuropsychologia. 51, 2812-2824 (2013).
- Boer, T., Scott, L. S., Nelson, C. A. Infant EEG and Event-Related Potentials.Studies in Developmental Psychology. Hann, M. , Psychology Press. Washington D.C. 5-39 (2007).
- Basar, E., Schurmann, M., Demiralp, T., Basar-Eroglu, C., Ademoglu, A. Event-related oscillations are 'real brain responses' - wavelet analysis and new strategies. Int J Psychophysiol. 39, 91-127 (2001).
Przedruki i uprawnienia
