Ten manuskrypt opisuje protokół śledzenia redystrybucji rozgałęzionych jonacytów i ich unerwienia za pomocą techniki barwienia różnicowego w czasie połączonej z pełnym obustronnym odnerwieniem skrzeli.
Artykuł metodologiczny
Technika barwienia różnicowego w czasie w połączeniu z pełnym obustronnym denerwacją skrzelową w celu badania jonocytów u ryb
W tym artykule
Podsumowanie
Streszczenie
Jonocyty rozgałęzione (IC) są jednostkami funkcjonalnymi do regulacji jonów u ryb. U dorosłych znajdują się na nitkowatym i blaszkowatym nabłonku skrzeli, gdzie transportują jony, takie jak Na+, Cl- iCa2+, za pośrednictwem różnych kanałów jonowych, pomp i wymienników. Skrzela teleostu są unerwione zewnętrznie przez nerwy twarzowe (VI), językowo-gardłowe (IX) i błędne (X). Nerwy IX i X są również zewnętrznym źródłem unerwienia rozgałęzionego IC. W tym miejscu opisano dwie techniki stosowane do badania unerwienia, proliferacji i dystrybucji układów scalonych: technikę barwienia różnicowego w czasie i technikę pełnego obustronnego odnerwienia skrzeli. Krótko mówiąc, złote rybki są wystawione na działanie ważnego barwnika specyficznego dla mitochondrium (np. MitoTracker Red), który znakuje (czerwona fluorescencja) istniejące wcześniej układy scalone. Rybom pozwalano na regenerację przez 3 - 5 dni lub natychmiast przechodziło pełne obustronne odnerwienie skrzeli. Po 3 - 5 dniach rekonwalescencji skrzela są zbierane i utrwalane do immunohistochemii. Tkanka jest następnie barwiona pierwotnym przeciwciałem α-5 (celuje w komórki zawierające ATPazę Na+/K+) w połączeniu z przeciwciałem drugorzędowym, które oznacza wszystkie (zarówno nowe, jak i istniejące) IC na zielono. Korzystając z obrazowania konfokalnego, wykazano, że istniejące wcześniej układy scalone wydają się żółte (oznaczone zarówno żywym barwnikiem specyficznym dla mitochondrium, jak i α-5), a nowe układy scalone wydają się zielone (oznaczone tylko α-5). Obie techniki stosowane w tandemie mogą być stosowane do badania unerwienia, proliferacji i rozmieszczenia układów scalonych na włóknach skrzelowych, gdy ryby są narażone na wyzwania środowiskowe.
Wprowadzenie
ICs są jednostką funkcjonalną do regulacji jonów u ryb i znajdują się na powierzchniach nabłonka włókien skrzelowych i blaszek4,6-8,10. Chociaż opisano różne podtypy, które posiadają unikalne cechy, wiele układów scalonych charakteryzuje się dużą gęstością mitochondriów (dlatego są one również znane jako komórki bogate w mitochondria) i/lub obfitością enzymu ATPazy Na+/K+ (NKA). Zazwyczaj te układy scalone zawierają wiele innych pomp, kanałów jonowych i wymienników zaangażowanych w regulację jonów (np. Wymiennik Na+/H+, kotransporter Na+/Cl-, pompa H+)2,10,11. Redystrybucja i proliferacja układów scalonych jako mechanizm kompensacyjny ma kluczowe znaczenie dla utrzymania homeostazy jonów, szczególnie podczas stresu jonowego (np. narażenia na wodę ubogą w jony)4,8,9.
To badanie opisuje technikę barwienia różnicowegow czasie 1 w celu identyfikacji nowo rozmnożonych jonocytów (IC) w skrzelach ryb. Technika ta jest połączona z całkowitym obustronnym odnerwieniem łuków skrzelowych. Złota rybka (Carassius auratus), gatunek wykorzystany w tych badaniach, dobrze nadaje się do badania proliferacji komórek nabłonka skrzelowego, ponieważ ma niezwykłą zdolność do strukturalnej przebudowy skrzeli2. Przebudowa skrzelowa odnosi się do wzrostu lub retrakcji masy komórek międzypłytkowych (ILCM), gdy ryby (normalnie utrzymywane w temperaturze 15 - 30 °C) są zaaklimatyzowane odpowiednio do zimnej wody (<15 °C) lubniedotlenienia 3. Wcześniejsze badania wykorzystujące technikę barwienia różnicowego w czasie na złotych rybkach koncentrowały się na redystrybucji, unerwieniu i proliferacji IC na skrzelach w kontekście przebudowy skrzeli4,5. Katoh i Kaneko1 opracowali tę nowatorską technikę do badania transformacji i zastępowania rozgałęzionych IC u karpiowatych (Fundulus heteroclitus) przenoszonych z wody morskiej (SW) do wody słodkiej (FW). W tym badaniu skupiono się na proliferacji i unerwieniu IC u złotych rybek zaaklimatyzowanych do 25 °C.
Korzystając z techniki barwienia różnicowego w czasie, pokazano, że w kontekście przebudowy skrzeli, złote rybki utrzymują stałą liczbę IC podczas ekspozycji na niedotlenienie i późniejszej regeneracji normoksycznej, jednak procent unerwionych komórek zmniejszył się przez cały okres regeneracji normoksycznej5. Ponad 70 lat temu zaproponowano, że mechanizmy wychwytu jonów u ryb są pod kontrolą neuronalną12. Skrzela teleostu są unerwione przez nerwy twarzowe (VII), językowo-gardłowe (IX) i błędne (X), zwane również "nerwami skrzelowymi"13,14. Badania Jonza i Nurse'a (2003) nad unerwieniem skrzeli danio pręgowanego (Danio rerio) wykazały, że pochodzenie unerwienia jest zewnętrzne (ciało komórkowe włókna nerwowego jest zewnętrzne w stosunku do skrzela), a także wewnętrzne (ciało komórkowe włókna nerwowego jest wewnętrznie związane ze skrzelami). Ci sami autorzy wykazali również, że rozgałęzione IC są unerwione zewnętrznie7.
W tym badaniu, technika barwienia różnicowego w czasie w połączeniu z pełnym obustronnym odnerwieniem skrzeli została wykorzystana do zbadania proliferacji IC pozbawionych zewnętrznego unerwienia u złotych rybek. Pełne obustronne odnerwienie skrzeli odnosi się do przecięcia nerwów czaszkowych IX i X. Te dwa podejścia są wykonalne w przypadku złotych rybek, ponieważ ich stosunkowo duży rozmiar (od 30 do 200 g) upraszcza delikatne zabiegi chirurgiczne, a jonocyty można łatwo zidentyfikować przy użyciu standardowych technik immunohistochemicznych. W niniejszym badaniu IC wizualizowano przy użyciu ważnego barwnika specyficznego dla mitochondriów (np. MitoTracker Red) lub pierwszorzędowego przeciwciała przeciwko α-podjednostce ATPazy Na+/K+ (α-5; Developmental Studies Hybridoma Bank, University of Iowa, Iowa City IA). Protokół ten zapewnia prostą metodę wizualizacji i analizy redystrybucji i proliferacji IC na skrzelach ryb.
Protokół
Oba protokoły były zgodne z wytycznymi Kanadyjskiej Rady Opieki nad Zwierzętami (CCAC) i zostały przeprowadzone za zgodą Komitetu Opieki nad Zwierzętami Uniwersytetu w Ottawie (Protokół BL-226).
1. Technika barwienia różnicowego w czasie: Kąpiel barwiąca bogata w mitochondriony
- Przygotować 1 mM roztwór podstawowy MitoTracker Red rozpuszczając 50 μg w 94,0 μl dimetylosulfotlenku (100% DMSO). Roztwór podstawowy należy przechowywać w ciemności w temperaturze -20 °C, gdy nie jest używany. Unikaj cykli zamrażania/rozmrażania.
- Przygotuj ciemne pudełka (3 - 6 pudełek) o maksymalnej objętości 600 ml. Napełnij pudełka 400 ml wody systemowej (woda, w której zwykle trzymane są ryby) i umieść kamień napowietrzający w każdym pudełku, aby zapewnić źródłoO2. Zdobądź złote rybki (30 - 40 g) i umieść je w pudełkach z 400 ml wody i kamieniem napowietrzającym. Po 30 minutach dodaj żywy barwnik bogaty w mitochondrium, aby uzyskać końcowe stężenia 0,1 μM i 0,01% DMSO. Kąpać rybę przez 4 godziny.
- Jeśli są to ryby kontrolne (tj. bez odnerwienia), włącz dopływ wody do skrzynek, pozwól barwnikowi wypłukać się i odzyskaj ryby na czas wyznaczony w protokole. Ryby są zwykle odzyskiwane przez 3 - 5 dni.
- Po okresie rekonwalescencji przejdź do Sekcji 3: Technika barwienia różnicowego w czasie: Immunohistochemia. Jeśli ryby te mają zostać poddane denerwacji, należy przejść do sekcji 2: Pełna procedura dwustronnego odnerwiania.
2. Pełna procedura obustronnego denerwacji
- Zdobądź 1 parę studenckich nożyczek sprężynowych Vannas (zakrzywionych), 1 parę standardowych kleszczyków - prostych, 1 parę standardowych kleszczy - zakrzywionych, 2 pary kleszczy nr 5, 1 parę zwijaczy tkanek, małe waciki (o średnicy 1 - 2 mm) i waciki (końcówki Q lub odpowiednik).
- Przygotuj znieczulającą kąpiel wodną. Najpierw rozpuść 10 g benzokainy do końcowej objętości 100 ml 99% etanolu, aby przygotować roztwór podstawowy. Aby przygotować znieczulającą kąpiel wodną, rozpuścić 15 ml podstawowego roztworu benzokainy w 30 l napowietrzonej wody systemowej o wymaganej temperaturze. Napowietrzaj wodę, umieszczając w zbiorniku na wodę kamień napowietrzający podłączony do pompy powietrza lub centralnego przewodu powietrznego.
- Umieść ryby w znieczulającej łaźni wodnej (ryc. 1A).
- Po ustaniu oddychania umieść rybę na stole operacyjnym i zaintubuj ją, jak pokazano na rysunku 1B. W tym celu należy umieścić rurkę w jamie policzkowej, aby przepłukać skrzela napowietrzonym roztworem znieczulającym. Irygacja skrzeli zapewnia, że ryby są zaopatrywane w wystarczającą ilośćO2 i środka znieczulającego podczas procedury odnerwienia. Ustaw rybę tak, aby głowa była lekko pochylona w dół. Pozwala to na lepszy dostęp do obszaru za czwartym łukiem skrzelowym.
- Delikatnie podnieś wieczko za pomocą prostych kleszczy o standardowym wzorze i umieść zwijacze tkanek między wieczkiem a wnętrzem głowy. Ostrożnie otwórz retraktory tkanek, aby utrzymać wieczko z dala od głowy i utrzymać skrzela odsłonięte.
- Upewnij się, że roztwór znieczulający przepłukuje skrzela podczas tej procedury. Oprzyj uchwyty zwijacza obok głowy, co zapewnia dostęp do wszystkich czterech łuków skrzelowych.
- Umieść zakrzywione kleszcze o standardowym wzorze między czwartym łukiem skrzelowym a tyłem głowy i delikatnie je otwórz, aby wytworzyć napięcie w więzadle mocującym czwarty łuk skrzelowy do głowy. Za pomocą pary kleszczyków nr 5 utwórz mały otwór (2 - 3 mm), przekłuwając nabłonek łączący grzbietowy koniec łuków skrzelowych z jamą wieczkową. Uważaj, aby nie wchodzić zbyt głęboko, ponieważ istnieje ryzyko uszkodzenia głównego naczynia krwionośnego.
- Za pomocą małego wacika trzymanego kleszczami nr 5 powoli i ostrożnie rozszerzaj nacięcie, aby odsłonić nerw IX (językowo-gardłowy) i X (błędny). Uwolnij nerwy z tkanki łącznej za pomocą kleszczy nr 5, ponownie uważając, aby nie uszkodzić naczyń krwionośnych.
UWAGA: Nerwy rozgałęzione IX i X złotej rybki spoczywają głęboko za czwartym łukiem skrzelowym i znajdują się w pobliżu głównych naczyń krwionośnych zasilających łuki skrzelowe. - Po zidentyfikowaniu nerwów użyj zakrzywionych nożyczek sprężynowych, aby ostrożnie przeciąć nerwy, jednocześnie przytrzymując nacięcie za pomocą zakrzywionych kleszczy o standardowym kształcie. Po przecięciu nerwów delikatnie schować zakrzywione kleszcze. Nie ma potrzeby zamykania nacięcia szwami, ponieważ nabłonek jest bardzo cienki i nacięcie zwykle zamyka się samoistnie w ciągu 24 - 48 godzin. Usuń retraktor tkankowy.
- Powtórz tę samą procedurę po drugiej stronie głowy.
- Przełącz irygację skrzeli ze znieczulenia na świeżą, napowietrzoną wodę, aby odzyskać rybę ze znieczulenia. Po wznowieniu ruchów operkulacyjnych należy przenieść ryby do zbiorników doświadczalnych w celu regeneracji przez co najmniej 24 godziny.
- Wykonaj procedurę "pozorowaną" na oddzielnym zestawie ryb. Zabieg "pozorowany" polega na przekłuciu nabłonka za czwartym łukiem skrzelowym bez przecinania nerwów.
3. Technika barwienia różnicowego w czasie: Immunohistochemia
- Najpierw przygotuj 4% paraformaldehydu (PFA) w 1x soli fizjologicznej buforowanej fosforanem (PBS; 4 g PFA w 96 ml PBS). PFA nie rozpuszcza się łatwo w PBS w temperaturze pokojowej. Podgrzej roztwór w łaźni wodnej, aby rozpuścić PFA. Zrób to w dygestorium. Gdy PFA znajdzie się w roztworze, ostudź przed użyciem. Przechowywać w temperaturze 4 °C do 2 tygodni.
- Przed eutanazją ryby i ekstrakcją tkanki skrzelowej należy umieścić 3 - 4 ml 4% PFA w fiolce scyntylacyjnej, co daje w sumie 8 fiolek scyntylacyjnych (1 fiolka na łuk skrzelowy). Ponadto weź małą łódkę do ważenia i napełnij ją 1x PBS. Zostanie to wykorzystane do umycia tkanki po jej wycięciu. Trzymaj wszystkie roztwory na lodzie.
- Po zakończeniu eksperymentu z ekspozycją na barwnik bogaty w mitochondrium, poddaj złotą rybkę eutanazji, umieszczając ją w łaźni wodnej z przedawkowaniem benzokainy.
- Użyj kleszczy, aby podnieść wieczko po jednej stronie głowy i zakrzywionych nożyczek, aby odciąć każdy koniec skrzelowego kosza skrzelowego. Ostrożnie podnieś skrzela za pomocą kleszczy i wyjmij je z jamy wieczka. Natychmiast umyj skrzela w lodowatym chłodzie 1x PBS, aby usunąć nadmiar benzokainy i krwi.
- Umieścić wycięte skrzela w oddzielnych fiolkach (po jednej na każdy łuk skrzelowy) wypełnionych 4% PFA i utrwalić O/N w temperaturze 4 °C.
- Po utrwaleniu przemyj nadmiar PFA w 1X PBS i umieść tkankę w probówce o pojemności 2 ml wypełnionej 1,5 ml 1% Triton-X na wytrząsarce przez 6 godzin w temperaturze pokojowej lub O/N w temperaturze 4 °C. Ten krok przenika tkankę. Jeśli cała skrzela jest zbyt duża, aby umieścić ją w probówce o pojemności 2 ml, pokrój tkankę na odcinki wystarczająco małe, aby zmieściły się w probówce, uważając, aby nie uszkodzić włókien.
- Przygotować rozcieńczenia przeciwciał pierwszorzędowych, mieszając 4 μl roztworu podstawowego każdego przeciwciała pierwszorzędowego (łącznie 8 μl) z 992 μl 1x PBS. Upewnij się, że pierwszorzędowe przeciwciała NKA (znakują komórki bogate w NKA) i zn-12 (oznaczają neurony) zostały wyhodowane w tym samym gospodarzu. Jest to ważne, jeśli naukowcy zdecydują się zidentyfikować określone podtypy IC w tym samym czasie, dla których będą musieli użyć przeciwciał pierwszorzędowych i drugorzędowych wyhodowanych u różnych gatunków gospodarzy.
- Usunąć roztwór Triton-X i bez mycia tkanki dodać rozcieńczenie 1:250 (rozcieńczone w 1x PBS) przeciwciała monoklonalnego NKA (α-5) w celu wykrycia komórek bogatych w NKA i specyficznego dla danio pręgowanego przeciwciała neuronalnego (zn-12) w celu wykrycia włókien nerwowych (przeciwciała pierwszorzędowe) i inkubować na wytrząsarce przez 6 godzin w temperaturze pokojowej lub O/N w temperaturze 4 °C.
- Przemyj przeciwciało pierwszorzędowe 3 razy przez 3 minuty za pomocą 1x PBS. W tym celu należy usunąć roztwór przeciwciała pierwotnego z probówki, odsysając go za pomocą pipety.
- Przygotować przeciwciało drugorzędowe w rozcieńczeniu 1:200, mieszając 5 μl podstawowego przeciwciała drugorzędowego z 995 μl 1x PBS. Zastosować przeciwciało drugorzędowe (Alexa Fluor 488) i inkubować przez 6 godzin w temperaturze pokojowej lub O/N w temperaturze 4 °C na wytrząsarce.
UWAGA: MitoTracker Red jest wzbudzany na długości fali ~594 nm i fluoryzuje na czerwono. Przeciwciało drugorzędowe, które jest wzbudzane na długości fali ~ 488 nm i fluoryzuje na zielono, musi być użyte do znakowania przeciwciał pierwszorzędowych NKA i zn-12. - Usunąć nadmiar przeciwciał drugorzędowych, myjąc tkankę 3 razy przez 5 minut każdy (zgodnie z opisem w kroku 3.7).
4. Obrazowanie
- Po umyciu zamontuj tkankę na wklęsłym szkiełku w celu całościowego obrazowania konfokalnego komórek i włókien nerwowych. Aby zamocować tkankę, najpierw umieść ją w kropli (200 μl) 1x PBS na płaskim szkiełku mikroskopowym. Dzięki temu tkanka nie wysycha.
- Oddziel półgałęzie skrzelowe zakrzywionymi mikronożyczkami. Umieść kroplę 1x PBS i kroplę nośnika montażowego we wklęsłym szkiełku.
- Umieść oddzielone półgałęzie we wklęsłym szkiełku z przednią krawędzią filamentu skierowaną do góry i przykryj szkiełkiem nakrywkowym. Przetrzyj krawędzie szkiełka nakrywkowego lakierem do paznokci, aby zapobiec przesuwaniu się szkiełka nakrywkowego i przemieszczaniu się tkanki. Pozwól tkance osiąść na dnie wklęsłego szkiełka przez 10 - 15 minut przed obrazowaniem.
- Dla każdego łuku skrzelowego wybierz losowo sześć włókien skrzelowych do obrazowania, tworząc sześć obrazów na łuk skrzelowy. Użyj konwencjonalnej mikroskopii konfokalnej, aby zobrazować tkankę, pobierając plastry optyczne 1 - 3 μm.
UWAGA: Wszystkie istniejące wcześniej komórki zostaną oznaczone MitoTracker na czerwono, a dodatnie dla NKA pojawią się tylko na żółto. Komórki, które wydają się tylko czerwone, to istniejące wcześniej układy scalone, które nie zawierają NKA. Każda nowo rozmłożona komórka będzie dodatnia tylko dla NKA i będzie wyglądać tylko na zielono. Włókna nerwowe również będą wyglądały na zielone.
5. Analiza obrazu do oznaczania ilościowego jonocytów
- Dla każdego włókna skrzelowego, które zostało zobrazowane, określ ilościowo IC i związane z nimi unerwienie, przewijając sekcje stosu Z i licząc liczbę obecnych blaszkowych i nitkowych IC oraz to, czy są one nowo zróżnicowane, wcześniej istniejące i/lub unerwione.
- Określ ilościowo składniki scalone na włókno lub na powierzchnię (mm2) włókna. Należy to zrobić za pomocą narzędzi do rysowania powiązanych z oprogramowaniem używanym do pozyskiwania obrazów w celu obrysowania blaszek żarnika obejmujących obszar żarnika, w którym określono ilościowo układy scalone. Większość programów do obrazowania konfokalnego ma opcję obliczania obszaru zarysowanego obszaru na obrazie. Użyj opcji w oprogramowaniu do obrazowania, która pozwala to zrobić, aby uzyskać obszar.
- Podziel zliczone układy scalone przez powierzchnię obliczoną przez oprogramowanie, aby uzyskać miarę układów scalonych na jednostkę powierzchni (np. na mm2).
Wyniki
Rycina 1 przedstawia konfigurację stołu operacyjnego (Rycina 1A), ułożenie ryby podczas operacji (Rycina 1B) oraz trzy najważniejsze etapy techniki barwienia różnicowego w czasie (Rycina 1C). W kroku 1 ryba jest utrzymywana przez 30 min w dobrze napowietrzonej kąpieli wodnej w temperaturze 25 °C w ciemności. W ciągu tych 30 min badacz może przygotować porcję barwnika specyficznego dla mitochondriów w DMSO, który zostaje dodany do wody w kroku 2 (Rycina 1C). Okres inkubacji w kroku 2 umożliwia pobieranie barwnika specyficznego dla mitochondriów z wody do komórek bogatych w mitochondria (tj. komórek IC). Następnie ryba może zostać poddana pełnej procedurze obustronnej denerwacji lub procedurze pozorowanej (sham), w której ryba zostaje znieczulona, a opercula poddane manipulacjom, lecz nerwy pozostają nienaruszone. Konfiguracja w kroku 3 przedstawia komorę rekonwalescencyjną z przepływem wody dla ryby, która przeszła pełną obustronną denerwację lub procedurę „pozorowaną”.
Po okresie rekonwalescencji rybę uśmiercono, a skrzela wycięto i utrwalono do badań immunohistochemicznych. Ogólny rozkład i unerwienie komórek IC na włóknie skrzelowym ryby, której poddano procedurze „pozornej” (sham), przedstawiono na Rysunku 2. Komórki IC występują w nabłonku włókien, jak i u podstawy regionów międzyblaszkowych. Rysunek 2A przedstawia istniejące wcześniej komórki IC znakowane barwnikiem wybiórczo wiążącym się z mitochondriami (tj. komórki IC, które istniały przed przeprowadzeniem procedur denerwacji/pozornych). Rysunek 2B pokazuje włókna nerwowe unerwiające istniejące wcześniej oraz nowo powstałe komórki IC (zidentyfikowane za pomocą immunoreaktywności NKA) w nabłonku włókien i blaszek. Na koniec, nałożenie obu obrazów (Rysunek 2C) wyraźnie ukazuje istniejące wcześniej komórki IC (kolor żółty) oraz nowe komórki IC (kolor zielony). Rysunek 2D to reprezentatywny wykres ilościowy komórek IC dla włókna przedstawionego na Rysunku 2A-C. W tym konkretnym włóknie wydaje się, że liczba nowo proliferujących komórek IC na mm2 jest większa niż liczba istniejących wcześniej komórek IC (N = 1). Aby usunąć źródło zewnętrznej unerwienia skrzelowego, przecięto IX i X nerwy czaszkowe (unerwienie zewnętrzne). Rysunek 3A przedstawia grzbietowy obszar jamy operkularnej po usunięciu włókien skrzelowych i nabłonka pokrywającego nerwy w celu odsłonięcia IX i X nerwów czaszkowych (oznaczonych rzymskimi cyframi), które biegną od dwóch głównych pni nerwowych, unerwiając wszystkie cztery łuki (Rysunek 3A); łuki skrzelne ponumerowano od 1 do 4. Rysunki 3B-E ilustrują selektywną denerwację pierwszego łuku skrzelnego. Pierwszy łuk skrzelny jest unerwiany zarówno przez IX, jak i X nerwy czaszkowe (Rysunek 3B), które mogą zostać usunięte bez wpływu na unerwienie pozostałych łuków skrzelnych (Rysunki 3C-E). Pełna obustronna denerwacja prowadzi do stopniowej utraty zewnętrznego unerwienia włókien skrzelowych (Rysunki 4A-C). U ryb kontrolnych widoczny jest wyraźny pęczek nerwowy rozciągający się na całej długości włókna (Rysunek 4A). Pełna obustronna denerwacja spowodowała częściową utratę unerwienia zewnętrznego po 2 dniach rekonwalescencji (Rysunek 4B). Dalszy zanik unerwienia zewnętrznego odnotowano po 5 dniach rekonwalescencji po denerwacji (Rysunek 4C). Wszelkie pozostałe unerwienie komórek IC po 5 dniach rekonwalescencji prawdopodobnie pochodziło z nerwów z ciałami komórkowymi znajdującymi się wewnątrz włókna skrzelowego (unerwienie wewnętrzne; Rysunek 4C).

Rycina 1. Układ eksperymentalny dla procedury dennerwacji oraz sekwencja etapów zastosowana w technice barwienia różnicowego czasowo. (A) Przygotowanie stołu operacyjnego do procedury dennerwacji, przedstawiające zbiorniki do znieczulenia i rekonwalescencji. (B) Przykład rozmieszczenia znieczulonej i intubowanej ryby. (C) Kluczowe etapy zastosowane w technice barwienia różnicowego czasowo. W kroku 1 ryba jest umieszczana w kąpieli wodnej z kontrolowaną temperaturą i statycznym napowietrzaniem na 30 min. W kroku 2 dodaje się barwnik wiążący się z mitochondriami do stężenia końcowego 0,1 µM, a ryba pozostaje w roztworze przez minimum 4 hr. W kroku 3 wznawia się przepływ wody, po czym ryba poddawana jest pełnej obustronnej dennerwacji skrzeli lub operacji pozorowanej. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2. Mikrofotografie świetlne przedstawiające technikę barwienia różnicowego w czasie u złotej rybki (aklimatyzowanej do 25 °C) 2 dni po pełnej obustronnej denerwacji. (A) Rozkład istniejących wcześniej jonocytów (ICs; strzałki) na pojedynczym włóknie skrzelowym ujawniono za pomocą barwienia barwnikiem bogatym w mitochondria. (B) Rozkład ICs (nowych i istniejących wcześniej) oraz nerwów skrzelowych (strzałki przerywane) ujawniono odpowiednio za pomocą barwienia przeciwciałami α-5 i zn-12. Strzałki wskazują ICs. (C) Nałożenie obrazów (A) i (B) pozwala odróżnić istniejące wcześniej ICs (kolor żółty; wskazane grotem strzałki) od nowo proliferujących ICs (kolor zielony; wskazane strzałkami). Wstawka w (C) przedstawia powiększenie zainnerwowanego, istniejącego wcześniej jonocytu. (D) Reprezentatywny wykres ilościowy ICs dla włókna pokazanego na panelach (A-C). N = 1. Pasek skali na panelu (C) wynosi 50 µm i odnosi się do wszystkich paneli. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
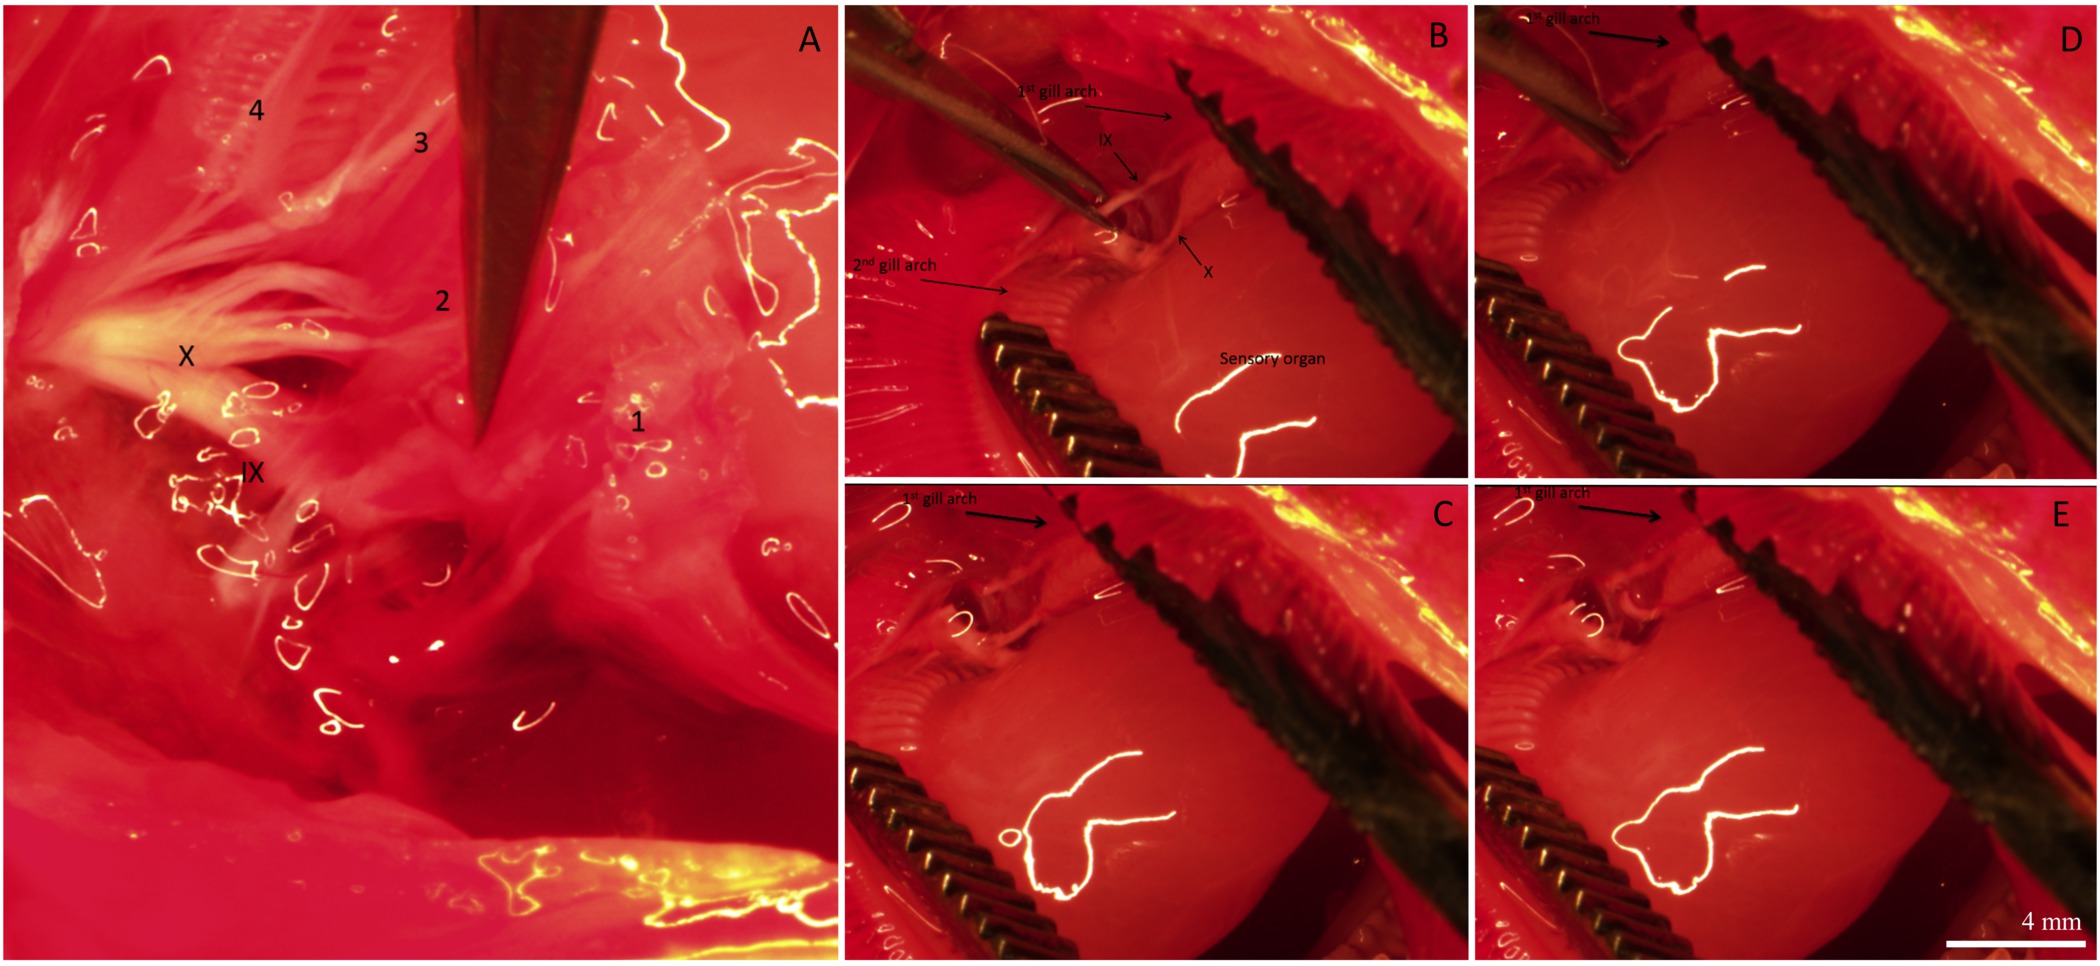
Rycina 3. Reprezentatywne obrazy przedstawiające różne etapy unerwienia skrzeli. (A) Widok grzbietowy jamy gębowej ukazujący IX i X nerwy czaszkowe unerwiające wszystkie 4 łuki skrzelowe. Łuki skrzelowe ponumerowano od 1 do 4. Nitki skrzelowe oraz tkanka pokrywająca nerwy zostały usunięte, aby lepiej uwidocznić unerwienie. (B) 1szy i 2gi łuk skrzelowy są rozdzielone, aby odsłonić organ sensoryczny oraz odgałęzienia IX i X nerwów czaszkowych unerwiających 1szy łuk skrzelowy. (C-E) Sekwencja obrazów pokazująca selektywną denerwację 1szego łuku skrzelowego poprzez przecięcie odgałęzień IX i X nerwów czaszkowych. Schematyczne przedstawienie unerwienia skrzeli ryb kostnoszkieletowych znajduje się na Rycini 1 w pracy Milsom et al.26 Białe linie na obrazach to refleksy wody od oświetlenia mikroskopu; nie wyznaczają one żadnej struktury morfologicznej. Pasek skali na panelu (E) wynosi 4 mm i odnosi się do wszystkich paneli. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
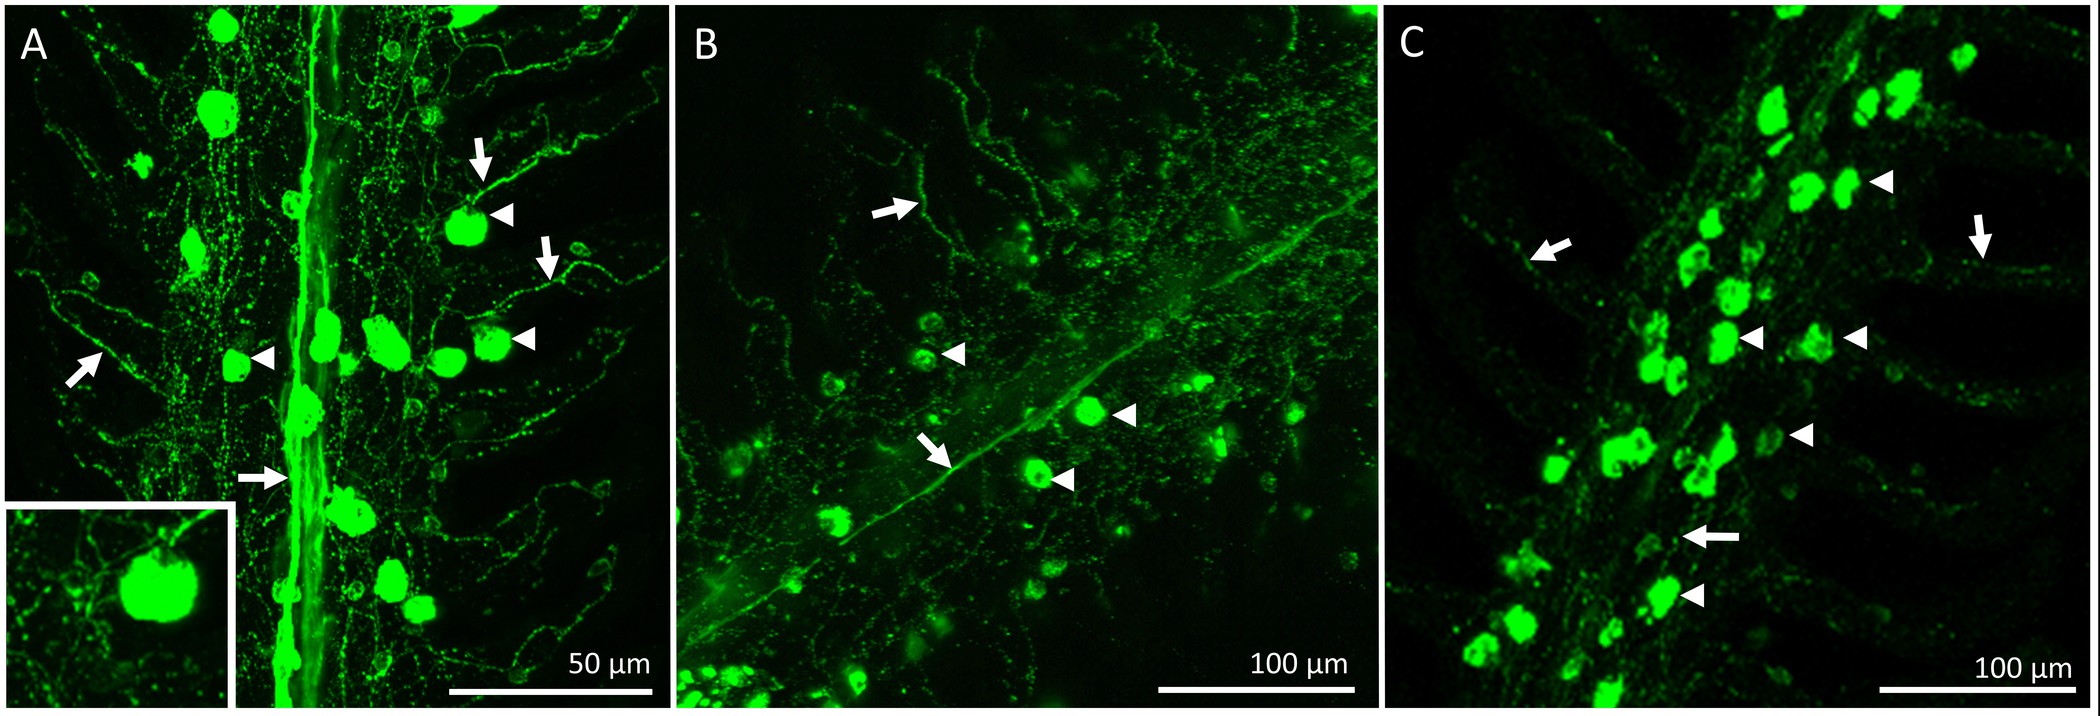
Rycina 4. Mikrografie świetlne przedstawiające rozkład i unerwienie jonocytów na pojedynczym włóknie 1st łuku skrzelowego złotej rybki aklimatyzowanej do 25 °C. Jonocyty (oznaczone grotami strzałek) barwiono przeciwciałem α-5, a nerwy (oznaczone strzałkami) barwiono przeciwciałem zn-12. (A) Włókno skrzelowe ryby kontrolnej wykazujące centralny pęczek nerwowy, prawdopodobnie wywodzący się z nerwów IX i X (unerwienie zewnętrzne), z rozległym rozgałęzieniem blaszkowatym. Niektóre z zaznaczonych jonocytów są również unerwione (wstawka). (B) Włókno skrzelowe 2 dni po pełnej obustronnej denerwacji. Odnotowano redukcję centralnego pęczka nerwowego, podczas gdy unerwienie blaszkowate wydawało się w dużej mierze nienaruszone. (C) Włókno skrzelowe 5 dni po pełnej obustronnej denerwacji, wykazujące w dużej mierze brak unerwienia zewnętrznego. Analiza jakościowa sugeruje, że pełna obustronna denerwacja powoduje degradację zewnętrznego unerwienia skrzeli, przy jednoczesnym zachowaniu nerwów z ciałami komórkowymi w obrębie włókna skrzelowego (unerwienie wewnętrzne), co tworzy sieć nerwów przechodzącą przez włókno do blaszek skrzelowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Technika barwienia różnicowego w czasie może być użytecznym narzędziem do zrozumienia dynamicznej regulacji wychwytu jonów i zbadania czasowej redystrybucji IC w nabłonku skrzelowym. Chociaż jest to prosta procedura, istnieje kilka kluczowych punktów, które mają kluczowe znaczenie dla sukcesu techniki barwienia różnicowego w czasie. Złota rybka musi być wystawiona na działanie barwnika bogatego w mitochondrium przez czas wyznaczony w protokole. Krótsze ekspozycje spowodują słaby wychwyt barwnika przez komórki bogate w mitochondrium (tj. jonocyty). Podczas utrwalania tkanka skrzelowa musi być szybko wycięta i przechowywana w ciemności, aby uniknąć wybielania fotograficznego. Tkanka musi zostać przetworzona do obrazowania w ciągu 2 tygodni od utrwalenia. Podczas procedury obustronnego cięcia nerwów upewnij się, że ryba jest dobrze znieczulona; nerwy i naczynia krwionośne są wyraźnie zidentyfikowane; a ryba wznawia pełną funkcję operkularną, zanim zostanie przeniesiona do zbiornika regeneracyjnego.
Środowisko FW stawia ryby przed podwójnym wyzwaniem zrównoważenia pasywnych strat jonów i osmotycznego przyrostu wody14. Równoważenie biernych strat jonów zachodzi poprzez aktywne pobieranie soli przez układy scalone, które są zlokalizowane w nabłonku nitkowym i blaszkowym, gdzie mogą mieć bezpośredni kontakt ze środowiskiem zewnętrznym2,4,8,9,16. Jednak lokalizacja układów scalonych na skrzelach nie jest statyczna. W ciągu ostatnich trzech dekad szereg badań wykazało, że kilka gatunków ryb FW, w obliczu wyzwania jonowego i/lub temperaturowego, redystrybuuje rozgałęzione IC z włókna lub podstawy blaszki do bardziej dystalnych obszarów blaszki1,2,4,5,17-21. Taka redystrybucja może zwiększyć grubość blaszek, co może utrudnić przenoszenie gazów (O2,CO2) przez nabłonek skrzelowy22. Naukowcy wykorzystali technikę barwienia różnicowego w czasie opisaną w tym manuskrypcie, aby śledzić przemieszczanie się i pojawianie nowych IC na nabłonku skrzelowym w tych różnych warunkach eksperymentalnych (Figura 1C)1,4,5.
Skrzela i przypuszczalnie rozgałęzione IC są unerwione przez nerwy czaszkowe IX i X7,23-25. Nerwy te przenoszą zarówno odprowadzające, jak i aferentne dane wejściowe odpowiednio do iz skrzela. Znajdują się one po grzbietowej stronie jamy policzkowej za 4. łukiem skrzelowym. Dostępność nerwów i łatwość, z jaką można przeprowadzić procedurę obustronnego odnerwienia, są specyficzne dla gatunku. Na przykład u pstrąga spiczasta i spłaszczona anatomia głowy pozwala nerwom leżeć w jednej płaszczyźnie za 4. łukiem skrzelowym pod cienką warstwą tkanki. Dzięki temu nerwy są widoczne i łatwo dostępne dla badacza w celu przeprowadzenia procedury odnerwienia. Natomiast złote rybki mają krótszy pysk i bardziej okrągłą głowę. Nerwy czaszkowe IX i X złotej rybki leżą głębiej w grzbietowej stronie jamy za 4. łukiem skrzelowym zajmującym różne płaszczyzny. Ta orientacja ogranicza łatwość dostępu do nerwów i wymaga bardziej ostrożnego podejścia do identyfikacji i przecięcia odpowiednich nerwów. Celem procedury denerwacji jest usunięcie odpowiednio sensorycznych danych aferentnych i odprowadzających do i ze skrzeli. Denerwacja łuków skrzelowych może być również połączona z eksperymentami strumienia jonów przy użyciu radioizotopów (np. 22Na). Techniki te mogą być stosowane w połączeniu do badania wpływu bodźców nerwowych na ruch jonów w nabłonku skrzelowym. Kolejnym ograniczeniem procedury denerwacji jest niemożność rozróżnienia neuronów czuciowych i ruchowych, dlatego podczas przecinania pęczka nerwowego możliwe jest, że oba rodzaje unerwienia są usuwane. Odcięcie jakichkolwiek neuronów ruchowych może wpływać na skrzela i ruch wieczkowy ryby. Dlatego podczas przeprowadzania eksperymentów z denerwacją skrzeli ważne jest również monitorowanie wentylacji po wyzdrowieniu ryb po zabiegu, aby zapewnić wystarczający ruch skrzeli zarówno dla wymiany gazowej, jak i jonowej.
Protokoły opisane w tym manuskrypcie wykorzystują dorosłe zwierzęta trzymane w cyklu 12:12 światło: ciemność i karmione komercyjnymi granulkami żywności. Metody te można modyfikować na kilka sposobów. Po pierwsze, okres rekonwalescencji po ekspozycji na barwnik bogaty w mitochondria można dostosować do wymagań protokołu badacza (np . 1, 3, 5 lub 14 dni). Najdłuższy okres rekonwalescencji po ekspozycji na barwnik bogaty w mitochondrium w laboratorium wynosił 14 dni4,5. Nie stwierdzono znaczącego spadku intensywności fluorescencji barwnika bogatego w mitochondrium po 14 dniach rekonwalescencji. Po drugie, zastosowanie przeciwciała pierwotnego α-5 ogranicza się jedynie do identyfikacji komórek bogatych w NKA i nie rozróżnia różnych podtypów rozgałęzionych IC. Na szczęście w przypadku złotych rybek ustalono, że większość układów scalonych to zarówno komórki bogate w mitochondria (znakowanie za pomocą MitoTracker), jak i NKA (znakowanie za pomocą α-5), co może nie mieć miejsca u wszystkich gatunków ryb4,27. Przyszłe eksperymenty mogą koncentrować się na śledzeniu czasowej redystrybucji określonych podtypów IC przy użyciu przeciwciał skierowanych konkretnie przeciwko różnym kanałom, pompom i wymiennikom (np. NHE, pompie H+ ). Wcześniejsze badania wykazały, że większość jonocytów barwionych barwnikiem bogatym w mitochondrium wykazuje immunoreaktywność NKA4. Unerwienie układów scalonych można wykryć za pomocą pierwszorzędowego przeciwciała przeciwko antygenowi specyficznemu dla neuronów pochodzącemu z danio pręgowanego (zn-12). W tym badaniu przeciwciała pierwszorzędowe α-5 i zn-12 wykryto przy użyciu tego samego przeciwciała drugorzędowego (Alexa Fluor 488) dla obu. Ograniczenie to wynika z tego, że oba pierwotne przeciwciała są wytwarzane w gospodarzu myszy i jest przezwyciężone przez fakt, że komórki i neurony bogate w NKA można rozróżnić morfologicznie, mimo że fluoryzują na ten sam kolor. Sekwencyjne barwienie różnymi przeciwciałami drugorzędowymi (np. najpierw α-5 z Alexa Fluor 488, a następnie zn-12 z Alexa Fluor 594) może być również stosowane w celu wyeliminowania problemu fluorescencji obu markerów na ten sam kolor. Wreszcie, pełny protokół obustronnego cięcia nerwów można zmodyfikować tak, aby kierować nerwy do określonych łuków skrzelowych. Na przykład selektywne cięcie nerwów można przeprowadzić na pierwszym łuku skrzelowym, delikatnie oddzielając pierwszy i drugi łuk skrzelowy, aby odsłonić nerwy prowadzące do pierwszego łuku skrzelowego na grzbietowym końcu kosza skrzelowego (ryc. 2B-E). Technikę różnicowania czasu można również zastosować do badania rozmieszczenia jonocytów w larwach danio pręgowanego w miarę ich rozwoju i przemian transportu jonów ze skóry do skrzeli.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Chcielibyśmy podziękować Williamowi Fletcherowi za opiekę nad zwierzętami na Uniwersytecie w Ottawie. Autorzy chcieliby również podziękować dr Williamowi Milsomowi za nauczenie VT pełnej techniki obustronnej denerwacji na Uniwersytecie Kolumbii Brytyjskiej. Stypendium podróżne na te badania zostało zapewnione przez Wydział Studiów Podyplomowych i Podyplomowych Uniwersytetu w Ottawie. Badania te są również wspierane przez stypendium NSERC PGS-D dla VT oraz Discovery Grants Program dla SFP.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| MitoTracker Red | Life Technologies | M-7512 | |
| Dimetylosulfotlenek | Sigma Alrdich | D2650 | |
| α-5 przeciwciało pierwszorzędowe | Develompental Hybridoma Bank | a5 | |
| zn12 Przeciwciało pierwotne | Develompental Hybridoma Bank | zn12 | |
| Alexa Fluor 488 (przeciw myszy) | Life Technologies | A-11001 | |
| Benzokaina | Sigma Alrdich | E1501 | Ester etylowy kwasu 4-aminobenzoesowego, 4-aminobenzoesan etylu |
| Nożyczki sprężynowe Vannas | Fine Science Tools | 15000-10 | |
| Kleszcze o standardowym wzorze | Fine Science Tools | 11000-12 | proste |
| Kleszcze standardowe | Fine Science Tools | 11001-12 | zakrzywione |
| kleszcze Dumont nr 5 | Fine Science Tools | 11252-30 | |
| Retraktor tkanek | Fine Science Tools | 17009-07 | |
| Paraformaldehyd | Sigma Alrdich | P6148 | |
| Triton X | Sigma Alrdich | X100 | |
| Vectashield z DAPI | Vector Laboratories | H-1200 |
Bibliografia
- Katoh, F., Kaneko, T. Short-term transformation and long-term replacement of branchial chloride cells in killifish transferred from seawater to freshwater, revealed by morphofunctional observations and a newly established 'time-differential double fluorescent staining' technique. J. Exp. Biol. 206 (22), 4113-4123 (2003).
- Perry, S. F. Relationships between branchial chloride cells and gas transfer in freshwater fish. Comp. Biochem. Physiol. A. Mol. Integr. Physiol. 119 (1), 9-16 (1998).
- Sollid, J., Weber, R. E., Nilsson, G. E. Temperature alters the respiratory surface area of crucian carp Carassius carassius and goldfish Carassius auratus. J. Exp. Biol. 208 (6), 1109-1116 (2005).
- Mitrovic, D., Perry, S. F. The effects of thermally induced gill remodeling on ionocyte distribution and branchial chloride fluxes in goldfish (Carassius auratus). J. Exp. Biol. 212 (6), 843-852 (2009).
- Tzaneva, V., Vadeboncoeur, C., Ting, J., Perry, S. F. Effects of hypoxia-induced gill remodelling on the innervation and distribution of ionocytes in the gill of goldfish, Carassius auratus. J. Comp. Neurol. 522 (1), 118-130 (2014).
- Greco, A. M., Fenwick, J. C., Perry, S. F. The effects of soft-water acclimation on gill structure in the rainbow trout Oncorhynchus mykiss. Cell Tissue Res. 285 (1), 75-82 (1996).
- Jonz, M. G., Nurse, C. A. Epithelial mitochondria-rich cells and associated innervation in adult and developing zebrafish. J. Comp. Neurol. 497 (5), 817-832 (2006).
- Laurent, P., Hebibi, N. Gill morphometry and fish osmoregulation. Can. J. Zool. 67 (12), 3055-3063 (1989).
- Perry, S. F., Laurent, P. Adaptational responses of rainbow trout to lowered external NaCL concentration: contribution of the branchial chloride cell. J. Exp. Biol. 147, 147-168 (1989).
- Evans, D. H., Piermarini, P. M., Choe, K. P. The multifunctional fish gill: dominant site of gas exchange, osmoregulation, acid-base regulation, and excretion of nitrogenous waste. Physiol. Rev. 85 (1), 97-177 (2005).
- Hwang, P. P., Lee, T. H., Lin, L. Y. Ion regulation in fish gills: recent progress in the cellular and molecular mechanisms. Am. J. Physiol. Regul. Integr. Comp. Physiol. 301 (1), R28-R47 (2011).
- Krogh, A. The Active Uptake of Ions into Cells and Organisms. Proc. Natl. Acad. Sci. U. S. A. 25 (6), 275-277 (1939).
- Nilsson, G. E. Innervation and pharmacology of the gills. Fish Physiology. Randall, D. J., Hoar, W. S. , Academic Press. Orlando, FL. 185-272 (1984).
- Sundin, L., Nilsson, S. Branchial innervation. J. Exp. Zool. 293 (3), 232-248 (2002).
- Dymowska, A. K., Hwang, P. P., Goss, G. G. Structure and function of ionocytes in the freshwater fish gill). Respir. Physiol. Neurobiol. 184 (3), 282-292 (2012).
- Witters, H., Berckmans, P., Vangenechten, C. Immunolocalization of Na+/K+-ATPase in the gill epithelium of rainbow trout, Oncorhynchus mykiss. Cell Tissue Res. 283 (3), 461-468 (1996).
- Bindon, S., Fenwick, J. C., Perry, S. F. Branchial chloride cell proliferation in the rainbow trout, Onchorhynchus mykiss: implications for gas transfer. Can. J. Zool. 72 (8), 1395-1402 (1994).
- Bradshaw, J. C., Kumai, Y., Perry, S. F. The effects of gill remodeling on transepithelial sodium fluxes and the distribution of presumptive sodium-transporting ionocytes in goldfish (Carassius auratus). J. Comp. Physiol. B. 182 (3), 351-366 (2012).
- Chou, M. Y., et al. Effects of hypothermia on gene expression in zebrafish gills: upregulation in differentiation and function of ionocytes as compensatory responses. J. Exp. Biol. 211 (19), 3077-3084 (2008).
- Kaneko, T., Katoh, F. Functional morphology of chloride cells in killifish Fundulus heteroclitus, a euryhaline teleost with seawater preference. Fisheries Science. 70 (5), 723-733 (2004).
- Ouattara, N., et al. Changes in gill ionocyte morphology and function following transfer from fresh to hypersaline waters in the tilapia Sarotherodon melanotheron. Aquaculture. 290 (1-2), 155-164 (2009).
- Bindon, S., Gilmour, K., Fenwick, J., Perry, S. The effects of branchial chloride cell proliferation on respiratory function in the rainbow trout, Oncorhynchusmykiss. J. Exp. Biol. 197 (1), 47-63 (1994).
- Dunel-Erb, S., Bailly, Y., Laurent, P. Pattern of gill innervation in two teleosts, the perch and the trout. Can. J. Zool. 71, 18-25 (1993).
- Jonz, M. G., Nurse, C. A. New developments on gill innervation: insights from a model vertebrate. J. Exp. Biol. 211 (15), 2371-2378 (2008).
- Jonz, M. G., Zaccone, G. Nervous control of the gills. Acta Histochem. 111 (3), 207-216 (2009).
- Milsom, W. K., Reid, S. G., Rantin, F. T., Sundin, L. Extrabranchial chemoreceptors involved in respiratory reflexes in the neotropical fish, Colossoma macropomum (the tambaqui). J. Exp. Biol. 205 (12), 1765-1774 (2002).
- Hwang, P., Lee, T. New insights into fish ion regulation and mitochondrion-rich cells. Comp Biochem Physiol A Mol Integr Physiol. 148 (3), 479-497 (2007).
Przedruki i uprawnienia
