Ten protokół opisuje, jak wykorzystać przejściowe ogrzewanie związane z optyczną absorpcją nanoprętów złota do stymulowania różnicowania i wewnątrzkomórkowej aktywności wapnia w komórkach neuronalnych. Wyniki te potencjalnie otwierają nowe zastosowania w protezach neuronalnych i podstawowych badaniach w neurobiologii.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Stymulacja optyczna komórek neuronalnych wspomagana złotem nanoprętami
W tym artykule
Podsumowanie
Streszczenie
Ostatnie badania wykazały, że nerwy mogą być stymulowane na różne sposoby przez przejściowe ogrzewanie związane z absorpcją światła podczerwonego przez wodę w tkance neuronalnej. Technika ta ma ogromny potencjał do zastąpienia lub uzupełnienia standardowych technik stymulacji, ze względu na potencjał zwiększenia lokalizacji bodźca i zminimalizowania kontaktu mechanicznego z tkanką. Jednak podejścia optyczne są ograniczone przez niezdolność światła widzialnego do wnikania w głąb tkanek. Co więcej, modelowanie termiczne sugeruje, że skumulowane efekty ogrzewania mogą być potencjalnie niebezpieczne, gdy stosuje się wiele miejsc bodźca lub wysokie częstotliwości powtarzania lasera. Przedstawiony poniżej protokół opisuje ulepszone podejście do stymulacji komórek nerwowych w podczerwieni. Podstawowy mechanizm opiera się na przejściowym ogrzewaniu związanym z optyczną absorpcją nanoprętów złota, co może powodować wyzwalanie różnicowania komórek neuronalnych i zwiększony poziom wewnątrzkomórkowej aktywności wapnia. Wyniki te pokazują, że absorbery nanocząstek mogą usprawnić i/lub zastąpić proces stymulacji neuronalnej w podczerwieni oparty na absorpcji wody, z potencjałem do przyszłych zastosowań w protezach nerwowych i terapiach komórkowych.
Wprowadzenie
Ostatnie badania wykazały, że przejściowe ogrzewanie związane z absorpcją światła podczerwonego przez wodę (długość fali >1,400 nm) może być wykorzystane do indukowania potencjałów czynnościowych w tkance>nerwowej1 i wewnątrzkomórkowych przejściowych stanów wapnia w kardiomiocytach2. Zastosowanie światła podczerwonego wzbudziło duże zainteresowanie zastosowaniami w protezach neuronowych, ze względu na potencjalną lepszą rozdzielczość przestrzenną, brak bezpośredniego kontaktu z tkanką, minimalizację artefaktów stymulacji i wyeliminowanie potrzeby genetycznej modyfikacji komórek przed stymulacją (co jest wymagane w optogenetyce)1. Pomimo wszystkich tych korzyści, niedawno opracowane modele termiczne sugerują, że na tkankę/komórki docelowe mogą wpływać skumulowane efekty ogrzewania, gdy stosuje się wiele miejsc bodźca i/lub wysokie częstotliwości powtarzania3,4.
W odpowiedzi na te wyzwania, naukowcy dostrzegli potencjał wykorzystania zewnętrznych absorberów do stymulacji nerwów w celu uzyskania bardziej miejscowych efektów ogrzewania w tkance. Huang i in. zademonstrowali tę zasadę, wykorzystując superparamagnetyczne nanocząstki ferrytowe do zdalnej aktywacji wrażliwych na temperaturę kanałów TRPV1 w komórkach HEK 293 za pomocą pola magnetycznego o częstotliwości radiowej5. Chociaż technika ta może pozwolić na głębszą penetrację (pola magnetyczne oddziałują stosunkowo słabo z tkanką), odpowiedzi były rejestrowane tylko przez okresy sekund, a nie milisekundowe czasy trwania wymagane w urządzeniach bionicznych. Podobnie Farah i wsp. wykazali elektryczną stymulację neuronów korowych szczurów za pomocą czarnych mikrocząstek in vitro. Wykazali się precyzją stymulacji na poziomie komórki przy użyciu czasów trwania impulsów rzędu setek μs i energii w zakresie μJ, co potencjalnie pozwoliło na szybsze powtarzanie6.
Zastosowanie zewnętrznych absorberów zostało również zastosowane do wywołania zmian morfologicznych in vitro. Ciofani i in. wykazali ~40% wzrost wzrostu komórek neuronalnych przy użyciu piezoelektrycznych nanorurek azotku boru wzbudzonych ultradźwiękami7. Podobnie, doniesiono, że endocytozowane nanocząstki tlenku żelaza w komórkach PC12 zwiększają różnicowanie neurytów w sposób zależny od dawki, ze względu na aktywację cząsteczek adhezyjnych komórek z tlenkiem żelaza8.
Ostatnio, zainteresowanie zewnętrznymi absorberami wspomagającymi stymulację neuronalną skupiło się również na wykorzystaniu nanocząsteczek złota (Au NPs). Au NPs mają zdolność do efektywnego pochłaniania światła laserowego w piku plazmonicznym i rozpraszania go do otaczającego środowiska w postaci ciepła9. Spośród wszystkich dostępnych kształtów cząstek, absorpcja optyczna nanoprętów złota (Au NR) dogodnie dopasowuje się do okna terapeutycznego tkanek biologicznych (bliska podczerwień - NIR, długość fali między 750-1400 nm)10. Co więcej, w kontekście stymulacji neuronalnej, zastosowanie Au NRs zapewnia stosunkowo korzystną biokompatybilność i szeroki zakres możliwości funkcjonalizacji powierzchni11. Ostatnie badania wykazały, że stymulujący wpływ na różnicowanie może być wywołany po ciągłej ekspozycji laserowej Au NR w komórkach neuronalnych NG108-1512. Podobnie, wewnątrzkomórkowe stany przejściowe wapnia zarejestrowano w komórkach neuronalnych hodowanych za pomocą Au NR po naświetlaniu laserowym modulowanym ze zmiennymi częstotliwościami i długościami impulsów13. Depolaryzację błony komórkowej zarejestrowano również po naświetleniu laserowym NIR Au NR w pierwotnych kulturach neuronów zwoju spiralnego14. Niedawno zademonstrowano pierwsze zastosowanie in vivo z napromieniowanymi Au NR. Eom i współpracownicy wystawili Au NR na szczyt plazmoniczny i odnotowali sześciokrotny wzrost amplitudy złożonych potencjałów czynnościowych nerwów (CNAP) i trzykrotny spadek progu stymulacji w nerwach kulszowych szczurów. Wzmocnioną odpowiedź przypisano miejscowym efektom ogrzewania wynikającym ze wzbudzenia piku plazmonicznegoNR 15.
W niniejszym artykule przedstawione są protokoły badania efektów stymulacji laserowej w komórkach neuronalnych NG108-15 hodowanych za pomocą Au NR. Metody te zapewniają prosty, ale skuteczny sposób napromieniania populacji komórek in vitro przy użyciu standardowych technik i materiałów biologicznych. Protokół oparty jest na diodzie laserowej sprzężonej z światłowodem (LD), która umożliwia bezpieczną pracę i powtarzalne osiowanie. Metody przygotowania próbek Au NR i napromieniania laserowego można dodatkowo rozszerzyć na różne kształty cząstek i hodowle komórek neuronalnych, pod warunkiem, że znane są odpowiednio konkretne protokoły syntezy i hodowli.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie nanoprętów Au
Uwaga: Au NRs można zsyntetyzować zgodnie z wieloma procedurami16 lub zakupić od dostawców komercyjnych.
- Zmierz początkową gęstość optyczną (OD) roztworu Au NR za pomocą spektroskopii UV-Vis, rejestrując wartości absorbancji w zakresie od 300 nm do 1 000 nm z rozdzielczością 0,5-2 nm. Dostosuj objętość roztworu do parametrów dostępnej kuwety.
- Oceń początkowe stężenie molowe NP odpowiednią techniką17 (np. spektroskopia UV-Vis, spektrometria mas z indukcyjnie sprzężonym plazmą dla pojedynczych cząstek, transmisyjna mikroskopia elektronowa) lub skorzystaj z wartości stężeń podanych przez dostawcę.
- Przygotuj 5 ml roztworu zapasowego poprzez rozcieńczenie początkowej próbki Au NR do uzyskania OD = 1. Aby zapewnić najlepszą powtarzalność, utrzymuj stałą wartość OD dla wszystkich badanych próbek. W kwestii składu rozpuszczalnika do rozcieńczania postępuj zgodnie z protokołem producenta. W przypadku wątpliwości użyj wody dejonizowanej.
- Odwiruj 1 ml roztworu Au NR dwukrotnie przez 15 min przy 7 800 × g, aby usunąć z roztworu nadmiar substancji chemicznych. Cykle wirowania mogą różnić się siłą i czasem (np. 20 min przy 5 600 × g)18.
- Usuń nadosady i resuspenduj NR w wodzie dejonizowanej. Ponieważ resuspendowane cząstki mogą tworzyć w roztworze agregaty, przygotowuj je codziennie, aby uzyskać najlepsze wyniki. Alternatywnie przechowuj w lodówce nie dłużej niż 1 tydzień. Nie zamrażać.
- Przed zastosowaniem w warunkach hodowli komórkowej poddaj roztwór Au NR sonikacji przez 5 min, a następnie wysterylizuj światłem UV przez 30 min (natężenie promieniowania UV nie mniejsze niż 400 mW∙m-2 przy 254 nm).
2. Hodowla i różnicowanie linii komórek neuronalnych NG108-15
- W celu przygotowania pożywki do hodowli komórkowej przygotować 500 ml sterylnej pożywki DMEM (Dulbecco's modified Eagle medium) zawierającej 10% (w/v) płodowej surowicy cielęcej (FCS), 1% (w/v) L-glutaminy, 1% (w/v) penicyliny/streptomycyny oraz 0,5% (w/v) amfoterycyny B.
Uwaga: Suplementy można rozdzielić na aliquoty, przechowywać w temperaturze -20 °C i dodawać do pożywek w dniu ich użycia. Pożywkę do hodowli komórkowej można przechowywać w warunkach sterylnych w lodówce maksymalnie przez 1 miesiąc. - W celu przygotowania pożywki do różnicowania komórek przygotować 50 ml sterylnej pożywki DMEM zawierającej 1% (w/v) L-glutaminy, 1% (w/v) penicyliny/streptomycyny oraz 0,5% (w/v) amfoterycyny B.
- Hodować komórki neuronalne NG108-15 w 10 ml pożywki do hodowli komórkowej w kolbach T75 wykonanych z polistyrenu w inkubatorze z atmosferą uwilgotnioną (5% CO2 w 37 °C). Zazwyczaj należy zasiać 1,5-2 × 10⁵ komórek do każdej kolby, aby uzyskać gotową hodowlę w ciągu 3-4 dni. Wymieniać pożywkę do hodowli komórkowej co dwa dni.
Uwaga: Aby zapobiec dryfowi genetycznemu lub zmienności, do eksperymentów nie należy używać komórek powyżej 21. pasażu. - Gdy konfluencja w hodowli osiągnie 70-80%, wymienić pożywkę na ciepłą, świeżą pożywkę do hodowli komórkowej. Odczepić komórki mechanicznie, delikatnie uderzając w dno konfluencyjnej kolby. Nie używać trypsyny.
- Wirować zawiesinę komórkową przez 5 min przy 600 x g, a następnie resuspender osad komórkowy w 2 ml ciepłej pożywki do różnicowania komórek.
- Zasiać 2 × 10⁴ komórek/cm2 na polistyrenowej płytce 96-dołkowej do hodowli tkanek, dodając 200 µl pożywki do różnicowania komórek. Inkubować próbki przez 1 dzień w 5% CO2/37 °C.
- W drugim dniu dodać roztwór Au NR w stężeniu od 3,2 × 10⁹ do 4,2 × 10¹⁰ cząsteczek/ml i inkubować przez kolejne 24 h. W przypadku eksperymentów kontrolnych nie dodawać cząsteczek.
Uwaga: Jako alternatywną kontrolę, w celach porównawczych można zastosować Au NPs o dobrze zdefiniowanej długości fali szczytowego pochłaniania14. Aby zapewnić bardziej powtarzalne zachowanie komórek, należy utrzymywać stałą gęstość komórek i nie modyfikować powierzchni dołka przed zasianiem komórek.
3. Zwiększenie wzrostu neurytów
- Podłącz laser do jednomodułowego światłowodu (apertura numeryczna = 0,13) i zakończ go złączem światłowodowym (wygodne i powszechnie dostępne są złącza FC). Zmierz moc wyjściową lasera za pomocą standardowego miernika mocy. Aby uzyskać najskuteczniejsze wyniki, dopasuj szczytową długość fali lasera do szczytu rezonansu plazmonowego nanoprętów (NRs).
- W 3. dniu po inkubacji z NRs przymocuj złącze FC do dołka. Naświetlaj próbki i kontrole w temperaturze pokojowej (RT) przez 1 min w trybie ciągłym, stosując różne moce lasera. Pozostaw kulturę na kolejne 3 dni w warunkach 5% CO2/37 °C. Powtórz naświetlanie laserowe dla minimum 3 niezależnych pomiarów.
Uwaga: W zależności od zastosowania można dobrać różne czasy naświetlania i częstotliwości impulsów. - Określ parametry lasera pod kątem średnicy wiązki i natężenia promieniowania laserowego (W∙cm-2).
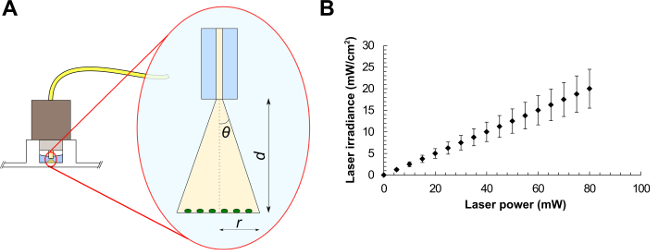
- W przypadku standardowego światłowodu jednomodułowego zastosuj wzór NA = n∙sinθ, gdzie n to współczynnik załamania światła użytego medium, a θ to kąt połowiczny stożka światła wychodzącego z włókna (patrz Rysunek 1A). Z trygonometrii wynika, że r = tanθ∙d, gdzie r to promień wiązki, a d to odległość między włóknem a próbką. Złącze FC odpowiada średnicy dołka, co pozwala na oświetlanie próbki w odległości d = 2,70 ± 0,20 mm. Światło opuszcza włókno w wodzie (n = 1,33), co daje r = tan(sin-1(NA/n))∙d.
- Korzystając z powyższego równania, oblicz promień wiązki laserowej, odpowiadającą mu powierzchnię wiązki oraz średnie natężenie promieniowania laserowego (moc lasera podzielona przez powierzchnię wiązki) w punkcie celu (patrz wykres przykładu na Rysunku 1B). Wartości te reprezentują średnie natężenie w obszarze oświetlanym.
- Oceń błędy pomiarowe zgodnie z ogólną teorią propagacji błędów.
Uwaga: Odległość między złączem FC a próbką można zmierzyć na podstawie fotografii układu eksperymentalnego i postprocesingu obrazu przy użyciu odpowiedniego oprogramowania (np. ImageJ).
- W 5. dniu usuń medium do różnicowania komórek z eksperymentów i utrwal próbki 3,7% (v/v) roztworem formaldehydu przez 10 min, a następnie permeabilizuj komórki 0,1% (v/v) roztworem Triton X-100 przez 20 min.
- Dodaj do próbek 3% (w/v) albuminy surowicy bydlęcej (BSA) na 60 min w celu zablokowania nieprzereagowanych miejsc wiązania białek. Inkubuj próbki przez noc w temperaturze 4 °C z przeciwciałem anty-βIII-tubuliną (5 µg/ml w PBS uzupełnionym o 1% BSA).
- Inkubuj komórki przez 90 min w ciemności z odpowiednim przeciwciałem wtórnym (np. przeciwciało anty-IgG mysie sprzężone z TRITC) w stężeniu 0,4-2 µg/ml w 1% BSA w PBS. Barw jądra komórkowe DAPI (0,1 µg/ml w wodzie dejonizowanej) przez 10 min.
Uwaga: Rodzaj sprzężenia i stężenie przeciwciał mogą różnić się zgodnie z protokołem producenta. Po każdym etapie barwienia przemyj próbki dwukrotnie PBS przez 5 min.
- Wykonaj obrazowanie próbek za pomocą mikroskopii epifluorescencyjnej lub konfokalnej, używając co najmniej obiektywu 20×. Dobierz filtry mikroskopu odpowiednio do przeciwciała wtórnego. Wybierz filtr DAPI (λEX = 358 nm; λEM = 488 nm) do wizualizacji jąder komórkowych.
- Przeanalizuj zdjęcia, oceniając: i) maksymalną długość neurytów (mierzona od końcówki neurytu do początku ciała komórki), ii) liczbę neurytów na komórkę neuronalną (suma wszystkich neurytów w komórce) oraz iii) odsetek komórek z neurytami (dzieląc całkowitą liczbę komórek wykazujących ekspresję βIII-tubuliny przez całkowitą liczbę komórek z dodatnio zabarwionym jądrem)19.
4. Obrazowanie wewnątrzkomórkowego stężenia Ca2+ indukowane laserem
- Przygotować 20% (w/v) roztwór zapasowy Pluronic F-127, rozpuszczając 2 g substancji w 10 ml bezwodnego dimetylosulfoksydy (DMSO). Podgrzewać roztwór Pluronic F-127 w temperaturze 40 °C przez około 20 min w celu zwiększenia rozpuszczalności. Przygotować wcześniej, jeśli roztwór jest przechowywany w RT.
- W 3. dniu po inkubacji z NR przygotować zrównoważony roztwór soli (BSS; 135 mM NaCl, 4.5 mM KCl, 1.5 mM CaCl2, 0.5 mM MgCl2, 5.6 mM glukozy i 10 mM HEPES, pH 7.4) i uzupełnić go o 5 µM Fluo-4 AM w DMSO oraz 0.1% (w/v) roztworu Pluronic F-127.
Uwaga: Roztwór BSS można przygotować wcześniej i przechowywać w lodówce maksymalnie przez 1 miesiąc. Dodatki (Fluo-4 AM i Pluronic F-127) należy dodać w dniu eksperymentu. - Usunąć pożywkę do różnicowania komórek i zastąpić ją uzupełnionym roztworem BSS. Aby uzyskać najlepsze wyniki przy użyciu odwróconego mikroskopu konfokalnego, inkubować komórki w dołku mikroprzesuwnika.
- Obciążyć komórki NG108-15 barwnikiem Fluo-4 AM przez 30 min w ciemności w warunkach 5% CO2/37 °C. Po czasie inkubacji dwukrotnie przemyć próbki roztworem BSS, aby usunąć nadmiar niezwiązanego fluoroforu z przestrzeni zewnątrzkomórkowej.
- Połączyć laser z jednomodowym światłowodem i ściąć końcówkę stosując standardowe techniki. Obserwować powstałą końcówkę pod mikroskopem optycznym, aby upewnić się, że powierzchnia jest wysokiej jakości (t.j. końcówka powinna być prostopadła do osi światłowodu i płaska podczas inspekcji mikroskopowej).
- Zmierzyć moc wyjściową lasera za pomocą standardnego miernika mocy. Włożyć światłowód doprowadzający światło do uchwytu światłowodowego i przymocować go do mikropozycjonera. Szczegółowe informacje na temat przygotowania i pozycjonowania światłowodu znajdują się w pracy Brown et al.20.
Uwaga: Podczas pomiaru mocy lasera należy przestrzegać ogólnych zasad bezpieczeństwa pracy z laserem (np. nie patrzeć bezpośrednio w wiązkę lasera, nosić okulary ochronne podczas obsługi, zapobiegać ekspozycji innych użytkowników laboratorium na światło rozproszone).
- Zmierzyć moc wyjściową lasera za pomocą standardnego miernika mocy. Włożyć światłowód doprowadzający światło do uchwytu światłowodowego i przymocować go do mikropozycjonera. Szczegółowe informacje na temat przygotowania i pozycjonowania światłowodu znajdują się w pracy Brown et al.20.
- Podłączyć oscyloskop do przenośnego lasera w celu monitorowania modulacji optycznej. Użyć sygnału binarnego o zmiennych częstotliwościach (0.5-2 Hz) i długościach impulsów (20-100 msec). Podłączyć laser, wykorzystując sygnał modulujący jako wejście logiczne tranzystor-tranzystor (TTL) dla mikroskopu, zgodnie z konfiguracją przedstawioną przez Paviolo et al.13.
- Umieścić komórki pod odwróconym mikroskopem konfokalnym i ustawić światłowód doprowadzający światło w odległości 250 ± 50 µm od docelowej komórki w trybie oświetlenia transmisyjnego. Dla tej odległości użyć równań przedstawionych w punkcie 3.3.1, aby obliczyć promień wiązki w punkcie docelowym.
- Użyć lasera argonowo-jonowego (488 nm) do wzbudzenia zinternalizowanego barwnika Fluo-4 AM (λEX = 494 nm; λEM = 516 nm) oraz zsynchronizowanej diody laserowej (LD) do wzbudzenia endocytowanych NR. Wykonać obrazowanie próbek i kontroli w RT, używając co najmniej obiektywu 40× i zbierając skany w serii czasowej z rozdzielczością 256 × 256 pikseli/klatkę w trybie roundtrip z częstotliwością co najmniej 4 Hz. Wykonać pomiar bez wzbudzenia LD, aby zidentyfikować ewentualne zakłócenia lasera argonowo-jonowego (szum linii bazowej).
- Usunąć tło z danych, stosując algorytmy adaptacyjnie ważonej metody najmniejszych kwadratów z karą21. Wykreślić zmiany stężenia Ca2+ w funkcji czasu. Przeanalizować przejściowe piki intensywności fluorescencji za pomocą oprogramowania do postprocesingu obrazu, stosując próg wynoszący trzykrotność odchylenia standardowego szumu linii bazowej (3σ).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Stosując opisane tutaj protokoły 1, 2 i 3, zaobserwowano efekt stymulujący różnicowanie w komórkach neuronalnych NG108-15 hodowanych z Au NPs (Au NRs, Au NRs powleczone poli(styrenosulfonianem) oraz Au NRs powleczone krzemionką) po ekspozycji laserowej w zakresie od 1,25 do 7,5 W·cm−2 . Obrazy konfokalne Au NRs znakowanych rhodaminą B wykazały, że cząstki były internalizowane od 1. dnia inkubacji12. Lokalizację zaobserwowano głównie w cytoplazmie komórek, co wskazuje, że preferowanym mechanizmem pob...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokoły przedstawione w tej prezentacji opisują, w jaki sposób hodować, różnicować i optycznie stymulować komórki neuronalne za pomocą absorberów zewnętrznych. Charakterystyki NR (np. wymiary, kształt, długość fali rezonansu plazmonowego i skład chemiczny powierzchni) oraz parametry stymulacji laserowej (takie jak długość fali, długość impulsu, częstotliwość powtarzania itp.) mogą być zmieniane w celu dopasowania do różnych potrzeb eksperymentalnych. Wpływ na zachowanie komórek można monitorować za po...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają żadnych sprzecznych interesów, które mogliby ujawnić.
Podziękowania
Autorzy chcieliby podziękować NanoVentures Australia za wsparcie w finansowaniu podróży oraz prof. Johnowi Haycockowi za częściowe prowadzenie tych badań na Uniwersytecie w Sheffield oraz Pani Jaimee Mayne za jej pomoc podczas kręcenia filmu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Au NR | Sigma Aldrich | 716812 | |
| NG108-15 | Sigma Aldrich | 8811230 | |
| DMEM | Sigma Aldrich | D6546 | |
| FCS | Life Technologies | 10100147 | |
| L-glutamina | Sigma Aldrich | G7513 | |
| Penicylina/streptomycyna | Life Technologies | 15140122 | |
| Amfoterycyna B | Life Technologies | 15290018 | |
| Formaldehyd | Sigma Aldrich | F8775 | |
| Triton X-100 | BDH | T8532 | |
| BSA | Sigma Aldrich | A2058 | |
| Anti-β III-tubulina | Promega | G7121 | |
| TRITC-sprzężone przeciwciało anty-mysie IgG | Sigma Aldrich | T5393 | |
| DAPI | Invitrogen | D1306 | |
| Fluo-4 AM | Invitrogen | F14201 | |
| DMSO | Sigma Aldrich | 472301 | |
| Pluronic F-127 | Invitrogen | P6867 | |
| UV-Vis spektrometr | Varian Medical Systems Inc. | Wirówka Cary 50 Bio | |
| Mini | Eppendorf | Mini Spin | |
| Kąpiel soniczna | Unisonics Australia | FPX 10D | |
| Inkubator do hodowli komórkowych | Kendro | Hera Cell 150 | |
| Wirówka do hodowli komórkowych | Hettich | Rotofix 32A Dioda laserowa | |
| Optotech | 780 nm jednomodowa światłowód - sprzężony LD | ||
| Światłowód | Thorlabs | 780 HP | |
| Miernik mocy | Koherentny | test | |
| ImageJ | http://rsb.info.nih.gov/ij/index.html | ||
| Mikroskop epifluorescencyjny | Axon Instruments | ImageX-press 5000A | |
| μ-slide well | Ibidi | 80826 | |
| Odwrócony mikroskop konfokalny | Carl Mikroskopia Zeiss Sp. z o.o. | LSM 510 mikroskop | |
| Oscyloskop | Tektronix | TDS210 |
Bibliografia
- Richter, C. P., Matic, A. I., Wells, J. D., Jansen, E. D., Walsh, J. T. Neural stimulation with optical radiation. Laser. Photonics Rev. 5 (1), 68-80 (2011).
- Dittami, G. M., Rajguru, S. M., Lasher, R. A., Hitchcock, R. W., Rabbitt, R. D. Intracellular calcium transients evoked by pulsed infrared radiation in neonatal cardiomyocytes. J. Physiol. 589 (6), 1295-1306 (2011).
- Thompson, A. C., Wade, S. A., Brown, W. G. A., Stoddart, P. R. Modeling of light absorption in tissue during infrared neural stimulation. J. Biomed. Opt. 17 (7), 075002-075002 (2012).
- Thompson, A. C., Wade, S. A., Cadusch, P. J., Brown, W. G., Stoddart, P. R. Modeling of the temporal effects of heating during infrared neural stimulation. J. Biomed. Opt. 18 (3), 035004(2013).
- Huang, H., Delikanli, S., Zeng, H., Ferkey, D. M., Pralle, A. Remote control of ion channels and neurons through magnetic-field heating of nanoparticles. Nat. Nanotechnol. 5 (8), 602-606 (2010).
- Farah, N., et al. Holographically patterned activation using photo-absorber induced neural-thermal stimulation. J. Neural. Eng. 10 (5), (2013).
- Ciofani, G., et al. Enhancement of neurite outgrowth in neuronal-like cells following boron nitride nanotube-mediated stimulation. ACS Nano. 4 (10), 6267-6277 (2010).
- Kim, J. A., et al. Enhancement of neurite outgrowth in PC12 cells by iron oxide nanoparticles. Biomaterials. 32 (11), 2871-2877 (2011).
- Myroshnychenko, V., et al. Modelling the optical response of gold nanoparticles. Chem. Soc. Rev. 37 (9), 1792-1805 (2008).
- Choi, W. I., Sahu, A., Kim, Y. H., Tae, G. Photothermal cancer therapy and imaging based on gold nanorods. Ann. Biomed. Eng. 40 (2), 534-546 (2011).
- Zhan, Q., Qian, J., Li, X., He, S. A study of mesoporous silica-encapsulated gold nanorods as enhanced light scattering probes for cancer cell imaging. Nanotechnology. 21 (5), 055704(2010).
- Paviolo, C., et al. Laser exposure of gold nanorods can increase neuronal cell outgrowth. Biotechnol. Bioeng. 110 (8), 2277-2291 (2013).
- Paviolo, C., Haycock, J. W., Cadusch, P. J., McArthur, S. L., Stoddart, P. R. Laser exposure of gold nanorods can induce intracellular calcium transients. J. Biophotonics. 7 (10), 761-765 (2014).
- Yong, J., et al. Gold-nanorod-assisted near-infrared stimulation of primary auditory neurons. Adv. Healthcare Mater. , (2014).
- Eom, K., et al. Enhanced infrared neural stimulation using localized surface plasmon resonance of gold nanorods. Small. , (2014).
- Juste, J., Pastoriza-Santos, I., Liz-Marzán, L. M., Mulvaney, P. Gold nanorods: Synthesis, characterization and applications. Coordination Chemistry Reviews. (17-18), 1870-1901 (2005).
- Shang, J., Gao, X. Nanoparticle counting: towards accurate determination of the molar concentration. Chem. Soc. Rev. 43 (21), 7267-7278 (2014).
- Sharma, V., Park, K., Srinivasarao, M. Shape separation of gold nanorods using centrifugation. Proc. Natl. Acad. Sci. 106 (13), 4981-4985 (2009).
- Kaewkhaw, R., Scutt, A. M., Haycock, J. W. Anatomical site influences the differentiation of adipose-derived stem cells for schwann-cell phenotype and function. Glia. 59 (5), 734-749 (2011).
- Brown, W. G. A., Needham, K., Nayagam, B. A., Stoddart, P. R. Whole cell patch clamp for investigating the mechanisms of infrared neural stimulation. JoVE. (77), (2013).
- Cadusch, P. J., Hlaing, M. M., Wade, S. A., McArthur, S. L., Stoddart, P. R. Improved methods for fluorescence background subtraction from Raman spectra. J. Raman Spectrosc. 44 (11), 1587-1595 (2013).
- Daud, M. F. B., Pawar, K. C., Claeyssens, F., Ryan, A. J., Haycock, J. W. An aligned 3D neuronal-glial co-culture model for peripheral nerve studies. Biomaterials. 33 (25), 5901-5913 (2012).
- Jung, S., et al. Intracellular gold nanoparticles increase neuronal excitability and aggravate seizure activity in the mouse brain. PLoS ONE. 9 (3), e91360(2014).
- Salinas, K., Kereselidze, Z., DeLuna, F., Peralta, X., Santamaria, F. Transient extracellular application of gold nanostars increases hippocampal neuronal activity. J. Nanobiotechnology. 12 (1), 31(2014).
- Ebbesen, C. L., Bruus, H. Analysis of laser-induced heating in optical neuronal guidance. J. Neurosci. Meth. 209 (1), 168-177 (2012).
- Iwanaga, S., et al. Location-dependent photogeneration of calcium waves in HeLa cells. Cell Biochem. Biophys. 45 (2), 167-176 (2006).
- Huang, X., Jain, P. K., El-Sayed, I. H., El-Sayed, M. A. Determination of the minimum temperature required for selective photothermal destruction of cancer cells with the use of immunotargeted gold nanoparticles. Photochem. Photobiol. 82 (2), 412-417 (2006).
- Connor, E. E., Mwamuka, J., Gole, A., Murphy, C. J., Wyatt, M. D. Gold nanoparticles are taken up by human cells but do not cause acute cytotoxicity. Small. 1 (3), 325-327 (2005).
- Isomaa, B., Reuter, J., Djupsund, B. M. The subacute and chronic toxicity of cetyltrimethylammonium bromide (CTAB), a cationic surfactant, in the rat. Arch. Toxicol. 35 (2), 91-96 (1976).
- Juste, J., Pastoriza-Santos, I., Liz-Marzán, L., Mulvaney, P. Gold nanorods: synthesis, characterization and applications. Coord. Chem. Rev. 249 (17-18), 1870-1901 (2005).
- Dreaden, E. C., Alkilany, A. M., Huang, X., Murphy, C. J., El-Sayed, M. A. The golden age: gold nanoparticles for biomedicine. Chem. Soc. Rev. 41 (7), 2740-2779 (2012).
- Huang, X., Jain, P. K., El-Sayed, I. H., El-Sayed, M. A. Plasmonic photothermal therapy (PPTT) using gold nanoparticles. Lasers Med. Sci. 23 (3), 217-228 (2008).
- Albert, E. S., et al. TRPV4 channels mediate the infrared laser-evoked response in sensory neurons. J. Neurophysiol. 107 (12), 3227-3234 (2012).
- Garcia-Elias, A., et al. Phosphatidylinositol-4,5-biphosphate-dependent rearrangement of TRPV4 cytosolic tails enables channel activation by physiological stimuli. Proceedings of the National Academy of Sciences of the United States of America. 110 (23), 9553-9558 (2013).
- Shapiro, M. G., Homma, K., Villarreal, S., Richter, C. -P., Bezanilla, F. Infrared light excites cells by changing their electrical capacitance. Nat. Commun. 3 (736), (2012).
- Roggan, A., Friebel, M., Dörschel, K., Hahn, A., Müller, G. Optical properties of circulating human blood in the wavelength range 400-2500 nm. J. Biomed. Opt. 4 (1), 36-46 (1999).
- Byrnes, K. R., et al. Light promotes regeneration and functional recovery and alters the immune response after spinal cord injury. Lasers Surg. Med. 36 (3), 171-185 (2005).
- Wu, X., et al. 810 nm wavelength light: an effective therapy for transected or contused rat spinal cord. Lasers Surg. Med. 41 (1), 36-41 (2009).
- Grossman, N., Schneid, N., Reuveni, H., Halevy, S., Lubart, R. 780 nm low power diode laser irradiation stimulates proliferation of keratinocyte cultures: involvement of reactive oxygen species. Lasers Surg. Med. 22 (4), 212-218 (1998).
- Wong-Riley, M. T. T., et al. Photobiomodulation directly benefits primary neurons functionally inactivated by toxins - Role of cytochrome c oxidase. J. Biol. Chem. 280 (6), 4761-4771 (2005).
- Beauvoit, B., Kitai, T., Chance, B. Contribution of the mitochondrial compartment to the optical properties pf the rat liver: a theoretical and practical approach. Biophys. J. 67 (6), 2501-2510 (1994).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
