Tutaj prezentujemy protokół do badania inwazji komórek nowotworowych na żywe normalne fragmenty tkanek w trzech wymiarach. Ta technika hodowli narządowej jest stosowana głównie do testowania potencjalnie przeciwinwazyjnych leków in vitro.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test inwazji serca piskląt do badania inwazyjności komórek rakowych i aktywności potencjalnie przeciwinwazyjnych związków
W tym artykule
Podsumowanie
Streszczenie
Celem testu na sercu piskląt jest zaoferowanie odpowiedniej metody hodowli narządów do badania inwazji guza w trzech wymiarach. Test może rozróżniać komórki inwazyjne i nieinwazyjne oraz umożliwia badanie wpływu badanych związków na inwazję guza. Komórki nowotworowe - zarówno w postaci agregatów, jak i pojedynczych komórek - konfrontowane są z fragmentami embrionalnego serca pisklęcia. Po posiewie narządów w zawiesinie przez kilka dni lub tygodni, konfrontujące się kultury są utrwalane i zatopiane w parafinie w celu analizy histologicznej. Trójwymiarowa interakcja między komórkami rakowymi a normalną tkanką jest następnie rekonstruowana na podstawie seryjnych odcinków wybarwionych hematoksyliną-eozyną lub po barwieniu immunohistochemicznym w poszukiwaniu epitopów w tkance serca lub konfrontujących się komórkach rakowych. Test jest zgodny z najnowszą koncepcją, że inwazja raka jest wynikiem interakcji molekularnych między komórkami rakowymi a sąsiednimi elementami gospodarza zrębu (miofibroblastami, komórkami śródbłonka, składnikami macierzy zewnątrzkomórkowej itp.). W tym przypadku to środowisko zrębu jest oferowane komórkom rakowym jako żywy fragment tkanki. Na korzyść znaczenia testu przemawia wiele aspektów. Inwazja w teście jest zgodna z kryteriami inwazji raka: postępujące zajęcie i zastąpienie w czasie i przestrzeni tkanki gospodarza oraz inwazyjność i nieinwazyjność in vivo konfrontujących się komórek na ogół koreluje z wynikiem testu. Ponadto wzorzec inwazji komórek in vivo, zdefiniowany przez patologów, znajduje odzwierciedlenie w obrazach histologicznych w teście. Ilościowa analiza zależności struktura-aktywność (QSAR) wyników uzyskanych z licznymi potencjalnie antyinwazyjnymi organicznymi związkami kongenerowymi pozwoliła na zbadanie zależności struktura-aktywność flawonoidów i chalkonów, a znane leki przeciwprzerzutowe stosowane w klinice (np. inhibitory mikrotubul) również hamują inwazję w teście. Jednak test nie uwzględnia wkładu immunologicznego w inwazję raka.
Wprowadzenie
Inwazja jest cechą charakterystyczną nowotworów złośliwych. Aktywność ta nie tylko prowadzi do zniszczenia otaczających tkanek, ale jest również zaangażowana w tworzenie przerzutów. Ponieważ pacjenci z rakiem umierają z powodu inwazji i przerzutów, a skuteczne leczenie przeciwinwazyjne jest nadal rzadkie, opracowano testy laboratoryjne, które naśladują inwazję komórek nowotworowych. Celem testu na sercu piskląt jest zaoferowanie odpowiedniej metody hodowli narządów do badania inwazji guza w trzech wymiarach. Test pozwala na rozróżnienie komórek inwazyjnych i nieinwazyjnych oraz pozwala na badanie wpływu badanych związków na inwazję guza.
Uzasadnieniem dla użycia testu jest sama koncepcja, że nowotwory są ekosystemami, w których komórki nowotworowe nieustannie oddziałują ze swoim zrębem (komórki gospodarza i macierz zewnątrzkomórkowa), i że poprzez te interakcje molekularne inwazja jest precyzyjnie dostrojona1. Tak więc w teście komórki nowotworowe są konfrontowane z żywymi embrionalnymi fragmentami serca piskląt2, które służą nie tylko jako substraty do inwazji komórek nowotworowych, ale także jako źródło różnych typów komórek zrębu i elementów macierzy. Serce pisklęcia zawiera miocyty, fibroblasty i komórki śródbłonka, a macierz zewnątrzkomórkowa składa się z lamininy, fibronektyny i różnych rodzajów kolagenu. W ten sposób technika trójwymiarowej hodowli narządów obejmuje wiele interakcji komórkowych i molekularnych związanych z inwazją nowotworów pacjentów.
Główną zaletą testu na sercu piskląt jest implementacja efektów zrębu. Ten aspekt jest bardziej kompletny niż w innych testach inwazji in vitro, które opierają się na inwazji komórek nowotworowych do nieożywionych żeli składających się z cząsteczek błony podstawnej3 lub macierzy śródmiąższowej4. Koncepcja konfrontacji między komórkami nowotworowymi a normalną żywą tkanką gospodarza, jak stwierdzono w eksperymentach z hodowlą narządów, została wprowadzona przez kilku autorów, w tym Wolffa i Schneidera we Francji5, Easty i Easty w Wielkiej Brytanii6 oraz Schleicha w Niemczech7. Dwie techniczne zalety testu inwazji serca pisklęcia w porównaniu z cytowanymi metodami polegają na tym, że objętość fragmentów można łatwo znormalizować i że pozostają one kurczliwe, co umożliwia monitorowanie integralności funkcjonalnej podczas hodowli narządów. Ponadto preferowane są zarodki ptaków, ponieważ można je łatwo wyciąć ze sterylnej zawartości jaja. Test ma koncepcyjne podobieństwo do testu błonowego kosmówkowo-omoczniowegopiskląt 8, oferując złożone otoczenie zrębu komórek nowotworowych.
Test został z powodzeniem zastosowany do rozróżnienia między inwazyjnymi i nieinwazyjnymi wariantami komórek z tych samych ludzkich nowotworów, takich jak w rodzinach komórkowych MCF-7 (sutek)9 i HCT-8 (okrężnica)10. Technika ta jest również przydatna do testowania potencjalnie nieinwazyjnych związków11,12. Jak wyjaśniono dalej, można go wykorzystać do ustalenia relacji struktura-aktywność małych cząsteczek organicznych. Test nie uwzględnia jednak udziału komórek immunologicznych w inwazji raka. Należy podkreślić, że technika ta nie może być uważana za wysokoprzepustowy system analizy ze względu na dużą liczbę manipulacji, ograniczoną liczbę testów (maksymalnie 30 kultur) i długi czas realizacji (około 1 miesiąca).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
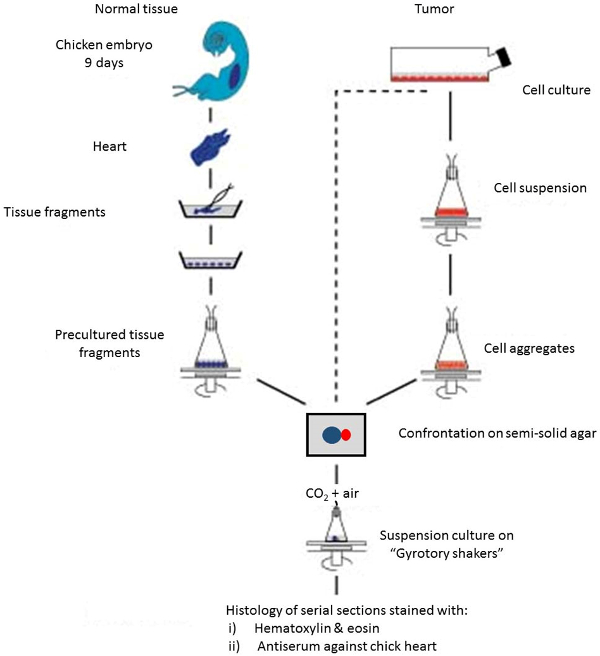
Rycina 1. Schematyczny przegląd poszczególnych etapów analizy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
1. Przygotowanie prekulturowanych fragmentów serca (PHF)
- Inkubuj zapłodnione jajo kurze w temperaturze 37 °C przez 9 dni. Zakończ inkubację w terminie, który umożliwi późniejsze przygotowanie PHF w ciągu 4 dni (np. w czwartek) i końcową konfrontację z agregatami komórek nowotworowych (np. w następny poniedziałek).
- Zdezynfekuj skorupkę 70% (v/v) etanolem w wodzie. Wszystkie kolejne czynności wykonuj w komorze do hodowli tkanek, używając sterylnych roztworów i materiałów. Otwórz skorupkę na biegunie zarodkowym za pomocą pęsety tępiej.
- Wyjmij embrion, trzymając go za szyję łyżeczką do enukleacji (Rysunek 2). Umieść embrion w szklanej płytce Petri o średnicy 5 cm zawierającej 5 mL roztworu soli Ringera.
- Otwórz skórę brzuszną klatki piersiowej, rozrywając ją za pomocą ostrej pęsety trzymanej w obu dłoniach, usuń mostek w ten sam sposób, a następnie wypreparuj serce, używając nożyczek do mikrodysekcji (irydektomii), aby odciąć główne naczynia krwionośne. Wszystkie dalsze czynności wykonuj pod makroskopem z kalibrowaną siatką okularową.
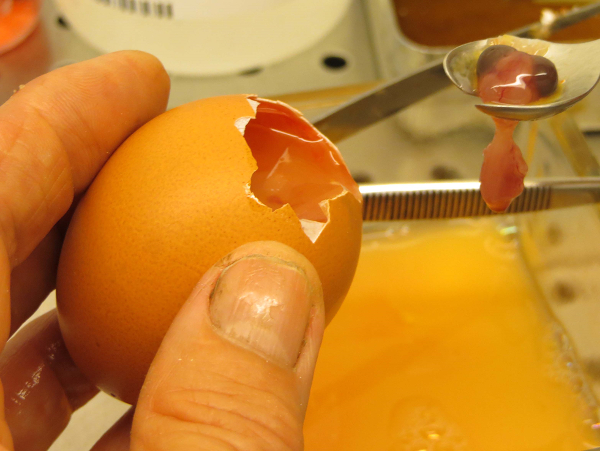
Rysunek 2. Wyjmowanie zarodka z jaja za pomocą łyżki do enukleacji. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
- Przenieś serce do szklanej szalki Petriego o średnicy 5 cm zawierającej 5 ml pożywki hodowlanej MEM-Rega 3 z 5% płodowej surowicy bydlęcej. Usuń przedsionki i związane z nimi naczynia, wycinając górną, czaszkową jedną trzecią serca za pomocą nożyczek do irydektomii mikrodyssekcyjnych. Oddziel osierdzie od komór za pomocą ostrych pincety.
- Wykonaj cięcie strzałkowe w komorach za pomocą nożyczek do irydektomii mikrodyssekcyjnych i usuń krew, delikatnie potrząsając ostrymi pincetą.
- Przenieś komory do drugiej szklanej szalki Petriego o średnicy 5 cm zawierającej 5 ml świeżej pożywki hodowlanej MEM-Rega 3 z 5% płodową surowicą bydlęcą. Pokrój komory na fragmenty o średnicy około 0,4 mm, używając nożyczek do irydektomii mikrodyssekcyjnych. Jedno serce może dostarczyć około 100 fragmentów.
Uwaga: Jedno serce może dostarczyć około 100 fragmentów - Delikatnie obracaj szalką Petriego, aby skierować wszystkie fragmenty komór do centrum szalki. Usuń wszystkie ciała obce za pomocą igły ze stali nierdzewnej, oddzielając je od fragmentów komór i przesuwając je w stronę obwodu szalki Petriego.
- Przenieś fragmenty serca szklaną pipetą Pasteura do kolby Erlenmeyera o pojemności 50 ml zawierającej od 2 do 3 ml pożywki hodowlanej (MEM-Rega 3 plus 10% v/v płodowej surowicy bydlęcej).
Uwaga: Dokładna objętość pożywki zależy od zmiennej wypukłości dna poszczególnych kolb: środek ich dna powinien być pokryty jedynie cienką warstwą cieczy. - Przepłucz kolbę(kolby) mieszaniną 5% CO2 w powietrzu przez korki i inkubuj kolbę(kolby) na wytrząsarce gyrotorycznej w temperaturze 37 °C przy 70 obrotach na minutę (rpm) przez 24 h. Celem tego etapu hodowli w zawiesinie jest uzyskanie sferoidalnych fragmentów tkanki serca nadających się do późniejszego zestawienia z agregatami komórek nowotworowych.
- Przenieś fragmenty serca wraz z pożywką hodowlaną do szalki Petriego. Za pomocą igły usuń ciała obce, fragmenty nekrotyczne (ciemne) oraz konglomeraty fragmentów serca.
- Inkubuj pozostałe fragmenty serca w kolejnej kolbie Erlenmeyera o pojemności 50 ml zawierającej 6 ml pożywki hodowlanej, zgodnie z opisem w punkcie 1.9, przez kolejne 60 h.
Uwaga: Podczas tego okresu inkubacji fragmenty staną się sferyczne. Składają się one z rdzenia mioblastów i cienkiej warstwy komórek fibroblastycznych na obwodzie. - Za pomocą makroskopu i igieł wybierz fragmenty sferoidalne wykazujące cienką, jednorodną warstwę komórek fibroblastycznych (tworzącą półprzezroczystą torebkę) i średnicę 0,4 mm. Jedno serce kurczaka dostarczy około 20 odpowiednich PHFs. Przenieś te PHFs, z których wiele będzie rytmicznie kurczyć się w 37 °C, do drugiej szalki Petriego zawierającej świeżą pożywkę hodowlaną. Te PHFs są gotowe do zestawienia z komórkami testowymi.
2. Przygotowanie i konfrontacja sferoidalnych agregatów komórek testowych
- Przygotować półpłynną pożywkę agarową: rozpuścić 100 mg agaru w 15 ml roztworu soli Ringera poprzez trzykrotne zagotowanie. Schłodzić zawiesinę do 40 °C, a następnie dodać 7,5 ml mieszaniny roztworu soli Ringera i białka jaja kurzego (1:1) oraz 7,5 ml płodowej surowicy bydlęcej.
- Przygotować w kolbie Erlenmeyera o pojemności 50 ml 6 ml zawiesiny zawierającej 1 × 10⁵ komórek testowych/ml w odpowiedniej pożywce hodowlanej. Należy to zrobić na 3 dni przed planowanym rozpoczęciem hodowli konfrontacyjnej. Inkubować kolbę na wytrząsarce gyrotorycznej w temperaturze 37 °C przy 70 rpm przez 3 dni. Przepłukać kolby mieszaniną 5% lub 10% (v/v) CO2 w powietrzu, w zależności od zastosowanego rodzaju pożywki hodowlanej.
- Obejrzeć agregaty pod makroskopem wyposażonym w skalibrowaną siatkę okularową. Wybrać (za pomocą igły) sferoidalne agregaty komórkowe o średnicy 0,2 mm.
- Za pomocą pipety Pasteura przenieść osiem wybranych PHF (średnica = 0,4 mm) w minimalnej ilości pożywki hodowlanej na zegarek embriologiczny zawierający półpłynną pożywkę agarową13. Przesunąć poszczególne PHF igłą tak, aby utworzyły okrąg. Odessać nadmiar pożywki za pomocą małego kawałka papieru filtracyjnego (patrz Rycina 3).
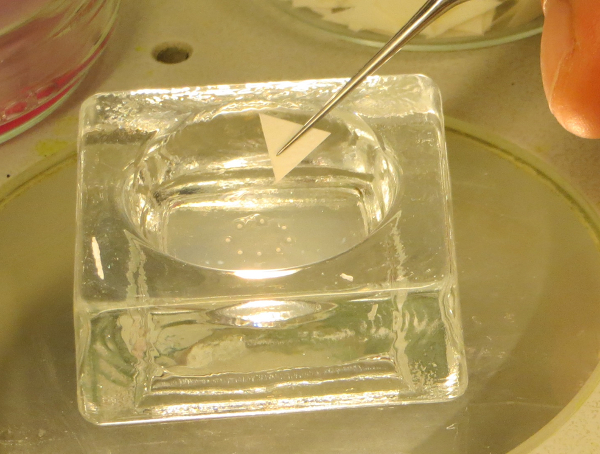
Rysunek 3. Odsysanie nadmiaru płynu wokół PHF. Osiem PHF umieszczono na półstałym agarze w szkiełku zegarkowym do badań embriologicznych, a nadmiar płynu usunięto za pomocą małego trójkątnego kawałka papieru filtracyjnego. Strzałki wskazują 8 poszczególnych PHF. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Za pomocą pipety Pasteura przenieś dziesięć wybranych sferoidalnych agregatów komórkowych (średnica = 0.2 mm) do kręgu. Odessij nadmiar pożywki. Przesuwaj każdy agregat igłą w stronę odpowiedniego PHF, aż do momentu ich wzajemnego kontaktu. Odessij nadmiar pożywki, używając małego kawałka papieru filtracyjnego.
- Uszczelnij pokrywkę szalki zegarkowej parafiną i inkubuj w temperaturze 37 °C przez 4 - 24 h, w zależności od właściwości adhezyjnych badanych komórek do PHF.
- Zanurz naprzeciwległe pary w uprzednio ogrzanej (37 °C) pożywce hodowlanej, a następnie przenieś każdą pojedynczą parę pipetą Pasteura do kolby Erlenmeyera o pojemności 5 ml zawierającej 1.5 ml pożywki hodowlanej.
- Inkubuj kolby na wytrząsarce orbitalnej w temperaturze 37 °C przy prędkości 120 rpm. Przepłucz kolby mieszaniną powietrza z 5% lub 10% (v/v) CO2, w zależności od rodzaju pożywki hodowlanej stosowanej dla badanych komórek (patrz Rysunek 4).
- Aby zapobiec zagęszczaniu się pożywek, nawilż gazy, przepuszczając je przez dwie dodatkowe kolby Erlenmeyera o pojemności 5 ml wypełnione 2 ml roztworu soli Ringera. Wymieniaj pożywkę hodowlaną co 8 dni.
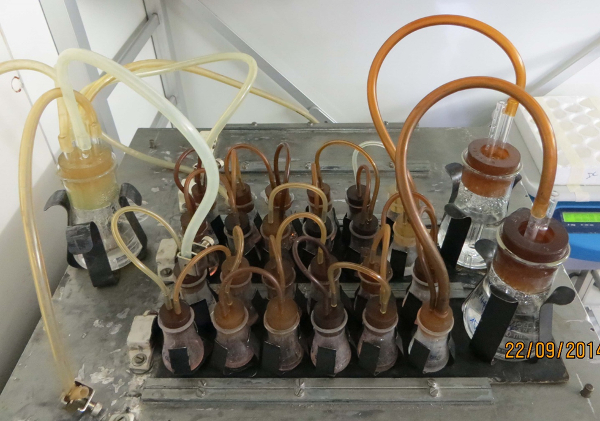
Rycina 4. Małe kolby Erlenmeyera na wytrząsarce gyrotorycznej. Kolby zawierające 1.5 ml pożywki są zamknięte korkami silikonowymi wyposażonymi w igły wlotowe i wylotowe dla gazu i są poruszane z prędkością 120 rpm w temperaturze 37 °C. Gaz jest prowadzony rurką doprowadzającą (1) do większej kolby Erlenmeyera (2) wypełnionej sterylnym roztworem soli Ringera, a następnie rozprowadzany (3 i 4) do mniejszych kolb zawierających pożywkę z poszczególnymi parami konfrontacyjnymi (5 i 6). Na koniec zużyty gaz jest zbierany w większej kolbie z pułapką wodną ze sterylną wodą (7), skąd może uciekać do powietrza (8). Na rycini przedstawiono dwa zestawy baterii hodowlanych na platformie wykonanej własnoręcznie. Kliknij tutaj, aby wyświetlić rycinię w większym rozmiarze.
3. Histologia konfrontujących kultur
- Przygotować roztwór utrwalający Bouina-Hollande’a.
- Rozpuścić 2,5 g octanu miedzi(II) (neutralnego) w 100 ml jednokrotnie destylowanej wody i powoli dodać 4,0 g kwasu pikrynowego.
- Przefiltrować roztwór przez filtr papierowy. Dodać 10 ml formaliny i 1 ml kwasu octowego. Zmieszać 9 części tego roztworu z 1 częścią nasyconego roztworu chlorku rtęci(II) w jednokrotnie destylowanej wodzie.
UWAGA: Roztwór ten zawiera kilka substancji toksycznych. Formalina jest toksyczna przy wdychaniu, w kontakcie ze skórą oraz po połknięciu. Kwas octowy jest żrący dla jamy ustnej i przewodu pokarmowego po spożyciu. Kwas pikrynowy jest alergenny i wybuchowy przy gwałtownym podgrzaniu lub uderzeniu. Chlorek rtęci(II) jest silnie żrący dla błon śluzowych i nefrotoksyczny. Podczas przygotowywania roztworu Bouina-Hollande’a należy stosować odzież ochronną i rękawice oraz pracować w dobrze wentylowanym pomieszczeniu z dala od źródeł ognia. Alternatywna procedura utrwalania opiera się na zastosowaniu 4% formaldehydu w buforze fosforanowym (PBS).
- Utrwalić poszczególne hodowle po kilku dniach lub tygodniach inkubacji w następujący sposób. Najpierw przenieść hodowle do roztworu soli Ringera na kilka sekund w celu usunięcia białek surowicy. Następnie zanurzyć w czarkach Petriego o średnicy 3 cm zawierających 3 ml roztworu utrwalającego Bouina-Hollande’a na około 2 h.
- Przepłukać hodowle trzykrotnie w 3 ml wody demineralizowanej przed inkubacją w wodzie przez 2 h, aby usunąć jak największą ilość roztworu utrwalającego. Na koniec przenieść do 3 ml 70% (v/v) etanolu w wodzie. Przechowywać hodowle w tym roztworze przez noc (O/N), jednak czas ten można wydłużyć o kilka dni.
- Ododwodnić, przenosząc sekwencyjnie do słoików zawierających 100 ml następujących roztworów: 96% (v/v) etanolu w wodzie, 100% etanolu lub 100% izopropanolu oraz 100% ksylenu, po 2 h w każdym z nich.
- Przenieść każdą hodowlę na oddzielne szkiełko nakrywkowe (z minimalną ilością ksylenu), umieścić nakrywkę na dnie kapsułki z butelki winiarskiej do zatopienia w parafinie i pokryć utrwalony materiał ciekłą parafiną w temperaturze 56 °C. Inkubować w 56 °C przez 24 h, a następnie schłodzić zatopiony materiał do temperatury pokojowej (RT).
UWAGA: Jako pochodna benzenu ksylen może być toksyczny po wdychaniu i powinien być stosowany wyłącznie w dobrze wentylowanych pomieszczeniach.
- Przenieść każdą hodowlę na oddzielne szkiełko nakrywkowe (z minimalną ilością ksylenu), umieścić nakrywkę na dnie kapsułki z butelki winiarskiej do zatopienia w parafinie i pokryć utrwalony materiał ciekłą parafiną w temperaturze 56 °C. Inkubować w 56 °C przez 24 h, a następnie schłodzić zatopiony materiał do temperatury pokojowej (RT).
- Zdjąć kapsułkę z butelki winiarskiej oraz szkiełko nakrywkowe i wyciąć blok parafiny zawierający utrwaloną hodowlę.
- Wyciąć za pomocą mikrotomu14 przekroje parafiniowe o grubości 8 µm z całej konfrontującej pary i zebrać wszystkie przekroje na trzech naprzemiennie używanych szkiełkach mikroskopowych, które zostały uprzednio potraktowane roztworem kleju do tkanek jako środkiem przylepnym. Należy unikać używania białka jaja jako środka przylepnego, ponieważ może ono zakłócić immunobarwienie.
Uwaga: Przygotowanie szkiełek mikroskopowych polega na naniosieniu za pomocą pipety Pasteura 1 małej kropli roztworu kleju do tkanek i 3 małych kropli wody demineralizowanej, a następnie wymieszaniu ich tak, aby pokryły szkiełko. - Usunąć parafinę z pierwszego szkiełka, zanurzając je dwukrotnie w słoiku zawierającym 100 ml 100% ksylenu przez 10 min.
- Rehydratować szkiełka poprzez zanurzenie na 10 s w słoikach zawierających 100 ml następujących roztworów: ksylen/etanol (1:1), 100% etanol, 96% (v/v) etanol w wodzie, 70% (v/v) etanol w wodzie, a na koniec w wodzie demineralizowanej.
- Rozpuścić kryształy chlorku rtęci(II) poprzez zanurzenie w słoiku zawierającym 100 ml 0,5% (w/v) jodyny w 96% (v/v) etanolu w wodzie przez 2 min.
- Oczyścić przekroje w słoiku zawierającym 100 ml 5% (w/v) tiosiarczanu sodu w wodzie przez 10 s. Następnie dokładnie wypłukać szkiełka w wodzie destylowanej.
- Inkubować szkiełka w słoiku zawierającym 100 ml hematoksyliny Harrisa przez 2 min, zanurzyć krótko w 0,1 M HCl, a następnie płukać pod bieżącą wodą przez 10 min.
- Inkubować w słoiku zawierającym 100 ml 0,1% (w/v) eozyny w wodzie przez 1 min.
- Ododwodnić poprzez krótkie zanurzanie w słoikach zawierających 100 ml następującej serii roztworów: wody demineralizowanej, 70% (v/v) etanolu, 96% (v/v) etanolu, dwukrotnie w 100% etanolu, ksylen-etanol (1:1) i na koniec w 100% ksylenie.
- Zamontować szkiełka za pomocą medium montażowego, nanosząc 2 oddzielne krople medium na szkiełka, pozwolić im rozpłynąć się poprzez nałożenie szkiełka nakrywkowego i pozostawić do utwardzenia w RT przez 24 h.
4. Immunohistochemia
- Przygotować roztwór soli buforowanej Trisem (TBS). Rozpuścić 6,0 g tris-(hydroksymetylo)-aminometanu (Tris base) i 45,0 g NaCl w 4,5 L wody zdemineralizowanej. Dostosować pH do 7,6 za pomocą 1 M HCl (około 42 ml). Dopełnić wodą destylowaną do objętości 5 L.
- Przygotować bufor Tris-HCl. Rozpuścić 60 g Tris base w 800 ml wody zdemineralizowanej. Dostosować pH do 7,6 za pomocą 6 M HCl (około 65 ml). Dopełnić wodą destylowaną do objętości 1 L. Przed użyciem rozcieńczyć 10-krotnie wodą destylowaną.
- Przygotować bufor Tris-BSA 0,1%. Rozpuścić 12,1 g Tris base i 45,0 g NaCl w 4,5 L wody zdemineralizowanej. Dostosować pH do 8,2 za pomocą 1 M HCl (około 42 ml). Dodać 5,0 g albuminy surowicy bydlęcej (BSA) i 6,5 g NaN3. Dopełnić wodą zdemineralizowaną do objętości 5 L.
OSTRZEŻENIE: NaN3 jest produktem silnie toksycznym. Kontakt z kwasami uwalnia bardzo toksyczne gazy. Należy stosować rękawice i za wszelką cenę unikać spożycia. NaN3 tworzy bardzo wrażliwe związki wybuchowe z miedzią, ołowiem i innymi metalami. Zlewy należy płukać obfitymi ilościami wody. Alternatywnym konserwantem jest 0,01% tiomersalu. - Postępować zgodnie z punktami od 3.2 do 3.10.
- Zanurzyć preparaty w TBS lub buforze Tris–0,1% BSA, a następnie odsączyć nadmiar płynu wokół skrawków za pomocą ręcznika papierowego.
- Nanieść 150 µl normalnego surowicy koziej rozcieńczonej 1:20 w TBS lub w 5% (w/v) BSA w buforze Tris–0,1% (w/v) BSA na 30 min w komorze o wysokiej wilgotności (zamknięte pudełko do współinkubacji preparatów z otwartym naczyniem z wodą, zapewniającym wysoką wilgotność wewnątrz). Następnie usunąć nadmiar płynu ręcznikiem papierowym.
- Nanieść 150 µl pierwszego przeciwciała rozcieńczonego w buforze Tris–0,1% (w/v) BSA uzupełnionym o 1% (v/v) normalnej surowicy koziej na co najmniej 2 h w komorze o wysokiej wilgotności. Optymalne rozcieńczenie pierwszego przeciwciała należy wyznaczyć empirycznie.
Uwaga: Immunohistochemię można stosować do wykrywania antygenów serca kurczaka, ale przy użyciu specyficznych przeciwciał technika opisana dla antygenów serca kurczaka może być zastosowana również do innych antygenów (takich jak zielone białko fluorescencyjne)15. - Przemyć preparaty dwukrotnie w buforze Tris–0,1% w/v BSA na stole kołyszącym przez 5–10 min.
- Usunąć nadmiar płynu ręcznikiem papierowym i nanieść 150 µl nadmiaru przeciwciała koziego przeciwko króliczym (np., 1:20 w TBS) na co najmniej 1 h w komorze o wysokiej wilgotności.
- Przemyć dwukrotnie w TBS na stole kołyszącym przez 5–10 min.
- Usunąć nadmiar płynu ręcznikiem papierowym. Nanieść kompleks peroksydaza-antyperoksydaza rozcieńczony 1:250 w TBS uzupełnionym o 1% (v/v) normalnej surowicy koziej na co najmniej 1 h w komorze o wysokiej wilgotności. Rozcieńczenie kompleksu zależy od partii.
- Przemyć preparaty w TBS i przenieść do buforu Tris–HCl o pH 7,6.
- Przenieść preparaty do buforu Tris–HCl zawierającego 0,25 g/L diaminobenzydyny i 0,01% (v/v) H2O2 na kilka minut. Przerwać inkubację, gdy serce kurczaka zostanie zabarwione. Regularnie sprawdzać pod mikroskopem.
- Przenieść preparaty do buforu Tris–HCl na 10 min, a następnie do wody destylowanej.
- Postępować zgodnie z punktami 3.13 i 3.14.
Uwaga: W przypadku antygenów, które są łatwo niszczone podczas fiksacji, alternatywą dla analizy immunohistochemicznej może być kriosekcjonowanie kultur. Jest to opisane w następujących krokach protokołu: - Przemyć żywe kultury 3 ml roztworu soli Ringera, aby usunąć białka surowicy.
- Dodać jedną kroplę medium do zatapiania do schłodzonego (−16 °C) uchwytu na próbki w kriomikrotomie. Przenieść hodowaną tkankę z krawędzi szkiełka nakrywkowe na wierzch tej kropli, zanim całkowicie zamarznie.
- Schłodzić kulturę do −16 °C, wykonać skrawki mrożone o grubości 6 µm i zebrać je na szkiełkach pokrytych żelatyną.
- Utrwalić preparaty w acetonie w 4 °C przez 10 min przed przechowywaniem w 4 °C.
- Postępować zgodnie z punktami od 4.5 do 4.15.
5. Ocena wyników analizy
Uwaga: W niniejszym teście inwazję definiuje się jako postępujące zajmowanie PHF przez naprzeciwległe komórki testowe. Analiza mikroskopowa wszystkich kolejnych przekrojów z kultury naprzeciwległej pozwala na trójwymiarową rekonstrukcję interakcji między agregatami komórek testowych a PHF.
- Obserwuj różne wzorce interakcji i oceniaj je według następującej skali (patrz Rysunek 5).
Stopień 0: Obserwowany jest tylko PHF. Nie stwierdzono obecności komórek konfrontacyjnych.
Stopień I: Konfrontacyjne komórki testowe przylegają do PHF, ale nie zajmują tkanki serca, nawet jej zewnętrznych warstw komórek fibroblastycznych.
Stopień IIa: Zajęcie PHF ogranicza się do zewnętrznych warstw komórek podobnych do fibroblastów i mioblastów.
Stopień IIb: PHF otacza agregaty komórek, ale nie ma oznak ich zajęcia.
Stopień III: Komórki konfrontacyjne zajęły PHF, ale pozostawiły nienaruszone ponad połowę pierwotnej ilości tkanki serca.
Stopień IV: Komórki konfrontacyjne zajęły ponad połowę pierwotnej objętości PHF.
Uwaga: Stopnie I i II obserwuje się w przypadku nieinwazyjnych populacji komórek, natomiast stopnie III i IV są typowe dla inwazji. Aby ocenić progresję w różnych ramach czasowych, należy przeprowadzić analizę histologiczną kultur konfrontacyjnych utrwalonych po różnych okresach inkubacji.
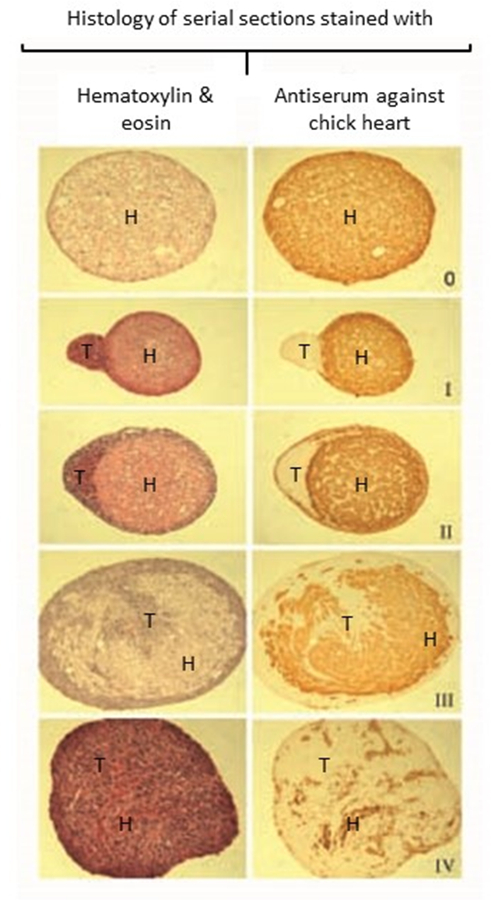
Rysunek 5. Przykłady interakcji między naprzeciwległymi komórkami nowotworowymi a PHF. Przekroje histologiczne kultur naprzeciwległych barwionych hematoksyliną i eozyną (panele lewe) lub immunohistochemicznie przeciwciałem przeciwko sercu kurczęcia (panele prawe). Stopnie interakcji zdefiniowano w tekście protokołu. (H: tkanka serca, T: komórki nowotworowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
6. Ocena toksyczności po zastosowaniu leków
- Przenieść konfrontujące kultury w minimalnej objętości do 24-dołkowych wielopłytkach do hodowli tkankowych za pomocą pipety Pasteura.
- Przemyć kultury, dodając 500 µl pożywki hodowlanej bez leku, a następnie odświeżyć ją po 6 hr.
- Codziennie kontrolować wszystkie dołki pod mikroskopem odwróconym (obiektyw 40X) w celu sprawdzenia wzrostu komórek z eksplantów. Podzielić liczbę kultur wykazujących wzrost przez całkowitą liczbę eksplantowanych kultur, aby uzyskać wskaźnik przeżycia kultur konfrontujących. Porównać wyniki kultur traktowanych lekiem z kulturami traktowanymi rozpuszczalnikiem.
Uwaga: Jako techniki komplementarne do testu z eksplantami w celu oceny toksyczności zaleca się zastosowanie immunohistochemii Ki67 (do oceny proliferacji komórek) oraz testu TUNEL (do oceny apoptozy).
7. Ocena wzrostu kultur w układzie konfrontacyjnym
- Wykonaj czarno-białe fotografie kultur bezpośrednio przed utrwaleniem, używając mikroskopu wyposażonego w cyfrową kamerę fotograficzną (obiektyw 50X)
- Zmierz w mm większą ( a) i mniejszą ( b) średnicę kultury, uwzględniając powiększenie.
- Oblicz przybliżoną objętość ( V) w mm3 za pomocą wzoru16
- V = 0.4 x a x b 2
- Oblicz przyrost kultury, porównując tę końcową objętość z sumą objętości PHF i agregatu komórkowego na początku konfrontacji.
Uwaga: Ponieważ pojedyncze PHF mają tendencję do zmniejszania swojej objętości podczas hodowli, wzrost konfrontujących się par jest zależny od komórek nowotworowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Przekroje histologiczne przedstawione na Ryc. 5 ukazują końcowy wynik szeregu udanych analiz. Prawidłowa histologia kultur wskazuje na żywotność komórek i pozwala na interpretację interakcji między komórkami nowotworowymi a tkanką prawidłową. Ponadto nie stwierdzono reakcji immunologicznej tkanki prawidłowej, co potwierdza odpowiedni wiek wykorzystanych embrionów kurcząt, np. przed wykształceniem się układu odrzutów immunologicznych. Nie widocznych jest bakterii, co wskazuje na brak (makroskopijnego) zanieczys...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Podczas przygotowywania PHF fragmenty nie mogą pozostawać w zawiesinie, ale przylegać do ścianki naczynia; Można temu zaradzić, zwiększając objętość pożywki hodowlanej. Jeśli liczba PHF jest zbyt mała, a ich rozmiar jest zbyt duży, należy zmniejszyć objętość pożywki. Niepowodzenie agregacji komórek testowych może być spowodowane wahaniami temperatury lub infekcją mikrobiologiczną. Alternatywnie, niezdolność do agregacji może być nieodłączną cechą komórek. Podczas przyłączania agregatów do PHF, słaba przyczepność może zos...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Dziękujemy Marleen De Meulemeester za zademonstrowanie techniki testowej w filmie wideo. B. I. R. jest doktorantem Fundacji Badawczej – Flandria (FWO – Vlaanderen). L.M.M. jest stypendystką Emmanuela van der Schuerena od Flamandzkiej Ligi Walki z Rakiem (Vlaamse Liga tegen Kanker).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Roztwór soli Ringera | Braun | CEO123 | |
| Bacto-agar | Becton Dickinson | 214010 | |
| Tris-(hydroksymetylo)-aminometaan Analar | VWR | 103157P | |
| BSA : albumina z surowicy bydlęcej, frakt cohna V. | Sigma | A4503-500G | |
| MEM-Rega 3 | Technologie życia | ||
| Wytrząsarki żyroskopowe | New Brunswick Scientific | G10 i G33 | |
| Kolby Erlenmeyera 50 ml | Novolab | 92717 | |
| Szklane szalki Petriego | Novolab | 68516 | |
| Nożyczki do irydektomii | Rumex | 11-0625 | |
| Makroskop ze skalibrowaną siatką okularową | Dziki | 157702 | |
| Wosk parafinowy | Międzynarodowe produkty medyczne | 8599956 | |
| Eosin Y | Sigma | 230251-25g | |
| Hematoksylina Harrisa | Sigma | HHS32-1L | |
| Żywica krystaliczna (Tissue-Tek) | Sakura | 4494 | |
| Aparat do topienia parafiny | GFL | 1052 | |
| Mikrotom do sekcji parafiny | Reichert | ||
| Stppery do kolb Erlemeyera z wlotem i wylotem gazu | Novolab | 2602421 i 260243 | |
| Diaminobenzydyna | Sigma | D8001 | |
| Stół bujany REAX | Heidolph | 54131 | |
| 24-dołkowe naczynia na chusteczki | VWR | NUNC142475 | |
| Łyżka do enukleacji okulistycznej | Rumex | 16-060 | |
| Ostre kleszcze | Rumex | 4-111T | |
| Kleszcze | Nickel-Electro LTD | 7112 | |
| Kolby Erlenmeyera 5 ml | Novolab | 211901 | |
| Szkiełka mikroskopowe umyte i odtłuszczone | Międzynarodowe produkty medyczne | 8613908 |
Bibliografia
- Mareel, M. M., Bracke, M. E., Van Roy, F. M., de Baetselier, P. Molecular mechanisms of cancer invasion. Encyclopedia of Cancer. JR, B. ertino 2, Academic Press. San Diego. 1072-1083 (1997).
- Mareel, M., Kint, J., Meyvisch, C. Methods of study of the invasion of malignant C3H mouse fibroblasts into embryonic chick heart in vitro. Virchows Arch. B. Cell Pathol. Incl. Mol. Pathol. 30 (1), 95-111 (1979).
- Albini, A., Noonan, D. M. The ‘chemoinvasion’ assay, 25 years and still going strong: the use of reconstituted basement membranes to study cell invasion and angiogenesis. Curr. Opin. Cell Biol. 22 (5), 677-689 (2010).
- De Wever, O., et al. Single cell and spheroid collagen type I invasion assay. Methods Mol. Biol. 1070, 12-35 (2014).
- Wolff, E., Schneider, N. La transplantation prolongée d’un sarcome de souris sur des organes embryonnaires de poulet cultivés in vitro. C.R. Seances Soc. Biol. Fil. 151 (7), 1291-1292 (1957).
- Easty, G. C., Easty, D. M. An organ culture system for the examination of tumor invasion. Nature. 199, 1104-1105 (1963).
- Schleich, A. B., Frick, M., Mayer, A. Patterns of invasive growth in vitro. Human decidua graviditatis confronted with established human cell lines and primary human explants. J. Natl. Cancer Inst. 56 (2), 221-237 (1976).
- Sys, G. M. L., et al. The In ovo CAM-assay as a Xenograftodel for Sarcoma. J. Vis. Exp. (77), e50522(2013).
- Bracke, M. E., Van Larebeke, N. A., Vyncke, B. M., Mareel, M. M. Retinoic acid modulates both invasion and plasma membrane ruffling of MCF-7 human mammary carcinoma cells in vitro. Br. J. Cancer. 63 (6), 867-872 (1991).
- Vermeulen, S. J., et al. Transition from the noninvasive to the invasive phenotype and loss of alpha-catenin in human colon cancer cells. Cancer Res. 55 (20), 4722-4728 (1995).
- Parmar, V. S., et al. Anti-invasive activity of 3,7-dimethoxyflavone in vitro. J. Pharma. Sci. 83 (9), 1217-1221 (1994).
- Parmar, V. S., et al. Anti-invasive activity of alkaloids and polyphenolics in vitro. Bioorg. Med. Chem. 5 (8), 1609-1619 (1997).
- Gaillard, P. J. Organ culture technique using embryologic watch glasses. Methods in Medical Research. MB, V. isser 2, Year Book Publishers. Chicago. 241-24 (1951).
- Romeis, B. Das mikrotom. Mikroskopische Technik. 15 Verb. Aufl. Kapitel. 7, München: Leibniz. 114-120 (1948).
- Van Marck, V., et al. P-cadherin promotes cell-cell adhesion and counteracts invasion in human melanoma. Cancer Res. 65 (19), 8774-8783 (2005).
- Attia, M. A., Weiss, D. W. Immunology of spontaneous mammary carcinomas in mice. V. Acquired tumor resistance and enhancement in strain A mice infected with mammary tumor virus. Cancer Res. 26 (8), 1787-1800 (1966).
- Katritzky, A. R., et al. QSAR modeling of anti-invasive activity of organic compounds using structural descriptors. Bioorg. Med. Chem. 14 (20), 6933-6939 (2006).
- McKinnell, R. G., Bruyneel, E. A., Mareel, M. M., Seppanen, E. D., Mekala, P. R. Invasion in vitro by explants of Lucke renal carcinoma cocultered with normal tissue is temperature dependent. Clin. Exp. Metastasis. 4 (4), 237-243 (1986).
- Wanson, J. C., de Ridder, L., Mosselmans, R. Invasion of hyperplastic nodule cells from diethylnitrosamine treated cells. Cancer Res. 41 (12 Pt 1), 5162-5175 (1981).
- Mareel, M. M., et al. Effect of temperature on invasion of MO4 mouse fibrosarcoma cells in organ culture. Clin. Exp. Metastasis. 2 (2), 107-125 (1984).
- Laerum, O. D., Steinsvag, S., Bjerkvig, R. Cell and tissue culture of the central nervous system: recent developments and current applications. Acta Neurol. Scand. 72 (6), 529-549 (1985).
- Schroyens, W., Mareel, M. M., Dragonetti, C. In vitro invasiveness of human bladder cancer from cell lines and biopsy specimens. Clin. Exp. Metastasis. 1 (2), 153-162 (1983).
- Mareel, M. M., De Bruyne, G. K., Vandesande, F., Dragonetti, C. Immunohistochemical study of embryonic chick heart invaded by malignant cells in three dimensional culture. Invasion Metastasis. 1 (3), 195-204 (1981).
- Bjerkvig, R., Laerum, O. D., Mella, O. Glioma cell interactions with fetal rat brain aggregates in vitro and with brain tissue in vivo. Cancer Res. 46 (8), 4071-4079 (1986).
- Bracke, M. E., et al. Confrontation of an invasive (MO4) and a non-invasive (MDCK) cell line with embryonic chick heart fragments in serum-free culture media. In Vitro Cell Dev. Biol. 22 (9), 508-514 (1986).
- Mareel, M. M., Bracke, M. E., Storme, G. A. Mechanisms of tumor spread: a brief overview. Cancer Campaign. 9: The Cancer Patient. Grundmann, E. , Gustav Fisher Verlag. Stuttgart and New York. 59-64 (1985).
- De Neve, W. J., Storme, G. A., De Bruyne, G. K., Mareel, M. M. An image analysis system for the quantification of invasion in vitro. Clin. Exp. Metast. 3 (2), 87-101 (1985).
- Smolle, J., et al. Quantitative evaluation of melanoma cell invasion in three-dimensional confrontation cultures in vitro using automated image analysis. J. Invest. Dermatol. 94 (1), 114-119 (1990).
- Bracke, M. E., et al. flavonoid effect on tumor invasion and metastasis. Food Technol. 48 (11), 121-124 (1994).
- Bracke, M. E., et al. The influence of tangeretin on tamoxifen’s therapeutic benefit in mammary cancer. J. Natl. Cancer Inst. 91 (4), 354-359 (1999).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
