Ten protokół opisuje, jak wygenerować linię komórkową Drosophila S2, która jest wrażliwa na małocząsteczkowe inhibitory kinezyny-5. Przedstawiono również zastosowanie tych komórek w teście korekcji błędów opartym na komórkach.
Artykuł metodologiczny
Generowanie "humanizowanej" linii komórkowej Drosophila S2 wrażliwej na farmakologiczne hamowanie kinezyny-5
W tym artykule
Podsumowanie
Streszczenie
Kinetochores to duże struktury oparte na białkach, które gromadzą się na centromerach podczas podziału komórki i łączą chromosomy z mikrotubulami wrzecionowatymi. Prawidłowa dystrybucja materiału genetycznego wymaga, aby kinetochory siostrzane na każdym chromosomie stały się dwukierunkowe poprzez przyłączanie się do mikrotubul z przeciwległych biegunów wrzeciona przed przejściem do anafazy. Jednak błędne, niedwukierunkowe stany przyłączenia są powszechne i istnieją szlaki komórkowe, które zarówno wykrywają, jak i korygują takie przyłączenia podczas podziału komórki. Proces, w którym destabilizowane są nieprawidłowe interakcje kinetochor-mikrotubule, jest określany jako korekcja błędów. Aby zbadać korekcję błędów w żywych komórkach, nieprawidłowe mocowania są celowo generowane poprzez chemiczne hamowanie silnika kinezyny-5, co prowadzi do montażu wrzeciona monopolarnego, a przejście od złej orientacji do dwuorientacji obserwuje się po wypłukaniu leku. Duża liczba chromosomów w wielu modelowych typach komórek hodowli tkankowej stanowi wyzwanie w obserwacji poszczególnych zdarzeń korekcji błędów. Drosophila Komórki S2 są lepszymi obiektami do takich badań, ponieważ posiadają zaledwie 4 pary chromosomów. Jednak małocząsteczkowe inhibitory kinezyny-5 są nieskuteczne przeciwko Drosophila kinesin-5 (Klp61F). Tutaj opisujemy, jak zbudować linię komórkową Drosophila, która skutecznie zastępuje Klp61F ludzką kinezyną-5, co sprawia, że komórki są wrażliwe na farmakologiczne hamowanie motoryczne i nadają się do zastosowania w teście korekcji błędów na bazie komórek.
Wprowadzenie
Jednakowa segregacja genomu podczas podziału komórki wymaga prawidłowych interakcji między replikowanym DNA a mikrotubulami wrzeciona. Mikrotubule fizycznie oddziałują z chromosomami poprzez zestaw białek, który gromadzi się w centromerach znanych jako kinetochor1. Prawidłowa dystrybucja chromosomów wymaga, aby kinetochory siostrzane były dwukierunkowe, w których każda siostra jest związana z mikrotubulami pochodzącymi z przeciwległych biegunów wrzeciona. Przyczepy mikrotubul kinetochorowych (kt-MT), które nie są w konformacji dwukierunkowej, są szybko i skutecznie destabilizowane, aby zapewnić możliwość ustanowienia dwuorientacji w procesie znanym jako korekcja błędów. Test korekcji błędów, który został wcześniej opracowany w komórkachssaków5, wymaga montażu wrzecion monopolarnych przy użyciu odwracalnych inhibitorów małych cząsteczek przeciwko Eg5 (kinezynie-5). Leczenie farmakologiczne generuje wiele błędnych przyczepów syntelicznych, w których oba siostrzane kinetochory przyczepiają się do tego samego bieguna wrzeciona. Późniejsze wypłukanie leku pozwala na wizualizację procesu korekcji błędów. Test korekcji błędów można przeprowadzić w obecności inhibitorów małych cząsteczek lub knockdownów w celu zbadania udziału białek kandydujących w korygowaniu błędnych przyłączeń kt-MT.
Możliwość wizualizacji korekcji błędów w żywych komórkach jest potężnym narzędziem do dalszego zrozumienia mechanizmu molekularnego związanego z tym złożonym procesem. Jednak duża liczba chromosomów obecnych w większości linii komórkowych stanowi wyzwanie w obserwacji poszczególnych przyłączeń kt-MT. Drosophila Komórki S2 byłyby idealne do zastosowania testu korekcji błędów, ponieważ zawierają zaledwie 4 chromosomy6, ale małocząsteczkowe inhibitory kinezyny 5, takie jak S-trytylo-L-cysteina (STLC) i monoastrol7-9, nie wpływają na montaż wrzeciona ani funkcję motoryczną kinezyny-5 w komórkach Drosophila. W związku z tym wygenerowaliśmy linię komórkową Drosophila S2 wykazującą ekspresję ludzkiej kinezyny-5 pod indukowalnym promotorem, który jest wrażliwy na inhibitory kinezyny-5. Protokół ten opisuje, w jaki sposób zniszczyć endogenny homolog kinezyny-5 Drosophila, Klp61F, i użyć tej linii komórkowej w teście korekcji błędów na bazie komórek.
Protokół
1. Transfekcja komórek S2
- Z uprzednio wyhodowanej kolby o długości 25cm2 dodać komórki S2 wykazujące ekspresję GFP-α-tubuliny10 do końcowej objętości 2 ml przy 100% zbiegu i pozostawić je do częściowego przylegania do dna naczynia do hodowli tkankowej o średnicy 35 mm przez około 1 godzinę.
- Wyjmij nośnik z naczynia. Transfekcję 2 μg konstruktu Eg5-mCherry11 należy przeprowadzić za pomocą 1 ml pożywki Schneidera uzupełnionej 10% FBS (zwanej dalej pożywką Schneidera) i odczynnikiem do transfekcji, zgodnie z protokołem producenta. Uszczelnić naczynie preparatem Parafilm i inkubować komórki w temperaturze 25 °C przez 16-18 godzin.
- Dodać 1 ml pożywki Schneidera. Umieścić komórki z powrotem w inkubatorze o temperaturze 25 °C.
- W 3 dniu po transfekcji przenieść 500 μl transfekowanych komórek do nowego naczynia do hodowli tkankowej o średnicy 35 mm zawierającego 1,5 ml pożywki Schneidera w celu indukcji testowej. Wywołać ekspresję Eg5-mCherry poprzez dodanie CuSO4 do końcowego stężenia 500 μM. Zamknąć szalkę w Parafilm i inkubować w temperaturze 25 °C O/N.
- Aby przygotować szkiełka nakrywkowe pokryte konkanawaliną A, należy pobrać pipetą wystarczającą objętość roztworu konkanawaliny A (0,5 mg/ml rozpuszczonego wH2O), aby pokryć szkiełko nakrywkowe przemyte kwasem, usunąć nadmiar i pozostawić szkiełko nakrywkowe do wyschnięcia na powietrzu.
- Umieścić szkiełko nakrywkowe o wymiarach 22 mm x 22 mm pokryte konkanawaliną A w czystym naczyniu do hodowli tkankowej o średnicy 35 mm, a następnie zasiać 500 μl przy 100% zbiegu indukowanych komórek na szkiełku nakrywkowym i pozostawić komórki do przylegania przez 1 godzinę w temperaturze pokojowej.
- Aby sprawdzić ekspresję Eg5-mCherry, złóż szkiełko nakrywkowe w komorze różanej (lub odpowiednim naczyniu do obrazowania) z pożywką do obrazowania w RT na mikroskopie fluorescencyjnym. Użyj odpowiednich źródeł światła i zestawów filtrów, aby uwidocznić komórki. Na przykład mikroskop użyty w tym badaniu ma źródło białego światła LED oraz kostki filtrujące EGFP (FITC/Cy2) i DSRed (TRITC/Cy3). Eg5-mCherry lokalizuje się w mikrotubulach i jest wzbogacany w pobliżu biegunów wrzeciona.
- Po upewnieniu się, że komórki wykazują ekspresję zarówno Eg5-mCherry, jak i tubuliny GFP-α, przenieś pozostałą część transfekowanych, nieindukowanych komórek do kolby do hodowli tkankowej o długości 25cm2 zawierającej 4 ml pożywki Schneidera.
- Dodać Blasticydynę S HCL w końcowym stężeniu 25 μg/ml do kolby transfekowanych komórek i kontynuować rozszczepianie w obecności 25 μg/ml Blasticidin S HCl, aż do ustania śmierci komórki, upewniając się, że okresowo sprawdzasz ekspresję Eg5-mCherry. Inkubować linie komórkowe w inkubatorze w temperaturze 25 °C.
UWAGA: Odsetek komórek wykazujących ekspresję Eg5-mCherry wzrasta z czasem. - Gdy komórki zostaną stabilnie transfekowane, kontynuuj dzielenie pod nieobecność leku i zamroź12 komórek do wykorzystania w przyszłości.
2. Interferencja RNA
- PCR amplifikuje region Klp61F o długości ~ 500 pz z cDNA (LD15641) za pomocą startera z dodaną sekwencją promotora T7 (sekwencja podana w wykazie materiałów), która ma być użyta jako matryca do syntezy dsRNA.
- Przygotuj cztery reakcje PCR, każda po 50 μl, zawierające 100 ng matrycy DNA, 25 μM każdego startera, odpowiedni bufor i polimerazę. Ustaw protokół PCR na termocyklerze zgodnie z protokołem producenta polimerazy.
- Zebrać i oczyścić cztery reakcje PCR za pomocą zestawu do czyszczenia PCR zgodnie z protokołem producenta. Przechowywać czysty szablon w temperaturze -20 °C.
- Przygotuj dwuniciowy RNA (dsRNA) z matrycy za pomocą zestawu do transkrypcji RNA T7, postępując zgodnie z instrukcjami producenta. Spodziewaj się stężenia dsRNA ~5-15 mg/ml. Przechowywać dsRNA w temperaturze -20 °C.
- Aby zniszczyć Klp61F za pomocą dsRNA, pozwól komórkom S2 wyrażającym Eg5-mCherry przy 25% konfluencji częściowo przylegać do dna 35-milimetrowej płytki do hodowli tkankowej przez 1 godzinę.
- Usunąć pożywkę z szalek i dodać 5 μg dsRNA przeciwko Klp61F (Drosophila kinesin-5) rozcieńczonej w 1 ml pożywki Schneidera bez surowicy.
- Inkubować w temperaturze pokojowej przez 1 godzinę, a następnie dodać 1 ml pożywki Schneidera z 10% FBS. Inkubować komórki w temperaturze 25 °C.
- 24 godziny po traktowaniu dsRNA indukować ekspresję Eg5-mCherry poprzez dodanie CuSO4 do końcowego stężenia 500 μM. Inkubować komórki w temperaturze 25 °C przez kolejne 24 godziny.
3. Obrazowanie żywych komórek
- Umieścić szkiełko nakrywkowe o wymiarach 22 mm x 22 mm pokryte konkanawaliną A w czystym naczyniu do hodowli tkankowych o średnicy 35 mm.
- Wysiewaj 500 μl komórek, które zostały potraktowane dsRNA i indukowane O/N na szkiełku nakrywkowym pokrytym konkanawaliną A i pozwól im przylegać przez około 1 godzinę.
- Zmontuj szkiełko nakrywkowe w komorze różanej (lub odpowiednim naczyniu) w celu obrazowania.
- Znajdź komórki mitotyczne wykazujące ekspresję zarówno Eg5-mCherry, jak i GFP-α-tubuliny.
UWAGA: Komórki mitotyczne eksprymujące tylko tubulinę GFP-α powinny mieć wrzeciona monopolarne, ponieważ Klp61F, który jest wymagany do dwubiegunowości wrzeciona, jest strącony10,13. - Zbierz obrazy poklatkowe wrzecion dwubiegunowych (np. 1 klatka na minutę) w komórkach wyrażających zarówno Eg5-mCherry, jak i GFP-α-tubulinę.
- Podczas obrazowania wyjmij pożywkę z komory rozetowej i zastąp ją pożywką Schneidera zawierającą 1 μM STLC w ciągu 3 kolejnych wymian mediów (łącznie ~5 ml) do komory, aby uwidocznić zapadanie się wrzeciona.
- Aby wypłukać lek i odwrócić zapadanie się wrzeciona, ostrożnie wyjmij pożywkę zawierającą STLC z komory różowej i umyj w pożywce Schneidera 4x (łącznie 6-8 ml) przed ponownym napełnieniem komory różowej po raz ostatni świeżym podłożem. Kontynuuj obrazowanie.
4. Test korekcji błędów
- Umieścić szkiełka nakrywkowe o wymiarach 22 mm x 22 mm pokryte konkanawaliną A w czystych szalkach do hodowli tkankowych o średnicy 35 mm.
- Wysiewaj 500 μl komórek, które zostały potraktowane dsRNA Klp61F, na szkiełko nakrywkowe pokryte konkanawaliną A i pozwól im przylegać.
- Po przyklejeniu komórek dodaj 1,5 ml pożywki Schneidera do każdej pożywki, aby uzyskać ostateczną objętość do 2 ml.
- Aby zatrzymać komórki w mitozie, dodaj MG132 do końcowego stężenia 10 μM do każdej z szalek i inkubuj przez 1 godzinę.
- Dodać 1 μM STLC i inkubować przez 1 godzinę, aby umożliwić powstanie monopoli.
- Umyj STLC, spłukując szkiełka nakrywkowe 3x za każdym razem 2 ml świeżej pożywki Schneidera.
- Inkubuj szkiełka nakrywkowe z pożywką Schneidera jako dodatek do wszelkich leków farmakologicznych (np. inhibitorów kinazy Aurora) lub DMSO jako kontrolę.
Uwaga: Stężenia inhibitorów są różne, a właściwe stężenia końcowe muszą być określone przez eksperymentatora. Roztwory podstawowe są zwykle przygotowywane w taki sposób, że inhibitor jest rozcieńczany w stosunku 1:1000 do podłoża. W tym przypadku rozcieńczenie DMSO (lub odpowiedniego rozpuszczalnika) w stosunku 1:1 000 służy jako kontrola nośnika. Stosujemy inhibitor Aurora B binukleinę 2 w końcowym stężeniu 40 μM. - Utrwal komórki w różnych punktach czasowych, aby obserwować postęp tworzenia wrzeciona dwubiegunowego i ocenić stany przyczepienia kinetochoru. Rozwiązanie problemu:
- Szybko spłucz szkiełka nakrywkowe 2 ml 1x BRB-80.
- Napraw komórki, dodając 2 ml 10% paraformaldehydu rozcieńczonego w 1x BRB-80 przez 10 minut. Ostrożnie odpipetuj paraformaldehyd w kapturze chemicznym.
- Przepuszczalność komórek za pomocą 2 ml 1x PBS + 1% Triton-X przez 8 min.
- Szkiełka myjące 3x z 2 ml 1x PBS + 0,1% Triton-X.
- Przenieś szkiełka nakrywkowe stroną komórkową do góry na arkusz Parafilmu (użyj markera, aby odpowiednio oznaczyć Parafilm, aby śledzić szkiełka) na szalce Petriego o średnicy 150 mm.
- Przykryj szkiełka nakrywkowe 150 μl gotowanej surowicy osła (BDS) i inkubuj w temperaturze pokojowej przez 1 godzinę, aby zablokować nieswoiste wiązanie przeciwciał.
Uwaga: W tym przypadku protokół fiksacji można zatrzymać, aby kontynuować go w późniejszym czasie. Szkiełka nakrywkowe można przechowywać w komorze wilgotnościowej w temperaturze 4 °C do 24 godzin. Aby wykonać komorę wilgotnościową, wyłóż brzeg naczynia o średnicy 150 mm wilgotną chusteczką laboratoryjną i przykryj pokrywką szalki Petriego. - Usunąć blok i inkubować szkiełka nakrywkowe przez 1 godzinę w temperaturze pokojowej ze 150 μl przeciwciał pierwszorzędowych odpowiednio rozcieńczonych w BDS w celu wybarwienia kinetochorów i mikrotubul do końcowych stężeń odpowiednio 2 μg/ml (lub zgodnie z zaleceniami producenta) i 1 μg/ml.
Uwaga: W tym przypadku protokół fiksacji można zatrzymać, aby kontynuować go w późniejszym czasie. Szkiełka nakrywkowe można przechowywać w komorze wilgotnościowej w temperaturze 4 °C do 24 godzin. - Szkiełka nakrywkowe umyć 3x 500 μl 1x PBS + 0,1% Triton-X.
- Inkubować szkiełka nakrywkowe przez 30-60 minut w temperaturze pokojowej z odpowiednimi przeciwciałami drugorzędowymi sprzężonymi z fluoroforem rozcieńczonymi w BDS.
- Szkiełka nakrywkowe umyć 3x 500 μl 1x PBS + 0,1% Triton-X.
- Inkubować szkiełka nakrywkowe ze 150 μl BDS o końcowym stężeniu 1 μg/ml DAPI przez 5 minut.
- Szkiełka nakrywkowe należy umyć 2x za pomocą 1x PBS + 0,1% Triton-X i zamontować szkiełka nakrywkowe stroną do dołu na szkiełku 3x1" z 8 μl nośnika montażowego. Pomaluj rogi lakierem do paznokci, aby unieruchomić szkiełka nakrywkowe na szkiełkach.
- Komórki obrazu z dwubiegunowymi wrzecionami, które wyrażają Eg5-mCherry. Weź serię Z składającą się z 30 płaszczyzn w odstępach 0,2 μm we wszystkich kanałach za pomocą obiektywu 100X. Dokładnie przeanalizuj kinetochory i mikrotubule, aby określić stany przyłączenia (przyczepy dwukierunkowe lub synteliczne).
Wyniki
Klp61F jest niezbędny do formowania dwubiegunowych wrzecion. Ludzka kinezyna-5, Eg5, może przywrócić funkcję Klp61F w komórkach Drosophila S2 (Rysunek 1A i D). Po dodaniu inhibitora kinezyny-5 (STLC) poziom motoru związanego z mikrotubulami spada (Rysunek 1B i E), a wrzeciono zapada się, co prowadzi do powstania monopola (Rysunek 1C i F) w komórkach pozbawionych endogennego Klp61F w wyniku skutecznego RNAi (Film uzupełniający 1). Warto zauważyć, że dwubiegunowe wrzeciona zapadają się po dodaniu STLC w zhumanizowanych komórkach S2, mimo że aktywność kinezyny-5 nie jest wymagana do utrzymania dwubiegunowości wrzeciona w komórkach ludzkich. Ta interesująca rozbieżność może wynikać z różnic w stopniu nakładania się mikrotubul interpolarnych i/lub ich stabilności w tych dwóch systemach modelowych14. Inhibicję kinezyny-5 (Rysunek 2A i E) można odwrócić poprzez wypłukanie leku, a następnie obserwować w czasie powrót do formy dwubiegunowego wrzeciona. Po usunięciu inhibitora (Rysunek 2B i F) białko Eg5-mCherry ponownie wiąże się z mikrotubulami w miarę montażu dwubiegunowego wrzeciona (Rysunek 2C i G), a komórki mogą przejść do dwubiegunowej anafazy (Rysunek 2D i H, Film uzupełniający 2).

Rysunek 1. Dodanie 1 µM STLC prowadzi do powstania wrzecion monopolarnych w komórkach Drosophila S2. Reprezentatywne obrazy z obrazowania time-lapse komórki Drosophila S2 wykazującej ekspresję Eg5-mCherry (A-C) oraz GFP-α-tubuliny (D-F) podczas dodawania 1 µM STLC. Inhibitor Eg5 dodano w 3 min. Pasek skali = 5 µm. Znacznik czasu = min:sek. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2. Ponowna formacja wrzeciona dwubiegunowego po usunięciu STLC. Reprezentatywne obrazy z obrazowania poklatkowego komórki Drosophila 2 wykazującej ekspresję Eg5-mCherry (A-D) oraz GFP-α-tubuliny (E-H) podczas eksperymentu z wypłukiwaniem STLC. STLC wypłukano w 5 min. Wrzeciono dwubiegunowe odtwarza się w ciągu 1 h od usunięcia STLC. Pasek skali = 5 µm. Znacznik czasu: min:sek. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
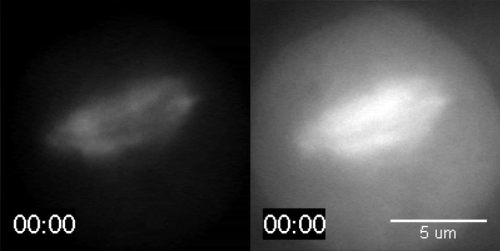
Dodatkowy film 1. (Kliknij prawym przyciskiem myszy, aby pobrać). Obrazowanie fluorescencyjne w szerokim polu widzenia reprezentatywnego przykładu komórki Drosophila S2 wykazującej ekspresję Eg5-mCherry (lewo) oraz GFP-α-tubuliny (prawo). W 2 min dodano 1 µM STLC, a wrzeciono utworzyło monopol w ciągu 10 min po dodaniu inhibitora. Obrazy były pozyskiwane co 1 min i odtwarzane z prędkością 10 klatek na sekundę. Pasek skali = 5 µm.

Dodatkowy film 2. (Kliknij prawym przyciskiem myszy, aby pobrać). Obrazowanie fluorescencyjne w szerokim polu widzenia reprezentatywnego przykładu komórki Drosophila S2 wykazującej ekspresję Eg5-mCherry (po lewej) i GFP-α-tubuliny (po prawej). Po 5 min usunięto podłoże zawierające 1 µM STLC i wypłukano komórki. Bipolarny wrzecion podziałowy odtwarza się w ciągu 1 hr od usunięcia inhibitora. Obrazy były pobierane co 1 min i odtwarzane z prędkością 10 klatek na sekundę. Pasek skali = 5 µm.
Dyskusja
Wizualizacja korekcji błędów jest cenną techniką do badania etapów związanych z tym ważnym i złożonym procesem komórkowym. W tym celu za pomocą odwracalnych inhibitorów generowane są błędne przyłączenia, a po wypłukaniu leku obserwuje się korekcję błędów. Test ten został pierwotnie opracowany przy użyciu komórek hodowli tkankowych ssaków5. Jednak obecność dużej liczby kinetochorów w wielu modelowych typach komórek ssaków stanowi wyzwanie w obserwacji poszczególnych zdarzeń korekcji błędów. Drosophila Komórki S2 posiadają zaledwie 4 pary kinetochorów, co czyni je bardziej preferowaną linią komórkową do obserwacji korekcji błędów. Jednak główną wadą jest to, że wiele inhibitorów jest nieskutecznych w komórkach Drosophila S2. Tak więc zdolność do generowania humanizowanej linii komórkowej Drosophila S2 eksprymującej ludzką kinezynę-5 stanowi cenne narzędzie do badania korekcji błędów.
Chociaż komórki Drosophila S2 mogą być lepszą linią komórkową do badania korekcji błędów, wiele etapów związanych z uzyskaniem linii komórkowej i zniszczeniem niezbędnych genów stanowi pewne wyzwanie dla tej techniki. Na przykład wydajność transfekcji może być dość niska. Jeśli mniej niż 20% komórek wykazuje ekspresję Eg5-mCherry, transfekcję należy powtórzyć, ponieważ proces selekcji potrwa dłużej. Również odsetek komórek wykazujących ekspresję obu białek fluorescencyjnych może z czasem ulec zmniejszeniu. Można to przezwyciężyć poprzez podział komórek w obecności blastycydyny S HCl i higromycyny B w celu wyselekcjonowania komórek wykazujących ekspresję odpowiednio Eg5-mCherry i GFP-α-tubuliny. Ważne jest również, aby pamiętać, że komórki Drosophila S2 mają ortologie do wielu ludzkich białek i; Dlatego tak ważne jest zoptymalizowanie warunków knockdown dla białek endogennych. Optymalne warunki knockdown mogą różnić się ilością dsRNA i długością leczenia. Biorąc pod uwagę pojawienie się i szybki postęp technologii CRISPR-Cas915-17, generacja linii komórkowej Drosophila z genem Klp61F zastąpionym ludzkim Eg5 stanowi potężną alternatywę, która pokonałaby ograniczenia podejścia opartego na transfekcji i knockdown. Nasza praca pokazuje, że wymiana genów z muchy na człowieka powinna być w tym przypadku realną opcją, chociaż obecnie opracowywane są niezbędne odczynniki do tego w komórkach Drosophila S2.
Procedura ta nie ogranicza się do Eg5, ale może być stosowana do badania funkcji innych interesujących białek. W przypadku stosowania inhibitorów, które wcześniej okazały się nieskuteczne w komórkach Drosophila S2, protokół ten można zmodyfikować w celu zbadania bezpośredniego wpływu inhibitorów na żywe komórki bez obaw o efekty niepożądane. Linia komórkowa wytworzona przy użyciu tego protokołu może być również wykorzystana w wysokoprzepustowych analizach przesiewowych w celu zidentyfikowania potencjalnych leków ukierunkowanych na białka zaangażowane w korekcję błędów.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Chcielibyśmy podziękować Patricii Wadsworth za dar w postaci konstruktu kinesin-5. Praca ta była wspierana przez grant NIH (5 R01 GM107026) dla T.J.M. oraz przez grant badawczy nr 5-FY13-205 od Fundacji March of Dimes dla T.J.M., a także wsparcie od Charles H. Hood Foundation, Inc., Boston, MA. do T.J.M.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Odczynnik do transfekcji Effectine | Qiagen | 301425 | |
| Klp61F cDNA | Drosophila Genomic Resource Center | 13690 | Nazwa genu LD15641 |
| Schneider' s Media | Invitrogen | 21720-024 | |
| Płodowa surowica bydlęca, certyfikowana | Invitrogen | 10082-147 | Inaktywowana termicznie, pochodzący z USA |
| siarczan miedzi(II) (CuSO4) | Sigma | C8027-500G | 500 mM kolba |
| S-trytyl-L-cysteina | Sigma | 164739-5G | 1 Zapasy mM w DMSO |
| Blasticidin HCl | Invitrogen | R21001 | 5 mg / ml zapas w 1x PBS |
| Hygromycyna B | Invitrogen | 10687010 | |
| T7 System do produkcji RNA na dużą skalę | Promega | P1320 | Przybliżone stężenie dsRNA z każdej reakcji wynosi około 5-15 &mikro; g/&mikro; l |
| Klp61F RNAi F primer | Invitrogen | TAATACGACTCACTATAGGGTA-TTTGCGCATTATTTTAAAA | |
| Klp61F RNAi R primer | Invitrogen | TAATACGACTCACTATAGGGAT-ATTGATGAAAC | |
| PCR clean-up kit | Mo Bio Laboratories, Inc | 1250 | |
| Concanavalin A | Sigma | C5275 | 0.5 mg/ml roztwór sporządzony przez rozpuszczenie w 1x PBS. |
| Gotowana surowica osła | Jackson ImmunoResearch Labs | 017-000-121 | 5% roztwór podstawowy w 1x buforze PHEM, doprowadzić roztwór do wrzenia. Przechowywane w 4 °C. |
| Nośniki montażowe | 20 mM Tris pH 8,0,0, 0,5% galusanu N-propylu, 90% glicerolu. Przechowywane w 4 °C. | ||
| 1x BRB-80 | 80 mM RURY pH 6,9; 1 mM EGTA; 1 mM MgCl2 | ||
| Źródło światła białego | Lumencor Inc | ||
| ET EGFP Filtr Cube | Chroma | 49002 | |
| DSRed Filter Cube | Chroma | 49005 | |
| anty-NDC80 | Wykonane na zamówienie przez Maresca Lab | ||
| DM1α (anty-&alfa;-tubulina) | Przeciwciało anty-CID Sigma | T6199 | |
| AbCam | ab10887 |
Bibliografia
- Cheeseman, I. M., Desai, A. Molecular architecture of the kinetochore-microtubule interface. Nat Rev Mol Cell Biol. 9, 33-46 (2008).
- Maresca, T. J., Salmon, E. D. Welcome to a new kind of tension: translating kinetochore mechanics into a wait-anaphase signal. J Cell Sci. 123, 825-835 (2010).
- Kitajima, T. S., Ohsugi, M., Ellenberg, J. Complete kinetochore tracking reveals error-prone homologous chromosome biorientation in mammalian oocytes. Cell. 146, 568-581 (2011).
- Cimini, D., Wan, X., Hirel, C. B., Salmon, E. D. Aurora kinase promotes turnover of kinetochore microtubules to reduce chromosome segregation errors. Curr Biol. 16, 1711-1718 (2006).
- Lampson, M. A., Renduchitala, K., Khodjakov, A., Kapoor, T. M. Correcting improper chromosome-spindle attachments during cell division. Nat Cell Biol. 6, 232-237 (2004).
- Schneider, I. Cell lines derived from late embryonic stages of Drosophila melanogaster. J Embryol Exp Morphol. 27, 353-365 (1972).
- Learman, S. S., et al. NSC 622124 inhibits human Eg5 and other kinesins via interaction with the conserved microtubule-binding site. Biochemistry. 48, 1754-1762 (2009).
- Liu, L., Parameswaran, S., Liu, J., Kim, S., Wojcik, E. J. Loop 5-directed compounds inhibit chimeric kinesin-5 motors: implications for conserved allosteric mechanisms. J Biol Chem. 286, 6201-6210 (2011).
- Maliga, Z., Mitchison, T. J. Small-molecule and mutational analysis of allosteric Eg5 inhibition by monastrol. BMC Chem Biol. 6, 2(2006).
- Goshima, G., Vale, R. D. The roles of microtubule-based motor proteins in mitosis: comprehensive RNAi analysis in the Drosophila S2 cell line. J Cell Biol. 162, 1003-1016 (2003).
- Salemi, J. D., McGilvray, P. T., Maresca, T. J. Development of a Drosophila cell-based error correction assay. Front Oncol. 3, 187(2013).
- Rogers, S. L., Rogers, G. C. Culture of Drosophila S2 cells and their use for RNAi-mediated loss-of-function studies and immunofluorescence microscopy. Nat Protoc. 3, 606-611 (2008).
- Sharp, D. J., Yu, K. R., Sisson, J. C., Sullivan, W., Scholey, J. M. Antagonistic microtubule-sliding motors position mitotic centrosomes in Drosophila early embryos. Nat Cell Biol. 1, 51-54 (1999).
- Kollu, S., Bakhoum, S. F., Compton, D. A. Interplay of microtubule dynamics and sliding during bipolar spindle formation in mammalian cells. Curr Biol. 19, 2108-2113 (2009).
- Doudna, J. A., Charpentier, E. Genome editing. The new frontier of genome engineering with CRISPR-Cas9. Science. 346, 1258096(2014).
- Hsu, P. D., Lander, E. S., Zhang, F. Development and applications of CRISPR-Cas9 for genome engineering. Cell. 157, 1262-1278 (2014).
- Mali, P., Esvelt, K. M., Church, G. M. Cas9 as a versatile tool for engineering biology. Nat Methods. 10, 957-963 (2013).
Przedruki i uprawnienia
