Tutaj prezentujemy protokoły do szybkiego badania i charakteryzowania enzymów pod kątem aktywności przeciwdrobnoustrojowej. Test dyfuzji mikroszkiełkowej i test uwalniania barwnika wykorzystują docelowe substraty bakteryjne do jakościowej i ilościowej oceny aktywności enzymatycznej.
Artykuł metodologiczny
Testy jakościowe i ilościowe do wykrywania i charakterystyki białkowych środków przeciwdrobnoustrojowych
W tym artykule
Podsumowanie
Streszczenie
Wstępne oceny dużych bibliotek mikrobiologicznych dla potencjalnych producentów nowych białek przeciwdrobnoustrojowych wymagają zarówno jakościowych, jak i ilościowych metod przesiewowych pod kątem docelowych enzymów przed zainwestowaniem większego wysiłku badawczego i zasobów. Celem tego protokołu jest zademonstrowanie dwóch uzupełniających się testów do przeprowadzenia tych wstępnych ocen. Test dyfuzji mikroszkiełkowej zapewnia wstępne lub proste badanie przesiewowe, które umożliwia jakościową i szybką ocenę aktywności proteolitycznej w odniesieniu do szeregu zarówno żywotnych, jak i zabitych termicznie docelowych substratów bakteryjnych. Z drugiej strony, zwiększona czułość i odtwarzalność testu uwalniania barwnika stanowi ilościową platformę do oceny i porównywania wpływów środowiskowych wpływających na aktywność hydrolityczną białkowych środków przeciwdrobnoustrojowych. Możliwość znakowania specyficznych substratów do hodowli komórkowych zabitych termicznie barwnikiem R Remazol rozszerza tę zdolność do dostosowywania testu uwalniania barwnika w celu scharakteryzowania aktywności enzymatycznej będącej przedmiotem zainteresowania.
Wprowadzenie
Środki przeciwdrobnoustrojowe odgrywają kluczową rolę w zwalczaniu szerokiej gamy mikroorganizmów, takich jak wirusy, grzyby i bakterie. Aktywność przeciwdrobnoustrojowa wytwarzana przez różne bakterie ma różną swoistość docelową, od szerokiego spektrum do specyficznej dla gatunku, w tym klinicznie istotnych patogenów bakteryjnych 1. W naturze białkowe związki przeciwdrobnoustrojowe, takie jak bakteriocyny i lizyny, stanowią mikrobiologiczny arsenał narzędzi do samoobrony, replikacji i pozyskiwania składników odżywczych 2,3. Pełniąc rolę mediatorów dynamiki populacji w społecznościach drobnoustrojów, białkowe środki przeciwdrobnoustrojowe zapewniają organizmowi produkującemu przewagę konkurencyjną nad nieprodukującymi, wrażliwymi gatunkami 4. Jako rekombinowane enzymy i probiotyki, białka te mają również znaczenie gospodarcze i społeczne, ponieważ zapotrzebowanie na nowe źródła kontroli patogenów wzrasta z każdym nowym wzrostem oporności na środki przeciwdrobnoustrojowe w populacji bakterii 5.
Pierwsze oceny nowo odkrytych białkowych środków przeciwdrobnoustrojowych obejmują określenie podstawowych cech fizycznych, które są nieodłączne dla enzymu. Metody szybkich badań przesiewowych potencjalnych środków przeciwdrobnoustrojowych pozwalają na selekcję kandydatów o aktywności hydrolitycznej w stosunku do pożądanych substratów docelowych. Test dyfuzji mikroszkiełkowej i ilościowy test uwalniania barwnika pozwalają na zastosowanie różnych substratów w wykrywaniu hydrolizy enzymatycznej. W przypadku białkowych enzymów przeciwdrobnoustrojowych o działaniu przeciwko ścianie komórkowej bakteryjnej wszechstronność tych testów umożliwia szybkie i skuteczne, jakościowe i ilościowe badania przesiewowe przeciwko żywotnym komórkom bakteryjnym (tylko test mikroszkiełkowy), zabitym termicznie substratom całych komórek bakteryjnych lub oczyszczonemu peptydoglikanowi z bakterii docelowej. Testy te są przydatne w odkrywaniu enzymów przeciwdrobnoustrojowych do stosowania w takich dziedzinach, jak alternatywne terapie, suplementy diety i inhibitory produkcji biofilmu.
Test dyfuzji mikroszkiełkowej i test uwalniania barwnika są demonstrowanymi metodami wykrywania i charakteryzowania nowych białkowych środków przeciwdrobnoustrojowych. Test dyfuzji mikroszkiełkowej zapewnia względne (jakościowe) oszacowanie aktywności przeciwdrobnoustrojowej i pozwala na minimalne wnioskowanie o stężeniu i aktywności enzymu. Korzystając z tej metody, aktywność można łatwo zobrazować jako rozwój strefy lizy z brakiem aktywności skutkującym brakiem tworzenia się strefy. Szybkość rozwoju strefy i średnica strefy wskazują na ilość i czystość enzymu obecnego w próbce; Jednak na tę szybkość i jakość usuwania substratu w strefie może mieć również wpływ obecność zanieczyszczeń, kompletność reakcji hydrolizy i rodzaj podłoża. Zanieczyszczenia zakłócające mogą wpływać na szybkość dyfuzji enzymów ze studni, podczas gdy niepełna hydroliza lub zmiana rodzaju podłoża może spowodować zmętnienie strefy lizy 6.
Test uwalniania barwnika ilościowo ocenia ilość kowalencyjnie połączonych produktów barwnika Remazol brilliant blue R uwalnianych do supernatantu reakcyjnego z enzymatycznie zhydrolizowanego substratu. Metoda charakteryzuje się jedynie niewielką zmiennością związaną z różnicą w substracie, co pozwala na większą czułość wykrywania hydrolizy w porównaniu z testem dyfuzji mikroszkiełkowej. Właściwości te pozwalają na użyteczność metody w charakterystyce właściwości biochemicznych enzymu oraz w standaryzacji testu do porównania różnych enzymów przeciwdrobnoustrojowych.
W tym protokole udostępniamy metody do przeprowadzenia podstawowego testu dyfuzji mikroszkiełka i testu uwalniania barwnika, demonstrując jednocześnie skalę granic wykrywalności i zmienności dla każdej z nich. Testy służą do przeprowadzenia podstawowych ocen nieznanego białka przeciwdrobnoustrojowego oczyszczonego z supernatantu kultury niescharakteryzowanego izolatu bakterii glebowych. Zaobserwowana aktywność wobec substratów komórek bakteryjnych w testach pozwala na porównanie aktywności reakcji między wcześniej niescharakteryzowanym białkiem przeciwdrobnoustrojowym a α-chymotrypsyną, kontrolnym enzymem proteolitycznym. Protokoły te stanowią podstawę do stosowania tych dwóch technik, które można rozszerzać i modyfikować w celu dostosowania do różnych zastosowań.
Protokół
1. Przygotowanie substratów bakteryjnych i peptydoglikanu
Uwaga: Substraty bakteryjne całych komórek i oczyszczone peptydoglikany są używane jako substraty enzymatyczne zarówno w teście dyfuzji mikroszkiełkowej, jak i w teście uwalniania barwnika. Substraty te wymagają przygotowania przed przeprowadzeniem reakcji enzymatycznych. Poniższy protokół opisuje ich przygotowanie.
- Cały substrat komórek bakteryjnych
- Wytworzyć substrat komórek bakteryjnych, zaszczepiając 500 ml bulionu odżywczego 2 ml nocnej kultury Bacillus subtilis 168 (American Type Culture Collection; ATCC 23857). Inkubować w temperaturze 30 °C z wytrząsaniem (125 obr./min) aż kultura osiągnie fazę wykładniczego wzrostu, zdefiniowaną jako faza szybkiego wzrostu prowadząca do podwojenia liczby bakterii. Do uprawy Salmonella enterica subsp. enterica (ATCC 10708) należy użyć bulionu odżywczego jako pożywki w temperaturze 37 °C z wytrząsaniem (125 obr./min).
- Uśmiercać termicznie każdą kulturę przez autoklawowanie przez 10 minut w temperaturze 121 °C pod ciśnieniem 3 atm.
- Zbierz zabity termicznie substrat bakteryjny przez wirowanie przez 20 minut przy 5,000 x g. Umyj granulat trzykrotnie wodą typu 1 i ponownie zawiesić w minimalnej ilości wody. W tym badaniu zawiesić podłoża w 1,200 μl.
- Porcję 300 μl substratów komórek bakteryjnych rozprowadzić do 1,5 ml probówek do mikrofuge i przechowywać w temperaturze 20 °C.
- Oczyszczony substrat peptydoglikanu
- Oczyść peptydoglikan z docelowego substratu bakterii 7-10 lub nabądź od dostawcy (patrz Tabela materiałów i sprzętu). Oczyść surowe preparaty peptydoglikanu z dodatkowych polimerów ściany komórkowej.
2. Jakościowy test dyfuzji mikroszkiełkowej [Zmodyfikowany z Lachica, et al. 11 ]
Uwaga: Test dyfuzji mikroszkiełkowej jest jakościową metodą wykrywania obecności enzymu przeciwdrobnoustrojowego w próbce. Gdy enzym dyfunduje przez macierz agarozy zawierającą substrat, w miarę hydrolizy substratu przez enzym rozwija się strefa oczyszczania. Poniższy protokół opisuje przygotowanie i wykonanie testu dyfuzji mikroszkiełkowej w celu jakościowego wykrywania obecności białkowych środków przeciwdrobnoustrojowych.
- Określ stężenie enzymu przeciwdrobnoustrojowego, który ma być oceniany, za pomocą zestawu do oznaczania białek z kwasem bicynchoninowym (BCA) zgodnie z protokołem producenta.
- Wykorzystać sól fizjologiczną buforowaną fosforanami (PBS) jako bufor enzymu, jednak empirycznie określ bufor odpowiedni dla danego enzymu.
- Przeprowadzić seryjne rozcieńczanie enzymu przeciwdrobnoustrojowego przy użyciu soli fizjologicznej buforowanej fosforanami (PBS) jako buforu reakcyjnego. Seryjne rozcieńczenie stosowane w tych testach dyfuzji mikroszkiełkowej dawało końcowe masy białek w teście 0 pg, 10 pg, 100 pg, 1 ng, 10 ng, 100 ng, 1 μg i 10 μg na objętość reakcji.
- Dozować masy białkowe do pojedynczych probówek do mikrofuge i dostosować objętość białka do 20 μl za pomocą PBS w ramach przygotowań do uzupełnienia dołków reakcyjnych mikroszkiełkowych.
- Przygotować 0,5% roztwór agarozy, rozpuszczając 0,25 g agarozy w 50 ml PBS. Podgrzej roztwór do wrzenia, aż agaroza całkowicie się rozpuści. Oznaczyć wagowo wodę utraconą podczas procesu topienia i dodać z powrotem do roztworu.
- Dodać 50 μl 10% azydku sodu w wodzie do roztworu agarozy i dostosować temperaturę roztworu do 50 °C w łaźni wodnej. Azydek sodu dodaje się w celu zahamowania rozwoju bakterii zanieczyszczających podczas inkubacji testu dyfuzji mikroszkiełkowej. Jeśli jako substrat używane są żywe komórki, należy pominąć azydek sodu w roztworze agarozy.
- Rozmrozić zabity termicznie substrat bakteryjny na lodzie.
- Ponownie zawiesić substrat bakteryjny w 12 ml roztworu agarozy, aby w przybliżeniu dopasować zmętnienie do wzorca równoważności 2,0 McFarlanda (patrz tabela materiałów). Porównaj zmętnienia roztworów, wizualizując czarną linię na białym tle przez roztwory, dodając substrat bakteryjny do agarozy, aż do osiągnięcia przybliżonego zmętnienia.
- Natychmiast odpipetować 3 ml roztworu substratu agarozy do każdego mikroszkiełka (25 x 75 x 1 mm3).
- Po zestaleniu się szkiełek należy przebić trzy dołki w warstwie substratu agarozowego każdego mikroszkiełka za pomocą świdra korkowego (średnica 4,8 mm). Dodać 20 μl każdego skorygowanego seryjnego rozcieńczenia białka do odpowiednich studzienek.
- Użyć PBS (20 μl) lub albuminy surowicy bydlęcej (5 μg w 20 μl PBS) w basenie kontroli ujemnej. Jako kontrolę pozytywną należy stosować znane enzymy bakteriolityczne odpowiednie dla substratu, takie jak lizozym.
- Inkubować szkiełko w komorze wilgotnościowej w temperaturze 37 °C lub przy optymalnej temperaturze aktywności enzymu. Czas trwania inkubacji zależy od stężenia i aktywności specyficznej enzymu przeciwdrobnoustrojowego. Typowy czas reakcji to noc (około 16 godzin).
- Po inkubacji obserwować szkiełka w świetle pośrednim i uchwycić obrazy rozwijającego się testu za pomocą cyfrowej lustrzanki jednoobiektywowej z obiektywem 60 mm przy ogniskowej około 30 cm.
Uwaga: Aktywność enzymatyczna białka przeciwdrobnoustrojowego dla danego substratu jest skorelowana z rozwojem wyraźnej strefy hydrolizy, która tworzy się wokół studni, gdy enzym dyfunduje do agarozy. - Aby zakwalifikować aktywność enzymatyczną, obserwuj rozmiary stref, które tworzą się wokół każdej studzienki. Wysoka aktywność enzymatyczna odnosi się jakościowo do większej strefy, podczas gdy niska aktywność enzymatyczna jakościowo odnosi się do mniejszej strefy.
3. Etykietowanie podłoża - Remazol Brilliant Blue R Dye Labeling [Zmodyfikowane z Zhou 12 ]
Uwaga: W teście uwalniania barwnika, substrat jest kowalencyjnie połączony z barwnikiem R brylantowym Remazol. Poniższy protokół opisuje przygotowanie barwionych substratów enzymatycznych.
- Przygotować 250 mM roztwór wodorotlenku sodu (NaOH), rozpuszczając 1 g NaOH w 99 ml wody typu I, która ma być użyta do przygotowania 200 mM roztworu barwnika R (RBB) Remazol w kolorze błękitu brylantowego.
- Przygotować 200 mM roztwór RBB, rozpuszczając 1,25 g RBB w 98,75 ml ± 1 ml świeżego 250 mM roztworu NaOH (krok 3.1).
- Ponownie zawiesić zabite termicznie komórki bakteryjne w stężeniu 0,5 g mokrej masy w 30 ml roztworu RBB. W przypadku oczyszczonego peptydoglikanu ponownie zawiesić peptydoglikan w stężeniu 0,3 g mokrej masy w 30 ml roztworu RBB.
- Mieszaninę reakcyjną inkubować w kolbie Erlenmeyera na platformie obrotowej przez 6 godzin w temperaturze 37 °C, delikatnie mieszając.
- Przenieść mieszaninę reakcyjną do inkubatora o temperaturze 4 °C i inkubować przez dodatkowe 12 godzin, delikatnie mieszając.
- Po inkubacji zebrać barwione podłoże przez odwirowanie przy 3 000 x g przez 30 minut. Zdekantować roztwór barwnika z granulatu substratu.
- Usunąć niekowalencyjnie związany rozpuszczalny barwnik z substratów, wielokrotnie przemłukując znakowane barwnikiem komórki lub peptydoglikan (około 3-5 płukań) wodą typu I, a następnie odwirować. Przy każdym dodaniu wody dokładnie zawiesić pellet.
Uwaga: Po odwirowaniu rozpuszczalny barwnik nie jest już widoczny w płukaniu wodą. Podłoże należy poddać jeszcze jednemu płukaniu. Należy pamiętać, że podłoże pozostanie niebieskie, podczas gdy supernatant z ostatniego prania będzie przezroczysty. - Barwione podłoża należy przechowywać zawieszone w minimalnej ilości wody w temperaturze -20 °C do późniejszego wykorzystania.
4. Ilościowy test uwalniania barwnika
Uwaga: Podczas testu uwalniania barwnika, hydroliza substratu barwionego RBB w reakcji enzymatycznej uwalnia barwione produkty do supernatantu reakcji. Kolorymetryczny pomiar ilości uwalnianego barwnika wskazuje na stopień aktywności enzymatycznej obecnej w próbce dla danego enzymu. Metoda ilościowa pozwala na porównanie różnych enzymów na różnych substratach i pozwala na zmianę warunków środowiskowych wpływających na reakcję enzymatyczną (np. temperatury, zasolenia i pH). Poniższy protokół opisuje przygotowanie i wykonanie testu uwalniania barwnika w celu ilościowego wykrywania aktywności enzymatycznej białkowych środków przeciwdrobnoustrojowych.
- Przygotowanie do testu uwalniania barwnika
- Pozostawić zamrożony barwiony substrat do powrotu do temperatury pokojowej i dwukrotnie przemyć buforem testowym (PBS), który jest empirycznie określony dla danego enzymu.
- Obliczyć objętość zawiesiny substratu, która jest potrzebna, mnożąc objętość reakcji wynoszącą 200 μl przez liczbę testów uwalniania barwnika, które należy przeprowadzić.
- Przygotować zawiesinę substratu, dodając barwiony substrat do objętości buforu do oznaczania, oznaczonej w ppkt 4.1.2, aż do uzyskania gęstości optycznej (OD) 2,0 przy długości fali 595 nm przy użyciu spektrofotometru. Aby pozostać w granicach funkcjonalnych spektrofotometru, zmierz 2,0 OD595 jako 1,0 dla rozcieńczenia stężonego roztworu w stosunku 1:1. Użyj buforu testowego jako pustego numeru.
Uwaga: Zmętnienie substratu w reakcji można podnieść powyżej 2,0, aby dopasować poziomy aktywności wysoce wydajnych enzymów. - Zawiesić białkowy środek przeciwdrobnoustrojowy do oceny w buforze testowym o szacowanym stężeniu 1 mg/ml.
- Korzystając z testu mikropłytki zestawu do oznaczania białek BCA zgodnie z protokołem producenta, określ rzeczywiste stężenie próbki białka, która ma być oznaczona. Dostosować stężenie zawiesiny podstawowej do 1 mg/ml przy użyciu buforu do oznaczania.
- Wykorzystanie testu uwalniania barwnika w celu określenia optymalnych warunków inkubacji białkowego środka przeciwdrobnoustrojowego
- Rozcieńczyć podstawową zawiesinę białkową przeciwdrobnoustrojową do 100 ng/μl. Stężenie to daje końcową masę reakcyjną wynoszącą 1 μg białka na objętość (10 μl) dodanego do reakcji testu.
- Określ zakres termiczny, który ma być oceniany dla białka bakteriolitycznego. Zakres termiczny w tych testach obejmował 5 °C, 15 °C, 25 °C, 35 °C, 45 °C, 55 °C i 65 °C.
- Przeprowadzić testy reakcji w probówkach do mikrofug o pojemności 0,5 ml. Dla każdego warunku termicznego dodać 10 μl białka podstawowego do 200 μl przygotowanej zawiesiny substratu.
- Inkubować w termocyklerze przez 8 godzin z mieszaniem przez inwersję raz na godzinę.
- Po inkubacji zatrzymać reakcje, dodając 25 μl etanolu.
- Usunąć niestrawiony, nierozpuszczalny substrat przez odwirowanie przy 3 000 x g przez 2 minuty i przenieść 150 μl supernatantu reakcyjnego dla każdej mieszaniny reakcyjnej na 96-dołkową mikropłytkę płaskodenną, uważając, aby nie naruszyć osadu niestrawionego substratu.
- Zmierz aktywność enzymatyczną białka przeciwdrobnoustrojowego dla danego substratu, określając ilość rozpuszczalnego barwnika RBB zdysocjowanego z substratu po hydrolizie enzymatycznej. Aby określić ilościowo aktywność enzymatyczną, należy zmierzyć absorbancję supernatantu przy długości fali 595 nm za pomocą spektrofotometru z mikropłytkami. Zwiększona absorbancja przez rozpuszczalny barwnik uwalniany do supernatantu ze znakowanego substratu jest ilościowym pomiarem aktywności enzymatycznej.
Uwaga: Zmiana absorbancji jest reprezentowana przez jednostki aktywności (AU), gdzie 1 AU powoduje wzrost gęstości optycznej supernatantu reakcji uwalniania barwnika o 0,01 przy długości fali 595 nm. Ślepa próba, inkubowana ze wszystkimi składnikami reakcji z wyjątkiem enzymu, służy do odejmowania dowolnego barwnika, który uwalnia się z substratu znakowanego RBB w wyniku inkubacji. Optymalna temperatura enzymatyczna zapewnia pomiar jednostki szczytowej aktywności. - Powtórzyć kroki od 4.2.1 do 4.2.7, używając różnych inkubacyjnych, aby określić optymalne warunki buforowe dla enzymu przeciwdrobnoustrojowego. W tych testach należy użyć PBS.
- Wykorzystanie testu uwalniania barwnika w celu określenia minimalnego stężenia substancji czynnej w optymalnej temperaturze inkubacji dla białkowego środka przeciwdrobnoustrojowego
- Przeprowadzić seryjne rozcieńczanie podstawowej zawiesiny białek przeciwdrobnoustrojowych przy użyciu buforu do oznaczania. Zakres serii rozcieńczeń będzie się różnił w zależności od aktywności enzymu przeciwdrobnoustrojowego. Seryjne rozcieńczenie zastosowane w tych testach dało końcowe ilości białka w teście 0 pg, 10 pg, 100 pg, 1 ng, 10 ng, 100 ng, 1 μg i 10 μg.
- Wykonać każdy test reakcyjny na 48-dołkowej mikropłytce z płaskim dnem. Dla każdego warunku oznaczania dodać 10 μl odpowiedniej zawiesiny białkowej do 200 μl przygotowanej zawiesiny substratu. Dostosuj wszelkie zmiany objętości roztworu białkowego dodanego do reakcji do 10 μl za pomocą buforu reakcyjnego.
- Uszczelnij mikropłytkę folią uszczelniającą płytkę, aby uniknąć zmian objętości spowodowanych parowaniem. Inkubować w inkubatorze z wytrząsarką w określonej optymalnej temperaturze inkubacji dla danego białkowego środka przeciwdrobnoustrojowego przez 16 godzin z wytrząsaniem.
- Po inkubacji zatrzymać reakcję, dodając 25 μl etanolu do każdego dołka i usunąć niestrawiony substrat przez odwirowanie przy 3 000 x g przez 2 min.
- Przenieść 150 μl supernatantu reakcyjnego dla każdej mieszaniny reakcyjnej na 96-dołkową mikropłytkę płaskodenną, uważając, aby nie rozbić osadu niestrawionego substratu.
- Aby określić ilościowo aktywność enzymatyczną, należy zmierzyć absorbancję supernatantu przy długości fali 595 nm za pomocą spektrofotometru z mikropłytkami. Ślepa próba, inkubowana ze wszystkimi składnikami reakcji z wyjątkiem enzymu, służy do odejmowania dowolnego barwnika, który uwalnia się z substratu znakowanego RBB w wyniku inkubacji. Zwiększona absorbancja rozpuszczalnego barwnika uwalnianego do supernatantu z znakowanego substratu stanowi ilościową miarę aktywności enzymatycznej.
Uwaga: Zmiana absorbancji jest reprezentowana przez jednostki aktywności (AU), gdzie 1 AU powoduje wzrost gęstości optycznej supernatantu reakcji uwalniania barwnika o 0,01 przy długości fali 595 nm.
Wyniki
Test dyfuzyjny na mikropłytkach oraz ilościowy test uwalniania barwnika są skutecznymi metodami przesiewowymi i pomiarowymi w początkowych badaniach nowych białkowych środków przeciwdrobnoustrojowych. Każdy z tych testów ma swoje zalety i ograniczenia; jednak ich wspólne zastosowanie pozwala na szybki wstępny przesiew oraz podstawową charakterystykę środka przeciwdrobnoustrojowego.
Test dyfuzyjny na mikropłytkach umożliwia wydajny i szybki screening bibliotek drobnoustrojów produkujących białkowe substancje przeciwdrobnoustrojowe. W przypadku niskich stężeń enzymu ograniczenia związane z czułością detekcji mogą limitować test, co wymaga dodania do dołka reakcyjnego większej ilości enzymu niż w przypadku testu uwalniania barwnika. Jak pokazano na Rysunku 1, jakościowe właściwości testu pozwalają obserwatorowi porównać względne ilości enzymu obecne w każdym dołku.
W rozwijającej się strefie lizy, przedstawionej na rysunku 1A (25 µg enzymu), krawędź prowadząca strefy wykazuje mętną lub niepełną lizę substratu, podczas gdy strefa najbliższa dołka wykazuje bardziej całkowitą lizę substratu. Zjawisko to, będące wynikiem malejącego stężenia dyfundującego enzymu na krawędzi prowadzącej, utrudnia dokładny pomiar średnicy strefy. Obserwując dołki B (15 µg), C (10 µg), D (5 µg), E (1,0 µg) i F (0,1 µg) na rysunku 1, można zauważyć, że średnica strefy całkowitej lizy zanika aż do całkowitego ustąpienia, co koreluje ze zmniejszoną ilością enzymu. W przypadku warunku F (0,1 µg) stężenie enzymu w agarozie jest poniżej granicy pozwalającej na wizualizację dyfundującego enzymu podczas jego przemieszczania się przez agarozę i hydrolizowania substratu. Test dyfuzji na mikropreparacie przeprowadzono również z użyciem oczyszczonego peptydoglikanu Bacillus subtilis jako substratu (rysunek 2). Chociaż strefa jest mniej wyraźna niż te obserwowane przy użyciu całych komórek Salmonella enterica ze względu na trudności z równomiernym zawieszeniem peptydoglikanu w agarozie, hydroliza peptydoglikanu przez nieznany enzym przeciwdrobnoustrojowy jest widoczna.
Test uwalniania barwnika jest bardziej czułą i wszechstronną metodą niż test dyfuzji na mikropłytkach, co pozwala na uzyskanie niższego progu detekcji oraz zmienność czynników środowiskowych wpływających na reakcję enzymatyczną. W reprezentatywnych analizach zmieniano temperaturę, aby określić temperaturę optymalną dla enzymu przeciwdrobnoustrojowego, która w PBS wyniosła 35 °C (Rycina 3). Optimum to jest wyraźnie widoczne w nadsączach z reakcji jako zwiększone natężenie niebieskiego koloru (Rycina 3B), a także w jednostkach aktywności wyznaczonych na podstawie pomiarów absorbancji przy 595 nm (Rycina 3A). Wszechstronność testu uwalniania barwnika pozwala badaczowi na zmianę nie tylko temperatury, ale także buforu reakcyjnego i składników buforu, aby szybko określić optymalne warunki inkubacji dla danego enzymu.
Poziom aktywności nieznanego enzymu przeciwdrobnoustrojowego (Rysunek 4) oraz enzymu kontrolnego α-chymotrypsyny (Rysunek 5) zmierzono w określonej optymalnej temperaturze inkubacji 35 °C w PBS przeciwko podłożu z zabitym termicznie Bacillus subtilis znakowanym RBB. Porównanie wyników z Rysunku 4 i Rysunku 5 wskazuje, że nieznany enzym przeciwdrobnoustrojowy wykazuje niemal dwukrotnie większe powinowactwo do podłoża B. subtilis. Ponadto kontrolna α-chymotrypsyna nie strawiła całkowicie zabitego termicznie podłoża B. subtilis w dołku (dane nie zostały przedstawione). Aktywność kontrolnej α-chymotrypsyny zaczyna osiągać plateau w okolicach 0,3 µg, w przeciwieństwie do stałego wzrostu jednostek aktywności przy wszystkich ilościach enzymu w przypadku nieznanego enzymu przeciwdrobnoustrojowego (Rysunek 4 i Rysunek 5). Może to wskazywać na to, że nieznany enzym posiada większą aktywność trwałą lub że w podłożu B. subtilis dostępna dla enzymu jest większa liczba miejsc cięcia.
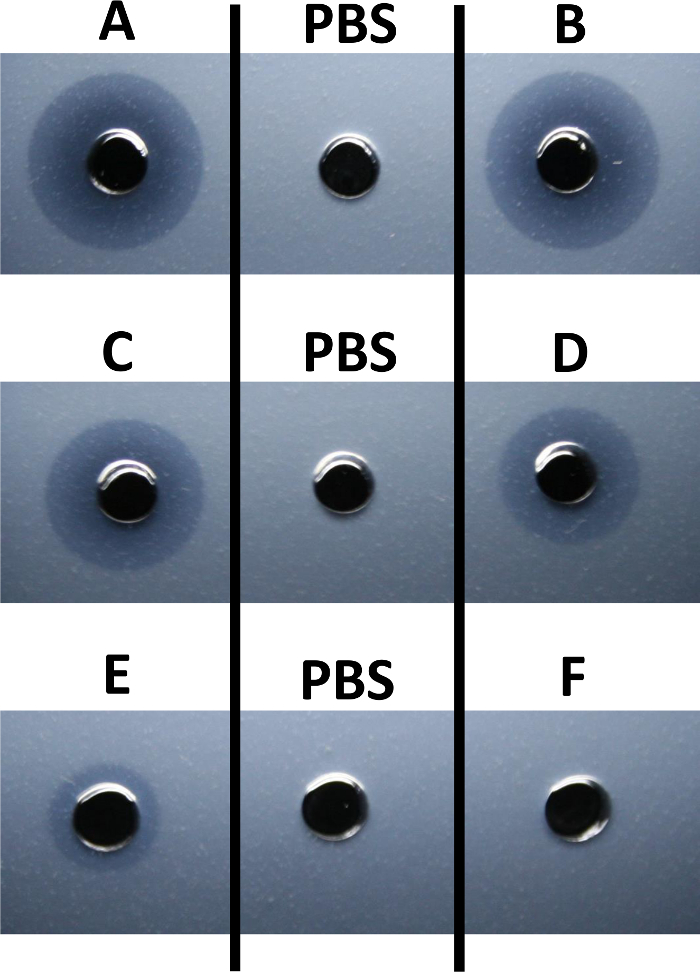
Rycina 1: Aktywność enzymatyczna względem podłoża w postaci całych komórek Salmonella enterica. Metodę dyfuzji na mikropreparatach wykorzystano do jakościowej oceny aktywności nieznanego białka przeciwdrobnoustrojowego wobec zabitych termicznie Salmonella enterica subsp. enterica (ATCC 10708). Masowe ilości nieznanego białka przeciwdrobnoustrojowego zawieszonego w soli fizjologicznej z buforem fosforanowym (PBS), które dodano do odpowiednich dołków na preparatach, wynosiły 25 µg (dołek A), 15 µg (dołek B), 10 µg (dołek C), 5 µg (dołek D), 1 µg (dołek E) oraz 0,1 µg (dołek F). Sam PBS posłużył jako kontrola negatywna w testach. Strefy lizy obrazowano po 6 h inkubacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
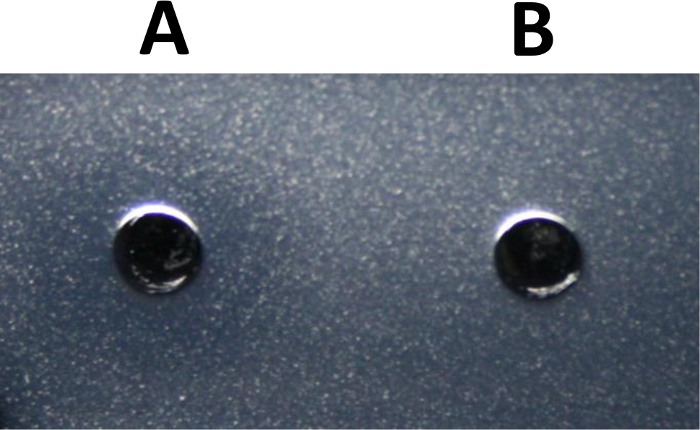
Rycina 2: Aktywność enzymatyczna przeciwko Bacillus subtilis w odniesieniu do peptydoglikanowej ściany komórkowej. Do jakościowej oceny aktywności nieznanego białka przeciwdrobnoustrojowego wobec peptydoglikanu Bacillus subtilis 168 wykorzystano test dyfuzji na mikroslajdach. 10 µg nieznanego środka przeciwdrobnoustrojowego, zawieszonego w 20 µl PBS, dodano do dołka A mikroslajdów. Sam PBS posłużył jako kontrola negatywna testu (dołek B). Strefę lizy zobrazowano po 6-godzinnej inkubacji w 37 °C. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
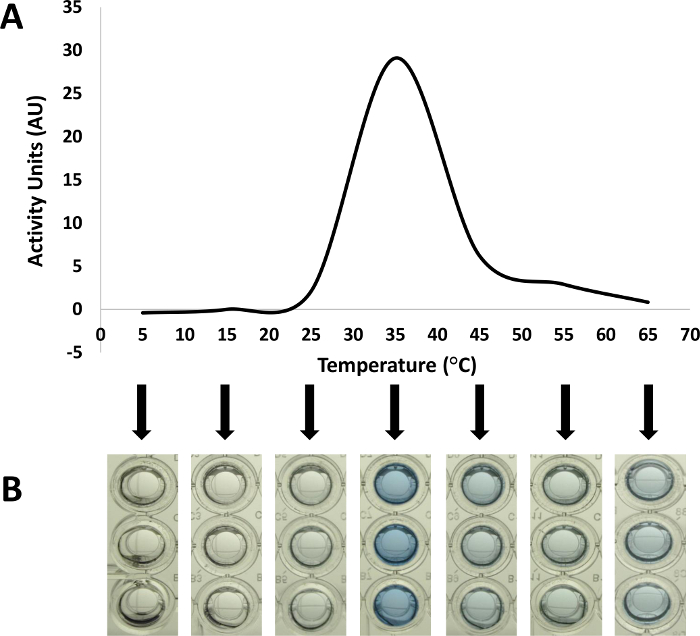
Rycina 3: Optymalna temperatura reakcji dla białkowego środka przeciwdrobnoustrojowego. Wszechstronność testu uwalniania barwnika pozwala na zmianę parametrów fizycznych i chemicznych, takich jak temperatury inkubacji i bufory, w celu określenia ich wpływu na aktywność badanego enzymu 6. Jak zilustrowano na tej rycinie, aktywność nieznanego białkowego środka przeciwdrobnoustrojowego (1 µg) oceniono w PBS przeciwko zabitym ciepłem komórkom Bacillus subtilis znakowanym RBB w zakresie różnych temperatur inkubacji. Wyrażoną jako jednostki aktywności (AU) w części (A), absorbancję produktów związanych z RBB, uwolnionych do supernatantu po hydrolizie, zmierzono przy 595 nm przy użyciu spektrofotometru do mikropłytek. Dla każdej temperatury przeprowadzono reakcje bez dodatku enzymu, aby odjąć efekty uwalniania barwnika wynikające z samej inkubacji w różnych temperaturach. Supernatanty z reakcji odpowiadające każdej temperaturze inkubacji zostały zobrazowane przed pomiarem absorbancji (B). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
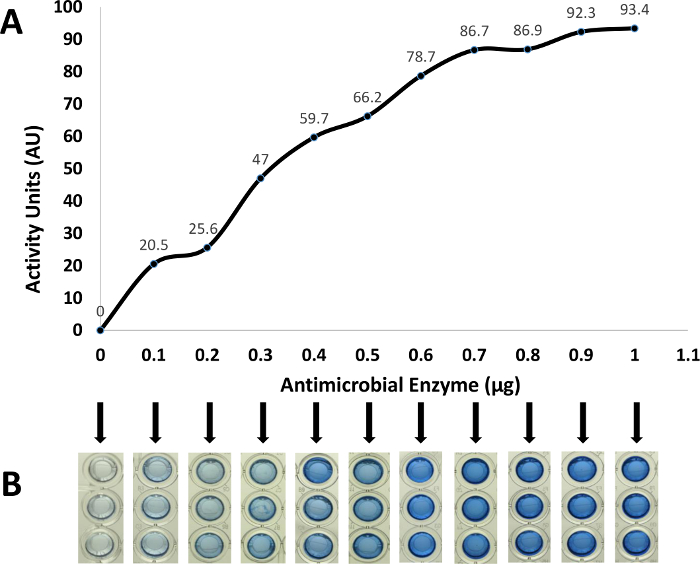
Rysunek 4: Zakres aktywności białka przeciwdrobnoustrojowego. Zakres aktywności nieznanego białka przeciwdrobnoustrojowego zmierzono jako jednostki aktywności po nocnej inkubacji dla 0, 100, 200, 300, 400, 500, 600, 700, 800, 900 i 1,000 ng, wyznaczonych za pomocą testu białkowego BCA (A). W tych reakcjach poziom substratu B. subtilis znakowanego RBB zwiększono tak, aby uzyskać gęstość optyczną 5,0 przy 595 nm, co miało zapewnić, że reakcja z najwyższą ilością enzymu (1,000 ng) nie spowoduje całkowitej hydrolizy całego dostępnego substratu w czasie inkubacji. Do odjęcia efektów uwolnienia barwnika spowodowanego samą inkubacją wykorzystano reakcje kontrolne bez dodatku enzymu. Nadnadpl प्रोत्साny reakcji odpowiadające każdej ilości enzymu zobrazowano przed pomiarami absorbancji (B). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
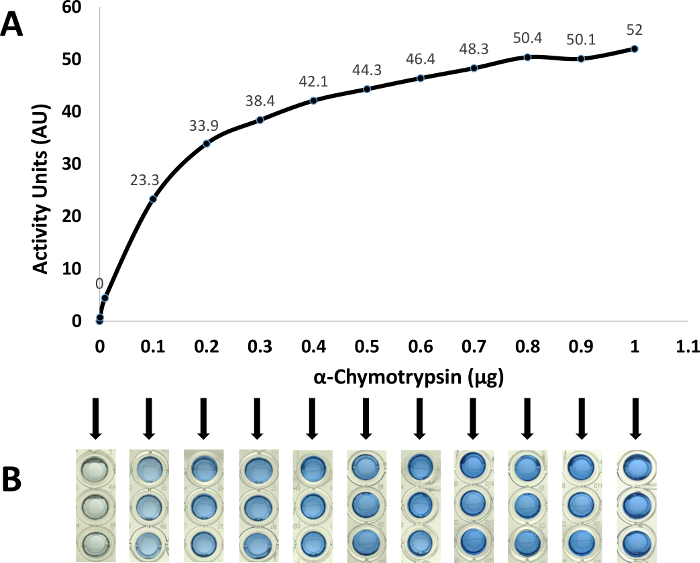
Rycina 5: Zakres aktywności α-chymotrypsyny. Zakres aktywności α-chymotrypsyny mierzono jako jednostki aktywności po nocnej inkubacji dla 0, 100, 200, 300, 400, 500, 600, 700, 800, 900 i 1,000 ng enzymu (A). W przypadku tych reakcji poziom substratu B. subtilis znakowanego RBB zwiększono tak, aby uzyskać gęstość optyczną 5,0 przy 595 nm, co miało zapewnić, że w reakcji z największą ilością enzymu (1,000 ng) nie dojdzie do całkowitej hydrolizy całego dostępnego substratu w czasie inkubacji. Do odjęcia efektów uwalniania barwnika spowodowanego samą inkubacją wykorzystano reakcje kontrolne bez dodatku enzymu. Nadstawy reakcyjne odpowiadające każdej ilości enzymu zobrazowano przed pomiarami absorbancji (B). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Test dyfuzji mikroszkiełkowej i test uwalniania barwnika zapewniają korzyści w wykrywaniu i charakteryzowaniu wcześniej niezidentyfikowanych białkowych środków przeciwdrobnoustrojowych. Te szybkie i czułe metody umożliwiają wysokoprzepustowe badania przesiewowe bibliotek źródłowych organizmów w celu identyfikacji enzymów będących przedmiotem zainteresowania przed zainwestowaniem większych zasobów badawczych. W miarę identyfikowania wysokoprofilowych enzymów docelowych, różne wersje testów wykrywania mogą być wykorzystywane do szybkiego wykrywania enzymu lub do określenia charakterystyki biochemicznej enzymu. Na przykład, podczas wieloetapowego schematu oczyszczania białek, test dyfuzji mikroszkiełkowej może szybko wykryć frakcje zawierające enzym będący przedmiotem zainteresowania. Ponadto optyma reakcji dla enzymu można wyznaczyć, zmieniając reakcyjne i temperatury inkubacji w teście uwalniania barwnika.
Zakres masy enzymu wymagany do wykrycia w teście dyfuzji mikroszkiełkowej jest funkcją charakterystyki enzymu. Ograniczenia wykrywalności testu na ogół wymagają użycia większych ilości enzymu niż w teście uwalniania barwnika. W tym badaniu porównanie granic wykrywalności testu dyfuzji mikroszkiełkowej (rysunek 1) z testem uwalniania barwnika (rysunek 4) wykazało, że test dyfuzji mikrosuwakowej jest mniej czułą techniką niż test uwalniania barwnika. Gdy stężenie enzymu nie stanowi problemu, test mikroszkiełkowy pozwala na szybkie wstępne badanie przesiewowe bibliotek do produkcji białkowych środków przeciwdrobnoustrojowych pod kątem docelowych substratów przy niskim nakładzie pracy i sprzętu. Chociaż wymaga to więcej wysiłku i sprzętu, test uwalniania barwnika jest bardziej czuły i powtarzalny, dając wyniki ilościowe, które umożliwiają porównanie między testami uwalniania barwnika tych samych lub różnych enzymów dla danego substratu. Obie metody można łatwo wykonać w większości laboratoriów mikrobiologicznych bez potrzeby stosowania wysoce specjalistycznego oprzyrządowania. W reprezentatywnych testach enzym kontrolny, α-chymotrypsyna, został wykryty w ilościach tak niskich, jak 100 ng (ryc. 5) przy użyciu testu uwalniania barwnika, podczas gdy minimalna ilość wykryta w teście dyfuzji mikroszkiełkowej wynosiła 1 μg (dane nie pokazane).
Zapewniając użyteczność jako jakościowy test wykrywania enzymów przeciwdrobnoustrojowych, zgłoszono szereg wariantów testu dyfuzyjnego 11,13. Dokonując przeglądu tych testów, test dyfuzji mikroszkiełkowej został opracowany ze względu na jego stosunkowo wysoką czułość jako początkowego badania przesiewowego oraz łatwość obserwacji reakcji. Zmodyfikowano na podstawie pracy Lachica et al. 11, w którym zastosowano nakładki agarozowe do wykrywania wytwarzania nukleaz przez szczepy Staphylococcus aureus, test dyfuzji mikroszkiełkowej działa podobnie do metody immunodyfuzji promieniowej 14 , ponieważ białko dyfunduje ze studzienki do agarozy zawierającej substrat. Metoda immunodyfuzji radialnej hamuje rozszerzanie się strefy immunoprecypitacji, gdy układ osiąga równowagę tworzenia kompleksu między dyfundującym antygenem a przeciwciałem w agarozie. W przeciwieństwie do tego, substrat testu dyfuzji mikroszkiełkowej jest początkowo trawiony przez dyfundujący białko przeciwdrobnoustrojowe w stale rozszerzającej się strefie lizy otaczającej studzienkę. Zwiększanie średnicy strefy trwa do momentu, gdy enzym straci aktywność lub substrat zostanie wyczerpany. Szybkość produkcji strefy lizy zwiększa się wraz ze wzrostem czystości, a tym samym aktywności właściwej enzymu lub stężenia enzymu dodanego do studzienki.
Do ilościowej oceny aktywności enzymatycznej białkowych środków przeciwdrobnoustrojowych w stosunku do zabitego termicznie B. subtilis wybrano test uwalniania barwnika. Testy kolorymetryczne z wykorzystaniem substratów znakowanych barwnikiem R (RBB) Remazol umożliwiają wszechstronną i czułą ocenę aktywności przeciwdrobnoustrojowej białek. Hydroliza enzymatyczna substratu znakowanego RBB powoduje uwolnienie rozpuszczalnych niebieskich produktów, które można łatwo zmierzyć za pomocą spektrofotometru przy długości fali 595 nm. Kilka wariantów testu uwalniania barwnika RBB, opracowanego w celu scharakteryzowania innych białkowych enzymów przeciwdrobnoustrojowych, pokazuje elastyczność tego testu w zastosowaniu z innymi substratami. Na przykład, określając wpływ aktywności bakteriolitycznej lizostafiny, Zhou i wsp. opisali test uwalniania barwnika przy użyciu komórek gronkowcowych barwionych RBB i gronkowcowego peptydoglikanu jako substratów 12. W modyfikacji zastosowania tego testu uwalniania barwnika RBB, zaproponowano znakowany RBB substrat Micrococcus luteus do stosowania jako szybki i czuły środek do diagnozowania i badań przesiewowych w kierunku chorób, takich jak infekcja bakteryjna i obecność raka złośliwego, które można skorelować z poziomami ekspresji ludzkiego lizozymu w surowicy krwi 15. Ponadto substraty komórek bakteryjnych znakowane RBB zostały również wykorzystane w metodzie zymogramu do wykrywania lizozymu 16.
Demonstrujemy obniżoną granicę wykrywalności, wygodę i odtwarzalność testu uwalniania barwnika, co pozwala na szybkie badania przesiewowe w bibliotece pod kątem produkcji enzymów. Modyfikacje testu pozwalają na dalsze ilościowe testy charakterystyki biochemicznej, w tym wpływ temperatury, pH i zasolenia, a także wpływ innych enzymów proteolitycznych na aktywność białek przeciwdrobnoustrojowych 6. Ponadto ilościowy test uwalniania barwnika może być wykorzystany do porównania aktywności wielu enzymów dla danego substratu. Test uwalniania barwnika RBB wykazał przydatność enzymów o aktywności przeciwko polisacharydom, a także charakterystyki i wykrywania białkowych środków przeciwdrobnoustrojowych. Pettersson i Eriksson opisali test do wykrywania aktywności endoglikanazy przy użyciu amorficznych, barwionych RBB kulek polisacharydowych celulozy, ksylanu, mannanu, chityny 17. Rozszerzając te odkrycia, opracowano czułą metodę wykrywania enzymów chitynazy wytwarzanych przez Bacillus thuringiensis Bt-107 przy użyciu koloidalnej chityny znakowanej RBB 18. Z tych i innych badań wyłoniły się komercyjnie dostępne źródła substratów barwionych RBB do stosowania w wykrywaniu aktywności glikolitycznej, w tym przeciwko keratynie, amylopektynie, amylozie, glikogenowi, laminarynie, d-ksylanowi, glukanowi azowo-jęczmiennemu i skrobi.
W tym badaniu wykazujemy użyteczność testu uwalniania barwnika w formacie mikropłytki, zmniejszając objętość substratu i enzymu znakowanego RBB wymaganego do uzyskania wyniku kolorymetrycznego. Jak pokazano na rysunku 4 i rysunku 5, test uwalniania barwnika na mikropłytkach zapewnia niższą granicę wykrywalności niż test dyfuzji mikroszkiełkowej do wykrywania aktywności enzymatycznej. Biorąc pod uwagę szybkie użycie, oszczędność pracy i łatwość interpretacji, test dyfuzji mikroszkiełkowej zapewnia użyteczność w początkowych wysokoprzepustowych badaniach przesiewowych na obecność aktywności przeciwdrobnoustrojowej, a także wskazanie obecności białka przeciwdrobnoustrojowego na dalszych etapach izolacji i oczyszczania białek. Połączenie tych dwóch testów uzupełnia się nawzajem we wstępnych badaniach przesiewowych i ostatecznej charakterystyce nowych białkowych środków przeciwdrobnoustrojowych
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych. MITRE Corporation jest firmą non-profit, która prowadzi wiele centrów badawczo-rozwojowych finansowanych przez rząd federalny (FFRDC).
Podziękowania
Ta praca została sfinansowana przez The MITRE Corporation poprzez MITRE Innovation Program (Projekt 25MSR621-CA). Autorzy pragną podziękować dr Markowi Maybury'emu, dr Richardowi Gamesowi, Jamesowi Pattonowi, dr Ellen Mac Garrigle, dr Carlowi Picconatto i Caroline Gary za ich wsparcie i recenzję tej pracy.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 48-dołkowa mikropłytka z płaskim dnem i pokrywką o niskim parowaniu | Becton Dickinson | 3078 | |
| 96-dołkowa mikropłytka z płaskim dnem (Costar 3595) | Corning, Inc. | 3595 | |
| agaroza | Fisher Scientific | BP162-100 | |
| &alfa;-chymotrypsyna | MP Biomedicals | 215227205 | |
| Bacillus subtilis 168 | Kolekcja kultur typu amerykańskiego | 23857 | |
| C1000 Dotykowy termocykler | Bio-Rad | ||
| świdr korkowy | Humboldt | H-9661 | |
| lizozym | Sigma-Aldrich | L6876-1G | |
| Wzorzec równoważności McFarlanda (2.0) | Mikroszkiełka Fisher Scientific | R20412 | |
| Fisher Scientific | 22-38-103 | ||
| bulion odżywczy | Fisher Scientific | S25959B | |
| peptydoglikan z Bacillus subtilis 168 | Sigma-Aldrich | 69554-10MG-F | |
| sól fizjologiczna buforowana fosforanami (1x) | Teknova | P0200 | |
| Zestaw do oznaczania białek Pierce BCA | Life Technologies | 23227 | |
| Spektrofotometr mikropłytkowy Synergy HT | BioTek Instruments, Inc. | ||
| Remazol brylantowy niebieski barwnik R (RBB) | Sigma-Aldrich | R8001 | |
| Salmonella enterica subsp. enterica | American Type Culture Collection | 10708 | |
| azydek sodu | Fisher Scientific | S227-100 | |
| wodorotlenek sodu (NaOH) | Fisher Scientific | S318-500 | |
| Titer Tops wstępnie przycięta samoprzylepna folia polietylenowa | Diversified Biotechnology | T-TOPS-50 | |
| UltraPure woda destylowana | Invitrogen | 10977-015 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Solution | |||
| roztwór agarozy 50 ml PBS 0,25 g agarozy | Do stopionego roztworu PBS/agarozy dodać 10% azydku sodu | ||
| pożywka bulion 4 g bulion odżywczy 500 ml Woda | |||
| 250 mM roztwór wodorotlenku sodu (NaOH) 1 g NaOH 99 ml Woda | |||
| typu I200 mM Remazol błękit brylantowy R barwnik (RBB) 1,25 g RBB 98,75 ml 250 mM roztwór |
Bibliografia
- Anand, T. P., et al. Antimicrobial activity of marine bacteria associated with sponges from the waters off the coast of South East India. Microbiol Res. 161, 252-262 (2006).
- Tagg, J. R., Dajani, A. S., Wannamaker, L. W. Bacteriocins of gram-positive bacteria. Bacteriol Rev. 40, 722-756 (1976).
- Hibbing, M. E., Fuqua, C., Parsek, M. R., Peterson, S. B. Bacterial competition: surviving and thriving in the microbial jungle. Nat Rev Microbiol. 8, 15-25 (2010).
- Riley, M. A., Gordon, D. M. The ecological role of bacteriocins in bacterial competition. Trends Microbiol. 7, 129-133 (1999).
- Tenover, F. C. Mechanisms of antimicrobial resistance in bacteria. Am J Med. 119, S3-S10 (2006).
- Farris, M. H., Steinberg, A. D. Mitrecin A, an endolysin-like bacteriolytic enzyme from a newly isolated soil streptomycete. Lett Appl Microbiol. 58, 493-502 (2014).
- Dehart, H. P., Heath, H. E., Heath, L. S., Leblanc, P. A., Sloan, G. L. The Lysostaphin Endopeptidase Resistance Gene (epr) Specifies Modification of Peptidoglycan Cross Bridges in Staphylococcus simulans and Staphylococcus aureus. Appl Environ Microbiol. 61, 2811(1995).
- Srivastava, K. K., Siddique, I. H. Quantitative chemical composition of peptidoglycan of Listeria monocytogenes. Infect Immun. 7, 700-703 (1973).
- Heilmann, H. D. On the peptidoglycan of the cell walls of Pseudomonas aeruginosa. Eur J Biochem. 31, 456-463 (1972).
- Schumann, P. Taxonomy of Prokaryotes. Rainey, F., Oren, A. 38, Academic Press. (2011).
- Lachica, R. V., Genigeorgis, C., Hoeprich, P. D. Metachromatic agar-diffusion methods for detecting staphylococcal nuclease activity. Appl Microbiol. 21, 585-587 (1971).
- Zhou, R., Chen, S., Recsei, P. A dye release assay for determination of lysostaphin activity. Anal Biochem. 171, 141-144 (1988).
- Osserman, E. F., Lawlor, D. P. Serum and urinary lysozyme (muramidase) in monocytic and monomyelocytic leukemia. J Exp Med. 124, 921-952 (1966).
- Mancini, G., Carbonara, A. O., Heremans, J. F. Immunochemical quantitation of antigens by single radial immunodiffusion. Immunochemistry. 2, 235-254 (1965).
- Ito, Y., Yamada, H., Imoto, T. Colorimetric assay for lysozyme using Micrococcus luteus labeled with a blue dye, Remazol brilliant blue R, as a substrate. Chem Pharm Bull. (Tokyo). 40, 1523-1526 (1992).
- Hardt, M., Guo, Y., Henderson, G., Laine, R. A. Zymogram with Remazol brilliant blue-labeled Micrococcus lysodeikticus cells for the detection of lysozymes: example of a new lysozyme activity in Formosan termite defense secretions. Anal Biochem. 312, 73-76 (2003).
- Pettersson, B., Eriksson, K. E. A standardized spectrophotometric assay of endoglycanase activities using dyed, amorphous polysaccharides. Anal Biochem. 285, 220-224 (2000).
- Gomez Ramirez, M., Rojas Avelizapa, L. I., Rojas Avelizapa, N. G., Cruz Camarillo, R. Colloidal chitin stained with Remazol Brilliant Blue R, a useful substrate to select chitinolytic microorganisms and to evaluate chitinases. J Microbiol Methods. 56, 213-219 (2004).
Przedruki i uprawnienia
