Celem tego badania jest zidentyfikowanie rozproszonych sieci mózgowych związanych z nagrodą poprzez nakreślenie niezawodnej techniki immunohistologicznej wykorzystującej komórkową aktywację c-fos do pomiaru jednoczesnych zmian w szlakach dopaminy i miejscach końcowych po nowym spożyciu tłuszczu i cukru u szczurów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Jednoczesne wykrywanie aktywacji c-FOS z mezolimbicznych i mezokortykalnych miejsc nagrody dopaminy po naiwnym spożyciu cukru i tłuszczu u szczurów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
To badanie wykorzystuje komórkową aktywację c-fos do oceny wpływu nowego spożycia tłuszczu i cukru na szlaki dopaminy (DA) w mózgu u szczurów. Spożycie cukrów i tłuszczów jest zapośredniczone przez ich wrodzoną atrakcyjność, a także wyuczone preferencje. Dopamina w mózgu, zwłaszcza projekcje mezolimbiczne i mezokorowe z brzusznego obszaru nakrywki (VTA), jest zaangażowana w obie te niewyuczone i wyuczone reakcje. Zaproponowano koncepcję rozproszonych sieci mózgowych, w których oddziałuje na siebie kilka miejsc i systemów przekaźnik/peptyd, aby pośredniczyć w przyjmowaniu smacznego pokarmu, ale istnieją ograniczone dowody empirycznie wykazujące takie działania. W ten sposób spożycie cukru wywołuje uwalnianie DA i zwiększa immunoreaktywność podobną do c-fos (FLI) z poszczególnych stref projekcji VTA DA, w tym jądra półleżącego (NAC), ciała migdałowatego (AMY) i przyśrodkowej kory przedczołowej (mPFC), a także prążkowia grzbietowego. Co więcej, centralne podawanie selektywnych antagonistów receptora DA do tych miejsc w różny sposób zmniejsza nabywanie i ekspresję uwarunkowanych preferencji smakowych wywoływanych przez cukry lub tłuszcze. Jednym z podejść do określenia, czy te miejsca oddziaływały na siebie jako rozproszona sieć mózgowa w odpowiedzi na spożycie cukru lub tłuszczu, byłaby jednoczesna ocena, czy VTA i jego główne strefy projekcji mezotelencefalicznego DA (przedlimbiczne i podlimbiczne mPFC, rdzeń i powłoka NAc, podstawno-boczne i centralno-korowo-przyśrodkowe AMY), a także prążkowie grzbietowe wykazywałyby skoordynowaną i jednoczesną aktywację FLI po podaniu doustnym, Bezwarunkowe spożycie roztworów oleju kukurydzianego (3,5%), glukozy (8%), fruktozy (8%) i sacharyny (0,2%). Podejście to jest udanym pierwszym krokiem w kierunku określenia wykonalności jednoczesnego wykorzystania komórkowej aktywacji c-fos w odpowiednich miejscach w mózgu do badania uczenia się związanego z nagrodą w spożywaniu smacznego pokarmu u gryzoni.
Wprowadzenie
Dopamina w mózgu (DA) została zaangażowana w centralne reakcje na spożycie smacznych cukrów poprzez proponowane hedoniczne1,2, związane z wysiłkiem3 i oparte na nawykumechanizmy działania 4,5. Pierwotny szlak DA zaangażowany w te efekty wywodzi się z brzusznego obszaru nakrywki (VTA) i rzutuje na rdzeń i powłokę jądra półleżącego (NAC), ciało migdałowate podstawno-boczne i środkowo-korowo-przyśrodkowe (AMY) oraz przedlimbiczną i podlimbiczną przyśrodkową korę przedczołową (mPFC) (patrz przeglądy6,7). VTA jest związana ze spożyciem sacharozy8,9, a uwalnianie DA obserwuje się po spożyciu cukru w NAC10-15, AMY16,17 i mPFC18-20. Spożycie tłuszczu stymuluje również uwalnianie DANAC 21, a inna bogata w DA strefa projekcji do prążkowia grzbietowego (ogoniastego-skorupy) jest również związana z karmieniem za pośrednictwem DA22,23. Kelley24-27 zasugerował, że te liczne strefy projekcyjne tego systemu, w którym pośredniczy DA, tworzą zintegrowaną i interaktywną rozproszoną sieć mózgową poprzez rozległe i intymne wzajemne połączenia.
Oprócz zdolności antagonistów receptorów DA D1 i D2 do zmniejszania spożycia cukrów35-37 i tłuszczów38-40, sygnalizacja DA jest również zaangażowana w pośredniczenie w zdolności cukrów i tłuszczów do wytwarzania uwarunkowanych preferencji smakowych (CFP)41-46. Mikroiniekcja antagonisty receptora DA D1 do NAC, AMY lub mPFC47-49 eliminuje nabywanie CFP wywołanego przez glukozę w żołądku. Podczas gdy mikrowstrzyknięcia antagonistów receptora DA D1 lub D2 do mPFC eliminują nabywanie fruktozy-CFP50, nabywanie i ekspresja fruktozy-CFP są w różny sposób blokowane przez antagonistów DA w NAC i AMY51,52.
Technika c-fos53,54 została wykorzystana do zbadania aktywacji neuronalnej wywołanej przez smaczne spożycie i aktywację neuronalną. Termin "aktywacja c-fos" będzie używany w całym manuskrypcie i jest operacyjnie zdefiniowany przez zwiększoną transkrypcję c-Fos podczas depolaryzacji neuronów. Przyjmowanie sacharozy zwiększało immunoreaktywność podobną do fos (FLI) w centralnym jądrze AMY, VTA, a także w powłoce, ale nie w rdzeniu NAC55-57. Podczas gdy spożycie sacharozy u szczurów karmiących pozorami znacznie zwiększyło FLI w AMY i NAC, ale nie w VTA58, dożołądkowe wlewy sacharozy lub glukozy znacznie zwiększyły FLI w NAC oraz jądrach centralnych i podstawno-bocznych AMY59,60. Wielokrotne dodawanie sacharozy do zaplanowanego dostępu do karmy zwiększało FLI w mPFC, a także w powłoce NAC i rdzeniu61. Paradygmat obniżania stężenia sacharozy ujawnił, że największy wzrost FLI wystąpił w podstawno-bocznym AMY i NAC, ale nie w VTA62. Po kondycjonowaniu, wygaśnięcie naturalnych zachowań nagrody związanych z cukrem zwiększyło FLI w podstawno-bocznym AMY i NAC63. Co więcej, połączenie dostępności cukru z tonem spowodowało, że ton następnie zwiększył poziom FLI w podstawno-bocznym AMY64. Spożycie dużej ilości tłuszczu zwiększyło również FLI w miejscach NAC i mPFC65-67.
Większość wcześniej cytowanych badań dotyczyła wpływu cukru i tłuszczu na aktywację c-fos w pojedynczych miejscach, które nie dostarczają informacji na temat identyfikacji rozproszonych sieci mózgowych związanych z nagrodą24-27. Co więcej, wiele badań nie określiło również względnego wkładu podobszarów NAC (rdzeń i powłoka), AMY (podstawno-boczny i centralno-korowo-przyśrodkowy) oraz mPFC (przedlimbiczny i infralimbiczny), które mogłyby być potencjalnie zbadane przez przewagę doskonałej rozdzielczości przestrzennej, pojedynczej komórki w mapowaniu c-Fos68. Nasze laboratorium69 niedawno wykorzystało aktywację c-fos i jednocześnie zmierzyło zmiany w szlaku VTA DA i jego strefach projekcji (NAC, AMY i mPFC) po spożyciu nowych tłuszczów i cukrów u szczurów. W niniejszym badaniu opisano kroki proceduralne i metodologiczne mające na celu jednoczesną analizę, czy ostre narażenie na sześć różnych roztworów (olej kukurydziany, glukoza, fruktoza, sacharyna, woda i kontrola emulsji tłuszczowej) w różny sposób aktywowałoby FLI w podobszarach NAC, AMY, mPFC, a także w prążkowiu grzbietowym. To jednoczesne wykrycie różnic pozwoliło potwierdzić znaczący wpływ na FLI w każdym miejscu i określić, czy zmiany w jednym konkretnym miejscu korelują ze zmianami w powiązanych miejscach, zapewniając w ten sposób wsparcie dla rozproszonej sieci mózgowej24-27. Procedury te sprawdzały, czy VTA, mPFC przedlimbiczny i podlimbiczny, rdzeń i powłoka NAC oraz podstawno-boczny i centralno-korowo-przyśrodkowy AMY), a także prążkowie grzbietowe będą wykazywać skoordynowaną i jednoczesną aktywację FLI po doustnym, bezwarunkowym spożyciu roztworów glukozy (8%), fruktozy (8%), oleju kukurydzianego (3,5%) i sacharyny (0,2%).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Niniejsze protokoły eksperymentalne zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Korzystania ze Zwierząt, potwierdzając, że wszystkie badane osobniki oraz procedury są zgodne z wytycznymi National Institutes of Health dotyczącymi opieki i korzystania ze zwierząt laboratoryjnych.
1. Badani
- Nabyć i/lub wyhodować samce szczurów Sprague-Dawley (260 - 30 g).
- Utrzymywać szczury indywidualnie w klatkach z drucianej siatki. Stosować 12-godzinny cykl światła i ciemności, zapewniając dostęp do paszy dla szczurów i wody ad libitum.
- Losowo przydzielić odpowiednią wielkość próby (np. n ≈ 6 - 8) do grup.
2. Aparatura testowa i procedury przyjęcia
- Użyć kalibrowanych probówek wirówkowych z gumowymi korkami i metalną rurką ssącą pod kątem 45°, aby zapewnić dokładny pomiar (± 0,1 ml) podawanych roztworów. Przymocować je do klatek macierzystych za pomocą napiętej metalowej sprężyny, aby umożliwić widoczność skali kalibracyjnej.
- Ograniczyć racje żywieniowe szczurów (~ 15 g/dobę), aby zredukować ich masę ciała do 85% masy początkowej w celu zwiększenia motywacji do spożywania roztworów. Uwaga: redukcja masy ciała powinna trwać od 3 do 5 dni.
- Podawać roztwory wstępne (10 ml) 0,2% sacharyny przez cztery dni w ramach jednejgodzinnych sesji, aby zmaksymalizować prawdopodobieństwo, że szczury będą próbować kolejnych roztworów testowych z krótkim (poniżej 1 min) czasem latencji.
- Potwierdzić przepływ przez probówkę wirówkową, wylewając kilka kropel.
- Ważić probówki przed i po każdej sesji, aby uzyskać pomiar spożycia.
- Piątego dnia przeprowadzić test spożycia w podgrupach otrzymujących jeden z sześciu roztworów (10 ml, 1 h): a) wodę, b) 0,2% sacharynę o nowym smaku (0,05% aromat wiśniowy), c) 8% fruktozę, d) 8% glukozę, e) 3,5% olej kukurydziany zawieszony w 0,3% gumie ksantanowej oraz f) 0,3% gumie ksantanowej.
- Upewnić się, że roztwory składników odżywczych są izokaloryczne; w związku z tym stężenie 3,5% oleju kukurydzianego jest izokaloryczne względem 8% roztworów cukrów.
- Upewnić się, że szczury próbują roztworów z krótkim czasem latencji (poniżej 1 min). Jeśli ten warunek nie zostanie spełniony, należy wykluczyć zwierzę z badania.
3. Przygotowanie tkanki
- Zanurz każde zwierzę w narkozie poprzez doszpikowe wstrzyknięcie pentobarbitalu 90 min po początkowej ekspozycji na każdy roztwór testowy. Potwierdź, że zwierzęta są prawidłowo znieczulone, wykazując brak reakcji na odruchy, takie jak wycofanie łapy po uciśnięciu, mruganie po bezpośrednim nacisku na rogówkę lub potrząsanie głową po głębokiej stymulacji małżowiny usznej.
- Przeprowadź perfuzję transkardialną każdego zwierzęcia zgodnie z wcześniejszym opisem69.
- Zanurz szczury w narkozie za pomocą przedawkowania pentobarbanu sodu (65 mg/kg), usuń klatkę piersiową i odsłoń klatkę piersiową, aby uzyskać swobodny dostęp do serca69.
- Wprowadź igłę do wierzchołka lewej komory serca i przetnij żyłę główną. Podaj roztwór buforu fosforanowego (PBS, ~ 180 ml), a następnie buforowany fosforanowy utrwalacz zawierający 4% paraformaldehydu (~ 180 ml).
- Upewnij się, że perfuzja zwierzęcia przebiega prawidłowo, sprawdzając, czy płyn wydostaje się z innych jam, takich jak nos, jama ustna i okolice genitalne. Uwaga: Prawidłowe utrwalenie paraformaldehydem będzie temu towarzyszyć silne ruchy mięśni. Jeśli tak się nie stanie, skoryguj położenie igły aż do wystąpienia tej reakcji.
- Szybko wyjmij mózg z czaszki, odcinając futro i skórę od kości. Użyj kleszczy kostnych (rongeurs), aby roztrzaskać i usunąć kość z mózgu, przesuwając się od tyłu do przodu. Pracuj początkowo w obszarze poniżej i za móżdżkiem, upewniając się, że kleszcze znajdują się między kością a oponą miękką. Po usunięciu górnej i bocznych części czaszki użyj małej szpatułki, aby unieść mózg z podstawy, i przetnij nerwy czaszkowe małymi nożyczkami. Zachowaj ostrożność, aby nie uszkodzić mózgu podczas próby usunięcia kości.
- Utrwal mózgi w 4% roztworze paraformaldehydu przez noc w temperaturze 4 °C. Przełóż mózgi do roztworu 30% sacharozy i 70% PBS w temperaturze pokojowej, aż opadną na dno pojemnika.
- Zablokuj mózg
- Usuń przednią część mózgu, wykonując cięcie poprzeczne zaopasznocznio względem opłazki węchowej.
- Usuń tylną część mózgu, wykonując cięcie poprzeczne na poziomie móżdżku i mostu.
- Zamocuj mózg w płaszczyźnie wieńcowej, ustalając tylną część na stoliku mikrotomu ślizgowego, i wykonaj cięcia wieńcowe (40 µm) przez mPFC (+2,86 – +2,20 mm rostralnie względem bregmy), jądro i otoczkę NAC oraz grzbietowy prążek (+1,76 – +1,60 mm rostralnie względem bregmy), AMY (-2,12 – -2,92 mm kaudalnie względem bregmy) oraz VTA (-5,20 – -5,60 mm kaudalnie względem bregmy). W celu orientacji skorzystaj z atlasu mózgu szczura70.
- Zbierz swobodnie pływające przekroje do poszczególnych studzienek płytki 24-dołkowej wypełnionej PBS do późniejszej analizy immunohistochemicznej71. Użyj Parafilmu do uszczelnienia płytki, aby zapobiec odparowaniu PBS z pojemnika i wysychaniu tkanki mózgowej. Przechowuj tkankę mózgu w temperaturze 4 °C.
4. Procedury c-fos (Adaptacja z 71)
- Każdy przekrój inkubować przez 1 h w 5 ml 5% normalnego surowicy koziej i 0,2% Triton x-100 w PBS.
- Przetraktowane przekroje inkubować z przeciwciałami pierwszorzędowymi (królicze anty-c-fos, 1:5 0) przez 36 h w temperaturze 4 °C w dołkach zawierających 1 ml PBS.
- Przekroje płukać 3x w PBS (5 ml), po 10 min każde płukanie.
- Inkubować z przeciwciałami drugorzędowymi (biotynylizowane kozie anty-królicze; 1:20) przez 2 h w temperaturze pokojowej w dołkach zawierających 1 ml PBS.
- Każdy przekrój płukać 3x w PBS (5 ml), po 10 min każde płukanie.
- Wypłukane przekroje inkubować przez 2 h w dostępnej handlowo mieszaninie awidyny i peroksydazy chrzanowej z zestawu składającego się z Awidyny DH (10 µl) i biotynylizowanej peroksydazy chrzanowej H (10 µl) w 5 ml PBS.
- Ponownie płukać przekroje 3x w PBS (5 ml), po 10 min każde płukanie.
- Poddać przekroje reakcji z 0,05% diaminobenzydyną (DAB) w obecności 0,0015% H2O2 przez 5–10 min, zależnie od reaktywności tkanki, w dołkach zawierających 5 ml roztworu DAB.
- Przeprowadzić podwójne znakowanie przekrojów VTA. Inkubować je z przeciwciałem przeciwko hydroksylazie tyrozynowej (TH) (królicze anty-szczurze TH, 1:2 0) w PBS (5 ml) przez noc w temperaturze 4 °C.
- Przekroje płukać 3x w PBS (5 ml), po 10 min każde płukanie.
- Inkubować z przeciwciałami drugorzędowymi (biotynylizowane kozie anty-królicze; 1:200) w PBS (5 ml) przez 2 h w temperaturze pokojowej.
- Przekroje płukać 3x w PBS (5 ml), po 10 min każde płukanie.
- Wizualizować przeciwciała, stosując kompleks przeciwciała drugorzędowego z peroksydazą. Poddać reakcji z kombinacją 0,05% DAB i 0,3% roztworu siarczanu niklu przez 5–10 min, zależnie od reakcji tkanki, w dołkach zawierających 5 ml roztworu DAB/NiCl.
- Upewnić się, że roztwór DAB ma mleczno-jasnozielony kolor w wyniku reakcji z 0,3% siarczanem niklu. Jeśli roztwór będzie zbyt zielony, reakcja będzie zbyt ciemna.
- Zamontować wszystkie przekroje na szkiełkach powlekanych żelatyną. Pozostawić do wyschnięcia na noc, a następnie przykryć szkiełkami dekrywacyjnymi, stosując kilka kropli roztworu na bazie toluenu (TBS).
- Oznaczyć szkiełka kodem w taki sposób, aby warunki eksperymentalne były nieznane obserwatorom.
5. Określanie liczby komórek immunoreaktywnych dla c-fos
- Wyznacz pary bezstronnych obserwatorów do policzenia neuronów Fos-dodatnich w następujących obszarach zainteresowania (ROI): przedlimbicznym mPFC, podlimbicznym mPFC, rdzeniu NAC, powłoce NAC, jądrach bocznych AMY, centralno-korowo-przyśrodkowej AMY, grzbietowym prążkowiu oraz VTA. Określ, czy immunoreaktywność c-Fos występowała w komórkach TH+ i TH- w VTA. Rycina 1 przedstawia zrzut ekranu obrazu NAC z mikroskopu.
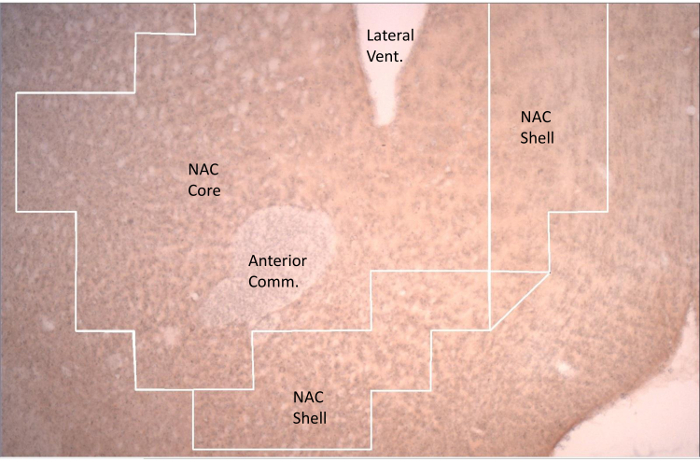
Rycina 1. Reprezentatywny przekrój jądra półleżącego (NAC) z zaznaczonymi obszarami zainteresowania ograniczonymi siatką, która służy do zliczania białka c-fos. Skorupa jądra półleżącego (NAC) znajduje się przyśrodkowo i brzusznie w stosunku do rdzenia jądra półleżącego (NAC). Rdzeń NAC otacza komisurę przednią (Anterior Comm.). Widoczny jest brzuszny zasięg komory bocznej (Lateral Vent.). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Przeanalizuj co najmniej trzy reprezentatywne przekroje dla każdego obszaru wspólnego dla wszystkich zwierząt we wszystkich warunkach testowych.
- Użyj oprogramowania i mikroskopu optycznego, aby przeanalizować cały region dla każdego ROI poprzez obrysowanie jego konturu (Rysunek 1).
- Dla danego obszaru otwórz aplikację, kliknij rozwijane menu akwizycji i wybierz „Live Image”. Ustaw ostrość na ROI i kliknij ekran, aby ustanowić punkt odniesienia. Następnie obrysuj wybrany obszar mózgu, korzystając z siatki jako prowadnicy. Po zakończeniu obrysowywania policz komórki (kroki 5.3.1.1 - 5.3.1.3).
- Dwukrotnie kliknij ikonę oprogramowania. W pasku menu wybierz „Acquisition”, a następnie „Live Image”. Ustaw ostrość na ROI i kliknij ekran, aby ustanowić punkt odniesienia.
- W pasku narzędzi siatki kliknij „Display Grid” oraz „Use grid labels”. Obrysuj ROI zgodnie z wcześniej ustalonym konturem.
- Policz wszystkie komórki w każdym obszarze ROI, wybierając znak „+” w lewym pasku bocznym, aby prowadzić licznik komórek c-fos. Klikaj pojedynczo w każdą komórkę, aby zarejestrować liczbę. Komórkę uznaje się za pozytywną pod kątem c-fos, gdy widoczny jest wyraźny ciemnoczerwony okrąg (Rysunek 1).
- Powtórz ten proces dla każdego obszaru.
- Zapisz wyniki w notatniku laboratoryjnym oraz w komputerze do późniejszej analizy. W pasku menu wybierz „File”, a następnie „Save Data File”, aby zapisać obrys i liczbę komórek.
- Dla danego obszaru otwórz aplikację, kliknij rozwijane menu akwizycji i wybierz „Live Image”. Ustaw ostrość na ROI i kliknij ekran, aby ustanowić punkt odniesienia. Następnie obrysuj wybrany obszar mózgu, korzystając z siatki jako prowadnicy. Po zakończeniu obrysowywania policz komórki (kroki 5.3.1.1 - 5.3.1.3).
- Upewnij się, że niezależna zgodność oceniających (wykorzystując korelację wyników zliczeń) dwóch niepoinformowanych obserwatorów dla każdego przekroju w każdym ROI zawsze przekracza 0,8.
6. Statystyka
- Oceń bazowe spożycie sacharyny w ciągu pierwszych czterech dni, stosując jednoczynnikową analizę wariancji (ANOVA) z powtarzanymi pomiarami w celu porównania spożycia sacharyny w dniach 1, 2, 3 i 469.
- Porównaj spożycie sacharyny (dzień 4) ze spożyciem testowym (dzień 5) w sześciu grupach, stosując dwuczynnikową analizę ANOVA dla bloków randomizowanych69.
- Zastosuj test Tukeya (p < 0,05), aby określić poszczególne istotne statystycznie efekty69.
- Określ niezawodność międzyoceniającą, a następnie wykorzystaj wyniki wspólnego obserwatora.
- Oblicz średnią liczbę komórek c-fos dla trzech reprezentatywnych przekrojów dla każdego obszaru69.
- Przeprowadź jednoczynnikową analizę ANOVA aktywacji c-fos indukowanej spożyciem sześciu roztworów (3,5% oleju kukurydzianego, 8% glukozy, 8% fruktozy, 0,2% aromatyzowanej sacharyny, kontroli z gumą ksantanową oraz wody) dla przyobwodowej mPFC69.
- Powtórz równoległe analizy dla sześciu grup w odniesieniu do podobwodowej mPFC, jądra NAC, powłoki NAC, bocznej części AMY, centralno-koro-medialnej części AMY, VTA oraz grzbietowego prążkowia. Zastosuj test Tukeya (p < 0,05), aby wykryć poszczególne istotne statystycznie efekty69.
- Porównaj spożycie oleju kukurydzianego zarówno ze spożyciem wody, jak i spożyciem środka zawieszającego, gumy ksantanowej. Porównaj spożycie fruktozy i glukozy zarówno ze spożyciem wody, jak i spożyciem słodzika bezkalorycznego, sacharyny.
- Ustal, czy zaobserwowano istotne zależności między spożyciem roztworów a aktywacją c-fos w każdym z obszarów, stosując korelację r Bonferroniego (p < 0,05).
- Systematycznie porównaj liczbę komórek c-fos w przyobwodowej i podobwodowej korze przedczołowej dla każdego zwierzęcia w grupie 3,5% oleju kukurydzianego.
- Powtórz systematyczne równoległe analizy dla każdej pary z sześciu obszarów (VTA, grzbietowe prążkowie, podobwodowa mPFC, przyobwodowa mPFC, jądro NAC, powłoka NAC, boczna część AMY, centralno-koro-medialna część AMY) dla 3,5% oleju kukurydzianego.
- Powtórz systematyczne równoległe analizy tych sześciu obszarów dla pozostałych pięciu eksperymentalnych warunków spożycia (8% glukozy, 8% fruktozy, 0,2% aromatyzowanej sacharyny, kontroli z gumą ksantanową oraz wody).
- Wykorzystaj fakt, że te same zwierzęta w obrębie jednej grupy roztworu były oceniane we wszystkich obszarach, określając istotne zależności między aktywacją c-fos w różnych roztworach oraz w obrębie każdego roztworu, stosując korelację r Bonferroniego (p < 0,05).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wszystkie reprezentatywne wyniki opisane poniżej zostały opublikowane wcześniej69 i są tutaj przedstawione ponownie, aby wesprzeć „dowód koncepcji” wskazujący na skuteczność tej techniki.
Spożycie roztworów
W ciągu pierwszych czterech dni u wszystkich zwierząt zaobserwowano istotne różnice w bazowym spożyciu sacharyny (F(3,108) = 57.27, p < 0.01), przy czym spożycie (Dzień 1: 1.3 (± 0.2) ml; Dz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Celem badania było ustalenie, czy źródło (VTA) i cele projekcji przodomózgowia (NAC, AMY, mPFC) neuronów związanych z nagrodą DA były jednocześnie aktywowane po nowym spożyciu tłuszczu i cukru u szczurów przy użyciu techniki komórkowej c-fos. Niniejsze badanie jest szczegółowym opisem protokołów badania opublikowanego wcześniej69. Postawiono hipotezę, że VTA, jego główne strefy projekcyjne do przedlimbicznego i podlimbicznego mPFC, rdzeń i powłoka NAC oraz podstawno-boczny i centralno-korowo-przyśrodkowy AMY, ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają konkurencyjnych interesów finansowych.
Podziękowania
Podziękowania dla Diany Icaza-Culaki, Cristal Sampson i Theologia Karagiorgis za ich ciężką pracę nad tym projektem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Equipment | |||
| Sprague-Dawley szczury | Charles River Laboratories | CD-1 | |
| Klatki z siatki drucianej | Produkty laboratoryjne, Seaford, DE | Stojak | |
| Rat Chow | PMI Nutrition International | 5001 | |
| Taut Metal Spring | Lab Products, Seaford, DE | n/a | |
| Waga do ważenia szczurów | Fisher Scientific Company | n/a | |
| Probówki wirówkowe Nalgene | Produkty laboratoryjne, Seaford, DE | 10-0501 | |
| Gumowy korek | Produkty laboratoryjne, Seaford, DE | n/a | |
| Metal Sippers | Lab Products, Seaford, DE | nie dotyczy | |
| sacharyny | Sigma Chemical Co | 82385-42-0 | |
| Kool-Aid, wiśnia | Kool-Aid | Komercyjny | |
| Kool-Aid, winogrono | Kool-Aid | Komercyjna | |
| fruktoza | Sigma Chemical Co | F0127 | |
| Glukoza | Sigma Chemical Co | G8270 | |
| Olej kukurydziany | Mazzola | Komercyjna | |
| guma ksantanowa | Sigma Chemical Co | 11138-66-2 | |
| Przesuwny mikrotom | Microm International | n/a | |
| Neurolucida Camera | MBF Bioscience | Aplikacja | |
| Szkiełka powlekane żelatyną | Fisher Scientific Company | 12-550-343 | |
| Szkło nakrywkowe | Fisher Scientific Company | 12-545-M | |
| Złote nylonowe szczotki | Loew-Cornell | 2037 | |
| Naturalne sobole do włosów | Loew-Cornell | 2022 | |
| Płytki 24-dołkowe | Fisher Scientific | 3527 | |
| Płytki 6-dołkowe | Fisher Scientific | 3506 | |
| Butelki Pyrex 1 L | Fisher Scientific | 1395-1L | |
| Wkładka tkankowa (sitko do tkanek) | Pipety Fisher Scientific | 7200214 | |
| Eagle | World Precision Instruments | E10 dla 1-10μ l | |
| Pipety Eagle | World Precision Instruments | E100 dla 20-100μ l | |
| Pipety Eagle | World Precision Instruments | E200 dla 50-200μ l | |
| Pipety Eagle | World Precision Instruments | E1000 dla 100-1000μ l | |
| Pipety Eagle | World Precision Instruments | E5000 dla 1000-5000μ l | |
| Uniwersalne końcówki .1-10 μ l | Światowe instrumenty precyzyjne | 500192 | |
| końcówki uniwersalne 5-200 i #956; l | Światowe instrumenty precyzyjne | 500194 | |
| końcówki uniwersalne 500-5,000 μ l | World Precision Instruments | 500198 | |
| Blade Vibroslice 100 | World Precision Instruments | BLADE | |
| DPX Medium montażowe | Mikroskopia elektronowa | 13510 | |
| Probówki wirówkowe 15 ml | Biologix Research Co. | 10-0501 | |
| Pudełka na slajdy | Biologix Research Co. | 41-6100 | |
| Wytrząsarka orbitalna | Korporacja Madell | Łodzie wagowe ZD-9556 | |
| Fisher Scientific | 02-202-100 | ||
| Pipety jednorazowe 5 ml | Fisher Scientific | 13-711-5AM | |
| Stereo Investigator Software | Micro Bright Field | Software aplikacja | |
| Nazwa | Firma | Numer katalogowy | Uwagi |
| odczynniki | |||
| Paraformaldehyde granulowany | Fisher Scientific | 19210 | |
| NaCl | Fisher Scientific | S271-1 | |
| Monozasadowy Monozasadowy Sodowy Pfhatowy | Fisher | Scientific S468-500 | |
| Fosforan sodu Difazowy | Fisher Scientific | BP332-500 | |
| Wodór Nadtlenek | Fisher Scientific | H324-500 | |
| SafeClear II | Fisher Scientific | 23-044-192 | |
| Metanol | Fisher Scientific | A412-1 | |
| Normalna surowica kozia | Wektor | S-1000 | |
| Biotynylowany anty-króliczy IgG (H + L) | Vector | BA-1000 | |
| ABC Zestaw ABC Peroksydaza Standardowy | wektor | PK-4000 | |
| Anti-cFos (Ab-5) Królik | EMD chem/Cal Biochem | PC38 | |
| Triton X 100 | SigmaAldrich | X-100 | |
| 3,3' tetrachlorowodorek diaminobenzydyny | SigmaAldrich | D5905 | |
| Wodorotlenek sodu | SigmaAldrich | 5881 | |
| Pierwotne przeciwciało TH | EMD Milipore | AB152 | |
| Euthosol | Virbac AH |
Bibliografia
- Koob, G. F. Neural mechanisms of drug reinforcement. Ann. N.Y. Acad. Sci. 654, 171-191 (1992).
- Wise, R. A. Role of brain dopamine in food reward. Philos. Trans. R. Soc. Lond. B. Biol. Sci. 361, 1149-1158 (2006).
- Salamone, J. D., Correa, M. The mysterious motivational functions of mesolimbic dopamine. Neuron. 76, 470-485 (2012).
- Horvitz, J. C., Choi, W. Y., Morvan, C., Eyny, Y., Balsam, P. D. A "good parent" function of dopamine: transient modulation of learning and performance during early stages of training. Ann. N.Y. Acad. Sci. 1104, 270-288 (2007).
- Wickens, J. R., Horvitz, J. C., Costa, R. M., Killcross, S. Dopaminergic mechanisms in actions and habits. J. Neurosci. 27, 8181-8183 (2007).
- Bjorklund, A., Dunnett, S. B. Dopamine neuron systems in the brain: an update. Trends Neurosci. 30, 194-202 (2007).
- Swanson, L. W. The projections of the ventral tegmental area and adjacent regions: a combined fluorescent retrograde tracer and immunofluorescence study in the rat. Brain Res. Bull. 9, 321-353 (1982).
- Cacciapaglia, F., Wrightman, R. M., Careli, R. M. Rapid dopamine signaling differentially modulates distinct microcircuits within the nucleus accumbens during sucrose-directed behavior. J. Neurosci. 31, 13860-13869 (2011).
- Martinez-Hernandez, J., Lanuza, E., Martinez-Garcia, F. Selective dopaminergic lesions of the ventral tegmental area impair preference for sucrose but not for male sex pheromones in female mice. Eur. J. Neurosci. 24, 885-893 (2006).
- Bassareo, V., Di Chiara, G. Differential influence of associative and nonassociative learning mechanisms on the responsiveness of prefrontal and accumbal dopamine transmission to food stimuli in rats fed ad libitum. J. Neurosci. 17, 851-861 (1997).
- Bassareo, V., Di Chiara, G. Differential responsiveness of dopamine transmission to food-stimuli in nucleus accumbens shell/core compartments. Neurosci. 89, 637-641 (1999).
- Cheng, J., Feenstra, M. G. Individual differences in dopamine efflux in nucleus accumbens shell and core during instrumental conditioning. Learn. Mem. 13, 168-177 (2006).
- Genn, R. F., Ahn, S., Phillips, A. G. Attenuated dopamine efflux in the rat nucleus accumbens during successive negative contrast. Behav. Neurosci. 118, 869-873 (2004).
- Hajnal, A., Norgren, R. Accumbens dopamine mechanisms in sucrose intake. Brain Res. 904, 76-84 (2001).
- Hajnal, A., Smith, G. P., Norgren, R. Oral sucrose stimulation increases accumbens dopamine in the rat. Am. J. Physiol. 286, R31-R37 (2003).
- Bassareo, V., Di Chiara, G. Modulation of feeding-induced activation of mesolimbic dopamine transmission by appetitive stimuli and its relation to motivational state. Eur. J. Neurosci. 11, 4389-4397 (1999).
- Hajnal, A., Lenard, L. Feeding-related dopamine in the amygdala of freely moving rats. Neuroreport. 8, 2817-2820 (1997).
- Bassareo, V., De Luca, M. A., Di Chiara, G. Differential expression of motivational stimulus properties by dopamine in nucleus accumbens shell versus core and prefrontal cortex. J. Neurosci. 22, 4709-4719 (2002).
- Feenstra, M., Botterblom, M. Rapid sampling of extracellular dopamine in the rat prefrontal cortex during food consumption, handling, and exposure to novelty. Brain Res. 742, 17-24 (1996).
- Hernandez, L., Hoebel, B. G. Feeding can enhance dopamine turnover in the prefrontal cortex. Brain Res. Bull. 25, 975-979 (1990).
- Liang, N. C., Hajnal, A., Norgren, R. Sham feeding corn oil increases accumbens dopamine in the rat. Am. J. Physiol. Regul. Integr. Comp. Physiol. 291, R1236-R1239 (2006).
- Dunnett, S. B., Iversen, S. D. Regulatory impairments following selective kainic acid lesions of the neostriatum. Behav. Brain Res. 1, 497-506 (1980).
- Salamone, J. D., Zigmond, M. J., Stricker, E. M. Characterization of the impaired feeding behavior in rats given haloperidol or dopamine-depleting brain lesions. Neurosci. 39, 17-24 (1990).
- Kelley, A. E. Ventral striatal control of appetitive motivation: role in ingestive behavior and reward-related learning. Neurosci. Biobehav. Rev. 27, 765-776 (2004).
- Kelley, A. E. Memory and addiction: shared neural circuitry and molecular mechanisms. Neuron. 44, 161-179 (2004).
- Kelley, A. E., Baldo, B. A., Pratt, W. E. A proposed hypothalamic-thalamic-striatal axis for the integration of energy balance, arousal and food reward. J. Comp. Neurol. 493, 72-85 (2005).
- Kelley, A. E., Baldo, B. A., Pratt, W. E., Will, M. J. Corticostriatal-hypothalamic circuitry and food motivation: integration of energy, action and reward. Physiol. Behav. 86, 773-795 (2005).
- Berendse, H. W., Galis-de-Graaf, Y., Groenewegen, H. J. Topographical organization and relationship with ventral striatal compartments of prefrontal corticostriatal projections in the rat. J. Comp. Neurol. 316, 314-347 (1992).
- Brog, J. S., Salyapongse, A., Deutch, A. Y., Zahm, D. S. The patterns of afferent innervation of the core and shell in the "accumbens" part of rat ventral striatum: immunohistochemical detection of retrogradely transported fluoro-gold. J. Comp. Neurol. 338, 255-278 (1993).
- McDonald, A. J. Organization of amygdaloid projections to the prefrontal cortex and associated stritum in the rat. Neurosci. 44, 1-14 (1991).
- McGeorge, A. J., Faull, R. L. The organization of the projection from the cerebral cortex to the striatum in the rat. Neurosci. 29, 503-537 (1989).
- Sesack, S. R., Deutch, A. Y., Roth, R. H., Bunney, B. S. Topographical organization of the efferent projections of the medial prefrontal cortex in the rat: an anterograde tract-tracing study with Phaseolus vulgaris leucoagglutinin. J. Comp. Neurol. 290, 213-242 (1989).
- Wright, C. I., Beijer, A. V., Groenewegen, H. J. Basal amygdaloid complex afferents to the rat nucleus accumbens are compartmentally organized. J. Neurosci. 16, 1877-1893 (1996).
- Wright, C. I., Groenewegen, H. J. Patterns of convergence and segregation in the medial nucleus accumbens of the rat: relationships of prefrontal cortical, midline thalamic and basal amygdaloid afferents. J. Comp. Neurol. 361, 383-403 (1995).
- Geary, N., Smith, G. P. Pimozide decreases the positive reinforcing effect of sham fed sucrose in the rat. Pharmacol. Biochem. Behav. 22, 787-790 (1985).
- Muscat, R., Willner, P. Effects of selective dopamine receptor antagonists on sucrose consumption and preference. Psychopharmacol. 99, 98-102 (1989).
- Schneider, L. H., Gibbs, J., Smith, G. P. D-2 selective receptor antagonists suppress sucrose sham feeding in the rat. Brain Res. Bull. 17, 605-611 (1986).
- Baker, R. W., Osman, J., Bodnar, R. J. Differential actions of dopamine receptor antagonism in rats upon food intake elicited by mercaptoacetate or exposure to a palatable high-fat diet. Pharmacol. Biochem. Behav. 69, 201-208 (2001).
- Rao, R. E., Wojnicki, F. H., Coupland, J., Ghosh, S., Corwin, R. L. Baclofen, raclopride and naltrexone differentially reduce solid fat emulsion intake under limited access conditions. Pharmacol. Biochem. Behav. 89, 581-590 (2008).
- Weatherford, S. C., Smith, G. P., Melville, L. D. D-1 and D-2 receptor antagonists decrease corn oil sham feeding in rats. Physiol. Behav. 44, 569-572 (1988).
- Azzara, A. V., Bodnar, R. J., Delamater, A. R., Sclafani, A. D1 but not D2 dopamine receptor antagonism blocks the acquisition of a flavor preference conditioned by intragastric carbohydrate infusions. Pharmacol. Biochem. Behav. 68, 709-720 (2001).
- Baker, R. M., Shah, M. J., Sclafani, A., Bodnar, R. J. Dopamine D1 and D2 antagonists reduce the acquisition and expression of flavor-preferences conditioned by fructose in rats. Pharmacol. Biochem. Behav. 75, 55-65 (2003).
- Dela Cruz, J. A., Coke, T., Icaza-Cukali, D., Khalifa, N., Bodnar, R. J. Roles of NMDA and dopamine D1 and D2 receptors in the acquisition and expression of flavor preferences conditioned by oral glucose in rats. Neurobiol. Learn. Mem. 114, 223-230 (2014).
- Dela Cruz, J. A., et al. Roles of dopamine D1 and D2 receptors in the acquisition and expression of fat-conditioned flavor preferences in rats. Neurobiol. Learn. Mem. 97, 332-337 (2012).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Pharmacology of flavor preference conditioning in sham-feeding rats: effects of dopamine receptor antagonists. Pharmacol. Biochem. Behav. 65, 635-647 (2000).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Role of D(1) and D(2) dopamine receptors in the acquisition and expression of flavor-preference conditioning in sham-feeding rats. Pharmacol. Biochem. Behav. 67 (1), 537-544 (2000).
- Touzani, K., Bodnar, R. J., Sclafani, A. Activation of dopamine D1-like receptors in nucleus accumbens is critical for the acquisition, but not the expression, of nutrient-conditioned flavor preferences in rats. Eur. J. Neurosci. 27, 1525-1533 (2008).
- Touzani, K., Bodnar, R. J., Sclafani, A. Dopamine D1-like receptor antagonism in amygdala impairs the acquisition of glucose-conditioned flavor preference in rats. Eur. J. Neurosci. 30, 289-298 (2009).
- Touzani, K., Bodnar, R. J., Sclafani, A. Acquisition of glucose-conditioned flavor preference requires the activation of dopamine D1-like receptors within the medial prefrontal cortex in rats. Neurobiol. Learn. Mem. 94, 214-219 (2010).
- Malkusz, D. C., et al. Dopamine signaling in the medial prefrontal cortex and amygdala is required for the acquisition of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 233, 500-507 (2012).
- Bernal, S. Y., et al. Role of dopamine D1 and D2 receptors in the nucleus accumbens shell on the acquisition and expression of fructose-conditioned flavor-flavor preferences in rats. Behav. Brain Res. 190, 59-66 (2008).
- Bernal, S. Y., et al. Role of amygdala dopamine D1 and D2 receptors in the acquisition and expression of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 205, 183-190 (2009).
- Dragunow, M., Faull, R. The use of c-fos as a metabolic marker in neuronal pathway tracing. J. Neurosci. Methods. 29, 261-265 (1989).
- VanElzakker, M., Fevurly, R. D., Breindel, T., Spencer, R. L. Environmental novelty is associated with a selective increase in Fos expression in the output elements of the hippocampal formation and the perirhinal cortex. Learn. Mem. 15, 899-908 (2008).
- Norgren, R., Hajnal, A., Mungarndee, S. S. Gustatory reward and the nucleus accumbens. Physiol. Behav. 89, 531-535 (2006).
- Park, T. H., Carr, K. D. Neuroanatomical patterns of fos-like immunoreactivity induced by a palatable meal and meal-paired environment in saline- and naltrexone-treated rats. Brain Res. 805, 169-180 (1998).
- Zhao, X. L., Yan, J. Q., Chen, K., Yang, X. J., Li, J. R., Zhang, Y. Glutaminergic neurons expressing c-Fos in the brainstem and amygdala participate in signal transmission and integration of sweet taste. Nan.Fang Yi.Ke.Da.Xue.Xue.Bao. 31, 1138-1142 (2011).
- Mungarndee, S. S., Lundy, R. F., Norgren, R. Expression of Fos during sham sucrose intake in rats with central gustatory lesions. Am. J. Physiol. Regul. Integr. Comp. Physiol. 295, R751-R763 (2008).
- Otsubo, H., Kondoh, T., Shibata, M., Torii, K., Ueta, Y. Induction of Fos expression in the rat forebrain after intragastric administration of monosodium L-glutamate, glucose and NaCl. Neurosci. 196, 97-103 (2011).
- Yamamoto, T., Sako, N., Sakai, N., Iwafune, A. Gustatory and visceral inputs to the amygdala of the rat: conditioned taste aversion and induction of c-fos-like immunoreactivity. Neurosci. Lett. 226, 127-130 (1997).
- Mitra, A., Lenglos, C., Martin, J., Mbende, N., Gagne, A., Timofeeva, E. Sucrose modifies c-fos mRNA expression in the brain of rats maintained on feeding schedules. Neurosci. 192, 459-474 (2011).
- Pecoraro, N., Dallman, M. F. c-Fos after incentive shifts: expectancy, incredulity, and recovery. Behav. Neurosci. 119, 366-387 (2005).
- Hamlin, A. S., Blatchford, K. E., McNally, G. P. Renewal of an extinguished instrumental response: Neural correlates and the role of D1 dopamine receptors. Neurosci. 143, 25-38 (2006).
- Kerfoot, E. C., Agarwal, I., Lee, H. J., Holland, P. C. Control of appetitive and aversive taste-reactivity responses by an auditory conditioned stimulus in a devaluation task: A FOS and behavioral analysis. Learn. Mem. 14, 581-589 (2007).
- Zhang, M., Kelley, A. E. Enhanced intake of high-fat food following striatal mu-opioid stimulation: microinjection mapping and fos expression. Neurosci. 99, 267-277 (2000).
- Teegarden, S. L., Scott, A. N., Bale, T. L. Early life exposure to a high fat diet promotes long-term changes in dietary preferences and central reward signaling. Neurosci. 162, 924-932 (2009).
- Del Rio, D., et al. Involvement of the dorsomedial prefrontal cortex in high-fat food conditioning in adolescent mice. Behav. Brain Res. 283, 227-232 (2015).
- Knapska, E., Radwanska, K., Werka, T., Kaczmarek, L. Functional internal complexity of amygdala: focus on gene activity mapping after behavioral training and drugs of abuse. Physiol. Rev. 87, 1113-1173 (2007).
- Dela Cruz, J. A. D., et al. c-Fos induction in mesotelencephalic dopamine pathway projection targets and dorsal striatum following oral intake of sugars and fats in rats. Brain Res. Bull. 111, 9-19 (2015).
- Paxinos, G., Watson, C. The rat brain in stereotaxic coordinates. , Elsevier. (2006).
- Ranaldi, R., et al. The effects of VTA NMDA receptor antagonism on reward-related learning and associated c-fos expression in forebrain. Behav. Brain Res. 216, 424-432 (2011).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
