Przedstawiamy protokół zastosowania spektroskopii rozpraszania światła Brillouina do oczyszczonych elastyną i trypsyną włókien kolagenowych typu I macierzy zewnątrzkomórkowej w celu wydobycia ich pełnych właściwości elastycznych.
Artykuł metodologiczny
Przygotowanie włókien białkowych macierzy zewnątrzkomórkowej do spektroskopii Brillouina
W tym artykule
Podsumowanie
Streszczenie
Spektroskopia Brillouina jest nową techniką w dziedzinie biomedycyny. Bada właściwości mechaniczne próbki poprzez interakcję światła widzialnego z indukowanymi termicznie falami akustycznymi lub fononami rozchodzącymi się z prędkością kilku km/s. Informacje na temat elastyczności i struktury materiału pozyskiwane są w sposób nieniszczący, bezdotykowy, otwierając tym samym drogę do zastosowań in vivo i potencjalnej diagnostyki patologii. W pracy opisano zastosowanie spektroskopii Brillouina do badania biomechaniki we włóknach kolagenowych typu I trawionych elastyną i trypsyną macierzy zewnątrzkomórkowej. Białka włókniste macierzy zewnątrzkomórkowej są budulcem tkanek biologicznych, a badanie ich mechanicznego i fizycznego zachowania jest kluczem do ustalenia zależności struktura-funkcja w prawidłowych tkankach i zmian zachodzących w chorobie. Przedstawiono procedury przygotowania próbki, a następnie pomiaru widm Brillouina przy użyciu podłoża refleksyjnego wraz ze szczegółami układu optycznego i metodami analizy danych spektralnych.
Wprowadzenie
Efekt rozpraszania światła Brillouina (BLS) został odkryty przez Léona Brillouina w 1922 roku. 1 Polega na nieelastycznym rozpraszaniu światła widzialnego przez aktywowane termicznie fonony akustyczne w materiale. W fizyce ciała stałego fonony akustyczne to spójne drgania wszystkich atomów w sieci. Jednowymiarowy łańcuch dwóch naprzemiennych typów atomów w sieci jest prostym modelem ilustrującym różnicę między fononami akustycznymi, ujawnianymi przez BLS, a fononami optycznymi, badanymi przez absorpcję w podczerwieni i rozpraszanie Ramana (ryc. 1). Fonony akustyczne to ruchy atomów w łańcuchu w fazie z przemieszczeniem wzdłuż kierunku propagacji (podłużne fonony akustyczne) lub prostopadłe do kierunku propagacji (poprzeczne fonony akustyczne), podczas gdy fonony optyczne to ruchy atomów poza fazą wytwarzające oscylacyjny elektryczny moment dipolowy (mody podłużne lub poprzeczne).
Spektroskopia BLS jest używana w naukach analitycznych od lat 20-tych; jednak dopiero od lat 80-tych możliwe są pomiary wysokiego kontrastu dzięki zastosowaniu tandemowego wieloprzebiegowego spektrometru Fabry'ego-Perota. Od tego czasu nastąpił wzrost postępów w dziedzinie BLS do zastosowań analitycznych w materii skondensowanej (gdzie wykorzystuje się oddziaływanie foton-fonon)2-4 i materiałach magnetycznych (poprzez oddziaływanie foton-magnon)5. Przełomowe prace nad zastosowaniami biomedycznymi6-8 utorowały drogę do opracowania różnych podejść, w tym tego zastosowanego tutaj i opisanego wcześniej9 z wykorzystaniem odblaskowego podłoża w konfiguracji podobnej do płytek krwi w celu uzyskania pełnego opisu tensora elastyczności próbki.
W obecnej pracy stosujemy spektroskopię BLS do podstawowych składników macierzy zewnątrzkomórkowej w tkankach łącznych, białek włóknistych elastyny i kolagenu typu I. Kolagen typu I jest sztywną, potrójną spiralną cząsteczką, która łączy się poprzecznie i wzdłużnie z rozległym sieciowaniem, tworząc zasadniczo sztywne włókna w tkankach, takich jak ścięgna. Sieci kolagenu często współistnieją z sieciami elastyny, białka, które, co niezwykłe, generuje elastyczność dalekiego zasięgu poprzez połączenie entropii i hydrofobowych interakcji z otoczeniem i jest niezbędne do funkcjonowania tkanek takich jak płuca i skóra. Oba włókna są modelowane przy użyciu sześciokątnego modelu kryształu w obecnych badaniach. 9 W części 1 opisujemy protokół ekstrakcji włókien z tkanek zwierzęcych i przygotowania próbki do pomiarów spektroskopowych. W części 2 przedstawiono procedurę zakładania aparatu Brillouina i pozyskiwania widm z włókien. Część 3 zawiera szczegółowe informacje na temat analizy danych zastosowanej do widm Brillouina w celu wyodrębnienia odpowiednich informacji mechanicznych w nich zawartych. Następnie prezentowane i omawiane są reprezentatywne wyniki.
Protokół
Uwaga: Przed użyciem zapoznaj się z protokołami bezpieczeństwa biologicznego i wszystkimi odpowiednimi kartami charakterystyki substancji niebezpiecznych (MSDS). Laser użyty w tych eksperymentach to laser klasy 3B; Wymagane jest przestrzeganie lokalnych przepisów w celu bezpiecznego korzystania z systemu. Podczas wykonywania pomiaru spektroskopią laserową należy stosować wszystkie odpowiednie zasady bezpieczeństwa, w tym stosowanie środków ochrony osobistej (okularów ochronnych).
Ścięgna ogonowe zostały pobrane od 7-8 tygodniowych szczurów rasy Wistar, które zostały poddane eutanazji do innych celów, zgodnie z rozporządzeniem UE 1099/2009 i przepisami dotyczącymi dobrostanu zwierząt (ubój lub zabijanie) z 1995 roku. Więzadła karkowe bydła pozyskano z miejscowej rzeźni.
1. Przygotowanie włókien próbki
UWAGA: Włókna białkowe macierzy zewnątrzkomórkowej mogą być ekstrahowane z różnych tkanek, przy użyciu różnych procedur. Protokoły zostały dopracowane w oparciu o powszechnie stosowane procedury.
- Ekstrakcja włókien kolagenowych z ogona szczura
- Uśmierc szczura przez dootrzewnowe wstrzyknięcie 100 mg/kg masy ciała pentobarbitonu sodu. Następnie odetnij ogon bezpośrednio w miejscu styku z ciałem, dociskając jednoostrzową żyletką. Zawiń ogon w folię spożywczą i przechowuj go w stanie zamrożonym w temperaturze -20 °C do czasu, gdy będzie potrzebny.
- Zebrać ogon z zamrażarki, odciąć segment o długości 20 mm od bliższego końca, gdy jest jeszcze zamrożony, a następnie pozostawić go do rozmrożenia na szalce Petriego wypełnionej roztworem soli fizjologicznej buforowanej fosforanami (PBS) (pH 7,4) w temperaturze pokojowej tonacji.
- Po rozmrożeniu ogona wykonaj nacięcie wzdłuż segmentu za pomocą skalpela, aby rozciąć skórę. Następnie odklej się, aby odsłonić cztery osłonięte wiązki ścięgien wokół kręgu ogonowego.
- Używając cienkich kleszczyków i uważając, aby nie zastosować żadnego wstępnego odkształcenia, delikatnie wyciągnij każde włókno z osłonki i umieść je w fiolce zawierającej wodę destylowaną z 0,01% w/v azydkiem sodu (NaN3), aby zapobiec rozwojowi bakterii i przechowywać w lodówce. Pojedynczy ogon daje około trzydziestu włókien ścięgien.
- Aby uzyskać czysty włóknisty kolagen typu I, zastosuj trzyczęściowy proces trawienia enzymatycznego10 do włókien ścięgien w celu usunięcia proteoglikanów i całego innego materiału niekolagenowego.
- Najpierw zanurzyć włókna w 0,125 U/ml chondroitynazy ABC w 0,05 M buforze Tris i 0,06 M octanu sodu (CH3COONa) o pH 8,0 przez 24 godziny w temperaturze 37 °C w inkubatorze z wytrząsaniem przy 200 obr./min.
- Następnie zanurzyć włókna w 1 U/ml hialuronidazy Streptomyces w 0,05 M buforze Tris i 0,15 M chlorku sodu (NaCl) o pH 6,0 i powrócić do inkubatora wytrząsającego na 24 godziny w temperaturze 37 °C.
- Na koniec zanurzyć włókna w 1 mg/ml trypsyny w 0,05 M fosforanu sodu (NaHPO4) i 0,15 M NaCl o pH 7,2 na 16 godzin w inkubatorze z wytrząsaniem w temperaturze 37 °C.
- Oczyszczone włókna należy przechowywać w lodówce w fiolkach zawierających wodę destylowaną o zawartości 0,01%NaN 3 w celu zapobieżenia rozwojowi bakterii, do czasu, gdy będzie to wymagane do pomiaru.
- Ekstrakcja włókien elastyny z więzadła karkowego bydła
- Zaopatrzyć się w więzadło karkowe bydła z rzeźni, zawinąć je w folię spożywczą i przechowywać w stanie zamrożonym w temperaturze -20 °C do momentu użycia.
- Aby wytworzyć czystą elastynę, wyjmij więzadło z zamrażarki, pozwól mu rozmrozić się w temperaturze pokojowej, usuń je za pomocą skalpela i strawij więzadło we wrzącej kąpieli wodnej zgodnie z procedurą Lansinga, w następujący sposób.
- Przygotować 0,1 M roztwór wodorotlenku sodu (NaOH) w wodzie destylowanej i dodać go do odtłuszczonego więzadła w kolbie stożkowej, pokrywając tkankę.
- Gotować kolbę w łaźni wodnej w temperaturze 95 °C przez 45 minut.
- Wyjąć więzadło z kolby wytrawiającej i kilkakrotnie przemyć nierozpuszczalny blok tkanek w wodzie destylowanej, aż do uzyskania pH 7,0 (monitorowanego za pomocą pH-metru).
- Wyjmij chusteczkę z końcowego roztworu do płukania i zanurz ją w wodzie destylowanej (zmieszanej z 0,01% NaN3 w celu zapobieżenia rozwojowi bakterii) w szczelnie zamkniętym pojemniku i przechowuj w lodówce.
- Wyjmij chusteczkę z lodówki i uważając, aby nie użyć zbyt dużej siły i nie naprężyć wstępnie, za pomocą pęsety delikatnie odciągnij mniejsze segmenty elastyny (o długości od 20 do 50 mm i grubości ok. 2 mm) od większego bloku i umieść je na szalce Petriego z roztworem PBS (pH 7,4).
- Za pomocą cienkich kleszczy delikatnie rozdrobnij małe wiązki włókien o grubości około 1 mm i przytnij je na kilka mm długości za pomocą skalpela.
- Przenieś włókna do fiolek zawierających wodę destylowaną (z 0,01% NaN3 w celu zapobieżenia rozwojowi bakterii) i przechowuj je w lodówce do czasu, gdy będzie to wymagane do pomiaru.
- Montaż włókien na podłożu odblaskowym
- Za pomocą frezu diamentowego wytnij kawałek odblaskowego szkiełka silikonowego.
- Aby stworzyć uwodnioną komorę, wytnij pasek Parafilm tak, aby pasował do silikonowego szkiełka z wydrążonym nacięciem pośrodku (wystarczająco dużym, aby zmieścić włókno) i umieść go na silikonowym podłożu.
UWAGA: W przypadku pomiarów suchych włókien należy przyciąć parafilm w kształcie litery U, tak aby jeden z czterech boków pozostał otwarty na powietrze po uszczelnieniu w kroku 1.3.4. - Wyjmij włókna z lodówki, użyj pary cienkich kleszczy, aby zebrać pojedyncze włókno z roztworu do przechowywania i umieść je na małej szalce Petriego wypełnionej czystą wodą o temperaturze pokojowej na 5 minut, aby umyć próbkę. Następnie zbierz włókno i przenieś je do środka wgłębienia parafilmu na podłożu silikonowym.
Ostrożnie: Unikaj uszkodzenia włókna poprzez rozciąganie go podczas tej operacji i unikaj zmiany orientacji próbki na podłożu, ponieważ może to spowodować zmianę właściwości mechanicznych. - Umieść cienkie szklane szkiełko nakrywkowe na włóknie i uszczelnij komorę, delikatnie przesuwając rozgrzaną lutownicę po powierzchni szkła, aby stopić parafilm pod szkłem.
Ostrożnie: Unikaj uszkodzenia włókna, nie zbliżając zbyt blisko grotu lutowniczego lub nadmiernie podgrzewając podłoże. - Umieść zapieczętowaną komorę na płaskiej powierzchni pod niewielką wagą i pozostaw ją na około 12 godzin, aby uzyskać dobry kontakt między próbką a podłożem silikonowym, unikając jednocześnie uszkodzenia próbki.
- Zdejmij ciężar i zabezpiecz komorę na podłożu za pomocą.
2. Przygotowanie eksperymentu Brillouin i pozyskiwanie widm włókien
- Przygotowanie komory na próbkę
- Umieścić próbkę przygotowaną w sposób opisany w części 1.3 na pionowym uchwycie wyposażonym w goniometr umożliwiający obrót próbki w płaszczyźnie przy zachowaniu stałego kąta rozproszenia (2Φ = 90°; patrz rysunek SI-1) i położenia objętości rozpraszania.
- Wykonaj dokładną regulację ostrości światła laserowego na próbce przez soczewkę. 9
Ostrożny: Moc wyjściowa lasera może być zbyt wysoka i spowodować oparzenie próbki. Upewnij się, że jest ustawiony wystarczająco wysoko, aby zapewnić dobrą czułość, ale nie za wysoko, aby uniknąć uszkodzenia próbki. W tym przypadku zastosowaliśmy moc ok. 76 mW na próbce. Było to wystarczające, aby uzyskać dobrą czułość bez spalania próbki, biorąc również pod uwagę, że jest ona cienka i styka się z podłożem, które pomaga rozpraszać ciepło generowane przez oświetlenie laserowe. - Umieść próbkę pod kątem 45° (Φ) do padającej wiązki laserowej za pomocą skali noniusza. Osiągnij optymalne pozycjonowanie, przeprowadzając pomiar i maksymalizując intensywność pików w widmie (patrz poniżej).
- Ustawianie spektrometru
- Otwórz oprogramowanie do pozyskiwania i manipulowania danymi i skonfiguruj akwizycję widma Brillouina próbki12. Opisana tutaj procedura ma zastosowanie do wieloprzebiegowego interferometru tandemowego (rysunek SI-1A).
- Ustawić dwa interferometry Fabry'ego-Perota (FP) niezależnie zmieniając napięcia przyłożone do piezoelektrycznego przez jednostkę sterującą. W tej procedurze wstępnego wyrównania obserwuj światło odbite przez każdy FP. Gdy intensywność odbita przez dwa FP dąży do zera, osiągane jest prawidłowe wyrównanie.
- Kalibracja widma: dostępny zakres częstotliwości lub swobodny zakres widmowy (FSR) zależy od odległości między dwoma zwierciadłami pierwszej wnęki FP, L, przez FSR = c/2L, gdzie c jest prędkością światła, a L jest mierzone za pomocą czujnika zegarowego.
- Zsynchronizuj skany dwóch interferometrów FP i przełącz układ optyczny na tandemową konfigurację wieloprzebiegową. Sterowanie ze sprzężeniem zwrotnym natężenia przesyłanego światła laserowego automatycznie utrzyma wyrównanie dwóch FP podczas pomiaru.
- Pomiar widm Brillouina
Ostrożność: Widmo Brillouina jest w dużym stopniu zależne od temperatury i uwodnienia próbki, dlatego dokładna kontrola tych parametrów jest kluczem do uzyskania powtarzalnych widm.- Rozpocznij akwizycję widma Brillouina próbki i uruchamiaj je, aż zostanie osiągnięty dobry stosunek sygnału do szumu. Może to potrwać kilka minut w zależności od przekroju czynnego rozproszenia, stężenia i grubości próbki.
UWAGA: Nie ma praktycznej zasady dotyczącej stosunku sygnału do szumu, ale jakość widma jest sprawdzana przez eksperymentatora na podstawie konkretnej analizowanej próbki. Istnieje kompromis między jakością widmową a czasem trwania pomiaru, dlatego parametry eksperymentalne muszą być dobrane zgodnie z konkretnym zastosowaniem. - W celu dokonania pomiaru suchej próbki należy pobrać kolejne widma – dla każdego z nich, zgodnie z krokiem 2.3.1 – aż do momentu, gdy nie zaobserwuje się żadnych zmian w położeniu pików. Osiąga się to, gdy próbka jest w równowadze z atmosferą pomieszczenia i dalsze suszenie nie wpłynie na widmo.
- Wybierz polaryzację światła (VV lub VH; V oznacza pionowy, a H horyzontalny kierunek polaryzacji światła względem płaszczyzny rozpraszania) i uzyskują widma pod każdym kątem do osi światłowodu (θ ; Rysunek SI-1) poprzez ręczne obracanie próbki w płaszczyźnie.
- Zapisz widma Brillouina do pliku do późniejszego przetwarzania.
- Rozpocznij akwizycję widma Brillouina próbki i uruchamiaj je, aż zostanie osiągnięty dobry stosunek sygnału do szumu. Może to potrwać kilka minut w zależności od przekroju czynnego rozproszenia, stężenia i grubości próbki.
3. Analiza widm Brillouina
UWAGA: Analiza dopasowania pików Brillouina może być przeprowadzona za pomocą różnych funkcji. Wybrano funkcję4,13 tłumionego oscylatora harmonicznego (DHO), ponieważ jest to prawidłowy model dla pików pochodzących z tłumionych modów akustycznych w ośrodkach lepkosprężystych.
- Analiza dopasowania pików Brillouina
- Wybierz zakres spektralny dla interesującego go piku w widmie Brillouina.
- Włącz linię bazową w dopasowaniu, jeśli widmo tła jest znacznie wyższe od zera.
UWAGA: Linia bazowa może się różnić w zależności od widma. Upewnij się, że korekta jest stosowana w sposób systematyczny i powtarzalny .
- Zastosować szczegółowe dopasowanie metodą najmniejszych kwadratów za pomocą funkcji DHO4,13 do interesującego nas piku Brillouina iteracyjnie, aż do osiągnięcia zbieżności i uzyskania najlepszej krzywej dopasowania. Następnie zapisz wyniki dopasowania do pliku.
- Uzyskaj średnie wartości z parametrów dopasowania dwóch pików każdego dubletu Brillouina.
- Obliczyć prędkość fali akustycznej na podstawie częstotliwości szczytowej (korzystając z poniższego wyrażenia).
- Wykreśl wyniki dopasowania za pomocą wykresów, np. prędkość fali akustycznej w funkcji kąta do osi włókna, θ , i zastosuj odpowiednie modele (np. dla akustycznie anizotropowychsystemów 9), aby wyodrębnić wielkości mechaniczne, takie jak współczynniki tensora sprężystości.
Wyniki
Aparatura do spektroskopii Brillouina używana w tym eksperymencie (Rycina SI-1A) została już wcześniej opisana.9 Wykorzystuje ona jednomodowy laser 532 nm na stałym stanie o mocy wyjściowej 76 mW w próbce. Dwuogniskowa soczewka o ogniskowej 20 cm skupia światło laserowe na próbce i zbiera rozproszone światło z próbki w geometrii rozpraszania wstecznego. Do filtrowania światła rozproszonego stosuje się tandemowy wieloprzejściowy interferometr Fabry-Perota, a następnie wykrywa się je za pomocą niskoszumowego detektora fotodiodowego. Takie podejście zapewnia wyjątkowo wysoką kontrastowość (ok. 120 dB) i stabilność dzięki samowyjustowującemu się piezoscanningowi etalonów. Wprowadza się polaryzator i analizator, aby wybrać polaryzację światła padającego i rozproszonego. Spektra uzyskuje się zazwyczaj przy stałym położeniu polaryzatora, wybierającym pionowy (V) kierunek polaryzacji światła padającego, podczas gdy analizator naprzemiennie wybiera kierunek pionowy (V) lub poziomy (H) polaryzacji światła rozproszonego. W tej konfiguracji wykrywane są odpowiednio podłużne i poprzeczne mody akustyczne.
Typowy widmo Brillouina charakteryzuje się intensywnym szczytem centralnym wynikającym ze sprężystego rozpraszania oraz jednym lub większą liczbą zestawów równie przesuniętych szczytów, czyli podwójnych linii Brillouina, które są sygnaturą właściwości mechanicznych próbki. W tych pomiarach rozproszone światło może pochodzić zarówno od fali fononów objętościowych poruszających się prawie prostopadle do próbki, jak i – po odbiciu padającego światła na granicy próbki i podłoża – od fononów objętościowych poruszających się równolegle do powierzchni (tryby PS).9
Rysunek 2 pokazuje widma BLS suchych i uwodnionych włókien kolagenu trawionych trypsyną, uzyskane przy polaryzacji VV, z rozdzielczością 0,2 GHz, zakresem widmowym 30 GHz i czasem rejestracji około 10 minut na widmo. Każdy widmo odpowiada konkretnemu kątowi obrotu θ (Rycina SI-1C). W suchym włóknie kolagenowym przy θ = 0°, mody podłużne generują pik objętościowy przy (18,92 ± 0,02) GHz, podczas gdy mod PS znajduje się przy (9,85 ± 0,03) GHz (Rycina 2A). Pik PS przesuwa się w kierunku niższych częstotliwości, gdy θ przechodzi od 0° (fonon badający osiową orientację włókna) do 90° (fonon badający radialną orientację), podczas gdy pik objętościowy ulega jedynie nieznacznemu przesunięciu w czerwonoń po zmianie θ w tym samym zakresie (fonony badające quasi-promieniowy kierunek w całym cyklu obrotu). W wilgotnym włóknie kolagenowym dwa piki spowodowane fononami podłużnymi są zasadniczo niezmienne w trakcie całego doświadczenia, z pikiem objętościowym przy ok. 10,5 GHz oraz pik PS przy 4,9 GHz (Rycina 2B). Oznacza to zmniejszenie częstotliwości szczytowych o 80–100% (w stosunku do wartości odpowiednio 18,92 i 9,85 GHz) i tym samym zmniejszenie sztywności materiału na skutek uwodnienia. Warto zauważyć, że częstotliwości drgań objętościowych i drgań PS uwodnionego kolagenu są zbliżone do częstotliwości drgań czystej wody, co sugeruje, że jej stałe sprężyste wynikają z połączenia wkładów wody i włókien, przy czym dominującą rolę odgrywa woda.
Rycina 3 przedstawia widmo suchej, trawionej trypsyną włóknistej kolagenowej mierzone przy kącie θ = 30° z polaryzacją VH; upływ polaryzacji VV umożliwia nadal obserwację pików PS i objętościowego. Poprzeczne mody odpowiadają za wierzchołek o częstotliwości (4,1 ± 0,2) GHz (θ = 0°), który nieznacznie ulega przesunięciu ku niebieskiemu obszarowi widma wraz ze zmianą kąta θ od 0° do 90°. Pokazano również wyniki dopasowania zarówno dla modów poprzecznych, jak i pików PS. Parametry pików wyodrębniono, a prędkości fal akustycznych obliczono ze wzoru VL = vλ/√2, gdzie v to częstotliwość mody uzyskana z analizy dopasowania krzywej do pików, a λ to długość fali wzbudzenia, wynosząca 532 nm. Należy zauważyć, że w tej geometrii znajomość współczynnika załamania materiału nie jest wymagana do wyznaczenia prędkości mody akustycznej (ze względu na geometrię rozpraszania, qs = 2ki sin(Φ); Rycina SI-1b,c), co czyni tę metodę szczególnie korzystną.
Rysunek 4 to wykres prędkości fal akustycznych uzyskanych z modów podłużnych i poprzecznych (piki PS i T) w funkcji kąta θ . Dopasowanie analizy do modelu sześciennego sprężystego ciała stałego7 — Poniższe równania A1 i A2 — dostarczają pięciu składowych tensora sprężystości suchych, trawionych trypsyną włókien kolagenu typu ITabela 1).
Prędkości fal akustycznych podłużnych i poprzecznych są dane przez9
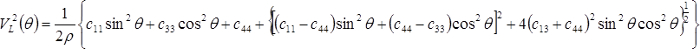 , (A1)
 , (A2)
gdzie ρ to gęstość materiału, a c11, c33, c44 oraz c13 to cztery spośród pięciu stałych sprężystości charakteryzujących układy o symetrii heksagonalnej. Piątą stałą, c12, można wyprowadzić z przybliżonego związku c12 ~ c11 - 2c44.7
Współczynniki są podobne do wcześniej uzyskanych z nieoczyszczonych włókien kolagenu.9 Zauważalna różnica występuje dla współczynnika c13, co przekłada się na podobne wartości modułów sprężystości Eǁ i E (odpowiednio około 7,2 i 7,7 GPa) dla oczyszczonego kolagenu.
Rysunek 5 przedstawia zależność prędkości fali akustycznej podłużnej mokrego kolagenu od θ . W tym przypadku nie zaobserwowano okresowych zmian częstotliwości, co wskazuje na stałą prędkość w granicach błędu. Rysunek 6 pokazuje widma suchych i uwodnionych włókien elastyny zmierzone przy θ = 0°. Dla tych próbek nie wykryto trybów poprzecznych. W suchej elastynie pik objętościowy występuje przy 16,8 GHz, podczas gdy tryb PS przy 8,2 GHz9 (odpowiednio 13 i 20% niższy niż odpowiadające piki suchej elastyny). Uwodnione włókna elastyny wykazują pik objętościowy przy (12,30 ± 0,01) GHz (o 37% niższy pod względem częstotliwości niż pik objętościowy suchej elastyny). Tryb PS mokrej elastyny nie jest widoczny w widmie z powodu intensywnego ogona szczytu sprężystego w tych zakresach częstotliwości. Z kolei szczyt przy ok. 7,5 GHz przypisuje się wodzie objętościowej.
Rycina 7 przedstawia zależność prędkości fali akustycznej w suchej włókninie sprężystej od θ. Na podstawie tych danych uzyskano składowe tensora sprężystości (oraz moduły mechaniczne) (Tabela 1).9 Podobnie jak w przypadku wilgotnego kolagenu, istnieją dowody izotropii modułu mechanicznego uwodnionych włókien elastyny. Wyniki te wskazują, jak spektroskopia Brillouina może dostarczyć istotnych informacji na temat sztywności, składu oraz aspektów strukturalnych materiału.
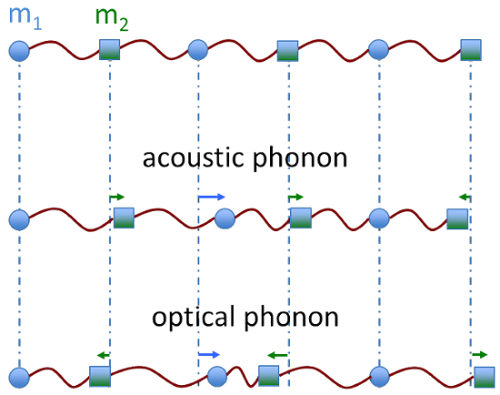
Rysunek 1. Fonony akustyczne i optyczne w jednowymiarowym łańcuchu atomów. Schematyczny diagram drgań akustycznych i optycznych w jednowymiarowym łańcuchu dwuskładnikowym. Atomy mają masy m1 i m2 i występują naprzemiennie. Strzałki wskazują przemieszczenia atomów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 2. Spektra Brillouina oczyszczonych trypsyną włókien kolagenu typu I z ścięgna ogonowego szczura. Spektra dla (A) suchego włókna oraz (B) uwodnionego włókna z pomiarów VV przy różnych kątach do osi włókna θ, w stopniach. Pokazano również spektrum czystej wody destylowanej. Spektra zostały unormowane do intensywności (wysokości) szczytu objętościowego. Oznaczenia B i PS wskazują szczyty odpowiadające trybom objętościowym i równoległym do powierzchni, odpowiednio. Słupki błędów oznaczają błąd standardowy (pierwiastek kwadratowy z liczby zliczeń). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 3. Widmo Brillouina suchych, oczyszczonych trypsyną włókien kolagenu typu I z ścięgna ogonowego szczura. Widmo z pomiaru VH przy θ = 30°. Oznaczenia T, PS i B wskazują piki związane odpowiednio z trybami poprzecznymi, równoległymi do powierzchni i objętościowymi. Przedstawiono również wyniki analizy dopasowania przy użyciu modelu tłumionego oscylatora harmonicznego (DHO) dla trybów T i PS. Słupki błędów oznaczają błąd standardowy (pierwiastek kwadratowy liczby zliczeń). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 4. Wykres prędkości fali akustycznej w suchym kolagenie oczyszczonym trypsyną w funkcji kąta do osi włókna. Prędkości podłużnych i poprzecznych fal akustycznych w suchym włóknie kolagenowym uzyskane z analizy dopasowania pików Brillouina. Dane dopasowano do modelu heksagonalnie symetrycznego ciała sprężystego. Czerwona linia: równanie A1 (R2 = 0.99); niebieska linia: równanie A2 (R2 = 0.36). Słupki błędów wskazują błędy standardowe uzyskane z pierwiastka kwadratowego elementów diagonalnych macierzy kowariancji po nieliniowej metodzie najmniejszych kwadratów Levenberga-Marquardta dopasowania widm Brillouina. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 5. Wykres prędkości podłużnej fali akustycznej w wilgotnym kolagenie oczyszczonym trypsyną w funkcji kąta do osi włókna. Prędkość podłużnej fali akustycznej w uwodnionym włóknie kolagenowym wyznaczona na podstawie analizy dopasowania pików Brillouina. Pokazana linia jest pomocniczą linią orientacyjną i przedstawia średnią wartość prędkości fali akustycznej w tym zakresie. Słupki błędów wskazują błędy standardowe uzyskane z pierwiastka kwadratowego elementów diagonalnych macierzy kowariancji po nieliniowym dopasowaniu metodą najmniejszych kwadratów Levenberga-Marquardta widm Brillouina. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
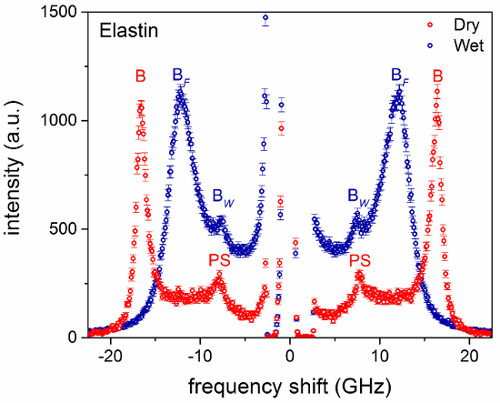
Ryc. 6. Spektra Brillouina włókien elastyny z byczej więzadła karkowego. Spektra suchych i uwodnionych włókien przy θ = 0°. Spektra zostały znormalizowane do intensywności (wysokości) szczytu objętościowego. Oznaczenia B i PS wskazują szczyty związane odpowiednio z trybami objętościowymi i równoległymi do powierzchni. BF oraz BW odnoszą się do szczytów objętościowych włókna i wody odpowiednio. Słupki błędów wskazują błąd standardowy (pierwiastek kwadratowy z liczby zliczeń). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 7. Wykres prędkości podłużnej fali akustycznej w suchym elastynie w funkcji kąta względem osi włókna. Prędkość podłużnej fali akustycznej w suchym włóknie elastynowym wyznaczona na podstawie analizy dopasowania pików Brillouina. Dane dopasowano do modelu sześciennie symetrycznego ciała sprężystego. Czerwona linia: Równanie A19 (R2 = 0.74). Paski błędów wskazują błędy standardowe uzyskane jako pierwiastek kwadratowy z elementów diagonalnych macierzy kowariancji po nieliniowej metodzie najmniejszych kwadratów Levenberga-Marquardta dopasowania widm Brillouina. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek SI-1. Schemat układu Brillouina i geometria rozpraszania BLS. (A) Światło padające emitowane przez laser półprzewodnikowy jest kierowane do próbki przez soczewkę achromatyczną. Światło rozproszone przez objętościowe fale akustyczne fonony oraz przez fonony powstałe w wyniku odbicia światła od powierzchni podłoża, które styka się z próbką, jest zbierane przez soczewkę, filtrowane za pomocą tandemowego interferometru Fabry’ego-Perota o wielokrotnym przejściu i wykrywane przez fotopowielacz. FP1 i FP2 wskazują dwa interferometry tworzące układ tandemowy. Polaryzator wybiera polaryzację światła padającego, a analizator służy do wyboru polaryzacji światła rozproszonego. (B) Geometria BLS z próbką stykającą się z powierzchnią odbijającego podłoża krzemowego. Nad próbką umieszcza się szklaną nakładkę (nie pokazano), aby uszczelnić komorę, a delikatne ciśnienie jest przykładane poprzez podkłady w narożnikach podłoża. Światło padające (ki) przechodzi przez soczewkę, załamuje się na granicy powietrze-próbka (k'i) i jest skupiane na granicy próbka-podłoże. Światło rozproszone, zbierane przez tę samą soczewkę (k's), wynika z oddziaływania zarówno z fononami objętościowymi (qb), jak i z fononami rozchodzącymi się wzdłuż powierzchni próbki (qs). Kąty między kierunkami światła a normalną do powierzchni oznaczono jako Φ i Φ'. (C) Schematyczny rysunek próbki oraz przyjętego układu współrzędnych; z określa oś nadzwyczajną równoległą do kierunku włókien. Kąty θ i α to odpowiednio kąty między kierunkiem fononów qs i qb a osią z. ki, k'i, ks, k's: liczby falowe światła padającego i rozproszonego; qb, qs: wektory falowe modów objętościowych i powierzchniowych, odpowiednio. (Powtórnie wydrukowano z ref 9.) Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Tabela 1. Współczynniki tensora sprężystości wyznaczone na podstawie analizy dopasowania prędkości fal akustycznych. Współczynniki tensora sprężystości suchych, oczyszczonych metodą trypsyny włókien kolagenu typu I (niniejsza praca) oraz włókien elastyny (ref 9).
| próbka | współczynniki sprężystości (GPa) | |
| kolagen trawiony trypsyną | c33 | 18,7 ± 0,1 |
| c11 | 14,4 ± 0,2 | |
| c44 | 3,4 ± 0,1 | |
| c12 | 7,2 ± 0,2 | |
| c13 | 11,2 ± 0,3 | |
| elastyna | c33 | 11,5 ± 0,2 |
| c11 | 10,4 ± 0,1 | |
| c44 | 1,9 ± 0,2 | |
| c12 | 6,6 ± 0,2 | |
| c13 | 6,8 ± 0,3 | |
Dyskusja
Spektroskopia rozpraszania Brillouina jest unikalnym narzędziem, za pomocą którego można scharakteryzować poszczególne składowe tensora elastyczności włókna białkowego z niespotykaną dotąd szczegółowością. Co więcej, pomiary mogą być wykonywane w skali mikroskopowej, a tym samym dostarczą nam nowego wglądu w mechanikę struktur biologicznych w mikroskali, pozwalając nam po raz pierwszy zrozumieć mechaniczne i prawdopodobnie funkcjonalne znaczenie złożoności architektury matrycy i biochemii, które ujawniły się w ostatnich latach.
Technika ta mierzy właściwości mechaniczne w zakresie częstotliwości GHz. Dziedzina ta nigdy wcześniej nie była badana w odniesieniu do biopolimerów strukturalnych, a zarówno rodzi, jak i dostarcza środków do udzielenia odpowiedzi na podstawowe pytania dotyczące molekularnych mechanizmów elastyczności.
Opisaliśmy etapy ekstrakcji włókien kolagenu i elastyny z tkanek zwierzęcych oraz pomiaru widm rozpraszania Brillouiny przy użyciu podłoża odblaskowego, aby uzyskać pełny opis biomechaniki włókien. Krytycznymi krokami w protokole są te, które zapewniają uzyskanie oczyszczonych włókien i odpowiednie warunki eksperymentalne dla powtarzalnych pomiarów białek włóknistych. Należy jednak pamiętać, że procedury ekstrakcji mogą modyfikować właściwości mechaniczne włókien.
Modyfikacje tej techniki obejmują sprzężenie z mikroskopią optyczną w celu uzyskania mikroogniskowego rozpraszania Brillouina i metod mapowania13 oraz możliwe połączenie z technikami uzupełniającymi (np. rozpraszanie Ramana). Obecne zastosowania tej techniki koncentrują się głównie na wycinanych materiałach biologicznych, ale ważne osiągnięcia, np. te oparte na wielu etalonach VIPA14, umożliwiają przeniesienie tej techniki z laboratorium na łóżko pacjenta, a szereg zastosowań już wykazano15,16 , w tym potencjał in vivo Aplikacji. Podejście VIPA jest alternatywą dla tego, co opisujemy; Ma szybszy czas akwizycji, ale niekoniecznie jest odpowiedni w przypadku próbek nieprzezroczystych, takich jak te analizowane tutaj. Co więcej, zastosowanie podłoża odblaskowego nie jest praktyczne w konfiguracjach wykorzystujących etalony VIPA, ponieważ ich kontrast nie byłby wystarczający do odrzucenia quasi-elastycznego światła. Ograniczenia związane z szybkością pozyskiwania zestawu danych spektralnych i z natury słabym przekrojem czynnym rozpraszania materiału mogą ograniczać zastosowania do dynamicznych systemów biologicznych i pozyskiwania danych z głębi tkanek, ale udoskonalenia techniczne mogą poprawić obecną wydajność.
BLS może stać się głównym narzędziem w podstawowych badaniach biofizycznych nad macierzą zewnątrzkomórkową, a tym samym dostarczyć nowych informacji na temat ewolucji właściwości mechanicznych podczas wzrostu macierzy i ich utraty w wyniku patologicznej degeneracji. Należy jednak pamiętać, że pomiary są nieinwazyjne i dlatego mogą być wykonywane in vivo. W rzeczywistości udało się to już osiągnąć w przypadku rogówki16 , a takie prace mogą stanowić platformę do opracowania nowych narzędzi diagnostycznych dla szerokiego zakresu zaburzeń tkanki łącznej.
Elastografia ultradźwiękowa i mikroskopia sił atomowych (AFM) są alternatywnymi metodami pomiaru mikromechanicznego, ale technika BLS oferuje lepszą rozdzielczość przestrzenną (w skali subkomórkowej) niż ta pierwsza i, w przeciwieństwie do AFM, nie nakłada żadnych sił mechanicznych na próbkę i nie ogranicza się tylko do analizy cech powierzchni. Moduły Brillouiny kolagenu i elastyny mieszczą się w zakresie GPa, podczas gdy moduły Younga ze szczepów makroskopowych są rzędu MPa (dalsze szczegóły zostaną podane w innym miejscu). Wynik ten wskazuje na różnicowy moduł sprężystości z silną zależnością od częstotliwości wzbudzenia, ze względu na lepkosprężyste zachowanie włókien. BLS może być stosowany do szerokiego zakresu problemów i materiałów w naukach biomedycznych. Może pomóc w udzieleniu odpowiedzi na pytania dotyczące fizjologii i patologii tkanek biologicznych, a także dostarczyć fizycznego narzędzia do podstawowego zrozumienia materiałów i interakcji na poziomie molekularnym.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Radę Badań nad Naukami Inżynieryjnymi i Fizycznymi [numer grantu EP/M028739/1]. RSE otrzymało wsparcie w postaci Santander Postgraduate Research Award 2015.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Chondroitynaza ABC | Sigma-Aldrich | C2905 | |
| Tris Buffer | Fluka | 93358 | |
| Sodium Acetate | Fisher Scientific | S608-500 | |
| PBS | Sigma-Aldrich | P4417 | |
| Azek sodu | Fisher Scientific | S2002 | |
| Streptomyces Hialuronidaza | Sigma-Aldrich | H1136-1AMP | |
| strong>Sodium Chloride | Fisher Scientific | S7653 | |
| Trypsyna | Sigma-Aldrich | T4665 | |
| Sodium Phosphate | Sigma-Aldrich | S9638 | |
| Sodium Hydroxide | Fisher Scientific | S320-500 | |
| Pure Water | Millipore | ZRQS0P3WW | Produkowany we własnym zakresie |
| Woda destylowana | Bibby Scientific Limited | D4000 | Produkowany we własnym zakresie z wody niegazowanej |
| Euthatal | Merial | J01601A | |
| Tandem Interferometer TFP-1 | JRS Scientific Instruments | ||
| Freezer | Lec | TU55144 | |
| Lodówka | Zanussi | ZBA15021SA | |
| Płyta grzewcza | Fisher Scientific | SP88857206 | |
| Zaciski | VWR | 241-7311 i 241-7201 | |
| Stojak zaciskowy | VWR& | nbsp; 241-0093 | |
| Termometr | Fisher Scientific | 13-201-401 | |
| Cling Film | Sainsbury's | 7650540 | |
| Parafilm | Sigma-Aldrich | P7793-1EA | |
| silikon | IDB Technologies | N/A | Brak katalogu numer. Zamów na życzenie. |
| Szkło nakrywkowe | VWR | 631-1571 | |
| Kolba stożkowa | VWR | 214-1175 | |
| zlewka | VWR | 213-0469 | |
| Cylinder miarowy | VWR | 612-3838 | |
| fiolka | VWR | 548-0051 & 548-0863 | |
| szalka Petriego | VWR | 391-0441 | |
| skalpel | Swann Morton Ltd | 0914 & 0308 | |
| Diamentowy skryba | RS Instruments | 394-217 | |
| Lutownica | RS Instruments | 231-5332 | |
| kleszczyki | VWR | 232-0188 | |
| Podwójna mikroszpatułka | VWR | Różne rozmiary | |
| pH | Hanna Instruments | HI-2210-02 | |
| Wytrząsarka orbitalna | IKA |
Bibliografia
- Brillouin, L. Diffusion de la lumière et des rayonnes X par un corps transparent homogène; influence de l'agitation thermique. Ann. Phys. 17, 88-122 (1922).
- Caponi, S., Corezzi, S., Mattarelli, M., Fioretto, D. Stress effects on the elastic properties of amorphous polymeric materials. J. Chem. Phys. 141 (21), 214901(2014).
- Mattarelli, M., Montagna, M., Still, T., Schneider, D., Fytas, G. Vibration spectroscopy of weakly interacting mesoscopic colloids. Soft Matter. 8 (15), 4235-4243 (2012).
- Comez, L., Masciovecchio, C., Monaco, G., Fioretto, D. Solid State Physics. Robert, E. C., Robert, L. S. 63, Academic Press. 1-77 (2012).
- Madami, M., et al. Direct observation of a propagating spin wave induced by spin-transfer torque. Nat. Nanotechnol. 6 (10), 635-638 (2011).
- Harley, R., James, D., Miller, A., White, J. W. Phonons and the elastic moduli of collagen and muscle. Nature. 267 (5608), 285-287 (1977).
- Cusack, S., Miller, A. Determination of the elastic constants of collagen by Brillouin light scattering. J. Mol. Biol. 135 (1), 39-51 (1979).
- Vaughan, J. M., Randall, J. T. Brillouin scattering, density and elastic properties of the lens and cornea of the eye. Nature. 284 (5755), 489-491 (1980).
- Palombo, F., et al. Biomechanics of fibrous proteins of the extracellular matrix studied by Brillouin scattering. J. R. Soc. Interface. 11 (101), (2014).
- Sivan, S. S., et al. Age-related accumulation of pentosidine in aggrecan and collagen from normal and degenerate human intervertebral discs. Biochem. J. 399 (1), 29-35 (2006).
- Leon, W. C. Methods in Enzymology. 144, Academic Press. 196-214 (1987).
- Fioretto, D., Scarponi, F. Dynamics of a glassy polymer studied by Brillouin light scattering. Mater. Sci. Eng. A. 521-522, 243-246 (2009).
- Palombo, F., Madami, M., Stone, N., Fioretto, D. Mechanical mapping with chemical specificity by confocal Brillouin and Raman microscopy. Analyst. 139 (4), 729-733 (2014).
- Scarcelli, G., Yun, S. H. Multistage VIPA etalons for high-extinction parallel Brillouin spectroscopy. Opt. Express. 19 (11), 10913-10922 (2011).
- Scarcelli, G., Kim, P., Yun, S. H. In Vivo Measurement of Age-Related Stiffening in the Crystalline Lens by Brillouin Optical Microscopy. Biophys. J. 101 (6), 1539-1545 (2011).
- Scarcelli, G., Yun, S. H. In vivo Brillouin optical microscopy of the human eye. Opt. Express. 20 (8), 9197-9202 (2012).
Przedruki i uprawnienia
