Przedstawiono protokół pomiaru przewodnictwa elektrycznego żywych biofilmów mikrobiologicznych w fizjologicznie istotnych warunkach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Charakterystyka transportu elektronów przez żywe biofilmy
W tym artykule
Podsumowanie
Streszczenie
Tutaj demonstrujemy metodę bramkowania elektrochemicznego używaną do charakteryzowania przewodnictwa elektrycznego biofilmów mikrobiologicznych hodowanych na elektrodach w fizjologicznie istotnych warunkach. 1 Te pomiary są wykonywane na żywych biofilmach w środowisku wodnym za pomocą elektrod źródłowych i drenujących wzorowanych na powierzchni szkła w specjalistycznej konfiguracji określanej jako układ elektrod międzypalcowych (IDA). Hodowany jest biofilm, który rozciąga się w poprzek szczeliny łączącej źródło i dren. Potencjały są przykładane do elektrod (E, S i E,D), generując prąd źródłowo-drenujący (ISD) przez biofilm między elektrodami. Zależność przewodności elektrycznej od potencjału bramki (średnia potencjałów źródła i drenu, EG = [ED + ES]/2) jest określana poprzez systematyczną zmianę potencjału bramki i pomiar wynikowego prądu źródło-dren. Zależność przewodnictwa od potencjału bramki dostarcza mechanistycznych informacji na temat procesu pozakomórkowego transportu elektronów leżącego u podstaw przewodnictwa elektrycznego badanego biofilmu. Opisana tutaj metoda pomiaru bramkowania elektrochemicznego jest bezpośrednio oparta na metodzie używanej przez M. S. Wrighton2,3 i współpracowników oraz R. W. Murraya4,5,6 i współpracowników w latach 1980-tych do badania cienkowarstwowych polimerów przewodzących.
Wprowadzenie
Zewnątrzkomórkowy transport elektronów (EET) to proces, który umożliwia niektórym mikroorganizmom transport elektronów między wewnątrzkomórkowymi procesami metabolicznymi a nierozpuszczalnymi akceptorami lub donorami elektronów, które znajdują się poza komórką, począwszy od naturalnych minerałów po elektrody. W niektórych przypadkach EET umożliwia mikroorganizmom tworzenie przewodzących elektrycznie wielokomórkowych grubych biofilmów na powierzchniach elektrod, w których komórki niemające bezpośredniego kontaktu z elektrodą mogą nadal wykorzystywać ją jako metaboliczny akceptor lub donor elektronów. Istnieje duże zainteresowanie takimi biofilmami, jak katalizatory elektrodowe do różnych zastosowań, takich jak elektrosynteza mikrobiologiczna, wykrywanie/usuwanie zanieczyszczeń oraz zdalne wytwarzanie i magazynowanie energii,7,8,9,10,11,12,13,14 ze względu na różnorodność procesów metabolicznych przeprowadzanych przez mikroorganizmy oraz trwałość biofilmów mikrobiologicznych w porównaniu do bioelektrod opartych na enzymach. 15,16 Ponadto, szlaki EET mogą być potencjalnie wykorzystywane do elektrycznego sterowania lub sygnalizowania zmian w naturalnie występujących lub genetycznie modyfikowanych mikrobiologicznych procesach metabolicznych zaangażowanych na przykład w produkcję pożądanego produktu lub wykrywanie docelowego analitu lub bodźca. Przewodność elektryczna biofilmów elektrokatalitycznych, która odróżnia je od innych materiałów biologicznych, jest centralnym aspektem ich właściwości elektrokatalitycznych, jednak niewiele wiadomo na temat procesu leżącego u podstaw EET w środowisku elektrod, a to, co wiadomo, jest wysoce kwestionowane. 17,18,19,20,21,22,23,24
Opisana tutaj jest metoda pomiaru przewodności przez żywe, hodowane na elektrodach biofilmy przy użyciu międzypalcowych matryc elektrod (IDA). IDA składają się z równoległych prostokątnych elektrod umieszczonych na płaskiej powierzchni szkła w taki sposób, że co drugie pasmo jest połączone po przeciwnych stronach matrycy, co daje 2 elektrody (źródło i dren). Dokładne zbadanie IDA (patrz na przykład Rysunek 6.12b w odnośniku #1) ujawnia, że przerwy oddzielające sąsiednie pasma są również połączone w taki sposób, że tworzą pojedynczą przerwę, która przeplata się tam i z powrotem w poprzek układu oddzielającego dwie elektrody. Rezultatem jest długa i wąska szczelina oddzielająca elektrody źródłowe i drenowe, wytwarzająca bardzo wysokie prądy źródłowo-drenowe, gdy materiał przewodzący jest formowany, odlewany, polimeryzowany lub hodowany (w przypadku rozważanego tutaj rodzaju biofilmów) na matrycy. Ponadto mały rozmiar elektrod powoduje mały prąd tła spowodowany ładowaniem pojemnościowym i zmianą stopnia utlenienia materiału przewodzącego ze zmianą potencjału bramki, ponieważ ilość materiału potrzebnego do wykonania pomiarów przewodności za pomocą IDA jest tak mała. Opisana tutaj technika bramkowania elektrochemicznego oparta na IDA, opracowana w celu scharakteryzowania cienkowarstwowych polimerów przewodzących,2,3,4,25 dopiero niedawno została zastosowana w żywych systemach. 18 Inna technika używana do pomiaru przewodnictwa żywych biofilmów wykorzystywała wielkoformatowe elektrody rozdzielające źródło i drenaż oraz mierniki źródła do ustawiania potencjału bramki. 26,27 Jednak obawy dotyczące tych metod zostały szczegółowo opisane wcześniej. 18
Poniższy protokół podsumowuje nasze doświadczenie w pomiarach przewodności żywych biofilmów siarkowych Geobacter i biokatodowych MCL. G. sulfurreducens jest modelowym organizmem redukującym elektrody, zdolnym do wykorzystywania materiałów nierozpuszczalnych, w tym elektrod, jako jedynego metabolicznego akceptora elektronów. Dodatkowo tworzy grube biofilmy, które są w stanie transportować elektrony na wielu długościach komórek, co czyni go idealnym organizmem modelowym do badania anodowego zewnątrzkomórkowego transferu elektronów na duże odległości. Dołączamy również szczegóły dotyczące badania biokatody MCL, tlenowego, autotroficznego mieszanego biofilmu wyizolowanego z katody bentosowego mikrobiologicznego ogniwa paliwowego. Biokatoda MCL (nazwana tak na cześć trzech głównych składników – Marinobacter, Chromatiaceaea i Labrenzia) jest zdolna do utleniania elektrody jako jej jedynego donora elektronów i transportu elektronów na wielu długościach komórek, co czyni go interesującym systemem katodowym do badania. Ponadto biokatoda MCL ma najwyższą odnotowaną do tej pory przewodność dla żywego systemu przy użyciu tych metod. Włączenie tych różnorodnych biofilmów elektroaktywnych do tego protokołu ma na celu podkreślenie, że technika ta ma zastosowanie do pomiaru transportu elektronów przez dowolny żywy biofilm zdolny do elektrycznej interakcji z elektrodami.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie matrycy mikroelektrod przeplatających (IDA)
- Należy pozyskać dostępne komercyjnie elektrody IDA naniesione na nieprzewodzące podłoże lub zsyntetyzować je przy użyciu standardowych metod litograficznych.28
UWAGA: Wymiary i/lub materiały IDA mogą być modyfikowane w zależności od warunków wymaganych dla różnych eksperymentów. IDAs użyte w tej procedurze zostały zakupione komercyjnie i składały się z dwóch interdygitowanych złotych mikroelektrod naniesionych na szklane podłoże, połączonych z dużymi polami elektrod na przeciwległych końcach macierzy. Elektrody są odsłonięte, natomiast linie magistralne łączące elektrody z dużymi polami kontaktowymi są pokryte cienką warstwą materiału izolacyjnego. IDAs użyte w tej procedurze składają się z dwóch zestawów złotych pasm mikroelektrod o szerokości 10 µm i długości 2 mm (źródło i dren) rozstawionych w odległości 5 µm od siebie, naniesionych na płaską szklaną powierzchnię. IDAs użyte w tej procedurze posiadały 65 par elektrod (łącznie 130 interdygitowanych pasm). Naprzemienne pasma są połączone z polami elektrod na przeciwległych końcach macierzy. - Okablowanie i izolacja IDA
- Do każdego dużego pola elektrody należy przytwierdzić przewód, używając przewodzącej żywicy epoksydowej z dodatkiem srebra.
- Przygotować przewodzącą żywicę epoksydową zgodnie z instrukcjami producenta dla konkretnej żywicy, używając pręta do mieszania lub końcówki pipety (instrukcje mogą różnić się w zależności od producenta).
- Umieścić przewód na każdym złotym polu i zabezpieczyć go taśmą laboratoryjną. Przykryć przewód i pole żywicą epoksydową ze srebrem, używając pręta do mieszania lub końcówki pipety.
- Ostrożnie przenieść do pieca w temperaturze 80 °C na 1 h w celu utwardzenia lub utwardzić zgodnie z zaleceniami producenta dla konkretnej użytej przewodzącej żywicy epoksydowej ze srebrem.
- Po utwardzeniu żywicy należy użyć multimetru, aby upewnić się, że istnieje połączenie elektryczne między końcem przewodu a polami. Rezystancja między przewodem a polem powinna wynosić < 5 Ω. Należy również użyć multimetru, aby sprawdzić, czy przewodząca żywica epoksydowa nie łączy wielu pól elektrod, co mogłoby spowodować zwarcie macierzy. Jeśli przewodząca żywica łączy wiele wyprowadzeń, należy użyć rylca w celu ich izolacji.
- Izolować połączenie wykonane żywicą, pokrywając je termicznie, elektrycznie i wodoodpornym materiałem izolacyjnym. Często odpowiednie są ognioodporne żywice poliuretanowe.
- Odciąć końcówkę stożkowej probówki wirnikowej o pojemności 15 mL (mniej więcej na poziomie znaczka 2,5 mL), aby służyła jako forma dla materiału izolacyjnego. W dnie wykonać dwa małe otwory na wyprowadzenia przewodów za pomocą igły 21g.
- Włożyć IDA do formy, a przewody przeprowadzić przez otwory w dnie formy.
- Przygotować konkretny materiał izolacyjny. Postępować zgodnie z instrukcjami dołączonymi do zakupionej żywicy.
- Napipetować izolator do formy tak, aby żywica epoksydowa ze srebrem była całkowicie pokryta (~2,5 mL) i pozostawić do wyschnięcia zgodnie ze specyfikacją producenta.
- Do każdego dużego pola elektrody należy przytwierdzić przewód, używając przewodzącej żywicy epoksydowej z dodatkiem srebra.
2. Konfiguracja, testowanie i zaszczepianie reaktora elektrochemicznego
- Przygotowanie ogniwa elektrochemicznego.
- Wprowadzić IDA, elektrodę przeciwCiało i elektrodę odniesienia do ogniwa elektrochemicznego.
UWAGA: Stosowany reaktor elektrochemiczny może być bardzo zróżnicowany, pod warunkiem, że wszystkie elektrody mieszczą się w jego wnętrzu. Należy wziąć pod uwagę, że elektroda odniesienia powinna znajdować się jak najbliżej elektrody roboczej, biorąc pod uwagę praktyczne ograniczenia reaktora. W tym przypadku stosujemy reaktor jednokomorowy z elektrodą odniesienia w odległości ~2-3 cm od elektrod roboczych. Ponadto elektroda przeciwciało powinna być większa od elektrody roboczej, aby zapewnić, że nie będzie ona czynnikiem ograniczającym w systemie. - W przypadku pracy z kulturą czystą, wysterylizować reaktor wraz z umieszczoną wewnątrz elektrodą przeciwciało. Sterylizację elektrody odniesienia przeprowadzić poprzez namoczenie w wybielaczu przez 10 min, a następnie w sterylnej wodzie dejonizowanej przez 10 min. IDA wysterylizować, zanurzając w wybielaczu na 5 s, a następnie w sterylnej wodzie dejonizowanej przez 10 s przed wprowadzeniem do reaktora.
- Wypełnić ogniwo elektrochemiczne sterylnym medium odpowiednim do wzrostu biofilmu. Dla G. sulfurreducens17,18 należy użyć medium do wody słodkiej z wyłączeniem fumaranu. Dla biocatody MCL,9 należy użyć sztucznego medium wody morskiej.9
- Podłączyć elektrody do bipotencjostatu. Podłączyć jedną elektrodę IDA do przewodu roboczego 1, drugą elektrodę IDA do przewodu roboczego 2, elektrodę odniesienia do przewodu odniesienia oraz elektrodę przeciwciało do przewodu przeciwciało.
- Wprowadzić IDA, elektrodę przeciwCiało i elektrodę odniesienia do ogniwa elektrochemicznego.
- Testy elektrochemiczne IDA.
UWAGA: Głównym celem tego testu jest upewnienie się, że dwie elektrody są odizolowane elektrycznie. Wszystkie techniki elektrochemiczne są dostępne w oprogramowaniu sterującym bipotencjostatem.- Przeprowadzić kontrolne testy przewodności (przed wzrostem biofilmu) za pomocą bipotencjostatu, aby upewnić się, że IDA funkcjonuje prawidłowo.
- Zmierzyć potencjał obwodu otwartego każdej elektrody przez 1 min.
UWAGA: W niektórych urządzeniach potencjał obwodu otwartego należy uzyskać, korzystając z programu pomiaru galwanostatycznego i ustawiając prąd na 0 mA. - Zmierzyć potencjał obwodu otwartego elektrody 2 podczas wykonywania woltamperometrii cyklicznej na elektrodzie 1 w zakresie od +0,2 V do +0,6 V (vs. SHE) przy prędkości 20 mV/s.
UWAGA: W razie potrzeby można zastosować inne zakresy i prędkości skanowania dla CV. Należy jednak unikać potencjałów, które doprowadzą do generowania wodoru lub tlenu. - Zweryfikować za pomocą oprogramowania potencjostatu, czy potencjał obwodu otwartego mierzony na elektrodzie 2 nie odzwierciedla potencjału elektrody 1 podczas CV.
UWAGA: Potencjał obwodu otwartego elektrody 2 może ulec zmianie, ale powinien być niezależny od potencjału elektrody 1. - Powtórzyć kroki od 2.2.1.1 do 2.2.1.3, z wyjątkiem tego, że należy kontrolować potencjał elektrody 2 i mierzyć potencjał obwodu otwartego elektrody 1.
- Zmierzyć potencjał obwodu otwartego każdej elektrody przez 1 min.
- Ustawić potencjał elektrod roboczych na pożądaną wartość potencjału wzrostu dla odpowiedniego elektroaktywnego biofilmu za pomocą oprogramowania bipotencjostatu. Na przykład użyć +0,5 V (vs. SHE) dla Geobacter sulfurreducens lub +0,31 V (vs. SHE) dla biocatody MCL.
- Przeprowadzić kontrolne testy przewodności (przed wzrostem biofilmu) za pomocą bipotencjostatu, aby upewnić się, że IDA funkcjonuje prawidłowo.
- Hodowla odpowiedniego elektroaktywnego biofilmu
- Zaszczepić reaktor elektrochemiczny z kultury stokowej/wzbogaconej pożądanych mikroorganizmów aktywnych elektrochemicznie, stosując standardowe aseptyczne techniki mikrobiologiczne. W testach standardowych zaszczepić w stosunku 1:20 (szczepionka do objętości reaktora) kultury o OD60 = 0,5.
- Ustawić mieszanie w reaktorze na pożądanym poziomie (~20 rpm) oraz inkubator/łaźnię wodną na pożądaną temperaturę, w zależności od warunków wzrostu interesującego biofilmu. Dla G. sulfurreducens zastosować 30 °C dla optymalnego wzrostu.
- Inkubować system zgodnie ze specyficznymi wymaganiami interesujących mikroorganizmów, aż biofilm zmostkuje przerwę oddzielającą dwie elektrody. W przypadku stacjonarnego biofilmu G. sulfurreducens inkubować przez ~7-10 dni. Dla biocatody MCL inkubować przez ~7 dni. W każdym przypadku kontrolować temperaturę na poziomie 30 °C.
3. Eksperymenty z bramkowaniem elektrochemicznym
- Wybierz parametry eksperymentalne, które zostaną wykorzystane do wyznaczenia zależności prądu od potencjału dla pomiarów bramkowania.
- Wyznacz zakres potencjałów bramki, które zostaną przyłożone do IDA w celu uzyskania prądu przewodzenia (ISD) w funkcji potencjału bramki (EGkrzywa dla układu.
UWAGA: Zakres badanych potencjałów bramki powinien obejmować wszystkie potencjały z możliwą aktywnością redoks. W przypadku braku informacji na temat badanego układu należy zastosować szeroki zakres potencjałów (-0,5 do +0,6 V względem SHE). W celu precyzyjnego dostrojenia zakresu w zależności od badanego układu można zastosować metodę prób i błędów. Potencjał bramki definiuje się następująco:
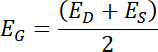
gdzie ED jest potencjałem elektrody drenu oraz ES jest potencjałem elektrody źródłowej. Zakres stosowanych potencjałów bramki jest ograniczony przez wymagania i limity specyficznego badanego układu.18
UWAGA: Należy unikać potencjałów źródła i drenu, które prowadziłyby do wydzielania tlenu i wodoru, ponieważ procesy te mogą uszkodzić biofilm. - Wyznacz napięcie źródło-dren (VSD), która będzie służyć jako siła napędowa transportu elektronów przez warstwę, od źródła do drenu. Napięcie źródło-dren definiuje się następująco:
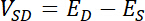
UWAGA: Napięcie źródło-dren powinno być wystarczająco niskie, aby prąd ISD skaluje się liniowo z VSD.17 - Wybierz szybkość skanowania (v), przy której EG zmienia się liniowo w czasie, niezależnie od ISD aby system mógł być przybliżony do stanu stacjonarnego dla każdego potencjału bramki.
UWAGA: W przypadku systemów biologicznych często stosuje się szybkość skanowania mniejszą niż 0,02 V/s.29,30 - Skonfiguruj oprogramowanie bipotencjostatu w celu przeprowadzenia pomiarów bramkowania (tj. przeskanowania potencjału bramki) w wybranym zakresie, przy wybranym napięciu źródło-dren oraz z pożądaną prędkością skanowania, zgodnie z powyższymi założeniami.
UWAGA: W przypadku poprzednich pomiarów bramkowania z użyciem *G. sulfurreducens*,17,19 EG = -0,5 V do 0,6 V (vs. SHE), VSD = 0,01 V lub 0,1 V, v = 0,001 V/s. Dla MCL biokatody, EG = 0,25 V do 0,7 V (vs. SHE), VSD = 0,02 V, v = 0,02 V/s.- Dodatkowo należy przeprowadzić pomiar bazowy za pomocą VSD = 0,0 V (tj. woltamperometria cykliczna dla każdej poszczególnej elektrody wykonana jednocześnie) przy tej samej wartości v, wybranej w kroku 3.1.3.
- Wykonaj pomiary bramkowania zgodnie z warunkami opisanymi w punkcie 3.1.4, zarówno w warunkach obrotu (w obecności rozpuszczalnego donora lub akceptora elektronów), jak i poza obrotem (bez rozpuszczalnego donora lub akceptora elektronów).
UWAGA: Warunki bezwymiany (non-turnover) są korzystne, ponieważ pomiary nie są zakłócane przez utlenianie lub redukcję rozpuszczalnych związków służących do metabolizmu komórkowego, choć po odjęciu prądów tła (opisanych szczegółowo w punkcie 3.1.8) podobne wyniki powinny zostać uzyskane niezależnie od zastosowanych warunków.- Warunki obrotu osiąga się poprzez zastosowanie tego samego medium reaktora, którego użyto do wzrostu bakterii na elektrodzie. Medium to zawiera rozpuszczalny donor elektronów, taki jak octan dla G. sulfurreducens,17 lub akceptor, taki jak tlen w przypadku biocatody MCL.
- Warunki bezobrotowe (non-turnover) uzyskuje się poprzez przygotowanie tego samego medium reaktora, które stosowano do wzrostu bakterii na elektrodzie, z pominięciem rozpuszczalnego donora lub akceptora elektronów. Po upewnieniu się, że potencjostat jest wyłączony, należy aseptycznie usunąć medium i dodać świeże medium bez donora elektronów w przypadku układów anodowych lub bez akceptora w przypadku układów katodowych. Alternatywnie można zastosować system przepływowy do powolnej wymiany medium na pożywkę odpowiednią dla warunków bezobrotowych.
UWAGA: Jeśli rozpuszczalnym akceptorem elektronów jest tlen (jak w przypadku MCL z biokatodą), należy napowietrzyć system mieszaniną zawierającą ok. 15% CO22 oraz 85% N2 (lub mieszanina gazowa, która zapewni utrzymanie prawidłowego pH w medium).
- Po zakończeniu pomiarów bramkowania należy użyć oprogramowania potencjostatu, aby przywrócić potencjał każdej elektrody do potencjału wzrostu w celu ponownej stabilizacji układu (stosując te same wartości, co w punkcie 2.2.2).
- Jeśli spełnione są wszystkie powyższe warunki (ISD jest niezależne od v i skaluje się liniowo z VSD), przekształć ISD wartości na przewodność elektryczną, korzystając z następujących równań opisanych wcześniej31
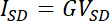

- gdzie G jest przewodnością, a S jest współczynnikiem skalującym zależnym od systemu, uwzględniającym takie zmienne jak rozmiar elektrody, szerokość szczeliny oraz wysokość biofilmu. W przypadku niektórych systemów wartość S można wyznaczyć na podstawie określonych równań.31 Alternatywnie S można obliczyć numerycznie przy użyciu oprogramowania do modelowania, zgodnie z wcześniejszym szczegółowym opisem.17
- Odejmij prądy tła, aby określić kształt i wartość prądu przewodzenia. Odejmij prąd generowany przy VSD = 0,0 V z prądu generowanego w VSD = 0,01 V lub odjąć prąd drenu od prądu źródła wygenerowanego przy VSD = 0,01 V. Obie metody usuwają prądy tła, pozostawiając jedynie prąd przewodzenia.
- Wyznacz zakres potencjałów bramki, które zostaną przyłożone do IDA w celu uzyskania prądu przewodzenia (ISD) w funkcji potencjału bramki (EGkrzywa dla układu.
- Pomiary bramkowania elektrochemicznego zależne od temperatury
- Określ interesujący zakres temperatur. Zakres ten jest w dużym stopniu zależny od badanego układu, jednak należy stosować temperatury istotne fizjologicznie.
UWAGA: W poprzednich badaniach stosowano zakres temperatur od 10 °C Proszę podać tekst źródłowy do tłumaczenia. 30 °C w celu zbadania transportu elektronów w warunkach fizjologicznie istotnych dla mikroorganizmów mezofilnych.17 - Należy zapewnić cyrkulacyjną kąpiel wodną lub inkubator do regulacji temperatury reaktora oraz reaktor kontrolny, aby upewnić się, że wartość zadana i rzeczywista temperatura medium są identyczne.
- Umieść termometr lub termoparę w reaktorze kontrolnym w miejscu, w którym znajdowałby się IDA.
- Wykonaj ISD pomiary (patrz 3.1.4) w zakresie temperatur wybranych dla warunków obrotowych i nieobrotowych (opisanych w kroku 3.1.5) przy użyciu bipotencjostatu, zgodnie z jedną z dwóch poniższych procedur.
- Generowanie ISD kontra EG krzywe, opisane powyżej (patrz 3.1), dla każdej temperatury w interesującym zakresie temperatur. W przypadku materiałów wykazujących przewodnictwo redoks, takich jak *G. sulfurreducens* a w przypadku biokatody MCL, do wyznaczenia I wykorzystuje się prąd szczytowy dla każdej temperaturySD vs. zależność od T.
UWAGA: Metoda ta służy do generowania pełnego ISD kontra EG krzywa dla każdej temperatury, ale wymaga to więcej czasu niż w przypadku drugiej opcji. - Alternatywnie, za pomocą bipotencjostatu ustaw i utrzymuj IDA przy potencjale bramki, który zapewnia maksymalny prąd przewodzenia (uzyskany z ISD kontra EG krzywa, krok 3.1.4) i zarejestrować maksymalny prąd przewodzenia za pomocą bipotencjostatu podczas cyklicznych zmian temperatury w zakresie wybranym za pomocą wbudowanych sterowników łaźni wodnej lub inkubatora.
UWAGA: Przy zastosowanej tutaj geometrii elektrody/reaktora, ISD oraz T stabilizują się przez co najmniej 20 min, a średni stabilny prąd ISD stosuje się dla każdej temperatury. W zależności od konkretnego układu może być wymagany dłuższy lub krótszy czas stabilizacji. Metoda ta jest szybsza od pierwszej i powoduje mniejszy stres biofilmu. Jednak nie generuje ona pełnych krzywych bramkowania. - Zmieniaj temperaturę z jednego punktu nastawy na drugi i z powrotem, korzystając z wbudowanych sterowników inkubatora lub łaźni wodnej, aby określić odwracalność reakcji i upewnić się, że cykle temperaturowe nie uszkadzają biofilmu.
- Generowanie ISD kontra EG krzywe, opisane powyżej (patrz 3.1), dla każdej temperatury w interesującym zakresie temperatur. W przypadku materiałów wykazujących przewodnictwo redoks, takich jak *G. sulfurreducens* a w przypadku biokatody MCL, do wyznaczenia I wykorzystuje się prąd szczytowy dla każdej temperaturySD vs. zależność od T.
- Przywróć temperaturę do standardowej temperatury hodowli, korzystając z wbudowanych sterowników inkubatora lub łaźni wodnej, i poczekaj, aż system się ustabilizuje.
UWAGA: W przypadku przewodnika redoks ISD dane w funkcji 1/T można dopasować do równania Arrheniusa, co pozwala na obliczenie energii aktywacji w następujący sposób:
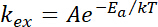
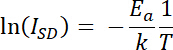
gdzie Ea czy energia aktywacji dla przeniesienia elektronów między sąsiadującymi kofaktorami redoks jest k jest stałą Boltzmanna.
- Określ interesujący zakres temperatur. Zakres ten jest w dużym stopniu zależny od badanego układu, jednak należy stosować temperatury istotne fizjologicznie.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Układy IDA zostały przewodowo połączone, zaizolowane i przetestowane, aby upewnić się, że dwie elektrody są od siebie elektrycznie odizolowane (Rysunek 1). Reaktory zostały zmontowane, zaszczepione szczepem G. sulfurreducens i inkubowane do momentu, aż biofilm wypełnił przerwę między elektrodami. Można wizualnie zaobserwować, że biofilm G. sulfurreducens pokrywa macierz. W przypadku innych biofilmów badacz może być zmuszony do przeprowadzeni...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Podczas konfiguracji IDA ważne jest, aby sprawdzić, czy źródło i drenaż nie są ze sobą zwarte przed pomiarami bramkowania elektrochemicznego, ponieważ zmieni to krzywą ISD w stosunku do EG i może prowadzić do błędnych wyników i interpretacji. Bardzo ważne jest również wybranie V, SD i v w taki sposób, aby prąd był liniowo zależny od VSD i niezależny od v. Jeśli tak nie jest, równania opisane powyżej nie mogą być wykorzystane do obliczenia przewodności.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
M.D.Y, S.M.G-S. i L.M.T. uznają Biuro Badań Marynarki Wojennej (Nagroda #N0001415WX01038 i N0001415WX00195), Laboratorium Badawcze Marynarki Wojennej oraz Instytut Nanonauk Laboratorium Badawczego Marynarki Wojennej; M.Y.E.-N. jest wspierany przez Departament Energii Stanów Zjednoczonych w ramach grantu DE-FG02-13ER16415.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| IDAs | CH Instruments | 012125 | Wyprodukowano przez ALS-Japan; sprzedawane przez CH Instruments |
| Drut | Digikey | W7-ND | |
| Przewodzący srebrny epoksyd | Mikroskopia elektronowa nauki | 12670-EE | |
| Materiał izolacyjny | 3M | 2131-B | Scotchast Związek zmniejszający palność |
| 15 ml stożkowa rurka wirówkowa | VWR | 89004-368 | |
| Igła 21 g | VWR | BD-305165 | |
| Końcówki do pipet 5 ml | VWR | 82018-842 | |
| Pikier 5 ml | VWR | 89079-976 | |
| Składniki do pożywki słodkowodnej | Sigma Aldrich | Wszystkie standardowe chemikalia laboratoryjne | |
| Chlorek | |||
| Fosforan sodu jednozasadowy | |||
| Wodorowęglan | |||
| Składniki sztucznej wody morskiej | Sigma Aldrich | Wszystkie standardowe chemikalia laboratoryjne | |
| Chlorek | |||
| Chlorek magnezu sześciowodny | |||
| Siarczan magnezu siedmiowodny | |||
| Chlorek | |||
| Wodorowęglan | |||
| Chlorek wapnia dwuwodny | |||
| Chlorek | |||
| Fosforan potasu dwuzasadowy | |||
| Ag/AgCl elektroda referencyjna | Basi | MF-2079 | |
| Grafitowa elektroda przeciwprętowa | Mikroskopia elektronowa nauki | 70230 | |
| Łaźnia recyrkulacyjna | Thermo Scientific | 152-5256 | |
| Bipotencjostat | Instrumenty sosnowe | WD-20 | http://www.voltammetry.net/pine/aftermath/user |
| Mieszadła | VWR | 58947-114 | |
| G. sulfurreducens kultura | ATCC | 51573 | |
| Reaktor z płaszczem | Pine Instruments | RRPG085 |
Bibliografia
- Boyd, D. A., et al. Biofilms in Bioelectrochemical Systems. , John Wiley & Sons, Inc. 177-210 (2015).
- Natan, M. J., Wrighton, M. S. Chemically modified microelectrode arrays. Prog Inorg Chem. 7, 391-494 (1990).
- Paul, E. W., Ricco, A. J., Wrighton, M. S. Resistance of polyaniline films as a function of electrochemical potential and the fabrication of polyaniline-based microelectronic devices. J Phys Chem-US. 89, 1441-1447 (1985).
- Dalton, E. F., et al. Charge transport in electroactive polymers consisting of fixed molecular redox sites. Chem Phys. 141, 143-157 (1990).
- Chidsey, C. E. D., Murray, R. W. Electroactive Polymers and Macromolecular Electronics. Science. 231, 25-31 (1986).
- Chidsey, C. E. D., Murray, R. W. Redox capacity and direct current electron conductivity in electroactive materials. J Phys Chem-US. 90, 1479-1484 (1986).
- Gregoire, K. P., Glaven, S. M., Hervey, J., Lin, B., Tender, L. M. Enrichment of a High-Current Density Denitrifying Microbial Biocathode. J Electrochem Soc. 161, H3049-H3057 (2014).
- Siegert, M., Yates, M. D., Spormann, A. M., Logan, B. E. Methanobacterium dominates biocathodic Archaeal communities in methanogenic microbial electrolysis cells. ACS Sus Chem Eng. 3, 1668-1676 (2015).
- Wang, Z., et al. A previously uncharacterized, nonphotosynthetic member of the Chromatiaceae is the primary CO2-fixing constituent in a self-regenerating biocathode. Appl Environ Microbiol. 81, 699-712 (2015).
- Marshall, C. W., Ross, D. E., Fichot, E. B., Norman, R. S., May, H. D. Long-term Operation of Microbial Electrosynthesis Systems Improves Acetate Production by Autotrophic Microbiomes. Environ Sci Technol. 47, 6023-6029 (2013).
- Strik, D. P. B. T. B., Picot, M., Buisman, C. J. N., Barrière, F. pH and Temperature Determine Performance of Oxygen Reducing Biocathodes. Electroanalysis. 25, 652-655 (2013).
- Strycharz, S. M., et al. Reductive dechlorination of 2-chlorophenol by Anaeromyxobacter dehalogenans with an electrode serving as the electron donor. Environ Microbiol Report. 2, 289-294 (2010).
- Yates, M. D., et al. Microbial Electrochemical Energy Storage and Recovery in a Combined Electrotrophic and Electrogenic Biofilm. Environ Sci Technol Lett. 4, 374-379 (2017).
- Tender, L. M., et al. Harnessing microbially generated power on the seafloor. Nature Biotechnology. 20, 821-825 (2002).
- Yates, M. D., Siegert, M., Logan, B. E. Hydrogen evolution catalyzed by viable and non-viable cells on biocathodes. Int J Hydrogen Energ. 39, 16841-16851 (2014).
- Fokina, O., Eipper, J., Winandy, L., Kerzenmacher, S., Fischer, R. Improving the performance of a biofuel cell cathode with laccase-containing culture supernatant from Pycnoporus sanguineus. Bioresource Technol. 175, 445-453 (2015).
- Yates, M. D., et al. Thermally activated long range electron transport in living biofilms. Phys Chem Chem Phys. 17, 32564-32570 (2015).
- Yates, M. D., et al. Measuring conductivity of living Geobacter sulfurreducens biofilms. Nat Nano. 11, 910-913 (2016).
- Snider, R. M., Strycharz-Glaven, S. M., Tsoi, S. D., Erickson, J. S., Tender, L. M. Long-range electron transport in Geobacter sulfurreducens biofilms is redox gradient-driven. Proc Natl Acad Sci USA. 109, 15467-15472 (2012).
- Strycharz-Glaven, S. M., Snider, R. M., Guiseppi-Elie, A., Tender, L. M. On the electrical conductivity of microbial nanowires and biofilms. Energ Environ Sci. 4, 4366-4379 (2011).
- Malvankar, N. S., Tuominen, M. T., Lovley, D. R. Comment on "On electrical conductivity of microbial nanowires and biofilms" by S. M. Strycharz-Glaven, R. M. Snider, A. Guiseppi-Elie and L. M. Tender, Energy Environ. Sci., 2011, 4, 4366. Energy Environ. Sci. 5, 6247-6249 (2012).
- Malvankar, N. S., et al. Tunable metallic-like conductivity in microbial nanowire networks. Nat Nanotechnol. 6, 573-579 (2011).
- Strycharz-Glaven, S. M., Tender, L. M. Reply to the 'Comment on "On electrical conductivity of microbial nanowires and biofilms"' by N. S. Malvankar, M. T. Tuominen and D. R. Lovley, Energy Environ. Sci., 2012, 5. Energy Environ. Sci. 5, 6250-6255 (2012).
- Strycharz-Glaven, S. M., et al. Electron Transport through Early Exponential-Phase Anode-Grown Geobacter sulfurreducens Biofilms. Chem Electro Chem. 1, 1957-1965 (2014).
- Chidsey, C. E., Feldman, B. J., Lundgren, C., Murray, R. W. Micrometer-spaced platinum interdigitated array electrode: fabrication, theory, and initial use. Anal Chem. 58, 601-607 (1986).
- Li, C., Lesnik, K. L., Fan, Y., Liu, H. Redox Conductivity of Current-Producing Mixed Species Biofilms. PLOS ONE. 11, e0155247(2016).
- Malvankar, N. S., et al. Tunable metallic-like conductivity in microbial nanowire networks. Nat Nano. 6, 573-579 (2011).
- Ing, N. L., Nusca, T. D., Hochbaum, A. I. Geobacter sulfurreducens pili support ohmic electronic conduction in aqueous solution. Phys Chem Chem Phys. 19, 21791-21799 (2017).
- Fricke, K., Harnisch, F., Schröder, U. On the use of cyclic voltammetry for the study of anodic electron transfer in microbial fuel cells. Energ Environ Sci. 1, 144-147 (2008).
- Marsili, E., Rollefson, J. B., Baron, D. B., Hozalski, R. M., Bond, D. R. Microbial biofilm voltammetry: direct electrochemical characterization of catalytic electrode-attached biofilms. Appl Environ Microbiol. 74, 7329-7337 (2008).
- Kankare, J., Kupila, E. -L. In-situ conductance measurement during electropolymerization. J Electroanal Chem. 322, 167-181 (1992).
- Byun, H. S., Pirbadian, S., Nakano, A., Shi, L., El-Naggar, M. Y. Kinetic Monte Carlo Simulations and Molecular Conductance Measurements of the Bacterial Decaheme Cytochrome MtrF. Chem Electro Chem. 1, 1932-1939 (2014).
- El Kasmi, A., Wallace, J. M., Bowden, E. F., Binet, S. M., Linderman, R. J. Controlling interfacial electron-transfer kinetics of cytochrome c with mixed self-assembled monolayers. J Am Chem Soc. 120, 225-226 (1998).
- Bortolotti, C. A., et al. The Reorganization Energy in Cytochrome c is Controlled by the Accessibility of the Heme to the Solvent. J Phys Chem Lett. 2, 1761-1765 (2011).
- Gallaway, J. W., Calabrese Barton, S. A. Kinetics of Redox Polymer-Mediated Enzyme Electrodes. J Am Chem Soc. 130, 8527-8536 (2008).
- Thackeray, J. W., White, H. S., Wrighton, M. S. Poly(3-methylthiophene)-coated electrodes: optical and electrical properties as a function of redox potential and amplification of electrical and chemical signals using poly(3-methylthiophene)-based microelectrochemical transistors. J Phys Chem-US. 89, 5133-5140 (1985).
- Jugnet, Y., Tourillon, G., Duc, T. M. Evidence of Intrinsic Extended π-Bonding Band and Metalliclike Behavior in Undoped and Doped Electropolymerized Poly (3-methylthiophene) Films. Phys Rev Lett. 56, 1862-1865 (1986).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
