Kwantyfikacja podziału i ekspansji komórek ma kluczowe znaczenie dla zrozumienia wzrostu całej rośliny. W tym miejscu przedstawiamy protokół obliczania parametrów komórkowych określających tempo wzrostu liści kukurydzy i podkreślamy wykorzystanie tych danych do badania molekularnych mechanizmów regulacji wzrostu poprzez kierowanie strategiami pobierania próbek specyficznymi dla danego etapu rozwoju.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Analiza kinematyczna podziału i ekspansji komórek: ilościowe określanie komórkowych podstaw wzrostu i pobieranie próbek stref rozwojowych w liściach Zea mays
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Analizy wzrostu są często używane w nauce o roślinach do badania kontrastujących genotypów i wpływu warunków środowiskowych. Aspekt komórkowy tych analiz ma kluczowe znaczenie, ponieważ wzrost jest napędzany przez podział i wydłużanie komórek. Analiza kinematyczna stanowi metodologię ilościowego określania tych dwóch procesów. Co więcej, technika ta jest łatwa w użyciu w niewyspecjalizowanych laboratoriach. W niniejszej pracy przedstawiono protokół przeprowadzania analizy kinematycznej w liściach kukurydzy jednoliściennej (Zea mays). Przedstawiono dwa aspekty: (1) kwantyfikację parametrów podziału i ekspansji komórek oraz (2) określenie lokalizacji stref rozwojowych. Może to służyć jako podstawa do projektowania próbek i/lub może być przydatne do interpretacji danych z pomiarów biochemicznych i molekularnych z wysoką rozdzielczością przestrzenną w strefie wzrostu liści. Strefa wzrostu liści kukurydzy jest zbierana w stanie ustalonym. Poszczególne liście są używane do oznaczania długości merystemów za pomocą barwienia DAPI, a profile długości komórek za pomocą mikroskopii DIC. Protokół jest odpowiedni dla pojawiających się liści jednoliściennych zbieranych w stanie ustalonym, ze strefami wzrostu rozciągającymi się na co najmniej kilka centymetrów. Aby lepiej zrozumieć regulację wzrostu roślin, należy połączyć dane dotyczące wzrostu i badania molekularne. Dlatego istotną zaletą analizy kinematycznej jest możliwość skorelowania zmian na poziomie molekularnym z dobrze zdefiniowanymi etapami rozwoju komórkowego. Co więcej, pozwala na bardziej skoncentrowane próbkowanie określonych etapów rozwoju, co jest przydatne w przypadku ograniczonego budżetu lub czasu.
Wprowadzenie
Analiza wzrostu opiera się na zestawie narzędzi powszechnie stosowanych przez naukowców zajmujących się roślinami w celu opisania różnic w wzroście uwarunkowanych genotypowo i/lub odpowiedzi fenotypowych na czynniki środowiskowe. Obejmują one pomiary rozmiaru i masy całej rośliny lub konkretnego organu oraz obliczenia tempa wzrostu, aby zbadać mechanizmy leżące u podłoża wzrostu. Wzrost organu jest determinowany przez podziały i ekspansję komórek na poziomie komórkowym. Dlatego uwzględnienie ilościowego pomiaru tych dwóch procesów w analizach wzrostu jest kluczowe dla zrozumienia różnic w wzroście całych organów1. W związku z tym niezbędne jest opracowanie odpowiedniej metodologii wyznaczania parametrów wzrostu komórkowego, która byłaby stosunkowo łatwa w użyciu dla laboratoriów niespecjalistycznych.
Analiza kinetyczna została już ustanowiona jako podejście zapewniające potężne ramy dla rozwoju modeli wzrostu organów2. Technika ta została zoptymalizowana dla układów liniowych, takich jak korzenie Arabidopsis thaliana i liście roślin jedliściennych, ale także dla układów nieliniowych, takich jak liście roślin dwuliściennych3. Obecnie metodologia ta jest coraz częściej wykorzystywana do badania, w jaki sposób czynniki genetyczne, hormonalne, rozwojowe i środowiskowe wpływają na podziały i ekspansję komórek w różnych organach (Tabela 1). Ponadto zapewnia ona ramy pozwalające powiązać procesy komórkowe z ich podstawowymi regulacjami biochemicznymi, molekularnymi i fizjologicznymi (Tabela 2), choć ograniczenia mogą wynikać z rozmiaru organu i organizacji przestrzennej w przypadku technik wymagających większej ilości materiału roślinnego (np. pomiary metabolitów, proteomika, itp.).
Liście roślin jednoszkiełkowych, takie jak liść kukurydzy (Zea mays), stanowią układy linearne, w których komórki przemieszczają się od podstawy liścia w kierunku jego wierzchołka, przechodząc sekwencyjnie przez merystem i strefę elongacji, aż do strefy dojrzałej. Dzięki temu jest to idealny system modelowy do ilościowych badań przestrzennych wzorców wzrostu4. Co więcej, liście kukurydzy posiadają rozległe strefy wzrostu (merystem i strefa elongacji rozciągające się na kilka centymetrów5), co stwarza możliwości prowadzenia badań na innych poziomach organizacji. Pozwala to na badanie (domniemanych) mechanizmów regulacyjnych kontrolujących podziały i ekspansję komórek, ilościowo określonych za pomocą analizy kinematycznej z wykorzystaniem szeregu technik molekularnych, pomiarów fizjologicznych oraz metod biologii komórki (Tabela 2).
W niniejszym materiale przedstawiamy protokół przeprowadzania analizy kinematycznej w liściach roślin jednoliściennych. Po pierwsze, wyjaśniamy, jak przeprowadzić właściwą analizę podziałów komórkowych oraz elongacji komórek w zależności od położenia wzdłuż osi liścia i jak obliczyć parametry kinematyczne. Po drugie, pokazujemy, w jaki sposób analiza ta może posłużyć jako podstawa do zaprojektowania schematu pobierania próbek. Omówiono tutaj dwa przypadki: pobieranie próbek o wysokiej rozdzielczości oraz pobieranie próbek celowanych, co pozwala odpowiednio na lepszą interpretację danych lub oszczędność czasu i środków.
Tabela 1. Przegląd metod analizy kinematycznej do kwantyfikacji podziałów i ekspansji komórek w różnych organach.
| organ | bibliografia |
| liście jedliścienne | 16, 20, 21, 22 |
| wierzchołki korzeni | 2, 23, 24, 25, 26, 27, 28, 29 |
| liście dwudzielcowe | 21, 30, 31 |
| merystem wierzchołkowy pędu | 32 |
Tabela 1. Przegląd metod analizy kinematycznej służących do ilościowego określania podziału i rozrostu komórek w różnych organach.
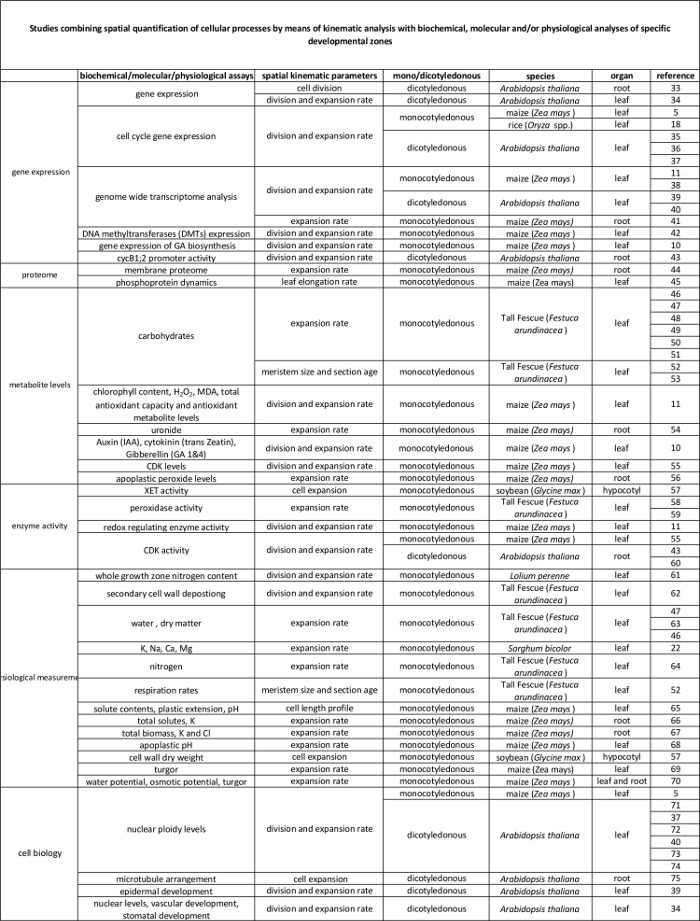
Tabela 2. Związek między procesami komórkowymi ilościowo określonymi za pomocą analizy kinematycznej a ich regulacją na poziomie molekularnym.Odesłania do różnych badań łączących ilościowe określanie procesów komórkowych z wynikami testów biochemicznych i molekularnych u różnych gatunków i w różnych organach. Xyloglucan endotransglucosylase (XET), malondialdehyde (MDA), cyclin-dependent kinases (CDK). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej tabeli.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Poniższy protokół analizy kinematycznej jest prawidłowy wyłącznie dla liści w stanie stabilnego wzrostu. Implikuje to stałą szybkość wydłużania się liści oraz stabilne wzorce przestrzenne długości i ekspansji komórek w liściu w okresie kilku dni6.
1. Wzrost roślin i pomiary szybkości wydłużania się liści (LER)
- Wybierz liść znajdujący się w fazie wzrostu stacjonarnego (steady-state growth) oraz w interesującym nas stadium rozwojowym.
UWAGA: Istnieje różnica między wzrostem stacjonarnym a wzrostem powtarzalnym, który zakłada podobne wzorce przestrzenne na kolejnych liściach na tej samej osi. W wczesnych etapach wzrostu siewki kolejne liście zazwyczaj rosną coraz szybciej ze względu na zwiększający się rozmiar strefy wzrostu7. Choć w kilku wyższych pozycjach liści może występować podobny wzorzec wzrostu8, jest to faza przejściowa, która może być wpływana przez badane zabiegi. Dlatego ważne jest, aby porównywać linie i zabiegi ściśle w odniesieniu do tej samej pozycji liścia, nawet jeśli rozwija się on w innym czasie. Nawet przy stałej prędkości elongacji profil tempa wzrostu niekoniecznie jest taki sam w różnych stadiach rozwojowych. Dlatego istotne jest analizowanie liści w tym samym stadium rozwojowym8, zazwyczaj definiowanym przez liczbę dni od pojawienia się. - Aby przeprowadzić pełną analizę kinematyczną wzrostu liści u jedliściennych, wyhoduj co najmniej 15 roślin dla każdego zabiegu i genotypu w kontrolowanych warunkach w pomieszczeniu do upraw.
- W momencie pojawienia się interesującego nas liścia (wyłaniającego się z rozety liści otaczających), zacznij codziennie mierzyć długość liścia za pomocą linijki, aż do jego pełnego rozwinięcia (Rycina 1i). Długość liścia określa się jako odległość od poziomu gleby do wierzchołka liścia. Należy uważać, aby nie złamać ani nie uszkodzić liścia, ponieważ mogłoby to zmienić jego wzrost.
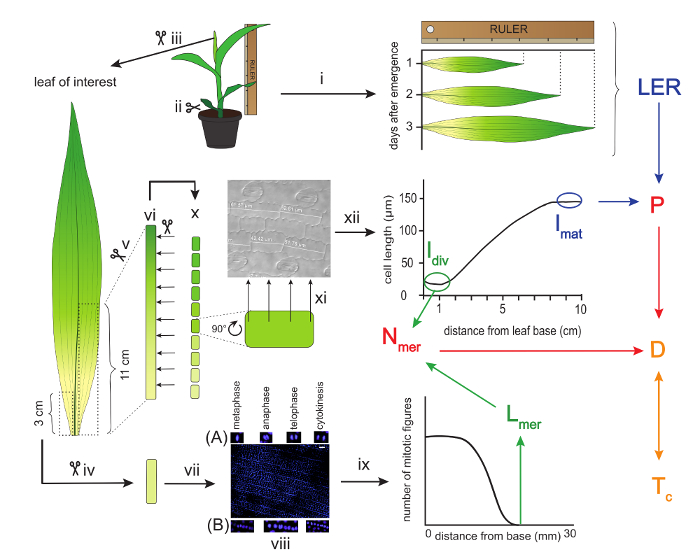
Rysunek 1: Schematyczny przegląd analizy kinematycznej liści kukurydzy. Długość badanego liścia mierzy się linijką przez trzy kolejne dni, aby obliczyć tempo wydłużania liścia (LER). Następnie liść jest zbierany, a trzycentymetrowy fragment wykorzystywany do określenia wielkości merystemu. Odbywa się to poprzez pomiar długości od podstawy do najbardziej dystalnej figury mitotycznej po barwieniu DAPI. (A) Przykłady proliferacyjnych figur mitotycznych oraz (B) formatywnych figur mitotycznych. Pierwsze jedenaście centymetrów od podstawy liścia po drugiej stronie nerwu głównego służy do wycięcia dziesięciu jednocentymetrowych segmentów do pomiarów długości komórek. Pomiary te stanowią podstawę do stworzenia profilu długości komórek, który służy do określenia długości komórki dojrzałej (lmat) oraz długości komórek opuszczających merystem (ldiv). Wartości LER oraz lmat są wykorzystywane do obliczenia tempa produkcji komórek (P), natomiast ldiv i Lmer służą do obliczenia liczby komórek w merystemie (Nmer). Z kolei P i Nmer są wykorzystywane do obliczenia średniego tempa podziałów komórkowych (D), które jest odwrotnością czasu trwania cyklu komórkowego (Tc). Strzałki tego samego koloru wskazują parametry wykorzystywane do obliczenia parametru następującego po tych strzałkach. Paski skali = 40 µm. Cyfry rzymskie odnoszą się do konkretnych procedur eksperymentalnych opisanych w protokole. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Zbiór
- W interesującym etapie rozwojowym (np. w trzecim dniu po wyłonieniu) wybrać co najmniej pięć reprezentatywnych roślin z partii do przeprowadzenia analizy kinematycznej. Pozostałe rośliny mierzyć nadal, zgodnie z opisem w kroku 1.3, aby określić końcową długość liścia.
- Odciąć nadziemną część rośliny. Aby zachować nienaruszoną część merystematyczną, należy ciąć jak najbliżej korzeni (Ryc. 1ii).
- Zaczynając od liści zewnętrznych, usuwać wszystkie liście aż do liścia docelowego, delikatnie rozwijając je jeden po drugim. W razie potrzeby usunąć kilka dodatkowych milimetrów z podstawy, aby oddzielić liście. Usunąć również wierzchołek oraz małe liście zamknięte przez liść docelowy (Ryc. 1iii).
- Wyciąć segment o długości 3 cm, zaczynając od podstawy po jednej stronie żyłki środkowej, i przechowywać go w probówce 1,5 ml wypełnionej roztworem etanolu absolutnego i kwasu octowego w stosunku 3:1 (v:v) (UWAGA: należy stosować rękawiczki) w temperaturze 4 °C przez okres od 24 h do kilku miesięcy (Ryc. 1iv). Segment ten zostanie później wykorzystany do określenia długości merystemu.
- Z drugiej strony żyłki wyciąć segment o długości 11 cm od podstawy (Ryc. 1 v) i umieścić go w probówce 15 ml wypełnionej etanolem absolutnym w temperaturze 4 °C na co najmniej 6 h w celu usunięcia pigmentów (Ryc. 1 vi).
UWAGA: W dalszej kolejności do określenia profilu długości komórek należy wykorzystać tylko pierwsze 10 cm (patrz: Dyskusja). - Wymienić etanol absolutny na kolejną rundę oczyszczania w temperaturze 4 °C przez co najmniej 24 h (Ryc. 1vi).
- Na koniec zastąpić etanol absolutny czystym kwasem mlekowym (UWAGA: należy stosować rękawiczki) w celu oczyszczenia i przechowywania w temperaturze 4 °C przez 24 h lub do czasu dalszego użycia (Ryc. 1vi).
3. Pomiary długości merystemu
- Przygotować bufor płuczący zawierający 50 mM chlorku sodu (NaCl), 5 mM kwasu etylenodiaminotetraoctowego (EDTA; UWAGA: należy używać rękawiczek) oraz 10 mM Tris(hydroksymetylo)aminometanu-kwasu solnego (TRIS-HCl; pH 7).
- Wziąć odcinek o długości 3 cm z sekcji 2.4 i namoczyć go w buforze przez 20 min (Rycina 1vii).
- W czasie oczekiwania przygotować z buforu płuczącego roztwór barwiący 4',6-diamidyno-2-fenyloindolem (DAPI) o stężeniu 1 µg/ml, przechowując go w lodzie i w ciemności.
- Zabarwić jądra komórkowe, umieszczając odcinek merystemu w roztworze barwiącym DAPI na 2-5 min. Pracować w lodzie i w ciemności (Rycina 1vii).
- Sprawdzić sygnał fluorescencyjny, szybko montując odcinek na szkiełku przedmiotowym i przykrywając go szkiełkiem nakrywnym. Komórki epidermy powinny wykazywać fluorescencję, natomiast leżące poniżej warstwy komórek nie powinny.
- Jeśli barwienie jest niewystarczające, umieścić odcinek ponownie w roztworze barwiącym DAPI na kilka dodatkowych minut.
- Aby zatrzymać barwienie, zamontować odcinki w kropli buforu płuczącego na szkiełku przedmiotowym i przykryć szkiełkiem nakrywnym.
- Użyć mikroskopu wyposażonego w fluorescencję UV przy powiększeniu 20X, co pozwala na jednoczesną wizualizację około 1 000 komórek epidermy. Przeskanować cały odcinek w poszukiwaniu proliferacyjnych figur mitotycznych (metafaza, anafaza, telofaza i cytokineza), unikając przy tym formatywnych podziałów komórkowych rozwijających się szparek (Rycina 1viii)9. Określić położenie najbardziej dystalnej figury mitotycznej.
- Wyznaczyć długość merystemu, mierząc odległość między podstawą liścia a najbardziej dystalną figurą mitotyczną epidermy. Użyć oprogramowania do analizy obrazu (np. ImageJ), aby zmierzyć pełną długość pola widzenia obrazu.
- Policzyć liczbę pól widzenia, które pokrywają pełną długość merystemu (od podstawy liścia do najbardziej dystalnej figury mitotycznej) i pomnożyć tę liczbę przez długość jednego pola widzenia, aby uzyskać całkowitą długość merystemu (Rycina 1ix).
4. Profil długości komórek
- Nabrać fragment przechowywany w kwasie mlekowym (krok 2.5) i ostrożnie położyć go na blacie. Za pomocą skalpela pociąć fragmenty na 10 odcinków o długości 1 cm każdy (Rycyna 1x).
- Zamontować kolejne fragmenty liścia na szkiełku przedmiotowym w małej kropli kwasu mlekowego. Należy upewnić się, że każdorazowo stroną skierowaną do góry jest strona adaksjalna lub abaksjalna. Co do zasady nie ma preferencji co do wyboru konkretnej strony.
- Użyć mikroskopu wyposażonego w optykę kontrastu interferencyjnego (DIC), aby przeanalizować fragmenty, zaczynając od nasady liścia. Za pomocą oprogramowania do analizy obrazu zmierzyć długość co najmniej 20 powielonych komórek epidermalnych w rzędach bezpośrednio sąsiadujących z rzędami szpारकowymi, aby zapewnić spójny wybór tego samego typu komórek.
- Wykonamy to w równomiernie rozmieszczonych pozycjach wzdłuż każdego z fragmentów (wystarczy 4 pozycje na fragment) i należy pamiętać o zapisaniu odpowiadającej pozycji dla każdego pomiaru w obrębie liścia (Rycyna 1xi).
- Wyznaczyć średnią długość komórek na każdym mm wzdłuż osi liścia, stosując procedurę lokalnego wygładzania wielomianowego zaimplementowaną w skrypcie R (Rycyna 1xii; Plik uzupełniający 1).
UWAGA: Skrypt R dostarcza serię danych z rosnącym stopniem wygładzania. Wymagany stopień wygładzania jest w pewnym stopniu arbitralny i idealnie powinien jedynie usuwać lokalny szum, nie wpływając na ogólny kształt krzywej. Należy upewnić się, że zastosowano ten sam stopień wygładzania dla wszystkich próbek w ramach jednego eksperymentu. - Obliczyć średnią długość komórek w każdej pozycji pomiędzy roślinami i wyznaczyć błąd standardowy, aby stworzyć profil długości komórek wzdłuż osi liścia.
5. Obliczenia parametrów kinematycznych (Patrz plik uzupełniający 2)
- Oblicz LER, wyznaczając zmianę długości liścia między dwoma kolejnymi punktami czasowymi (np. 24 hr, jak w kroku 1.3) i dzieląc ją przez przedział czasowy.
- Oblicz długość strefy wzrostu (Lgz) odpowiadającą pozycji dystalnej względem podstawy, w której komórki osiągają 95% swojej dojrzałej długości na wygładzonym profilu długości komórek.
- Dla każdej pozycji na wygładzonym profilu długości komórek wyznacz 95% średniej wszystkich długości komórek następujących po tej pozycji (Rysunek 2).
- Porównaj wygładzone długości komórek (krok 4.4) z obliczoną wartością 95% długości komórki dla każdej pozycji. Począwszy od podstawy liścia, strefa wzrostu kończy się w pozycji, w której rzeczywista długość komórki jest równa 95% długości komórek następnych (Rysunek 2; patrz Supplementary Data 2).
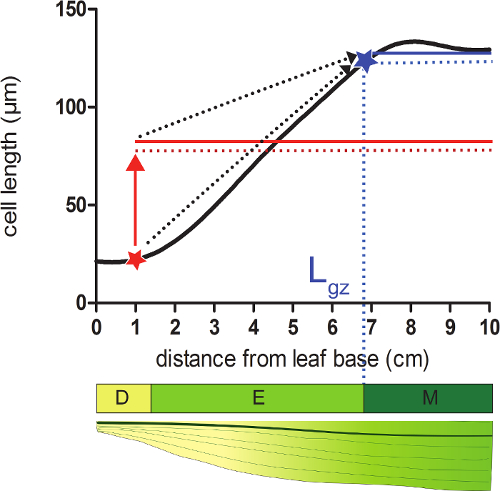
Rysunek 2: Wyznaczanie końca strefy wzrostu. Merystem: W pozycji zaznaczonej czerwoną gwiazdką rzeczywisty rozmiar komórki jest mniejszy niż 95% (czerwona przerywana linia) średniego rozmiaru wszystkich komórek znajdujących się za tą pozycją (czerwona linia ciągła). Koniec strefy wzrostu (Lgz; zaznaczony niebieską gwiazdką) znajduje się w miejscu, gdzie 95% (niebieska linia przerywana) średniego rozmiaru wszystkich komórek znajdujących się za tą pozycją (niebieska linia ciągła) jest równe rzeczywistemu rozmiarowi komórki. Strefa podziałów (D), strefa elongacji (E) i strefa dojrzała (M). Przerywane strzałki wskazują zbieżność między rozmiarem lokalnym a 95% średniego rozmiaru w części dystalnej liścia podczas przemieszczania się z pozycji bazalnych w stronę wierzchołka liścia. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Oblicz długość strefy elongacji (Lel) jako różnicę między długością strefy wzrostu (Lgz) a rozmiarem merystemu (Lmer; wyznaczonym w kroku 3).
- Oblicz długość dojrzałej komórki (lmat) jako średnią długość komórek w strefie dojrzałej.
- Podziel LER przez lmat, aby uzyskać tempo produkcji komórek (P).
- Oblicz liczbę komórek w strefie elongacji (Nel) jako różnicę między Ngz a Nmer. Liczba komórek w merystemie (Nmer) odpowiada skumulowanej liczbie komórek znajdujących się w przedziałach odpowiadających merystemowi. Liczba komórek w strefie wzrostu (Ngz) odpowiada skumulowanej liczbie komórek znajdujących się w przedziałach odpowiadających strefie wzrostu.
- Oblicz średnie tempo podziałów komórkowych (D) jako P/Nmer. Czas trwania cyklu komórkowego (Tc) wynosi ln(2)/D.
- Oblicz czas przebywania w strefie elongacji (Tel), dzieląc Nel przez P. Czas w strefie podziałów wynosi log2(Nmer)*Tc. Długość komórek opuszczających merystem (ldiv) odpowiada długości komórki z wygładzonego profilu długości komórek na końcu merystemu.
- Oblicz średnie tempo ekspansji komórek (Rel) korzystając z następującego wzoru: ln(lmat)-ln(ldiv)]/Tel.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Poniżej przedstawiono porównanie roślin podlewanych odpowiednio (kontrola, zawartość wody w glebie 54% (SWC)) i roślin poddanych stresowi suszy (susza, 34% SWC) pod względem wzrostu liści. Wszystkie rośliny uprawiano w komorze wzrostu w warunkach kontrolowanych (16 godz. dnia/8 godz. nocy, 25 °C/18 °C dzień/noc, 300–400 µEm-2sec-1 promieniowanie fotosyntetycznie czynne (PAR)). Warunki suszy wprowadzono poprzez zaprzestanie podlewania aż do osiągnięcia odpowiedniej za...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Pełna analiza kinematyczna liści kukurydzy umożliwia określenie komórkowych podstaw wzrostu liści i pozwala na zaprojektowanie skutecznych strategii pobierania próbek. Chociaż protokół jest stosunkowo prosty, zaleca się pewną ostrożność w następujących krytycznych krokach: (1) Ważne jest, aby oderwać młodsze, zamknięte liście (krok 2.3) bez uszkodzenia merystemu, ponieważ określenie długości merystemu (krok 3) wymaga obecności całego merystemu. Może być potrzebna wcześniejsza praktyka. (2) Wyznaczanie długości merystemat...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez stypendium doktoranckie z Uniwersytetu w Antwerpii dla V.A.; stypendium doktoranckie od Flamandzkiej Fundacji Naukowej (FWO, 11ZI916N) dla K.S.; granty projektowe z FWO (G0D0514N); grant badawczy w ramach wspólnej działalności badawczej (GOA), "A Systems Biology Approach of Leaf Morphogenesis" od rady naukowej Uniwersytetu w Antwerpii; oraz Interuniversity Attraction Poles (IUAP VII/29, MARS), "Maize and Arabidopsis Root and Shoot Growth" (Kukurydza i rzodkiewnik pospolity) z belgijskiego Federalnego Biura Polityki Naukowej (BELSPO) do G.T.S.B. Han Asard, Bulelani L. Sizani i Hamada AbdElgawad przyczynili się do powstania filmu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Doniczki | Dowolne | Używamy | doniczek o następujących wymiarach, ale mogą się różnić w zależności od zabiegu/badania: średnica dna: 11 cm, średnica otworu: 15 cm, wysokość: 12 cm. Uprawiamy jedną roślinę kukurydzy w doniczce. |
| Podłoże do sadzenia | Dowolne | Używamy | podłoża doniczkowego (Jiffy, Holandia), ale można użyć innych substratów, w zależności od zabiegu/badania. |
| Linijka | Dowolna Dowolna | Linijka przedłużająca, która obejmuje co najmniej 1,5 metra, jest potrzebna do zmierzenia końcowej długości liści roślin. | |
| Nasiona | Dowolne | nasiona NA można zamówić u hodowcy. | |
| Skalpel | dowolny | Skalpel jest używany podczas zbioru liści w celu oddzielenia interesującego liścia od otaczających go liści i zaraz po zbiorach do wycięcia odpowiedniej próbki do pomiaru długości komórek i długości merystemu. | |
| Probówki Falcon 15 ml | Dowolne | Probówki Falcon o pojemności 15 ml służą do przechowywania próbek używanych do pomiarów długości komórek podczas oczyszczania próbki za pomocą bezwzględnego etanolu i kwasu mlekowego. | |
| Probówki Eppendorfa | Dowolne | Dowolne | Probówki Eppendorfa służą do przechowywania próbek używanych do pomiaru długości merystemów w roztworze etanolu:kwasu octowego 3:1 (v:v). |
| Rękawice | Dowolne | rękawice lateksowe, które chronią przed odczynnikami. | |
| Kwas octowy | Dowolna | Dowolna | UWAGA: Działa żrąco na metale, kategoria 1 Działanie na skórę, kategorie 1A,1B,1C Poważne uszkodzenie oczu, kategoria 1; Ciecze łatwopalne, kategorie 1,2,3 |
| Alkohol etylowy | Dowolny | OSTRZEŻENIE | : Stwarza zagrożenie w przypadku kontaktu ze skórą (działanie drażniące), kontaktu z oczami (działanie drażniące), lub wdychania. Lekko niebezpieczny w przypadku kontaktu ze skórą (przenikacz), spożycia |
| Kwas mlekowy >98% | Dowolne | Dowolna | UWAGA: Działa żrąco na metale, kategoria 1 Działanie na skórę, kategorie 1A,1B,1C Poważne uszkodzenie oczu, kategoria 1 |
| Chlorek sodu (NaCl) | Dowolna | Kwas | |
| etylenodiaminotetraoctowy (EDTA) | Dowolny OSTRZEŻENIE | : Toksyczność ostra (doustna, skórna, wziewna), kategoria 4 Działanie drażniące na skórę, kategoria 2 Działanie drażniące na oczy, kategoria 2 Działanie uczulające na skórę, kategoria 1 Działanie toksyczne na narządy docelowe – Jednorazowe narażenie, kategoria 3 | |
| Chlorowodorek tris(hydroksymetylo)aminometanu (Tris-HCl) | Dowolny | Ten materiał może działać drażniąco, należy unikać kontaktu z oczami i skórą. Wdychanie pyłu może działać drażniąco na drogi oddechowe. | |
| Dichlorowodorek 4&-prime;,6-diamidyno-2′-fenyloindolu (DAPI) | Dowolna | przepuszczalna dla komórek fluorescencyjna sonda do wiązania rowków dla DNA. Działa drażniąco na skórę. Może powodować reakcję alergiczną skóry. Może powodować podrażnienie dróg oddechowych. | |
| Lód | Dowolny | NA | Roztwór DAPI musi być przechowywany na lodzie. |
| Mikroskop fluorescencyjny | AxioScope A1, Axiocam ICm1 firmy Zeiss lub inny | Do określenia długości merystemów można użyć dowolnego mikroskopu fluorescencyjnego. | |
| Szkiełko mikroskopowe | Dowolne | ||
| szkło nakrywkowe | Dowolna | ||
| pęseta | Dowolna | Pęseta jest potrzebna do rozłożenia zwijanego liścia kukurydzy zaraz po zbiorach w celu wycięcia odpowiedniej próbki do pomiaru długości komórek i długości merystemu. | |
| Oprogramowanie do analizy obrazu | Axiovision (wydanie 4.8) firmy Zeiss | NA | Oprogramowanie można pobrać ze strony: http://www.zeiss.com/microscopy/en_de/downloads/axiovision.html. Można również użyć innego oprogramowania, takiego jak ImageJ (https://imagej.nih.gov/ij/). |
| Mikroskop wyposażony w DIC | AxioScope A1, Axiocam ICm1 firmy Zeiss lub inny | Do pomiaru długości komórek można użyć dowolnego mikroskopu wyposażonego w różnicowy kontrast interferencyjny (DIC). | |
| R oprogramowanie do analizy statystycznej | R Foundation for Statistical Computing | NA | Open source; Można pobrać ze strony https://www.r-project.org/ |
| R SCRIPT | NA | NA Używamy | funkcji wygładzania jądra locpoly z pakietu Kern Smooth (Wand MP, Jones MC. Wygładzanie jądra: Chapman & Hall/CRC (1995)). Skrypt jest dostępny dla komputerów Mac i Windows po zapytaniu u odpowiedniego autora. |
Bibliografia
- Fiorani, F., Beemster, G. T. S. Quantitative analyses of cell division in plants. Plant Mol. Biol. 60, 963-979 (2006).
- Silk, W. K., Erickson, R. O. Kinematics of Plant-Growth. J. Theor. Biol. 76, 481-501 (1979).
- Rymen, B., Coppens, F., Dhondt, S., Fiorani, F., Beemster, G. T. S. Kinematic Analysis of Cell Division and Expansion. Plant Developmental Biology. Hennig, L., Köhler, C. , Chapter 14 (2010).
- Avramova, V., Sprangers, K., Beemster, G. T. S. The Maize Leaf: Another Perspective on Growth Regulation. Trends Plant Sci. 20, 787-797 (2015).
- Rymen, B., et al. Cold nights impair leaf growth and cell cycle progression in maize through transcriptional changes of cell cycle genes. Plant Physiol. 143, 1429-1438 (2007).
- Muller, B., Reymond, M., Tardieu, F. The elongation rate at the base of a maize leaf shows an invariant pattern during both the steady-state elongation and the establishment of the elongation zone. J. Exp. Bot. 52, 1259-1268 (2001).
- Beemster, G. T. S., Masle, J., Williamson, R. E., Farquhar, G. D. Effects of soil resistance to root penetration on leaf expansion in wheat (Triticum aestivum L): Kinematic analysis of leaf elongation. J. Exp. Bot. 47, 1663-1678 (1996).
- Bernstein, N., Silk, W. K., Lauchli, A. Growth and Development of Sorghum Leaves under Conditions of Nacl Stress - Spatial and Temporal Aspects of Leaf Growth-Inhibition. Planta. 191, 433-439 (1993).
- Sylvester, A. W., Smith, L. G. Cell Biology of Maize Leaf Development. Handbook of maize: It's Biology. Bennetzen, J. L., Hake, S. C. , Springer. NY. (2009).
- Nelissen, H., et al. A Local Maximum in Gibberellin Levels Regulates Maize Leaf Growth by Spatial Control of Cell Division. Curr. Biol. 22, 1183-1187 (2012).
- Avramova, V., et al. Drought Induces Distinct Growth Response, Protection, and Recovery Mechanisms in the Maize Leaf Growth Zone. Plant Physiol. 169, 1382-1396 (2015).
- Picaud, J. C., et al. Total malondialdehyde (MDA) concentrations as a marker of lipid peroxidation in all-in-one parenteral nutrition admixtures (APA) used in newborn infants. Pediatr. Res. 53, 406(2003).
- Basu, P., Pal, A., Lynch, J. P., Brown, K. M. A novel image-analysis technique for kinematic study of growth and curvature. Plant Physiol. 145, 305-316 (2007).
- Vander Weele, C. M., et al. A new algorithm for computational image analysis of deformable motion at high spatial and temporal resolution applied to root growth. Roughly uniform elongation in the meristem and also, after an abrupt acceleration, in the elongation zone. Plant Physiol. 132, 1138-1148 (2003).
- Nelissen, H., Rymen, B., Coppens, F., Dhondt, S., Fiorani, F., Beemster, G. T. S. Plant Organogenesis. DeSmet, I. , Chapter 17 (2013).
- Ben-Haj-Salah, H., Tardieu, F. Temperature Affects Expansion Rate of Maize Leaves without Change in Spatial-Distribution of Cell Length - Analysis of the Coordination between Cell-Division and Cell Expansion. Plant Physiol. 109, 861-870 (1995).
- Fiorani, F., Beemster, G. T. S., Bultynck, L., Lambers, H. Can meristematic activity determine variation in leaf size and elongation rate among four Poa species? A kinematic study. Plant Physiol. 124, 845-855 (2000).
- Pettko-Szandtner, A., et al. Core cell cycle regulatory genes in rice and their expression profiles across the growth zone of the leaf. J. Plant Res. 128, 953-974 (2015).
- Poorter, H., Remkes, C. Leaf-Area Ratio and Net Assimilation Rate of 24 Wild-Species Differing in Relative Growth-Rate. Oecologia. 83, 553-559 (1990).
- Macadam, J. W., Volenec, J. J., Nelson, C. J. Effects of Nitrogen on Mesophyll Cell-Division and Epidermal-Cell Elongation in Tall Fescue Leaf Blades. Plant Physiol. 89, 549-556 (1989).
- Tardieu, F., Granier, C. Quantitative analysis of cell division in leaves: methods, developmental patterns and effects of environmental conditions. Plant Mol. Biol. 43, 555-567 (2000).
- Bernstein, N., Silk, W. K., Lauchli, A. Growth and Development of Sorghum Leaves under Conditions of Nacl Stress - Possible Role of Some Mineral Elements in Growth-Inhibition. Planta. 196, 699-705 (1995).
- Erickson, R. O., Sax, K. B. Rates of Cell-Division and Cell Elongation in the Growth of the Primary Root of Zea-Mays. P. Am. Philos. Soc. 100, 499-514 (1956).
- Beemster, G. T. S., Baskin, T. I. Analysis of cell division and elongation underlying the developmental acceleration of root growth in Arabidopsis thaliana. Plant Physiol. 116, 1515-1526 (1998).
- Goodwin, R. H., Stepka, W. Growth and differentiation in the root tip of Phleum pratense. Am. J. Bot. 32, 36-46 (1945).
- Hejnowicz, Z. Growth and Cell Division in the Apical Meristem of Wheat Roots. Physiologia Plantarum. 12, 124-138 (1959).
- Gandar, P. W. Growth in Root Apices .1. The Kinematic Description of Growth. Bot. Gaz. 144, 1-10 (1983).
- Baskin, T. I., Cork, A., Williamson, R. E., Gorst, J. R. Stunted-Plant-1, a Gene Required for Expansion in Rapidly Elongating but Not in Dividing Cells and Mediating Root-Growth Responses to Applied Cytokinin. Plant Physiol. 107, 233-243 (1995).
- Sacks, M. M., Silk, W. K., Burman, P. Effect of water stress on cortical cell division rates within the apical meristem of primary roots of maize. Plant Physiol. 114, 519-527 (1997).
- Granier, C., Tardieu, F. Spatial and temporal analyses of expansion and cell cycle in sunflower leaves - A common pattern of development for all zones of a leaf and different leaves of a plant. Plant Physiol. 116, 991-1001 (1998).
- De Veylder, L., et al. Functional analysis of cyclin-dependent kinase inhibitors of Arabidopsis. Plant Cell. 13, 1653-1667 (2001).
- Kwiatkowska, D. Surface growth at the reproductive shoot apex of Arabidopsis thaliana pin-formed 1 and wild type. J. Exp. Bot. 55, 1021-1032 (2004).
- Kutschmar, A., et al. PSK-alpha promotes root growth in Arabidopsis. New Phytol. 181, 820-831 (2009).
- Vanneste, S., et al. Plant CYCA2s are G2/M regulators that are transcriptionally repressed during differentiation. Embo J. 30, 3430-3441 (2011).
- Eloy, N. B., et al. Functional Analysis of the anaphase-Promoting Complex Subunit 10. Plant J. 68, 553-563 (2011).
- Eloy, N. B., et al. SAMBA, a plant-specific anaphase-promoting complex/cyclosome regulator is involved in early development and A-type cyclin stabilization. P. Natl. Acad. Sci. USA. 109, 13853-13858 (2012).
- Dhondt, S., et al. SHORT-ROOT and SCARECROW Regulate Leaf Growth in Arabidopsis by Stimulating S-Phase Progression of the Cell Cycle. Plant Physiol. 154, 1183-1195 (2010).
- Baute, J., et al. Correlation analysis of the transcriptome of growing leaves with mature leaf parameters in a maize RIL population. Genome Biol. 16, (2015).
- Andriankaja, M., et al. Exit from Proliferation during Leaf Development in Arabidopsis thaliana: A Not-So-Gradual Process. Dev. Cell. 22, 64-78 (2012).
- Beemster, G. T. S., et al. Genome-wide analysis of gene expression profiles associated with cell cycle transitions in growing organs of Arabidopsis. Plant Physiol. 138, 734-743 (2005).
- Spollen, W. G., et al. Spatial distribution of transcript changes in the maize primary root elongation zone at low water potential. Bmc Plant Biol. 8, (2008).
- Candaele, J., et al. Differential Methylation during Maize Leaf Growth Targets Developmentally Regulated Genes. Plant Physiol. 164, 1350-1364 (2014).
- West, G., Inze, D., Beemster, G. T. S. Cell cycle modulation in the response of the primary root of Arabidopsis to salt stress. Plant Physiol. 135, 1050-1058 (2004).
- Zhang, Z., Voothuluru, P., Yamaguchi, M., Sharp, R. E., Peck, S. C. Developmental distribution of the plasma membrane-enriched proteome in the maize primary root growth zone. Front. Plant Sci. 4, (2013).
- Bonhomme, L., Valot, B., Tardieu, F., Zivy, M. Phosphoproteome Dynamics Upon Changes in Plant Water Status Reveal Early Events Associated With Rapid Growth Adjustment in Maize Leaves. Mol. Cell Proteomics. 11, 957-972 (2012).
- Schnyder, H., Nelson, C. J. Growth-Rates and Assimilate Partitioning in the Elongation Zone of Tall Fescue Leaf Blades at High and Low Irradiance. Plant Physiol. 90, 1201-1206 (1989).
- Schnyder, H., Nelson, C. J., Spollen, W. G. Diurnal Growth of Tall Fescue Leaf Blades .2. Dry-Matter Partitioning and Carbohydrate-Metabolism in the Elongation Zone and Adjacent Expanded Tissue. Plant Physiol. 86, 1077-1083 (1988).
- Schnyder, H., Nelson, C. J. Growth-Rates and Carbohydrate Fluxes within the Elongation Zone of Tall Fescue Leaf Blades. Plant Physiol. 85, 548-553 (1987).
- Vassey, T. L., Shnyder, H. S., Spollen, W. G., Nelson, C. J. Cellular Characterisation and Fructan Profiles in Expanding Tall Fescue. Curr. T. Pl. B. 4, 227-229 (1985).
- Allard, G., Nelson, C. J. Photosynthate Partitioning in Basal Zones of Tall Fescue Leaf Blades. Plant Physiol. 95, 663-668 (1991).
- Spollen, W. G., Nelson, C. J. Response of Fructan to Water-Deficit in Growing Leaves of Tall Fescue. Plant Physiol. 106, 329-336 (1994).
- Volenec, J. J., Nelson, C. J. Carbohydrate-Metabolism in Leaf Meristems of Tall Fescue .1. Relationship to Genetically Altered Leaf Elongation Rates. Plant Physiol. 74, 590-594 (1984).
- Volenec, J. J., Nelson, C. J. Carbohydrate-Metabolism in Leaf Meristems of Tall Fescue .2. Relationship to Leaf Elongation Rates Modified by Nitrogen-Fertilization. Plant Physiol. 74, 595-600 (1984).
- Silk, W. K., Walker, R. C., Labavitch, J. Uronide Deposition Rates in the Primary Root of Zea-Mays. Plant Physiol. 74, 721-726 (1984).
- Granier, C., Inze, D., Tardieu, F. Spatial distribution of cell division rate can be deduced from that of p34(cdc2) kinase activity in maize leaves grown at contrasting temperatures and soil water conditions. Plant Physiol. 124, 1393-1402 (2000).
- Voothuluru, P., Sharp, R. E. Apoplastic hydrogen peroxide in the growth zone of the maize primary root under water stress.1. Increased levels are specific to the apical region of growth maintenance. J. Exp. Bot. 64, 1223-1233 (2012).
- Wu, Y. J., Jeong, B. R., Fry, S. C., Boyer, J. S. Change in XET activities, cell wall extensibility and hypocotyl elongation of soybean seedlings at low water potential. Planta. 220, 593-601 (2005).
- Macadam, J. W., Nelson, C. J., Sharp, R. E. Peroxidase-Activity in the Leaf Elongation Zone of Tall Fescue .1. Spatial-Distribution of Ionically Bound Peroxidase-Activity in Genotypes Differing in Length of the Elongation Zone. Plant Physiol. 99, 872-878 (1992).
- Macadam, J. W., Sharp, R. E., Nelson, C. J. Peroxidase-Activity in the Leaf Elongation Zone of Tall Fescue .2. Spatial-Distribution of Apoplastic Peroxidase-Activity in Genotypes Differing in Length of the Elongation Zone. Plant Physiol. 99, 879-885 (1992).
- Beemster, G. T. S., De Vusser, K., De Tavernier, E., De Bock, K., Inze, D. Variation in growth rate between Arabidopsis ecotypes is correlated with cell division and A-type cyclin-dependent kinase activity. Plant Physiol. 129, 854-864 (2002).
- Kavanova, M., Lattanzi, F. A., Schnyder, H. Nitrogen deficiency inhibits leaf blade growth in Lolium perenne by increasing cell cycle duration and decreasing mitotic and post-mitotic growth rates. Plant Cell Environ. 31, 727-737 (2008).
- Macadam, J. W., Nelson, C. J. Secondary cell wall deposition causes radial growth of fibre cells in the maturation zone of elongating tall fescue leaf blades. Ann. Bot-London. 89, 89-96 (2002).
- Schnyder, H., Nelson, C. J. Diurnal Growth of Tall Fescue Leaf Blades .1. Spatial-Distribution of Growth, Deposition of Water, and Assimilate Import in the Elongation Zone. Plant Physiol. 86, 1070-1076 (1988).
- Gastal, F., Nelson, C. J. Nitrogen Use within the Growing Leaf Blade of Tall Fescue. Plant Physiol. 105, 191-197 (1994).
- Vanvolkenburgh, E., Boyer, J. S. Inhibitory Effects of Water Deficit on Maize Leaf Elongation. Plant Physiol. 77, 190-194 (1985).
- Silk, W. K., Hsiao, T. C., Diedenhofen, U., Matson, C. Spatial Distributions of Potassium, Solutes, and Their Deposition Rates in the Growth Zone of the Primary Corn Root. Plant Physiol. 82, 853-858 (1986).
- Meiri, A., Silk, W. K., Lauchli, A. Growth and Deposition of Inorganic Nutrient Elements in Developing Leaves of Zea-Mays L. Plant Physiol. 99, 972-978 (1992).
- Neves-Piestun, B. G., Bernstein, N. Salinity-induced inhibition of leaf elongation in maize is not mediated by changes in cell wall acidification capacity. Plant Physiol. 125, 1419-1428 (2001).
- Bouchabke, O., Tardieu, F., Simonneau, T. Leaf growth and turgor in growing cells of maize (Zea mays L.) respond to evaporative demand under moderate irrigation but not in water-saturated soil. Plant Cell Environ. 29, 1138-1148 (2006).
- Westgate, M. E., Boyer, J. S. Transpiration-Induced and Growth-Induced Water Potentials in Maize. Plant Physiol. 74, 882-889 (1984).
- Horiguchi, G., Gonzalez, N., Beemster, G. T. S., Inze, D., Tsukaya, H. Impact of segmental chromosomal duplications on leaf size in the grandifolia-D mutants of Arabidopsis thaliana. Plant J. 60, 122-133 (2009).
- Fleury, D., et al. The Arabidopsis thaliana homolog of yeast BRE1 has a function in cell cycle regulation during early leaf and root growth. Plant Cell. 19, 417-432 (2007).
- Vlieghe, K., et al. The DP-E2F-like gene DEL1 controls the endocycle in Arabidopsis thaliana. Curr. Biol. 15, 59-63 (2005).
- Boudolf, V., et al. The plant-specific cyclin-dependent kinase CDKB1;1 and transcription factor E2Fa-DPa control the balance of mitotically dividing and endoreduplicating cells in Arabidopsis. Plant Cell. 16, 2683-2692 (2004).
- Baskin, T. I., Beemster, G. T. S., Judy-March, J. E., Marga, F. Disorganization of cortical microtubules stimulates tangential expansion and reduces the uniformity of cellulose microfibril alignment among cells in the root of Arabidopsis. Plant Physiol. 135, 2279-2290 (2004).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
