Opisujemy protokół wywoływania nagradzających i nienagradzających doświadczeń u muszek owocowych (Drosophila melanogaster) przy użyciu dobrowolnego spożycia etanolu jako miary zmian w stanach nagrody.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Prosty sposób na zmierzenie zmian w zachowaniu związanym z poszukiwaniem nagrody za pomocą Drosophila melanogaster
W tym artykule
Podsumowanie
Streszczenie
Opisujemy protokół pomiaru samodzielnego podawania etanolu u muszek owocowych (Drosophila melanogaster) jako wskaźnik zmian w stanach nagrody. Pokazujemy prosty sposób na wykorzystanie systemu nagrody w locie, modyfikację doświadczeń związanych z naturalną nagrodą i wykorzystanie dobrowolnej konsumpcji etanolu jako miary zmian w stanach nagrody. Podejście to służy jako odpowiednie narzędzie do badania neuronów i genów, które odgrywają rolę w zmianach stanu wewnętrznego za pośrednictwem doświadczeń. Protokół składa się z dwóch odrębnych części: wystawiania muszek na nagradzające i nienagradzające doświadczenia oraz oznaczania dobrowolnego spożycia etanolu jako miary motywacji do uzyskania nagrody za narkotyk. Te dwie części mogą być używane niezależnie do indukowania modulacji doświadczenia jako pierwszy krok do dalszych testów lub odpowiednio jako niezależny test żywieniowy dwuwyboru. Protokół nie wymaga skomplikowanej konfiguracji i dlatego może być stosowany w każdym laboratorium z podstawowymi narzędziami do hodowli much.
Wprowadzenie
Modyfikacja zachowania w odpowiedzi na doświadczenie pozwala zwierzętom dostosować swoje zachowanie do zmian w ich otoczeniu1. Podczas tego procesu zwierzęta integrują swój wewnętrzny stan fizjologiczny ze zmieniającymi się warunkami środowiska zewnętrznego, a następnie wybierają jedno działanie zamiast drugiego, aby zwiększyć swoje szanse na przeżycie i reprodukcję. Systemy nagrody wyewoluowały, aby motywować zachowania, które są wymagane do przetrwania osobników i gatunków, wzmacniając zachowania, które zwiększają natychmiastowe przetrwanie, takie jak jedzenie lub picie, lub te, które zapewniają długoterminowe przetrwanie, takie jak zachowania seksualne lub opieka nad potomstwem2. Sztuczne związki, takie jak narkotyki, również wpływają na układ nagrody, dokooptując ścieżki neuronowe, które pośredniczą w naturalnych nagrodach2.
W ciągu ostatnich dwóch dekad muszka owocowa Drosophila melanogaster stała się obiecującym modelem do badania molekularnych i neuronalnych mechanizmów, które kształtują wpływ etanolu na zachowanie3,4.
Poprzednio zidentyfikowaliśmy podzbiór neuronów peptydergicznych u muszek (neurony receptora NPF/NPF (R)), które łączą naturalne nagrody, takie jak doświadczenie seksualne, z motywacją uzyskania nagród za narkotyki5. Ekspresja NPF jest wrażliwa zarówno na doświadczenia seksualne, jak i na nagrody za narkotyki, takie jak zatrucie etanolem. Zmiany w poziomach ekspresji NPF są przekształcane w zmiany w samodzielnym podawaniu etanolu5, gdzie wysoki NPF zmniejsza, a niski NPF zwiększa preferencję spożywania etanolu. Aktywacja neuronów NPF jest satysfakcjonująca dla much, ponieważ wykazują one silną preferencję dla zapachu w połączeniu z aktywacją, co znajduje również odzwierciedlenie w zmniejszonym zużyciu etanolu. Co ważniejsze, aktywacja neuronów NPF zakłóca zdolność much do tworzenia pozytywnego związku między zatruciem etanolem a sygnałem zapachowym. Związek przyczynowo-skutkowy między układem NPF/R, pamięcią nagrody i spożyciem etanolu sugeruje, że można użyć samodzielnego podawania etanolu jako miary zmian w stanach nagrody5.
W tej publikacji demonstrujemy zintegrowane podejście do wykorzystania naturalnego systemu nagrody muchy i oznaczania zmian w stanach nagrody. Podejście składa się z dwóch oddzielnych części, protokołu treningowego do manipulowania naturalnymi doświadczeniami związanymi z nagrodą, a następnie testu kapilarnego wyboru (CAFE) w celu oceny samodzielnego podawania etanolu jako oszacowania zmian w stanach nagrody. Test CAFE jest analogiczny do testów wyboru dwóch butelek stosowanych w badaniach na gryzoniach do samodzielnego podawania leków i wykazano, że odzwierciedla pewne właściwości zachowań podobnych do uzależnienia u muszek6.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Uwaga: Ogólny opis projektu eksperymentalnego: Projekt eksperymentalny obejmuje dostosowany protokół hamowania zalotów7-9, w którym samce much są poddawane doświadczeniom nagradzającym i nienagradzającym w 3 kolejnych sesjach treningowych w ciągu 4 d. Po zakończeniu fazy doświadczeń muchy są badane w próbie dobrowolnej konsumpcji etanolu z dwoma możliwościami wyboru przez okres 3 - 4 d. Niniejszy protokół obejmuje kilka kroków przygotowawczych, z których niektóre mogą być wykonane wcześniej i wykorzystane w więcej niż jednym eksperymencie, natomiast inne powinny zostać przeprowadzone w odpowiednim czasie przed rozpoczęciem eksperymentu (Tabela 1).
1. Kroki przygotowawcze
- Przygotowanie systemu kapilarnego podawania pokarmu
- Rozgrzej igłę 27 G i użyj jej do wykonania małych otworów wzdłuż fiolki (Rysunek 1).
- Przetnij korek fiolki na pół (w poprzek) za pomocą żyletki. Zaznacz na powierzchni korka cztery punkty, tworząc kształt kwadratu, w którym zostaną umieszczone uchwyty kapilar. Użyj igły 18 G, aby wykonać 4 otwory w korku (Rysunek 1b).
- Użyj żyletki do przycięcia mikropipet tak, aby mogły one stabilnie trzymać szklane kapilary o pojemności 5 µL, które pełnią funkcję adapterów.
- Włóż 4 adaptery kapilarne do przygotowanych korków.
- Zaznacz na korku położenie 2 kapilar zawierających etanol oraz dwóch kapilar bez etanolu.
Uwaga: Zaleca się, aby położenie obu typów kapilar było spójne we wszystkich fiolkach. Zwróć uwagę na wielkość otworów, ponieważ zbyt duże otwory umożliwiają ucieczkę much z fiolek. Ponadto zaleca się, aby gładka strona korka (zazwyczaj przeciwległa do strony ciętej) była skierowana w dół podczas wkładania do fiolki, ponieważ cięcie korka powoduje powstanie małych, luźnych włókien, w które muchy mogą się zaplątać. - Przygotuj dużą liczbę fiolek i adapterów do wykorzystania w eksperymentach z systemem kapilarnego podawania pokarmu (CAFE) opisanych w kroku 2.3.
- Przygotowanie małych szklanych fiolek z pokarmem
- Na dzień przed zebraniem much (krok 1.4) ustaw 200 szklanych fiolek na statywach do probówek do mikrocentryfugi. Rozpuść pokarm dla much (zgodnie z recepturą na bazie mąki kukurydzianej i melasy, patrz Tabela materiałów) w mikrofalówce. Wlej 2 mL pokarmu do szklanych fiolek (staraj się nie rozmazywać pokarmu na ściankach fiolki). Pozostaw pokarm do stwardnienia i przykryj fiolki folią spożywczą.
UWAGA: Szklane fiolki zawierające pokarm można przechowywać w temperaturze 4 °C przez kilka tygodni. - W dniu zbierania much wyjmij fiolki z lodówki i poczekaj, aż osiągną temperaturę pokojową (RT) przed umieszczeniem w nich much.
UWAGA: Jeśli fiolki z pokarmem mają kilka tygodni, upewnij się, że pokarm jest nadal nienaruszony i nie oddzielił się od ścianek fiolki, ponieważ muchy mogą zostać uwięzione w szczelinach między pokarmem a szkłem.
- Na dzień przed zebraniem much (krok 1.4) ustaw 200 szklanych fiolek na statywach do probówek do mikrocentryfugi. Rozpuść pokarm dla much (zgodnie z recepturą na bazie mąki kukurydzianej i melasy, patrz Tabela materiałów) w mikrofalówce. Wlej 2 mL pokarmu do szklanych fiolek (staraj się nie rozmazywać pokarmu na ściankach fiolki). Pozostaw pokarm do stwardnienia i przykryj fiolki folią spożywczą.
- Przygotowanie roztworu pokarmowego do testu z podajnikiem kapilarnym
- Aby przygotować roztwór pokarmowy (5% sacharozy i 5% ekstraktu drożdżowego), rozpuść 5,88 g ekstraktu drożdżowego i 5,88 g sacharozy w 100 mL wody destylowanej.
UWAGA: Roztwór stokowy jest bardzo podatny na zanieczyszczenia. Dlatego zaleca się jego autoklawowanie (121 °C, 30 min, bez cyklu suszenia) i rozdzielenie na aliquoty robocze po 850 µL, które należy przechowywać w temperaturze 4 °C do dalszego użycia. Stężenie składników w roztworze stokowym wynosi 5,88% i osiągnie końcowe stężenie 5% po dodaniu 15% etanolu lub wody (150 µL do 850 µL gotowego roztworu pokarmowego) bezpośrednio przed użyciem w kroku 2.3.
- Aby przygotować roztwór pokarmowy (5% sacharozy i 5% ekstraktu drożdżowego), rozpuść 5,88 g ekstraktu drożdżowego i 5,88 g sacharozy w 100 mL wody destylowanej.
- Zbieranie much eksperymentalnych
- Zbierz 200 naiwnych samców much za pomocą podkładki z CO2.
Uwaga: Użyj dowolnego szczepu laboratoryjnego istotnego dla postawionego pytania badawczego. 250 much można łatwo zebrać z pięciu butelek z muchami w fazie wybierania po wykluciu. Podczas zbierania much zwróć szczególną uwagę na wybór osobników, które niedawno się wykluły (muchy wyglądające na dziewice: jasne muchy z plamką mekonium na odwłoku). Muchy eksperymentalne powinny być trzymane pojedynczo w małych szklanych fiolkach z pokarmem i dojrzewać do wieku 3 - 4 dni przed użyciem w eksperymencie. - Użyj miękkich korków do zamknięcia fiolek.
UWAGA: Te same miękkie korki będą bardzo przydatne w fazie treningu podczas używania aspiratora ustnego do wprowadzania i wyjmowania samic z fiolek podczas fazy doświadczalnej.
- Zbierz 200 naiwnych samców much za pomocą podkładki z CO2.
- Zbieranie much do treningu
UWAGA: Wszystkie zebrane muchy powinny być przechowywane w inkubatorze z cyklem światła/ciemności 12 h/12 h w temperaturze 25 °C i wilgotności względnej (RH) 70%. Cykl światła/ciemności 12 h/12 h można dostosować do dogodnej godziny rozpoczęcia.- Dziewicze samice do treningu
- Zbierz 500 dziewiczych samic do treningu z populacji WT lub z populacji virginator, aby służyły jako receptywne dziewice. Przechowuj samice w grupach po 25 osobników w fiolce z pokarmem o standardowej wielkości i pozwól im dojrzeć do wieku 3 - 4 dni przed użyciem w eksperymencie.
- Sparowane samice do treningu
- Zbierz 300 dziewiczych samic z populacji WT lub populacji virginator, aby poddały się kopulacji przed fazą treningu (krok 1.6.1).
UWAGA: Samice są przechowywane w grupach po 10 osobników w fiolce z pokarmem o standardowej wielkości i dojrzewają do wieku 3 - 4 dni przed użyciem w eksperymencie.
- Zbierz 300 dziewiczych samic z populacji WT lub populacji virginator, aby poddały się kopulacji przed fazą treningu (krok 1.6.1).
- Samce używane do generowania sparowanych samic do treningu
- Zbierz 150 samców (niekoniecznie dziewiczych).
UWAGA: Muchy są przechowywane w grupach po 15 samców w fiolce z pokarmem o standardowej wielkości i dojrzewają do wieku 3 - 4 dni przed sparowaniem z dziewiczymi samicami w celu stworzenia sparowanych samic do treningu.
- Zbierz 150 samców (niekoniecznie dziewiczych).
- Dziewicze samice do treningu
- Generowanie sparowanych samic do treningu
- Aby uzyskać sparowane samice do wykorzystania w treningu, sparuj grupy 10 dziewiczych samic z 15 samcami, przelewając zawartość jednej fiolki z samcami do fiolki z samicami na 16 - 18 h przed fazą treningu (krok 2.1)10.
UWAGA: Powinno to normalnie nastąpić wieczorem przed sesją treningową. Stosunek samców do samic 1,5:1 gwarantuje, że wszystkie samice zostaną sparowane. - W dniu eksperymentu oddziel sparowane samice od samców, odsysając samce z fiolki za pomocą aspiratora ustnego. Wykonaj to bezpośrednio przed rozpoczęciem każdego dnia treningu.
- Aby uzyskać sparowane samice do wykorzystania w treningu, sparuj grupy 10 dziewiczych samic z 15 samcami, przelewając zawartość jednej fiolki z samcami do fiolki z samicami na 16 - 18 h przed fazą treningu (krok 2.1)10.
2. Kroki eksperymentalne
- Konfiguracja fazy doświadczalnej
- Eksperyment należy rozpocząć jak najbliżej początku fazy jasnej w inkubatorze. Samice trenujące (zarówno dziewicze, jak i zapłodnione) należy umieścić w komorze behawioralnej.
UWAGA: Zaleca się przeprowadzenie eksperymentu w komorze behawioralnej lub w dowolnym odizolowanym środowisku, które jest ciche i ustawione na 25 °C oraz 60–65% RH. Utrzymanie wilgotności powyżej 50% jest bardzo ważne, ponieważ zachowania związane z zalotami i kopulacją zależą od wykrywania feromonów, które z kolei są znane z wrażliwości na wilgotność.
- Eksperyment należy rozpocząć jak najbliżej początku fazy jasnej w inkubatorze. Samice trenujące (zarówno dziewicze, jak i zapłodnione) należy umieścić w komorze behawioralnej.
- Poddawanie samców much doświadczeniom nagradzającym i nienagradzającym
- Rozmieścić szklane fiolki zawierające pojedyncze męskie muchy w statywach do mikrocentrifugowania, ustawiając fiolki wzdłuż krawędzi statywu.
UWAGA: Taki układ pozwala eksperymentatorowi na łatwą obserwację par much kopulujących bez konieczności wyjmowania probówek ze stojaka. - Przygotować (zgodnie z opisem w kroku 2.2.1) 2 grupy po 100 szklanych fiolek zawierających pojedyncze samce much, rozmieszczonych na oddzielnych statywach dla samców poddawanych doświadczeniom kojarzenia z nagrodą oraz bez nagrody (t. j. odrzucone i kopulujące).
- Odssać samice treningowe i przenieść je do każdej fiolki zawierającej samce much. Ustawić czasomierz na 1 h. Zaczynając od grupy odrzuconej, dodać do każdej fiolki samicę po kopulacji. Następnie przejść do samców przeznaczonych do kopulacji i dodać do każdej fiolki samicę dziewiczą.
- Uważnie obserwuj spotkania w celu sprawdzenia, czy samce wchodzące w interakcje z dziewiczymi samicami skutecznie kopulują w ciągu pierwszej godziny oraz czy samce wchodzące w interakcje z samicami po wcześniejszym kopulowaniu nie kopulują. Aby monitorować kohortę odrzuconą w ciągu 1 h, ustaw drugi timer na 15 min i obserwuj samce co 15 min.
- Usuń samce z odrzuconej kohorty, którym udało się kopulować, oraz samce z kopulującej kohorty, które nie doprowadziły do kopulacji do końca pierwszej sesji treningowej.
- Zakończ pierwszą sesję treningową, odsysając wcześniej kopulowane samice trenerów do zwykłej fiolki z pożywką dla muszek i zachowaj je do następnej sesji warunkowania. Następnie ostrożnie odessij samice z grupy kopulowanych samców.
- Pozostawić muchy do odpoczynku na 1 h.
- Powtórzyć kroki 2.2.3 – 2.2.7 dwukrotnie.
- Powtarzać sesję treningową opisaną w krokach 2.2.3 – 2.2.8 codziennie przez kolejne 3 dni.
- Rozmieścić szklane fiolki zawierające pojedyncze męskie muchy w statywach do mikrocentrifugowania, ustawiając fiolki wzdłuż krawędzi statywu.
- Rejestracja spożycia (CAFE)
- Pod koniec ostatniej sesji warunkowania (czwartego dnia) odessij pojedyncze samce i pogrupuj je w fiolkach z kapilarnym dozownikiem pokarmu. Podczas wprowadzania much przykryj fiolkę z dozownikiem miękkim korkiem, a po umieszczeniu wszystkich much szybko zastąp go gotowym korkiem do dozownika kapilarnego. Do każdej fiolki pogrupuj od 6 do 8 much z każdej z grup eksperymentalnych, przygotowując co najmniej 8 fiolek na każdy wariant warunków.
- Nawilż korki, ostrożnie dodając 5 ml wody na górną część każdego z nich. Podczas dodawania wody należy zachować ostrożność, aby uniknąć jej przedostania się do fiolek. Do każdej fiolki należy dodać taką samą ilość wody.
UWAGA: Krok ten jest wykonywany w celu ograniczenia parowania z kapilar. W związku z tym jest on powtarzany codziennie przez pozostałą część eksperymentu. W zależności od wilgotności względnej, w kolejnych dniach do korków może być wymagane dodanie mniejszej ilości wody. - Przygotować dwa oddzielne roztwory pożywki, dodając etanol lub wodę do aliquotów roztworu matecznego pożywki, aby uzyskać stężenie końcowe wynoszące 15%.
- Aby napełnić kapilary dwoma roztworami pożywki, należy przygotować 5 µL nanieść krople płynnego pożywki na laboratoryjny pasek foliowy i pozwolić roztworowi wypełnić kapilarę, aż dotrze do 5 µL oznacz. Należy upewnić się, że używany jest czysty koniec kapilary, znajdujący się blisko 5 µL linia czarnego znacznika.
UWAGA: Aby napełnić kilka kapilar jednocześnie, można połączyć ze sobą od 6 do 8 adapterów kapilarnych i wykorzystać je jako wkładkę do utrzymania kapilar. - Delikatnie opukaj kapilary o pasek parafinowy, aby umieścić roztwór pożywki dokładnie na poziomie czarnej kreski. Uszczelnij kapilary, zanurzając końcówkę każdej z nich w małych kroplach oleju mineralnego. Krok ten minimalizuje potencjalne parowanie roztworu pożywki.
- Wprowadź dwie kapilary zawierające etanol oraz dwie kapilary niezawierające etanolu przez 4 adaptery/uchwyty w korku, tak aby wystające końce kapilar znajdowały się tuż przy wnętrzu fiolki (1 mm lub mniej od powierzchni korka).
UWAGA: Umieszczenie otworu kapilary blisko mokrej waty ogranicza parowanie i zapewnia łatwy dostęp do pokarmu, ponieważ muchy zazwyczaj siadają na watach i schodzą w dół po wystającej kapilarze, aby żerować. - Oprócz probówek zawierających muchy doświadczalne, należy przygotować probówkę kontrolną (mock) bez much. Kontrola ta służy do oceny naturalnego parowania.
UWAGA: Należy dążyć do zachowania względnie równoległego rozmieszczenia otworu kapilary względem korków, ponieważ różnice w pozycjonowaniu mogą prowadzić do zmiennej ewaporacji i błędnych danych dotyczących zużycia. Podczas eksperymentu należy utrzymywać odpowiednią wilgotność i umieścić otwory kapilary jak najbliżej mokrego korka, gdyż zarówno niska wilgotność, jak i duża odległość od mokrego korka mogą skutkować niekontrolowanym parowaniem. - Za pomocą linijki zmierz i zapisz względną pozycję cieczy w każdej z kapilar w odniesieniu do czarnej linii oznakowania, podając wartości w mm.
UWAGA: Jeśli poziom roztworu znajduje się dokładnie na czarnej linii, wartość powinna wynosić zero; jeśli znajduje się powyżej lub poniżej, wartości powinny być odpowiednio dodatnie lub ujemne. Początkowe poziomy cieczy wyznaczają punkty odniesienia dla końcowych wartości zużycia O/N. - Umieścić fiolki ponownie w inkubatorze na 24 h. Wymieniać kapilary o stałej porze przez cały czas trwania eksperymentu.
- Ostrożnie wyjmij kapilary z fiolek i zmierz poziom cieczy względem czarnej linii znacznikowej.
- Dokładnie sprawdź poziom cieczy w pozorowanej fiolce.
UWAGA: Jeśli poziom obniżył się o więcej niż 2 mm, świadczy to o wysokim stopniu parowania, a poziomy zużycia są niewiarygodne. - Nawilż delikatnie zatyczki 2 ml wody i włóż nowy zestaw kapilar, zgodnie z instrukcjami w krokach 2.3.3 – 2.3.10. Umieść fiolki z powrotem w inkubatorze na 24 h.
- Określanie preferencji
- Oblicz całkowite zużycie dla każdej kapilary, odejmując poziom końcowy od poziomu początkowego w punkcie startowym.
- Połącz wartości dla obu naczyń włosowatek z tym samym pokarmem (t. j. kapilary bezetanolowe oddzielnie od kapilar zawierających etanol).
- Preferencję etanolu oblicza się poprzez odjęcie ilości spożytej z kapilar bez etanolu od ilości spożytej z kapilar zawierających etanol, a następnie podzielenie otrzymanej wartości przez całkowitą ilość spożycia ze wszystkich kapilar z tej samej fiolki.
- Oblicz średnią indeksów preferencji dla wszystkich fiolek z tej samej grupy eksperymentalnej.
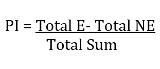
UWAGA: Nonetanol 1 (NE1), Nonetanol 2 (NE2), Etanol 1 (E1), Etanol 2 (E2), Sumaryczny nonetanol (Total NE) = NE1 + NE2, Sumaryczny etanol (Total E) = E1 + E2, Całkowite spożycie (Total Sum) = Total NE + Total E oraz Wskaźnik preferencji etanolu (PI)
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wcześniej Devineni et al. wykazali, że gdy muszki owocówki mają wybór między pokarmem zawierającym etanol a pokarmem go pozbawionym, przejawiają silną preferencję dla pokarmu z dodatkiem etanolu6. Przedstawiono tutaj reprezentatywne wyniki uzyskane podczas badania wrodzonej preferencji etanolu u naiwnych samców muszek, które nie zostały poddane protokołowi treningowemu.
Naiwne samce much szczepu Canton S zost...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu ilustrujemy szczegóły zintegrowanego podejścia do pomiaru zmian w zachowaniach związanych z poszukiwaniem nagrody, w oparciu o wcześniejsze prace opisane przez Devineni i wsp.6 oraz Shohat-Ophir i wsp. 5. Pierwsza sekcja protokołu wykorzystuje różne rodzaje interakcji seksualnych jako dane wejściowe do doświadczenia, a druga sekcja wykorzystuje test żywieniowy dwóch wyborów w celu oceny wpływu doświadczenia na preferencję spożywania etanolu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy U. Heberleinowi i A. Devineni za długotrwałe dyskusje i porady techniczne. Dziękujemy również członkom laboratorium Shohat-Ophir, A. Benzurowi, L. Kazazowi i O. Shalomowi, za pomoc w zademonstrowaniu metody. Szczególne uznanie należy się Eliezerowi Costiemu za stworzenie systemów muchowych w laboratorium. Prace te były wspierane przez Izraelską Fundację Naukową (384/14) oraz granty na integrację kariery w ramach programu Marie Curie (CIG 631127).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fiolki polistyrenowe 25 x 95 mm | FlyStuff | 32-109 | |
| wąskie fiolki plastikowe flugs | FlyStuff | 42-102 | |
| Jednorazowa sterylna igła 18 g i 27 g | może być nabyty przez dowolną firmę | 1,20 X 38 mm (18 G x 1 1/2") , 0,40 X 13 mm (27 G x 1/2") | |
| 10 x 75 mm Jednorazowe probówki hodowlane ze szkła borokrzemianowego | Kimble Chase | 73500-1075 | |
| kalibrowane pipety 5 μ L | VWR | 53432-706 | oznaczony kolorem białym, aby zawierał 5 i #956; L |
| Olej mineralny | Sigma-Aldrich | M5904 | |
| Sacharoza, klasa biologii molekularnej | CALBIOCHEM | 573113 | |
| Ekstrakt drożdżowy w proszku do mikrobiologii | można nabyć przez dowolną firmę | ||
| Etanol | Sigma-Aldrich | 32221 | |
| Końcówki do pipet standardowych (mikropipety) | ThermScientific | T114R-Q | objętość: 0,1 - 20 μ L (ultramicro) |
| IDENTI-PLUGS (Zaślepki do rurek piankowych) | Jaece | L800-A | pasuje do otworu 6 - 13 mm |
| IDENTI-PLUGS (Zaślepki do rurek piankowych) | Jaece | L800-D | pasuje do otworu 35 - 45 mm |
| Virginator Fly Stock | Bloomington Drosophila Stock Center | #24638 | |
| Wąskie fiolki, tacka (PS) | Genesee Scientific Corporation | # 32-109BR | |
| Przepisy i metody Drysophila Preparaty Centrum | Magazynowe Bloomington Drosophila | http://flystocks.bio.indiana.edu/Fly_Work/media-recipes/molassesfood.htm | |
| kwas propionowy | Sigma-Aldrich | P5561 | |
| kwas fosforowy | Sigma-Aldrich | ||
| 4-hydroksybenzoesan metu | Sigma-Aldrich | H3647 | |
| Agar Agar może | być nabyty przez dowolną firmę | ||
| Mączka kukurydziana | może być nabyta przez dowolną firmę | ||
| Melasa babci | B& G Foods, Inc | nie wskazano | |
| że suche drożdże instant | mogą być przejęte przez dowolną firmę |
Bibliografia
- Robinson, G. E., Fernald, R. D., Clayton, D. F. Genes and social behavior. Science. 322, 896-900 (2008).
- Koob, G. F. Neurobiological substrates for the dark side of compulsivity in addiction. Neuropharmacol. 56, Suppl 1 18-31 (2009).
- Kaun, K. R., Devineni, A. V., Heberlein, U. Drosophila melanogaster as a model to study drug addiction. Hum Genet. 131, 959-975 (2012).
- Devineni, A. V., Heberlein, U. Addiction-like behavior in Drosophila. Commun Integr Biol. 3, 357-359 (2010).
- Shohat-Ophir, G., Kaun, K. R., Azanchi, R., Mohammed, H., Heberlein, U. Sexual deprivation increases ethanol intake in Drosophila. Science. 335, 1351-1355 (2012).
- Devineni, A. V., Heberlein, U. Preferential ethanol consumption in Drosophila models features of addiction. Curr Biol : CB. 19, 2126-2132 (2009).
- McBride, S. M., et al. Mushroom body ablation impairs short-term memory and long-term memory of courtship conditioning in Drosophila melanogaster. Neuron. 24, 967-977 (1999).
- Ejima, A., Smith, B. P., Lucas, C., Levine, J. D., Griffith, L. C. Sequential learning of pheromonal cues modulates memory consolidation in trainer-specific associative courtship conditioning. Curr Biol. 15, 194-206 (2005).
- Ejima, A., et al. Generalization of courtship learning in Drosophila is mediated by cis-vaccenyl acetate. Curr Biol. 17, 599-605 (2007).
- Keleman, K., Kruttner, S., Alenius, M., Dickson, B. J. Function of the Drosophila CPEB protein Orb2 in long-term courtship memory. Nat Neurosci. 10, 1587-1593 (2007).
- Kaun, K. R., Azanchi, R., Maung, Z., Hirsh, J., Heberlein, U. A Drosophila model for alcohol reward. Nat Neurosci. 14, 612-619 (2011).
- Xu, S., et al. The propensity for consuming ethanol in Drosophila requires rutabaga adenylyl cyclase expression within mushroom body neurons. Genes Brain Behav. 11, 727-739 (2012).
- Devineni, A. V., Heberlein, U. The evolution of Drosophila melanogaster as a model for alcohol research. Annu Rev Neurosci. 36, 121-138 (2013).
- Ro, J., Harvanek, Z. M., Pletcher, S. D. FLIC: high-throughput, continuous analysis of feeding behaviors in Drosophila. PloS one. 9, 101107(2014).
- Itskov, P. M., et al. Automated monitoring and quantitative analysis of feeding behaviour in Drosophila. Nat Commun. 5, 4560(2014).
- Yapici, N., Cohn, R., Schusterreiter, C., Ruta, V., Vosshall, L. B. A Taste Circuit that Regulates Ingestion by Integrating Food and Hunger Signals. Cell. 165, 715-729 (2016).
- Peru, Y. C., et al. Long-lasting, experience-dependent alcohol preference in Drosophila. Addict Biol. 19, 392-401 (2014).
- Dus, M., et al. Nutrient Sensor in the Brain Directs the Action of the Brain-Gut Axis in Drosophila. Neuron. 87, 139-151 (2015).
- Anderson, D. J., Adolphs, R. A framework for studying emotions across species. Cell. 157, 187-200 (2014).
- Gibson, W. T., et al. Behavioral responses to a repetitive visual threat stimulus express a persistent state of defensive arousal in Drosophila. Curr Biol. 25, 1401-1415 (2015).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
