Badanie metabolizmu staje się coraz bardziej istotne dla badań immunologicznych. W tym artykule przedstawiamy zoptymalizowaną metodę pomiaru glikolizy i oddychania mitochondrialnego w mysich splenocytach oraz limfocytach T i B.
Artykuł metodologiczny
Zoptymalizowany protokół analizy glikolizy i oddychania mitochondrialnego w limfocytach
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Limfocyty reagują na różne bodźce, aktywując wewnątrzkomórkowe szlaki sygnałowe, co z kolei prowadzi do szybkiej proliferacji, migracji i różnicowania komórek oraz produkcji cytokin. Wszystkie te zdarzenia są ściśle związane ze stanem energetycznym komórki, a zatem badanie ścieżek wytwarzających energię może dostarczyć wskazówek na temat ogólnej funkcjonalności tych komórek. Analizator strumienia zewnątrzkomórkowego jest powszechnie stosowanym urządzeniem do oceny wydajności glikolizy i oddychania mitochondrialnego w wielu typach komórek. System ten został wykorzystany do badania komórek odpornościowych w kilku opublikowanych raportach, jednak brakuje kompleksowego protokołu zoptymalizowanego szczególnie pod kątem limfocytów. Limfocyty to delikatne komórki, które słabo przeżywają w warunkach ex vivo. Często podzbiory limfocytów są rzadkie, a praca z niską liczbą komórek jest nieunikniona. W związku z tym potrzebna jest eksperymentalna strategia, która rozwiąże te trudności. W tym miejscu udostępniamy protokół, który pozwala na szybką izolację żywotnych limfocytów z tkanek limfatycznych oraz analizę ich stanów metabolicznych w analizatorze strumienia zewnątrzkomórkowego. Ponadto przedstawiono wyniki eksperymentów, w których porównano aktywność metaboliczną kilku podtypów limfocytów przy różnych gęstościach komórek. Obserwacje te sugerują, że nasz protokół może być stosowany do osiągania spójnych, dobrze ustandaryzowanych wyników nawet przy niskich stężeniach komórek, a tym samym może mieć szerokie zastosowanie w przyszłych badaniach koncentrujących się na charakterystyce zdarzeń metabolicznych w komórkach odpornościowych.
Wprowadzenie
Odpowiedź immunologiczna przeciwko antygenom to ściśle regulowana równowaga między aktywacją immunologiczną a supresją immunologiczną. Aktywacja immunologiczna napędza szybką proliferację i migrację komórek, a także produkcję cytokin, wydzielanie przeciwciał i zwiększoną fagocytozę w odpowiedzi na stymulant, podczas gdy supresja immunologiczna po prostu hamuje te zdarzenia i dlatego jest ważna w zapobieganiu niepotrzebnym odpowiedziom immunologicznym1-6. Ostatnie badania wykazały, że istnieje bezpośredni związek między stanem aktywacji komórek odpornościowych a aktywnością różnych szlaków metabolicznych7. Komórki odpornościowe mogą przełączać się między stanem spoczynku a stanem aktywowanym, włączając i wyłączając szlaki wytwarzania energii. Ponadto zaobserwowano, że różne typy komórek odpornościowych mogą wykorzystywać różne strategie metaboliczne, aby zaspokoić swoje zwiększone zapotrzebowanie na energię podczas aktywacji. Na przykład, podczas gdy aktywacja limfocytów T kieruje komórki do prawie całkowicie glikolitycznegostanu 8, aktywowane limfocyty B wykorzystują równowagę glikolizy i fosforylacji oksydacyjnej9,10. Badania te wskazują na znaczenie badania wpływu aktywacji komórek odpornościowych na metabolizm komórkowy.
W czasie rzeczywistym, jednoczesne pomiary wskaźnika zużycia tlenu (OCR) i wskaźnika zakwaszenia zewnątrzkomórkowego (ECAR), jako wskaźników fosforylacji oksydacyjnej i glikolizy, to powszechna strategia rozwiązywania stanów szlaków produkcji energii11-13. Aby to osiągnąć, rutynowo stosuje się analizator strumienia zewnątrzkomórkowego, taki jak Seahorse XF 96. Takie urządzenie może szybko porównywać zmiany w OCR i ECAR w różnych typach komórek lub w różnych warunkach stymulacji. Do tej pory za pomocą tych urządzeń badano różne typy komórek, w tym komórki odpornościowe. Jednak zoptymalizowany protokół zaprojektowany specjalnie dla komórek odpornościowych nie jest dostępny.
Komórki odpornościowe, szczególnie limfocyty, różnią się od innych typów komórek na kilka kluczowych sposobów. Limfocyty to delikatne komórki, które nie przeżywają przez długi czas w warunkach ex vivo 14-16. Jest to jeszcze większy problem, gdy są one hodowane w nieoptymalnych pożywkach wzrostowych pozbawionych niezbędnych składników odżywczych, takich jak te używane w analizie strumienia zewnątrzkomórkowego. W przeciwieństwie do makrofagów i wielu linii komórkowych, limfocyty nie przylegają do powierzchni plastikowych; Dlatego tak ważne jest, aby przymocować je do płyty analitycznej bez generowania naprężeń. Wreszcie, niektóre subpopulacje limfocytów mogą być niezwykle rzadkie, a zebranie ich w wymaganych, optymalnych ilościach może być wyzwaniem17-19.
Tutaj oferujemy zoptymalizowany protokół, który został opracowany specjalnie dla limfocytów. Za pomocą splenocytów, limfocytów B i naiwnych limfocytów T CD4 + wyizolowanych ze śledziony i węzłów chłonnych myszy20 pokazujemy charakterystykę ich glikolizy w stanie spoczynku i fosforylacji oksydacyjnej przy różnych gęstościach komórek. Dane znormalizowano w celu uwzględnienia różnic w początkowej liczbie komórek dla każdej studzienki poprzez pomiar stężeń białka lizatu komórkowego w teście końcowym, które były wprost proporcjonalne do liczby komórek. Nasz protokół nie tylko zawiera wytyczne dotyczące szybkiej izolacji żywotnych limfocytów do testów strumienia zewnątrzkomórkowego, ale także pozwala na pracę przy nieoptymalnych stężeniach komórek bez uszczerbku dla jakości danych.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z protokołem LIG-4 na zwierzętach, który został zatwierdzony przez Komitet ds. Opieki i Użytkowania Zwierząt NIAID.
1. Przygotowanie odczynników
- Przygotować bufor do separacji magnetycznej (MS): PBS (pH 7,2) uzupełniony 0,5% BSA i 2 mM EDTA lub roztwór do automatycznego rozdzielania uzupełniony 0,5% BSA. Sterylny filtr (0,22 μm) i przechowywać w temperaturze 2-8 °C.
- Przygotuj pożywkę RF10: pożywkę RPMI 1640 uzupełnioną 10% inaktywowaną termicznie płodową surowicą bydlęcą, 50 U/ml penicyliny, 50 μM streptomycyny, 1 mM pirogronianu sodu, 2 mM L-glutaminy, 0,1 mM aminokwasów endogennych, 50 μM 2-merkaptoetanolu, 10 mM HEPES. Używaj sterylnych odczynników. Sterylny filtr i przechowywać w temperaturze 2-8 °C.
- Przygotuj mitochondrialne podłoże do testów wysiłkowych: podłoże bazowe XF uzupełnione 1 mM pirogronianem sodu, 2 mM L-glutaminą i 25 mM glukozą.
- Przygotować pożywkę do testów wysiłkowych glikolizy: pożywkę bazową XF uzupełnioną 2 mM L-glutaminą.
- Dostosować pH zarówno mitochondrialnego, jak i glikolizowego podłoża do testów wysiłkowych do 7,4, sterylnie przefiltrować i przechowywać w temperaturze 2-8 °C. Ogrzewać podłoże do 37 °C i ponownie dostosować pH przed użyciem (przeprowadzić pomiary pH w temperaturze 37 °C).
UWAGA: Użycie podłoża XF, które nie zawiera wodorowęglanu, ma kluczowe znaczenie. Ponieważ atmosfera w analizatorze strumienia zewnątrzkomórkowego zawiera tylko otaczający CO2 , każdy wodorowęglan w pożywce, po związaniu się z protonami uwolnionymi jako produkt uboczny glikolizy, zdysocjuje, tworząc CO2 i wodę. CO2 spowoduje odgazowanie podczas eksperymentu, powodując dryfy pH, które zaciemniłyby sygnał zakwaszenia glikolitycznego. - Przygotowanie oligomycyny: Przygotować 10 mM roztwór podstawowy w DMSO; przechowywać w temperaturze -20 °C.
- Przygotować 2,4-DNP: Przygotować 1 M roztwór podstawowy w DMSO; przechowywać w temperaturze -20 °C.
- Przygotować antymycynę A: Przygotować 10 mM roztwór podstawowy w DMSO; przechowywać w temperaturze -20 °C.
- Przygotowanie rotenonu: Przygotować 10 mM roztwór podstawowy w DMSO; przechowywać w temperaturze -20 °C.
- Przygotuj glukozę: Rozpuść glukozę w pożywce do testu wysiłkowego glikolizy, aby utworzyć roztwór o objętości 250 mM; przygotuj świeży przed każdym eksperymentem i nie zamrażaj.
- Przygotowanie 2-DG: Rozpuść stały 2-DG w pożywce do testów wytrzymałościowych glikolizy, aby utworzyć roztwór o stężeniu 500 mM; przygotuj świeży przed każdym eksperymentem i nie zamrażaj.
2. Pobieranie śledziony i węzłów chłonnych od myszy
- Poddaj mysz eutanazji przez uduszenie CO2 , a następnie zwichnięcie szyjki macicy.
- Spryskaj mysz 70% etanolem.
- W celu późniejszej izolacji limfocytów T należy pobrać śledzionę, powierzchowne węzły chłonne szyjne, powierzchowne/głębokie pachowe, żuchwowe, pachwinowe i krezkowe.
- W celu późniejszej izolacji limfocytów B należy pobrać tylko śledzionę.
UWAGA: Użyj komory bezpieczeństwa biologicznego i przechowuj pobrane narządy w pożywce PBS lub RF10 na lodzie do czasu przetworzenia. Używaj sterylnego sprzętu laboratoryjnego i sterylnej techniki na wszystkich etapach przetwarzania i izolacji. Utrzymuj wszystkie i pożywki na lodzie, aby zwiększyć skuteczność izolacji i zmniejszyć śmierć komórek.
3. Przetwarzanie tkanek
- Umieścić sitko o wielkości 70 μm na stożkowej probówce o pojemności 50 ml i przenieść narządy na sitko. W celu izolacji limfocytów T połącz wszystkie narządy, a w przypadku izolacji komórek B przenieś tylko śledzionę.
- Używając tłoka ze sterylnej strzykawki o pojemności 3 ml, rozetrzyj tkankę przez sitko. Podczas zacierania upewnij się, że filtr i organy są przez cały czas wilgotne i zwilż je w razie potrzeby, dodając bufor MS. Pozwoli to zarówno utrzymać wysoką żywotność komórek, jak i zapobiec zatykaniu się filtra.
- Po zacieraniu nałóż 5-10 ml buforu MS na filtr, aby zwiększyć regenerację komórek. Odwirować zawiesinę o stężeniu 400 x g przez 5 minut w temperaturze 4 °C. (wszystkie dalsze odwirowania przeprowadzić w tych warunkach, o ile nie jest to określone).
- Zdekantować płyn i ponownie zawiesić osad w 5 ml buforze do lizy czerwonych krwinek ACK. Inkubować przez 5 minut na lodzie w celu lizy czerwonych krwinek (czerwone krwinki muszą zostać usunięte, ponieważ zakłócają separację magnetyczną). Dodać 10-20 ml buforu MS i odwirówki.
- Umieść filtr komórkowy 30 μm na stożkowej probówce o pojemności 15 ml i zalej go 1 ml buforem MS (ta filtracja usunie zanieczyszczenia z lizy erytrocytów). Zdekantować ciecz z probówki wirowej, ponownie zawiesić osad w 5 ml buforu MS i przepuścić przez filtr. Przemyć początkową probówkę 4 ml buforu MS, aby zwiększyć regenerację komórek, i użyć jej do przepłukania filtra.
- Za pomocą hemocytometru lub automatycznego licznika komórek określ całkowitą liczbę komórek. Ten numer komórki zostanie wykorzystany do określenia ilości odczynników do separacji magnetycznej wymaganych w sekcji 4. Jeśli splenocyty mają być użyte w kolejnym teście strumienia zewnątrzkomórkowego, należy w tym czasie odłożyć na bok odpowiednią liczbę komórek.
- Odwirować zawiesinę i przystąpić do separacji magnetycznej. Zawiesić splenocyty nieużywane do izolacji limfocytów B w 5 ml RF10 i trzymać na lodzie do czasu oznaczenia przepływu zewnątrzkomórkowego.
4. Magnetyczna separacja limfocytów B i naiwnych limfocytów T CD4+
- Określ niezbędne objętości koktajlu biotyny-przeciwciała, mikrogranulek antybiotyny i buforu MS. Użyj następujących woluminów dla 108 komórek jako przewodnika i przeskaluj w górę lub w dół w razie potrzeby.
UWAGA: Próbki należy inkubować w lodówce, a nie na lodzie, ponieważ inkubacja na lodzie może zmniejszyć skuteczność wiązania przeciwciał i może być wymagany dłuższy czas inkubacji.
| Odczynniki do naiwnej separacji limfocytów T CD4+ | Objętość na 108 ogniw |
| (odpowiednio skalować) | |
| Koktajl biotyny i przeciwciał | 100 μl |
| Bufor MS do pierwszej inkubacji | 400 μl |
| Mikrogranulki antybiotynowe | 200 μl |
| Mikrokulki CD44 | 100 μl |
| Bufor MS do drugiej inkubacji | 200 μl |
| Inkubuj koktajl biotyny i przeciwciała oraz komórki w temperaturze 4 °C przez 5 minut. Dodaj mikrogranulki antybiotyny, mikrogranulki CD44, bufor MS i inkubuj w temperaturze 4 °C przez 15 minut. | |
Tabela 1: Objętości i instrukcje dotyczące izolacji limfocytów T.
| Odczynniki do separacji komórek B | Objętość na 108 ogniw |
| (odpowiednio skalować) | |
| Koktajl biotyny i przeciwciał | 100 μl |
| Bufor MS do pierwszej inkubacji | 400 μl |
| Mikrogranulki antybiotynowe | 200 μl |
| Bufor MS do drugiej inkubacji | 300 μl |
| Inkubować koktajl biotyny-przeciwciała i komórki w temperaturze 4 °C przez 15 minut. Dodać odpowiednią objętość koktajlu biotyny-przeciwciała i buforu MS, a następnie inkubować mieszaninę w temperaturze 4 °C przez 15 minut. Dodać odpowiednią objętość mikrogranulek anty-biotyny i buforu MS i inkubować mieszaninę w temperaturze 4 °C przez 15 minut. Po drugiej inkubacji napełnić probówkę buforem MS i odwirować. | |
Tabela 2: Objętości i instrukcje dotyczące izolacji komórek B.
- Zawiesić osad w buforze MS: 500 μl do separacji ręcznej, 3-4 ml do separacji automatycznej.
- Kontynuuj ręczne lub automatyczne rozdzielanie w następujący sposób:
- Separacja ręczna:
- Włóż kolumnę LS do magnesu separacyjnego, umieść sterylną stożkową probówkę o pojemności 15 ml poniżej, aby zebrać przepływ, i zalej kolumnę, przemłukując ją 3 ml buforu MS. Odrzuć przepływ.
- Przenieść zawiesinę komórkową do zagruntowanej kolumny LS i pozwolić jej przejść; przemyć probówkę używaną podczas inkubacji 3 ml buforu MS i przepuścić ją również przez kolumnę. Eluat będzie zawierał oczyszczone komórki. W celu izolacji komórek B przepuść oczyszczone komórki przez kolumnę po raz drugi do nowej probówki o pojemności 15 ml i powtórz etap przemywania . Zwiększy to czystość i wydajność.
- Automatyczna separacja:
- Włącz automatyczny separator i sprawdź poziom pracującego buforu, roztworu płuczącego i 70% etanolu. Upewnij się, że odpady są puste przed rozpoczęciem separacji.
- Wybierz odpowiedni stojak chłodzący w zależności od rozmiaru probówki nieoczyszczonej próbki (np. 15 ml). Aby utrzymać ogniwa w stanie zdatnym do życia przez cały proces separacji, należy używać stojaków, które zostały wcześniej schłodzone w temperaturze 2-8 °C przez 3-4 godziny lub do momentu, gdy płyn chłodzący stanie się stały.
- Zamontuj schłodzony stojak na stoliku na próbki automatycznego separatora.
- Umieścić probówkę z próbką w szczelinie A1, probówkę dla frakcji ujemnej w szczelinie B1, a probówkę dla frakcji dodatniej w C1. W przypadku pobierania więcej niż jednej próbki należy umieścić dodatkowe probówki w kolejnych kolumnach (A2, B2, C2 itd.).
- Wybierz zakładkę separacji na ekranie dotykowym i wskaż układ rur na stojaku. Z menu separacji wybierz program "Wyczerpuje się" i zakończ cykl programu odpowiednim rodzajem prania (patrz uwaga poniżej).
UWAGA: Program "Wyczerpuje się" przeprowadza zubożenie przy użyciu najbardziej czułego trybu maszyny, w którym priorytetem jest czystość. Dodatkowo dostępne są trzy różne opcje prania: szybkie płukanie, płukanie i sen. Jeśli próbki pochodzą z tego samego źródła i mają być połączone, wybierz szybkie płukanie. Jeśli próbki mają być przechowywane oddzielnie, należy wybrać płukanie. Wybierz opcję uśpienia, jeśli tego dnia nie będą przeprowadzane żadne dalsze izolacje i jeśli urządzenie zostanie wyłączone po izolacji - Rozpocznij izolację, naciskając "Uruchom" i potwierdź poziomy bufora, gdy zostaniesz o to poproszony. Po zakończeniu programu frakcja ujemna będzie zawierała oczyszczone komórki.
- Napełnić stożkową probówkę do 15 ml buforem MS i wirówką.
- Zdekantować bufor MS i ponownie zawiesić komórki w 5 ml pożywki RF10. Utrzymuj komórki na lodzie do momentu testu przepływu zewnątrzkomórkowego.
UWAGA: Idealnie byłoby, gdyby test strumienia zewnątrzkomórkowego został przeprowadzony natychmiast po izolacji. Jednak we wstępnych eksperymentach nie zaobserwowano istotnych różnic w wynikach testów w komórkach użytych w ciągu 3 godzin od izolacji w porównaniu ze świeżo wyizolowanymi.
- Separacja ręczna:
5. Test strumienia zewnątrzkomórkowego
UWAGA: Opisany tutaj protokół dotyczy 96-dołkowego formatu instrumentu. Woluminy będą musiały zostać dostosowane, jeśli używany jest inny format.
- Nawodnienie wkładu czujnika
- Podnieś wkład czujnika, napełnij każdą studzienkę płytki użytkowej roztworem kalibru 200 μl i opuść wkład czujnika na płytkę użytkową, zanurzając czujniki w roztworze kalibru.
UWAGA: Sprawdź, czy poziom roztworu kalibru jest wystarczająco wysoki, aby czujniki były zanurzone. Wkład zawiera fluorofory związane z O2 i H+ dla każdej studzienki; Muszą one być nawodnione, aby działały prawidłowo. - Umieścić wkład w inkubatorze o temperaturze 37 °C, nieuzupełnionym CO2 lub tlenem/azotem. Wszystkie dalsze inkubacje należy przeprowadzać w tych warunkach, o ile nie określono inaczej. Inkubuj wkład przez noc w celu uwodnienia.
- Podnieś wkład czujnika, napełnij każdą studzienkę płytki użytkowej roztworem kalibru 200 μl i opuść wkład czujnika na płytkę użytkową, zanurzając czujniki w roztworze kalibru.
- Przygotowanie płyt powlekanych klejem
- Przygotować 2,5 ml roztworu kleju o stężeniu 22,4 μg/ml w 0,1 M wodorowęglanie sodu o pH 8,0 (wodorowęglan zapewnia optymalne pH dla adsorpcji kleju).
- Nałożyć 25 μl roztworu na każde zagłębienie płytki testowej i inkubować na stole w temperaturze pokojowej przez 20 minut.
- Odessać klej i umyć każdą studzienkę dwukrotnie za pomocą 200 μl sterylnej wody. Poczekaj, aż studzienki wyschną, zanim zasiejesz komórki.
- Komórki wysiewu w płytkach pokrytych klejem
- Odwirować komórki w temperaturze pokojowej przy 200 x g przez 5 minut. Zawiesić komórki w 5 ml odpowiedniej pożywki do oznaczania (patrz powyżej w celu określenia pożywki dla stresu mitochondrialnego i glukozy). Ponownie odwirować komórki i ponownie zawiesić w żądanym stężeniu w pożywce testowej (objętość zawiesiny będzie się różnić w zależności od stężenia; każda studzienka będzie zawierać 180 μl zawiesiny komórek).
UWAGA: Tak długo, jak używane są odpowiednie podłoża i związki testowe, analizator strumienia zewnątrzkomórkowego może jednocześnie przeprowadzać testy stresu mitochondrialnego i glikolizy na tej samej płytce. - Płytka 180 μl zawiesiny komórek w każdym dołku. Użyj studzienek A1, A12, H1 i H12 do korekcji temperatury tła: dodaj 180 μl pożywki testowej do tych studzienek (bez komórek).
- Inkubować płytki przez 25 minut w temperaturze 37 °C.
- Odwirować płytkę o masie 200 x g przez 5 minut bez przerwy, aby upewnić się, że wszystkie komórki są całkowicie połączone. Potwierdź wzrokowo, że komórki są stabilnie przylegające do powierzchni hodowli, tworząc monowarstwę, oglądając pod mikroskopem. Przenieś płytki z powrotem do inkubatora na dodatkowe 30 minut.
- Odwirować komórki w temperaturze pokojowej przy 200 x g przez 5 minut. Zawiesić komórki w 5 ml odpowiedniej pożywki do oznaczania (patrz powyżej w celu określenia pożywki dla stresu mitochondrialnego i glukozy). Ponownie odwirować komórki i ponownie zawiesić w żądanym stężeniu w pożywce testowej (objętość zawiesiny będzie się różnić w zależności od stężenia; każda studzienka będzie zawierać 180 μl zawiesiny komórek).
- Przygotowanie 10-krotnych stężeń związków i załadowanie portów wtryskiwaczy
- Do testu wysiłkowego mitochondriów przygotuj po 2,5 ml oligomycyny 10 μM, 1 mM DNP i mieszaniny 10 μM rotenonu i 10 μM antymycyny A, wszystko w pożywce do testu stresu mitochondrialnego.
UWAGA: Stężenie 2,4-DNP opiera się na wcześniej opublikowanych badaniach; 21 Jest to ogólna wytyczna, ale stężenie rozprzęgacza dla każdego typu użytego ogniwa powinno być określone przez badacza. - Do testu obciążeniowego glikolizy przygotuj po 2,5 ml 250 mM glukozy, 10 μM oligomycyny i 500 mM 2-deoksyglukozy (2-DG) w pożywce do oznaczania stresu glikolizy.
- Podgrzej 10x roztwory do 37 °C i dostosuj pH do 7,4.
- Załaduj związki do odpowiednich portów wtryskiwaczy wkładu za pomocą wielokanałowego mikropipetora i prowadnic ładowania, w następujący sposób:
Tabela 3: Objętości złożone.port Test stresu mitochondrialnego Test stresu glikolizy ZA 20 μl oligomycyny 20 μl glukozy W 22 μl 2,4-DNP 22 μl oligomycyny Z 25 μl antymycyny A/rotenonu 25 μl 2-DG
UWAGA: Każda seria portów (np. wszystkie porty A) musi zawierać ten sam wolumin. Bardzo ważne jest, aby wszystkie studzienki w danej serii zostały załadowane, nawet te niewykorzystane w eksperymencie, w przeciwnym razie związki nie zostaną wstrzyknięte (porty w nieużywanych studzienkach mogą być załadowane tą samą objętością pożywki testowej). - Inkubuj wkład podczas konfigurowania programu.
- Do testu wysiłkowego mitochondriów przygotuj po 2,5 ml oligomycyny 10 μM, 1 mM DNP i mieszaniny 10 μM rotenonu i 10 μM antymycyny A, wszystko w pożywce do testu stresu mitochondrialnego.
- Ustawianie protokołów oznaczania strumienia zewnątrzkomórkowego
- Skonfiguruj następujący program (Tabela 4).
Tabela 4: Układ programu.krok pętla wzorcowanie –– Równowagi –– Odczyty bazowe 3 razy: mieszać 3 min, odczekać 0 min, odmierzać 3 min Pętla końcowa –– Wstrzyknij port A –– Pomiary 3 razy: mieszać 3 min, odczekać 0 min, odmierzać 3 min Pętla końcowa –– Wstrzyknij port B –– Pomiary 3 razy: mieszać 3 min, odczekać 0 min, odmierzać 3 min Pętla końcowa –– Wstrzyknij port C –– Pomiary 3 razy: mieszać 3 min, odczekać 0 min, odmierzać 3 min Pętla końcowa –– Zakończ program ––
UWAGA: W pewnych warunkach, np. podczas korzystania z aktywowanych komórek, zakwaszenie może trwać dłużej niż w komórkach nieleczonych. Z tego powodu może być konieczne wydłużenie czasów "oczekiwania" w powyższym programie lub powtórzenie każdego cyklu pomiarowego więcej razy. - Rozpocznij program. Po zakończeniu kalibracji wymień płytkę kalibru na płytkę testową (po wyświetleniu monitu).
UWAGA: Za pomocą oprogramowania można wskazać grupy studni, które mają podobne warunki. Dodatkowo kluczowe jest wskazanie, które studnie są studniami kontrolnymi (w tym protokole są to cztery rogi tablicy) oraz wskazanie, które studnie są puste. Aby uzyskać bardziej szczegółowy, krok po kroku, protokół konfiguracji urządzenia i jego oprogramowania, należy zapoznać się ze stroną internetową producenta.
- Skonfiguruj następujący program (Tabela 4).
- Pomiar zawartości białka
- Usunąć pozostałą pożywkę do oznaczania z każdej studzienki bez naruszania komórek.
UWAGA: Jeśli nie jest wygodne kontynuowanie oznaczania stężenia białka, możliwe jest zamrożenie całej płytki w temperaturze -20 °C do czasu analizy. W przypadku zamrożenia rozmrozić przed kontynuowaniem. - Przygotować 1x roztwór inhibitorów proteazy (100x zapas) w pożywce do lizy RIPA (wystarcza na 50 μl/studzienkę).
- Do każdej studzienki dodać 50 μl pożywki do lizy RIPA uzupełnionej inhibitorami proteazy. Mieszać płytkę na wytrząsarce przez 5 minut, a następnie inkubować płytkę na lodzie przez 30 minut, aby w pełni zlizować komórki.
- Obracać płytkę o gramaturze 200 x g przez 5 minut w temperaturze pokojowej, aby lipidy i inne cząsteczki znalazły się na dnie płytki, tak aby nie zakłócały testu kwasu bicinchoninowego (BCA).
- Zmierz stężenie białka za pomocą testu BCA zgodnie z zaleceniami producenta.
- Usunąć pozostałą pożywkę do oznaczania z każdej studzienki bez naruszania komórek.
Wyniki
Komórki eukariotyczne wykorzystują zintegrowaną sieć glikolizy, cyklu kwasu trójkarboksylowego (TCA) oraz fosforylacji oksydacyjnej, aby zaspokoić większość swojego zapotrzebowania energetycznego oraz dostarczyć produktów pośrednich niezbędnych do wzrostu i proliferacji komórek. Ścieżki te rozpoczynają się od wewnątrzkomórkowego zatrzymania wolnej glukozy w formie glukozo-6-fosforanu, który następnie jest przekształcany w pirogronian. Pirogronian jest albo redukowany do mleczanu, albo transportowany do mitochondriów, gdzie tworzy acetylo-koenzym A (CoA). Acetylo-CoA wchodzi następnie w cykl TCA. Wysokoenergetyczne produkty pośrednie cyklu TCA napędzają ruch elektronów w łańcuchu transportu elektronów (ETC), który z kolei wypompowuje H+ z macierzy mitochondrialnej, aby wytworzyć gradient H+ w poprzek wewnętrznej błony mitochondrialnej. Tlen pełni rolę ostatecznego akceptora elektronów, a H+ powracają do macierzy mitochondrialnej poprzez kompleks FO/F1, gdzie ich energia potencjalna jest wykorzystywana do generowania ATP (Rysunek 1A).
Zasada działania analizy przepływu zewnątrzkomórkowego opiera się na zakłócaniu glikolizy i fosforylacji oksydacyjnej w określonych punktach oraz ocenie wynikających z tego efektów. W tym celu wykorzystano glukozę do pobudzenia glikolizy w komórkach zagłodzonych oraz 2-deoksyglukozę (2-DG), która jest przekształcana przez heksokinazę w 2-deoksyglukozę-6-fosforan, będący konkurencyjnym inhibitorem fosfoglukoomutazy23, aby zablokować glikolizę. Rotenon (inhibitor kompleksu I łańcucha transportu elektronów - ETC), antymycyna A (inhibitor kompleksu III ETC), oligomycyna (inhibitor syntazy ATP24) oraz czynnik rozprzęgający 2,4-dinitrofenol (DNP)25 zostały użyte do ingerencji w konkretne zdarzenia związane z transportem elektronów, gradientem protonowym i syntezą ATP (Rysunek 1A). Zamiast 2,4-DNP można zastosować cyjanorkarbonylową hydrazonową kwasu 4-(trifluorometoksy)fenylowego (FCCP), jednak może to wymagać dalszej optymalizacji. W obu przypadkach przed użyciem należy zawsze przeprowadzić miareczkowanie rozprzęgaczy dla konkretnego typu komórek, aby określić niezbędne optymalne stężenie.
Test stresowy glikolizy (Rysunek 1B) rozpoczyna się od pomiaru bazowego szybkości zakwaszania środowiska zewnętrznego (ECAR) w wcześniej zagłodzonych komórkach. Ponieważ komórki te znajdują się na poziomie bazowym minimum i mogą zatem być praktycznie uznane za nieglikolityczne, ECAR mierzony w tym punkcie określa się jako zakwaszanie nieglikolityczne. Zakwaszanie to najprawdopodobniej odpowiada oddechowemu CO2 generowanemu w cyklu TCA, który jest przekształcany w HCO3- i H+. Następnie następuje wstrzyknięcie glukozy w celu aktywacji glikolizy, co objawia się wzrostem zakwaszania zewnętrznego ze względu na powstawanie mleczanu. Wzrost ten reprezentuje normalną szybkość glikolizy. Następnie komórki są poddawane działaniu oligomycyny, która blokuje generowanie ATP poprzez fosforylację oksydacyjną. Komórki reagują na ten gwałtowny spadek produkcji ATP poprzez aktywację glikolizy do poziomu maksymalnego, co skutkuje wtórnym wzrostem poziomu ECAR (rezerwa glikolityczna). Test kończy się całkowitym zahamowaniem glikolizy przy użyciu analogu glukozy 2-DG, co przywraca ECAR do poziomu nieglikolitycznego. Co ciekawe, zaproponowano, że wbrew zaleceniom producenta, maksymalna glikoliza niekoniecznie jest osiągana po wstrzyknięciu oligomycyny26. W komórkach o wysokiej wydajności glikolitycznej, jeśli nie następuje znaczący wzrost zapotrzebowania na ATP, glikoliza może być w pełni zdolna do zrekompensowania utraty mitochondrialnego ATP bez konieczności jej zwiększania. Szybkość glikolizy przy zastosowaniu oligomycyny może zostać przekroczona poprzez dodanie inhibitorów oddechowych, takich jak rotenon i miksotiazol, co daje kilka korzyści w stosunku do oligomycyny: 1) zwiększają one zapotrzebowanie na ATP, ponieważ powodują odwrócenie działania syntazy ATP, z hydrolizą ATP, w celu pompowania protonów w próbie odzyskania mitochondrialnego potencjału błonowego26; 2) zapobiegają oddechowemu zakwaszaniu medium, co może zaburzać wyniki ECAR (patrz poniżej). Inne sposoby zwiększenia zapotrzebowania na ATP obejmują dodanie związków stymulujących hydrolizę ATP przez ATP-azy błony komórkowej26. Wszystko to powinno być starannie rozważone przez badaczy podczas planowania testu stresowego glikolizy.
Test stresu mitochondrialnego (Ryc. 1C) rozpoczyna się od pomiaru bazowego tempa zużycia tlenu (OCR) w komórkach niedodanych do głodzenia. Następnie wstrzykuje się oligomycynę, która hamuje powrót protonów przez kompleks FO/F1, co prowadzi do szybkiej hiperpolaryzacji błony mitochondrialnej. Hiperpolaryzacja zapobiega dalszemu pompowaniu protonów przez kompleksy oddechowe, w wyniku czego tempo oddychania spada. Pozostały poziom oddychania określa się mianem przecieku protonów, który reprezentuje przepływ protonów przez lipidy lub inne kanały. Ten stan hiperpolaryzacji jest szybko odwracany przez dodanie czynnika rozprzęgającego 2,4-DNP, który działa jako ionofor protonowy. W odpowiedzi komórki próbują odzyskać potencjał błonowy w daremnej próbie, zwiększając tempo transportu elektronów do maksimum, co z kolei zwiększa OCR. Na koniec, po dodaniu dwóch inhibitorów ETC (antymycyny A i rotenonu), oddychanie mitochondrialne całkowicie ustaje, a OCR spada do najniższego poziomu. Na tym etapie zużycie tlenu nie wynika z aktywności mitochondriów (zużycie pozamitochondrialne). Różnica w OCR wywołana przez te inhibitory jest nazywana maksymalnym oddychaniem mitochondrialnym, które stanowi sumę oddychania bazowego i pojemności rezerwowej.
Izolacja limfocytów B i T pozwala na uzyskanie wysoko żywotnych, czystych populacji limfocytów.
Limfocyty B oraz naiwne limfocyty T CD4+ wyizolowano zgodnie z opisem w sekcji 4 protokołu, natomiast splenocyty otrzymano poprzez lizę erytrocytów, jak opisano w sekcji 3.3.
Czułość specyficznych dla typu komórek testów metabolicznych zależy od żywotności i czystości wyjściowej populacji komórek. Dlatego, w celu zweryfikowania żywotności wyizolowanych limfocytów T, splenocytów i limfocytów B myszy oraz czystości limfocytów T i B, niewielkie aliquoty komórek barwiono w celu analizy cytometrycznej (Rycina 2). Na wykresie rozproszenia przedniego-pole vs. rozproszenia bocznego-pole (FSC-A vs. SSC-A) wyznaczono bramkę dla limfocytów, a w obrębie tej bramki populację wzdłuż przekątnej na wykresie rozproszenia przedniego-wysokość (FSC-H) vs. FSC-A określono jako singlety. W obrębie populacji singletów żywotność mierzono poprzez bramkowanie komórek, które nie wykazały barwienia dla markera żywotności/śmierci (Rycina 2A); żywotność limfocytów T wyniosła 97,9%, żywotność splenocytów 92%, a żywotność limfocytów B 94%. Czystość limfocytów B, mierzona jako populacja B220+ CD19+26, wyniosła 99%, natomiast czystość limfocytów T CD4+, mierzona jako populacja CD44- CD4+27, wyniosła 98,3% (Rycina 2B).
Stężenie białek w lizacie komórkowym może służyć jako bezpośredni wskaźnik liczby wysianych komórek.
Wyizolowane limfocyty i splenocyty wysiano na pokrytą warstwą adhezyjną płytkę analityczną 96-dołkową w gęstościach 5 x 10⁵ komórek/dołek, 2,5 x 10⁵ komórek/dołek, 1,25 x 10⁵ komórek/dołek oraz 0,625 x 105 komórek/dołek. Stopień konfluencji dla każdego zagęszczenia wysiewu trzech typów komórek zobrazowano pod mikroskopem świetlnym (Rycina 3A). Zgodnie z oczekiwaniami, konfluencja była skorelowana z początkowym zagęszczeniem wysiewu. Po zakończeniu analizy strumienia zewnątrzkomórkowego (extracellular flux assay), wysiane komórki poddano lizie, a stężenia białek oznaczono metodą BCA. Dla wszystkich typów komórek wykazano liniową korelację stężeń białek w lizatach z początkowym zagęszczeniem wysiewu (Rycina 3B), co potwierdza, że stężenia białek w lizatach mogą służyć jako dokładna miara do normalizacji liczby komórek podczas interpretacji danych o strumieniu zewnątrzkomórkowym. Zagęszczenia wysiewu zastosowane w tym eksperymencie zostały zoptymalizowane dla naiwnych, niestymulowanych limfocytów. W przypadku zastosowania komórek stymulowanych lub wcześniej hodowanych może być wymagana dodatkowa optymalizacja.
Testy stresu mitochondrialnego i glikolitycznego są zależne od liczby wysianych komórek.
Wartość OCR była mierzona dla każdego typu komórek i gęstości wysiewu w analizatorze przepływu zewnątrzkomórkowego. Zgodnie z oczekiwaniami, większa liczba komórek wiązała się z wyższą zmierzoną wartością OCR, a także z gwałtowniejszą odpowiedzią na oligomycynę, 2,4-DNP oraz antymycynę A/rotenon (Rysunek 4A). Standaryzacja pomiarów OCR do stężenia białka w każdej próbce wykazała, że ogólnie większa liczba komórek prowadzi do bardziej dokładnych pomiarów OCR. Wysiew w gęstości 5 i 2,5 x 10⁵ komórek/studzienkę doprowadził do podobnych znormalizowanych pomiarów OCR w limfocytach T i splenocytach, natomiast gęstość 5 i 1,25 x 10⁵ komórek/studzienkę dała podobne znormalizowane pomiary OCR w limfocytach B (Rysunek 4B). Niewielkie różnice w znormalizowanych pomiarach OCR limfocytów B mogą być pośrednią wskazówką, że limfocyty B funkcjonują lepiej przy gęstości 2,5 x 10⁵ komórek/studzienkę w porównaniu do innych gęstości wysiewu. Według wszystkich parametrów, gęstość 0,625 x 105 komórek/studzienkę dawała suboptymalne wyniki, co dowodzi, że ta gęstość wysiewu jest niewystarczająca. Respiracja podstawowa, wyciek protonów, maksymalna respiracja mitochondrialna, respiracja niemitochondrialna oraz produkcja ATP korelowały liniowo z gęstością wysiewu dla wszystkich typów komórek (Rysunek 4C). Ponadto większość respiracji podstawowej jest wykorzystywana do syntezy ATP, co wskazuje niski poziom wycieku protonów w trzech badanych typach komórek. Chociaż głównym celem eksperymentu stresu mitochondrialnego jest pomiar zmian OCR, rejestrowanie ECAR jest nadal przydatne, aby upewnić się, że test został przeprowadzony pomyślnie. Podobnie jak w przypadku OCR, dwie wyższe gęstości wysiewu skutkowały wyższym ECAR i gwałtowniejszą odpowiedzią na oligomycynę, 2,4-DNP oraz antymycynę A/rotenon (Rysunek 4D). Gwałtowne zmiany ECAR po dodaniu 2,4-DNP oraz antymycyny A/rotenonu mogą wynikać ze zmian w respiracji oprócz zmian w glikolizie, ponieważ CO2 generowany w cyklu TCA jest przekształcany w HCO3 - i H+. Kwestia ta została niedawno omówiona i istnieje prosta metoda korygowania całkowitego sygnału zakwaszenia zewnątrzkomórkowego przy użyciu danych o zużyciu tlenu, aby uzyskać rzeczywiste tempo glikolizy12,29.
Analiza stresu glikolitycznego była najskuteczniejsza przy najwyższej gęstości wysiewu (Rysunek 5A, B). We wszystkich typach komórek próbki o gęstości 5 x 10⁵ komórek/studzienkę wykazały największe zmiany ECAR po dodaniu glukozy, oligomycyny i 2-DG (Rysunek 5B). Dodatkowo normalizacja do stężenia białka wykazała, że dla wszystkich typów komórek próbki o gęstości 5 x 10⁵ komórek/studzienkę dawały optymalne wyniki, natomiast niższe stężenia – w szczególności 0,625 x 105 komórek/studzienkę – nie wykazały silnej rezerwy wydolności glikolitycznej. Zakwaszenie nieglikolityczne, glikoliza i pozorna wydolność glikolityczna korelowały liniowo z gęstością wysiewu dla wszystkich typów komórek (Rysunek 5C). W eksperyencie dotyczącym stresu glikolitycznego wykres OCR pokazuje, że glukoza lekko stymuluje oddychanie mitochondrialne, które następnie jest hamowane przez traktowanie oligomycyną; dodanie 2-DG nie wpłynęło na OCR (Rysunek 5D). Wykres OCR może służyć jako dodatkowy wskaźnik, że eksperyment stresu glikolitycznego został przeprowadzony pomyślnie. Ponadto wykres OCR może zostać wykorzystany do korekty wykresu ECAR, jeśli jest to wymagane, zgodnie z opisem powyżej w przypadku testu stresu mitochondrialnego12,29.

Rysunek 1: Zarys testów strumienia zewnątrzkomórkowego. (A) Ilustracja glikolizy (lewa) i fosforylacji oksydacyjnej (prawa) przedstawiająca działanie leków metabolicznych stosowanych w testach strumienia zewnątrzkomórkowego. (B) Schemat wykresu wskaźnika zakwaszenia zewnątrzkomórkowego (ECAR); schemat wykresu wskaźnika zużycia tlenu (OCR) (C). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 2: Krokowe bramkowanie limfocytów T, limfocytów B i splenocytów w celu określenia żywotności i czystości. Wykresy cytometrii przepływowej przedstawiające żywotność limfocytów T, splenocytów i limfocytów B (A) oraz czystość limfocytów T i B (B). Wyniki są reprezentatywne dla co najmniej trzech niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
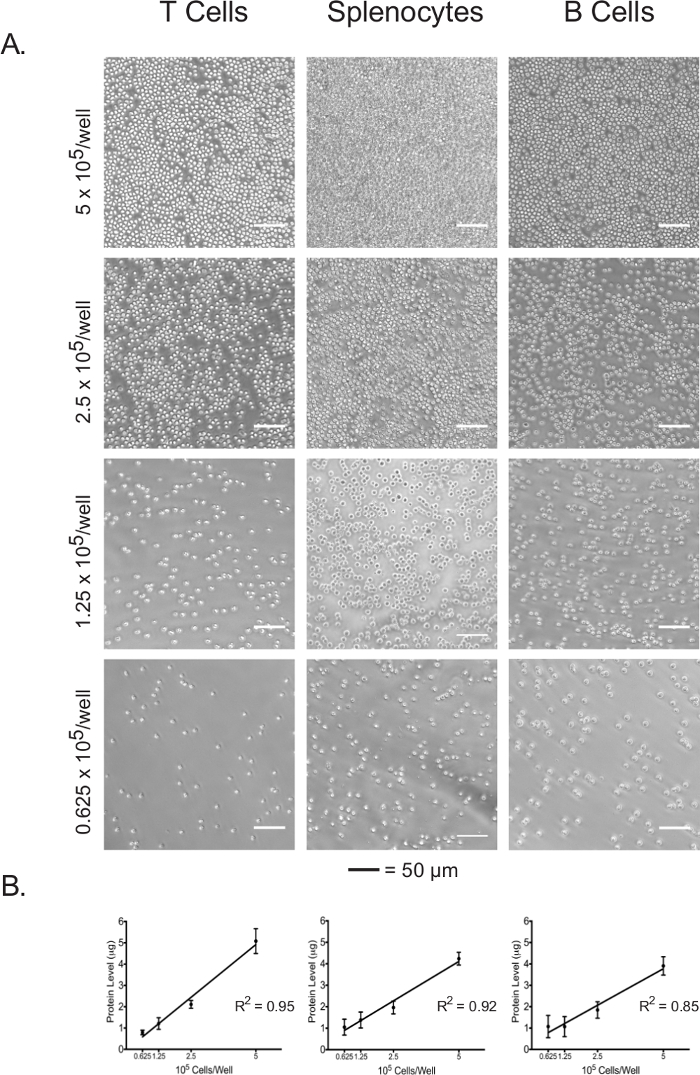
Rysunek 3: Konfluencja komórek koreluje z stężeniami białek w lizatach każdego typu komórek przy różnych gęstościach wysiewu. (A) Mikrofotografie świetlne komórek w dołkach płytki testowej przy gęstościach wysiewu od 5 x 10⁵ cells/well do 0,625 x 105 cells/well. Paski skali oznaczają 50 µm. (B) Stężenia białek w lizatach przy różnych gęstościach wysiewu, zmierzone metodą BCA. Wyniki są reprezentatywne dla co najmniej trzech niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rysunek 4: Test stresu mitochondrialnego. Przedstawiono surowe (A) i zestandaryzowane (B) wartości OCR dla każdego typu komórek i gęstości wysiewu. (C) Dla każdego typu komórek pokazano zależne od liczby komórek zmiany poziomów respiracji podstawowej, maksymalnej mitochondrialnej i pozamitochondrialnej, a także zużycia tlenu powiązanego z przeciekiem protonów lub produkcją ATP. (D) Przedstawiono surowe wartości ECAR uzyskane z testów stresu mitochondrialnego. Każdy punkt danych reprezentuje średnią z 7-8 studniek z odchyleniem standardowym. Oznaczone strzałki wskazują wstrzyknięcia oligomycyny (O), 2,4-DNP (D) oraz rotenonu/antymycyny A (R/A). Wyniki są reprezentatywne dla co najmniej trzech niezależnych eksperymentów. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
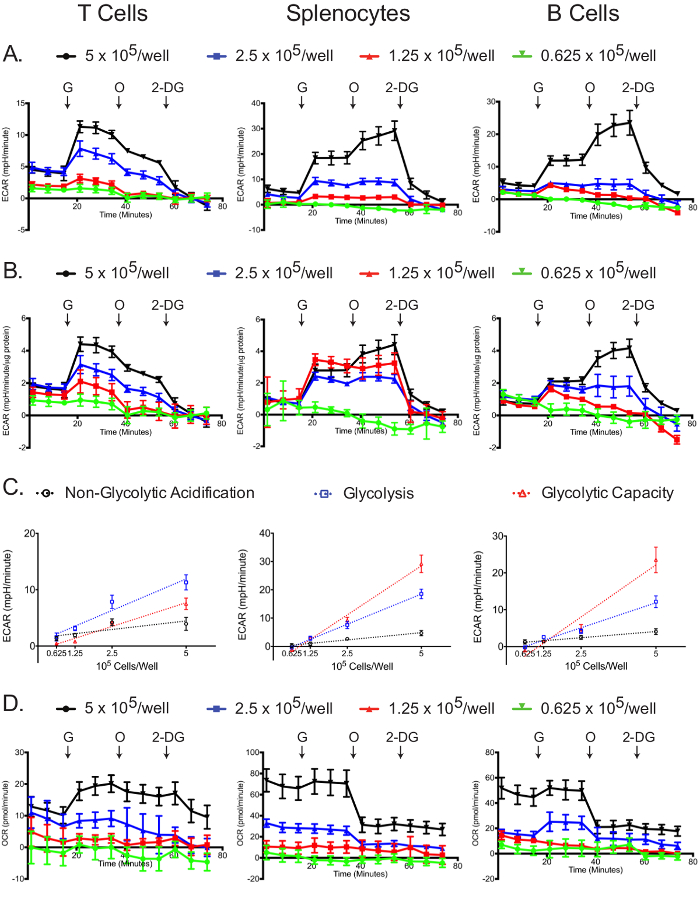
Rysunek 5: Test stresu glikolitycznego. Przedstawiono surowe (A) i znormalizowane (B) wartości ECAR dla każdego typu komórek i gęstości wysiewu. (C) Przedstawiono zależne od liczby komórek zmiany ECAR dla zakwaszenia nieglikolitycznego, glikolizy indukowanej glukozą oraz całkowitej wydajności glikolitycznej. (D) Przedstawiono surowe wartości OCR uzyskane w testach stresu glikolitycznego. Każdy punkt danych reprezentuje średnią z 7-8 studzienek wraz z odchyleniem standardowym. Oznaczone strzałki wskazują momenty wstrzyknięcia glukozy (G), oligomycyny (O) i 2-deoksyglukozy (2-DG). Wyniki są reprezentatywne dla co najmniej trzech niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Opracowany przez nas protokół pozwolił na skuteczną izolację czystych i żywotnych podzbiorów limfocytów, które następnie wykorzystano w analizie strumienia zewnątrzkomórkowego w różnych stężeniach w celu oceny różnic w wydajności glikolizy i oddychania mitochondrialnego. Protokół ten został opracowany specjalnie dla limfocytów i odnosi się do specjalnych względów związanych z tymi typami komórek, takich jak niska podstawowa aktywność metaboliczna, kruchość, niska częstotliwość i ich niezdolność do przylegania do płytek testowych. Dlatego też, w porównaniu z poprzednio opublikowanymi protokołami11,12, nasza metoda stanowi wygodniejszy i lepiej zoptymalizowany przewodnik dla badaczy pracujących w dziedzinie immunologii. W tym protokole jest kilka krytycznych etapów, w tym uzyskanie czystych i żywotnych populacji komórek, posianie komórek w optymalnym zbiegu i standaryzacja pomiarów strumienia zewnątrzkomórkowego do stężenia białka w każdym dołku.
Początkową liczbę posianych komórek można zarówno uwidocznić za pomocą mikroskopii świetlnej, jak i określić ilościowo za pomocą pomiarów stężenia białka. Liniowa korelacja między liczbą komórek a stężeniem białka potwierdziła, że stężenie białka może być rzeczywiście wykorzystane jako sposób na standaryzację skutków zmian liczby komórek między różnymi dołkami.
Standaryzując wyniki ECAR i OCR do stężeń białek, wykazaliśmy, że pomimo mniejszej konfluencji komórek, w większości testów można użyć zaledwie 2,5 x 10⁵ komórek/studzienkę bez uszczerbku dla jakości danych. Jednak dolna granica komórek, które można wykorzystać, różniła się w zależności od typu komórki i testów. Na przykład, podczas gdy do pomiarów OCR komórek B można było użyć zaledwie 1,25 x 10⁵ komórek, nawet 2,5 x 10⁵ komórek / studzienka nie wystarczyło do oceny wydajności glikolitycznej tego samego typu komórek. Dlatego, o ile liczba komórek nie jest czynnikiem ograniczającym, preferowane jest posiewanie przy ponad 90% zbiegu, co w przybliżeniu odpowiada 5 x 10⁵ limfocytów / studzienkę. Dalsza optymalizacja może być wymagana, gdy wykorzystywane są komórki o różnych rozmiarach, takie jak wcześniej aktywowane i częściowo zróżnicowane limfocyty. Dodatkowo, przy użyciu wcześniej hodowanych limfocytów pierwotnych, mogą wystąpić różnice w żywotności komórek między różnymi warunkami leczenia, co zmniejszyłoby wiarygodność stężenia białka jako miary liczby komórek, ponieważ martwe lub umierające komórki mogą również przyczyniać się do mierzonych poziomów białka. W takich przypadkach pomocne może być sortowanie żywych komórek za pomocą cytometrii przepływowej przed przeprowadzeniem testów strumienia zewnątrzkomórkowego.
W naszych testach z wykorzystaniem świeżo wyizolowanych i wysoce żywotnych populacji limfocytów uzyskaliśmy wiarygodne dane funkcjonalne zarówno dla pomiarów OCR, jak i ECAR. Podczas gdy wszystkie typy komórek zachowywały się podobnie w teście stresu mitochondrialnego, w teście stresu glikolizy zaobserwowano uderzające różnice między typami komórek. Na przykład wydajność glikoliczna naiwnych limfocytów T była niska w porównaniu ze splenocytami lub komórkami B i nie zmieniała się po dodaniu oligomycyny. Obserwacja ta jest zgodna z wcześniej opublikowanymi badaniami7,30, potwierdzającymi ważność naszego protokołu.
Podsumowując, nasza metoda oferuje skuteczny i wygodny sposób testowania aktywności metabolicznej limfocytów za pomocą analizatora strumienia zewnątrzkomórkowego i może być przydatna w szerokim zakresie badań immunologicznych badających zmiany metaboliczne w komórkach odpornościowych po aktywacji, różnicowaniu komórek lub z powodu fenotypów chorobowych, takich jak infekcje, autoimmunizacja i nowotwory hematologiczne.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych. Opłaty za otwarty dostęp do tego artykułu zostały zapewnione przez Agilent Technologies.
Podziękowania
Autorzy dziękują dr Michaelowi N. Sackowi (National Heart, Lung, and Blood Institute) za wsparcie i dyskusję, Pani Ann Kim za optymalizację protokołu izolacji komórek B, dr Josephowi Brzostowskiemu za pomoc w mikroskopii oraz Pani Mirnie Peña za utrzymanie wykorzystywanych zwierząt. Badanie to było wspierane przez Intramural Research Programs National Institutes of Health, National Institute of Allergy and Infectious Diseases oraz National Heart, Lung, and Blood Institute.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PBS (pH 7,2) | Gibco-ThermoFisher | 20012-050 | Aby zrobić bufor MACS |
| Albumina surowicy bydlęcej BSA | Sigma-Aldrich | A3803 | Aby zrobić bufor MACS |
| 0,5 M EDTA, pH 8 | Jakość Biologiczna | 10128-446 | Aby zrobić bufor MACS |
| autoMACS roztwór płuczący | Miltenyi Biotec | 130-091-222 | Zamiast PBS + EDTA do wytworzenia buforu MS. Używany również w autoMACS Pro Separator. |
| RPMI-1640 | Gibco-ThermoFisher | 11875-093 | Zawiera czerwień fenolową i L-glutaminę |
| Płodowa surowica bydlęca | Gibco-ThermoFisher | 10437-028 | W celu inaktywacji termicznej rozmrozić zamrożoną butelkę bulionową w temperaturze 37 &; C kąpieli wodnej, a następnie dezaktywować w temperaturze 56 & stopni; C przez 30 min. Podwielokrotność surowicy inaktywowanej termicznie do przechowywania (np. , w stożkowych probówkach o pojemności 50 ml) i zamrażać w temperaturze -20 °; C, dopóki nie będzie potrzebny. |
| Penicylina-Streptomycyna (ang. Pen) | Gibco-ThermoFisher | 15140-122 | Połącz Pen Strep z L-Glut 1:1 (jeśli robisz 500 ml pożywki, otrzymaj w sumie 12 ml Pen Strep/L-Glut); Utrzymuj podwielokrotności na poziomie -20 ° C, aż będzie gotowy do tworzenia multimediów. |
| L-Glutamina 200 mM (L-Glut) | Gibco-ThermoFisher | 25030-081 | Składnik RF10 i pożywka do testów warunków skrajnych |
| Pirogronian sodu 100 mM | Gibco-ThermoFisher | 11360-070 | Składnik RF10 i pożywka do testów warunków skrajnych |
| HEPES 1 M | Gibco-ThermoFisher | 15630-080 | Składnik RF10 |
| MEM Roztwór aminokwasów endogennych (100x) | Gibco-ThermoFisher | 11140-050 | Składnik RF10 |
| 2-merkaptoetanol (55 mM) | Gibco-ThermoFisher | 21985-023 | Składnik RF10 |
| Falcon 70 μ m Sitko do komórek | Falcon-Fischer Scientific | 87712 | Stosowany w izolacji komórek |
| Monoject 3 ml Strzykawka, końcówka Luer-Lock | Covidien | 8881513934 | Stosowany w izolacji komórek |
| Falcon 15 ml Stożkowe probówki wirówkowe | Falcon-Fischer Scientific | 14-959-53A | Stosowany w izolacji komórek |
| Stożkowe probówki wirówkowe Falcon 50 ml | Falcon-Fischer Scientific | 14-432-22 | Stosowany w izolacji komórek |
| ACK Lysing Buffer | Lonza | 10-548E | Stosowany w izolacji komórek |
| CellTrics 30 μ m filtr komórkowy, sterylny, pakowany pojedynczo | Partec CellTrics | 04-004-2326 | Stosowany w izolacji komórek |
| B Zestaw do izolacji komórek, mysz | Miltenyi Biotec | 130-090-862 | Stosowany w izolacji komórek |
| Naï ve CD4+ Zestaw do izolacji komórek T, mysz | Miltenyi Biotec | 130-104-453 | Stosowany w izolacji komórek |
| LS Kolumna | Miltenyi Biotec | 130-042-401 | Stosowany w izolacji komórek |
| Separator MidiMACS | Miltenyi Biotec | 130-042-302 | Magnes do separacji |
| MACS MultiStand | Miltenyi Biotec | 130-042-303 | Uchwyt na magnesy |
| Roztwór płuczący autoMACS | 130-091-222 | Roztwór płuczący do separatora autoMACS Pro | |
| Zwróć uwagę na stężenie, ponieważ każda partia jest inna (opakowanie to 1 mg). | |||
| Oligomycyna | Sigma-Aldrich | 75351 | |
| 2,4-dinotrofenol (2,4-DNP) | Sigma-Aldrich | D198501 | |
| Antymycyna A | Sigma-Aldrich | A8674 | |
| Rotenon | Sigma-Aldrich | R8875 | |
| Glukoza | Sigma-Aldrich | G8270 | |
| Koktajl inhibitorów proteazy Halt | ThermoFisher Scientific | 78429 | Dostarczany jako 100x koktajl, połącz z RIPA, aby uzyskać 1x roztwór do lizy. |
| RIPA Buffer | Boston BioProducts | BP-115 | |
| Pierce BCA Zestaw do oznaczania białek | ThermoFisher Scientific | 23225 | Postępuj zgodnie z instrukcjami producenta |
| Seahorse XFe96 FluxPak | Seahorse Bioscience | 101085-004 | Zawiera płytki testowe, wkłady, prowadnice ładowania do przenoszenia związków do wkładu testowego oraz roztwór kalibru. |
| Seahorse XF Base Medium Seahorse | Bioscience | 102353-100 | Służy do przygotowania podłoża do testów warunków skrajnych |
| Seahorse XFe96 Zewnątrzkomórkowy analizator strumienia | Seahorse Bioscience | ||
| Stericup Sterylne filtry próżniowe, 0,22 i mu; m | EMD Millipore-Fisher Scientific | SCGPU10RE | Służy do sterylnego medium filtracyjnego. |
| Wodorowęglan sodu | Sigma-Aldrich | 487031 | rozpuszczony do 0,1 M i użyty do rozcieńczenia Cell-Tak. |
Bibliografia
- Motz, G. T., Coukos, G. Deciphering and reversing tumor immune suppression. Immunity. 39 (1), 61-73 (2013).
- Akkaya, M., Barclay, A. N. How do pathogens drive the evolution of paired receptors? Eur J Immunol. 43 (2), 303-313 (2013).
- Smith-Garvin, J. E., Koretzky, G. A., Jordan, M. S. T cell activation. Annu Rev Immunol. 27, 591-619 (2009).
- Dinarello, C. A. Proinflammatory cytokines. Chest. 118 (2), 503-508 (2000).
- Kurosaki, T., Kometani, K., Ise, W. Memory B cells. Nat Rev Immunol. 15 (3), 149-159 (2015).
- Mosser, D. M., Edwards, J. P. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 8 (12), 958-969 (2008).
- Pearce, E. L., Poffenberger, M. C., Chang, C. H., Jones, R. G. Fueling immunity: insights into metabolism and lymphocyte function. Science. 342 (6155), 1242454(2013).
- Gerriets, V. A., Rathmell, J. C. Metabolic pathways in T cell fate and function. Trends Immunol. 33 (4), 168-173 (2012).
- Doughty, C. A., et al. Antigen receptor-mediated changes in glucose metabolism in B lymphocytes: role of phosphatidylinositol 3-kinase signaling in the glycolytic control of growth. Blood. 107 (11), 4458-4465 (2006).
- Caro-Maldonado, A., et al. Metabolic reprogramming is required for antibody production that is suppressed in anergic but exaggerated in chronically BAFF-exposed B cells. J Immunol. 192 (8), 3626-3636 (2014).
- Pelletier, M., Billingham, L. K., Ramaswamy, M., Siegel, R. M. Extracellular flux analysis to monitor glycolytic rates and mitochondrial oxygen consumption. Methods Enzymol. 542, 125-149 (2014).
- Mookerjee, S. A., Brand, M. D. Measurement and Analysis of Extracellular Acid Production to Determine Glycolytic Rate. J Vis Exp. (106), e53464(2015).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Klein, A. B., et al. Impact of different cell isolation techniques on lymphocyte viability and function. J Immunoassay Immunochem. 27 (1), 61-76 (2006).
- Hsueh, R. C., et al. Purification and Characterization of Mouse Splenic B Lymphocytes. AfCS Research Reports. 1 (1), 1-11 (2012).
- Zambrano, K., et al. Prolonged ex vivo expansion and differentiation of naive murine CD43 B splenocytes. Biotechnol Prog. , (2016).
- Costa, G. L., et al. Targeting rare populations of murine antigen-specific T lymphocytes by retroviral transduction for potential application in gene therapy for autoimmune disease. J Immunol. 164 (7), 3581-3590 (2000).
- Franz, B., May, K. F., Dranoff, G., Wucherpfennig, K. Ex vivo characterization and isolation of rare memory B cells with antigen tetramers. Blood. 118 (2), 348-357 (2011).
- Schneider, D. F., Glenn, C. H., Faunce, D. E. Innate lymphocyte subsets and their immunoregulatory roles in burn injury and sepsis. J Burn Care Res. 28 (3), 365-379 (2007).
- Reeves, J. P., Reeves, P. A. Removal of lymphoid organs. Curr Protoc Immunol. Chapter 1, Unit 1 9(2001).
- Akkaya, B., et al. A Simple, Versatile Antibody-Based Barcoding Method for Flow Cytometry. J Immunol. 197 (5), 2027-2038 (2016).
- Traba, J., et al. Fasting and refeeding differentially regulate NLRP3 inflammasome activation in human subjects. J. Clin. Invest. 125 (12), 4592-4600 (2015).
- Wick, A. N., et al. Localization of the Primary Metabolic Block Produced by 2-Deoxyglucose. J. Biol. Chem. 224 (2), 963-969 (1957).
- Linnett, P. E., Beechey, R. B. Inhibitors of the ATP synthetase system. Methods Enzymol. 55, 472-518 (1979).
- Terada, H. Uncouplers of oxidative phosphorylation. Environmental Health Perspectives. 87, 213-218 (1990).
- Mookerjee, S. A., Nicholls, D. G., Brand, M. D. Determining Maximum Glycolytic Capacity Using Extracellular Flux Measurements. PLOS ONE. 11 (3), e0152016(2016).
- Lai, L., Alaverdi, N., Maltais, L., Morse, H. C. 3rd Mouse cell surface antigens: nomenclature and immunophenotyping. J Immunol. 160 (8), 3861-3868 (1998).
- Gerberick, G. F., Cruse, L. W., Miller, C. M., Sikorski, E. E., Ridder, G. M. Selective modulation of T cell memory markers CD62L and CD44 on murine draining lymph node cells following allergen and irritant treatment. Toxicol Appl Pharmacol. 146 (1), 1-10 (1997).
- Mookerjee, S. A., Goncalves, R. L. S., Gerencser, A. A., Nicholls, D. G., Brand, M. D. The contributions of respiration and glycolysis to extracellular acid production. Biochim. Biophys. Acta - Bioenergetics. 1847 (2), 171-181 (2015).
- Buck, M. D., O'Sullivan, D., Pearce, E. L. T cell metabolism drives immunity. J Exp Med. 212 (9), 1345-1360 (2015).
Przedruki i uprawnienia
