Obecny protokół opisuje, jak Western blotting i immunocytochemia w połączeniu z hamowaniem enzymów lizosomalnych mogą być wykorzystane do zademonstrowania regulacji w dół receptora rzęskowego czynnika neurotroficznego α (CNTFRα), który jest przenoszony przez interakcję między cytokinopodobnym czynnikiem-1 (CLF-1) a receptorem endocytarnym sorLA.
Artykuł metodologiczny
SorLA i CLC: zależna od CLF-1 regulacja w dół CNTFRα, jak wykazano za pomocą Western blot, hamowania enzymów lizosomalnych i immunocytochemii
W tym artykule
Podsumowanie
Streszczenie
Cytokina heterodimeryczna Cytokina kardiotrofinopodobna:Czynnik podobny do cytokiny-1 (CLC:CLF-1) celuje w CNTFRα zakotwiczony w glikozylofosfatydyloinozytolu (GPI), tworząc kompleks trimeryczny, który następnie rekrutuje receptor β do sygnalizacji glikoproteiny 130/białaczki (gp130/LIFRβ). Zarówno CLC, jak i CNTFRα są niezbędne do sygnalizacji, ale do tej pory CLF-1 był znany tylko jako przypuszczalny czynnik ułatwiający wydzielanie CLC. Jednak ostatnio wykazano, że CLF-1 zawiera trzy miejsca wiązania: jedno dla CLC; jeden dla CNTFRα (który może sprzyjać składaniu kompleksu trimerycznego); i jeden dla receptora endocytarnego sorLA. To ostatnie miejsce zapewnia wysokie powinowactwo wiązania CLF-1, CLC: CLF-1, a także kompleksu trimerycznego (CLC: CLF-1: CNTFRα) z sorLA, a w komórkach wykazujących ekspresję sorLA rozpuszczalne ligandy CLF-1 i CLC: CLF-1 są szybko pobierane i internalizowane. W komórkach wykazujących współekspresję CNTFRα i sorLA, CNTFRα najpierw wiąże CLC: CLF-1, tworząc kompleks trimeryczny związany z błoną, ale łączy się również z sorLA poprzez wolne miejsce wiązania sorLA w CLF-1. W rezultacie CNTFRα, który sam w sobie nie ma zdolności do endocytozy, jest ciągnięty i internalizowany przez endocytozę CLC:CLF-1 za pośrednictwem sorLA.
Obecny protokół opisuje procedury eksperymentalne używane do demonstracji i) zależnej od sorLA i CLC:CLF-1 regulacji w dół ekspresji CNTFRα na membranie powierzchniowej; ii) endocytoza za pośrednictwem sorLA i lizosomalne celowanie CNTFRα; oraz iii) obniżona odpowiedź komórkowa na stymulację CLC: CLF-1 po regulacji CNTFRα za pośrednictwem sorLA.
Wprowadzenie
CLC i CLF-1 stanowią dwie podjednostki heterodimerycznej cytokiny CLC:CLF-11-3. W celu indukcji sygnału komórkowego, CLC: CLF-1 najpierw celuje w CNTFRα, jego główny i zakotwiczony w GPI receptor, tworząc kompleks trimeryczny związany z błoną. Kompleks CLC: CLF-1: CNTFRα następnie rekrutuje gp130 / LIFRβ, który pośredniczy w sygnalizacji transbłonowej za pośrednictwem szlaku4 kinazy janusowej / przetworników sygnału / aktywatorów transkrypcji 3 (JAK / STAT3). Myszy z niedoborem którejkolwiek z trzech podjednostek wykazują jeden i ten sam fenotyp i umierają w ciągu 24 godzin po urodzeniu z powodu zmniejszonej liczby neuronów twarzy i niewystarczającego ssania5-8. Wyniki badań przeprowadzonych na ludziach również podkreślają funkcjonalną spójność tych trzech podjednostek. Tak więc ludzkie mutacje (homozygota lub związek) powodujące dysfunkcję CLC:CLF-1 lub CNTFRα skutkują tak zwanym zespołem pocenia się wywołanym zimnem / zespołem Crisponiego, stanem charakteryzującym się objawami takimi jak upośledzenie ssania i połykania, różne cechy dysmorficzne, skoki temperatury oraz paradoksalne i perfuzyjne pocenie się w niskich temperaturach9-11.
In vitro, połączenie CLC i CNTFRα jest zarówno konieczne, jak i wystarczające do interakcji z gp130/LIFRβ i indukcji sygnalizacji w komórkach12. Z drugiej strony rola CLF-1 jest mniej jasna. Nie jest bezpośrednio zaangażowany w sygnalizację i od dawna jest uważany za wyrostek robaczkowy, który służy głównie do ułatwiania komórkowego wydzielania CLC1. Jednak ostatnie odkrycia pokazują, że CLF-1 ma dodatkowe i ważniejsze funkcje, które implikują zarówno sygnalizację, jak i obrót CLC i CNTFRα. Wydaje się więc, że CLF-1 zawiera trzy niezależne miejsca wiązania: jedno ze względu na dobrze znane wiązanie z CLC; taki, który pośredniczy w bezpośrednim wiązaniu z CNTFRα; i trzecie (o wysokim powinowactwie) miejsce interakcji z receptorem endocytarnym sorLA. Ponieważ zarówno CLC, jak i CLF-1 wydają się celować w CNTFRα ze znacznie niższym powinowactwem niż kompleks CLC: CLF-1, można sobie wyobrazić, że CLF-1 (poprzez swoje miejsce wiązania CNTFRα) sprzyja unifikacji CLC i CNTFRα, a tym samym ułatwia sygnalizację13.
Interakcja CLF-1 z sorLA, główny problem obecnej prezentacji, odgrywa zupełnie inną rolę. SorLA jest jednym z pięciu receptorów typu 1, które tworzą rodzinę receptorów domeny Vps10p14. Ulega ekspresji w różnych tkankach, ale w szczególności w tkankach mózgu i neuronów15. Podobnie jak inni członkowie rodziny, sorLA przenosi N-końcową domenę Vps10p wiążącą ligand, ale dodatkowo obejmuje również inne typy domen, w tym elementy wiążące ligand znajdujące się w członkach rodziny receptorów lipoprotein o niskiej gęstości15. Jego cytoplazmatyczny ogon oddziałuje z kilkoma białkami adaptorowymi, np. białkiem adaptorowym-1 i -2, a sorLA przenosi wydajną endocytozę, a także wewnątrzkomórkowe sortowanie i transport związanych białek16-18. Domena Vps10p składa się z dużego, dziesięciołopatowego śmigłaβ 19,20, które wiąże szereg niepowiązanych ligandów, w tym CLF-1 (ale nie CLC)13. Miejsce wiązania w CLF-1 jest dostępne nawet po utworzeniu kompleksu z CLC i CNTFRα, co oznacza, że sorLA wiąże nie tylko wolny CLF-1, ale także CLC:CLF-1 i kompleks trimeryczny CLC:CLF-1:CNTFRα13. SorLA przenosi szybką endocytozę CLF-1 i CLC: CLF-1, ale są to białka rozpuszczalne, podczas gdy CNTFRα jest mocowany do błony powierzchniowej za pomocą kotwicy GPI. Pytanie brzmi zatem, czy wiązanie CLC:CLF-1:CNTFRα pozwala sorLA na internalizację całego kompleksu, a tym samym na zmianę ekspresji CNTFRα w błonie powierzchniowej (i późniejszą podatność komórek na indukcję sygnału CLC:CLF-1) i/lub obrót CNTFRα.
Eksperymenty opisane w niniejszym raporcie miały na celu wyjaśnienie następujących kwestii:
Czy sorLA pośredniczy w zależnej od CLC:CLF-1 regulacji w dół błony powierzchniowej CNTFRα? Aby to wyjaśnić, początkowo próbowano określić obrót CNTFRα (pod nieobecność i w obecności sorLA) za pomocą znakowania metabolicznego i eksperymentów z pogonią za impulsem, jak opisano w21. Jednak próby znakowania CNTFRα przy użyciu mieszaniny [S35] cysteiny i [S35] metioniny wykazały słabe włączenie radioaktywności. Sugerowało to bardzo niski stopień nowej syntezy, który według wszelkiego prawdopodobieństwa nie byłby w stanie zrekompensować nagłej i znaczącej utraty receptorów. Aby ustalić, czy CNTFRα był regulowany w dół, gdy był połączony przez CLC:CLF-1 z sorLA, zdecydowano się po prostu zmierzyć (za pomocą Western bloting) całkowitą pulę komórkową CNTFRα przed i po ekspozycji na CLC:CLF-1 - i porównać wyniki w komórkach transfekowanych lub nietransfekowanych sorLA.
Czy sorLA kieruje CNTFRα do lizosomów? Aby odpowiedzieć na to pytanie, lokalizacja CNTFRα - internalizowana poprzez wiązanie za pośrednictwem CLC: CLF-1 z sorLA - zbadano za pomocą immunocytochemii i znakowania przeciwciałami skierowanymi przeciwko CNTFRα i markerowi późnego endosomu / lizosomu białka błonowego 1 związanego z lizosomem (LAMP-1). Eksperyment przeprowadzono na komórkach traktowanych i nieleczonych inhibitorami enzymów lizosomalnych. Pomysł polegał oczywiście na tym, że jeśli CNTFRα zostanie zdegradowany w lizosomach, komórki potraktowane inhibitorami enzymów będą wykazywać barwienie CNTFRα gromadzące się w pęcherzykach dodatnich LAMP-1, podczas gdy komórki nieleczone będą wykazywać niewielkie lub żadne barwienie CNTFRα.
Czy obniżenie CNTFRα obniża odpowiedź komórkową na stymulację CLC:CLF-1? Kompleks trimeryczny składający się z CLC, CLF-1 i CNTFRα wysyła sygnały za pośrednictwem heterodimeru gp130/LIFRβ przy użyciu szlaku JAK/STAT3. W związku z tym zdolność komórek do reagowania na sygnalizację CLC: CLF-1 po regulacji w dół CNTFRα zbadano za pomocą wykrywania Western blot i ilościowego oznaczania poziomu fosfo-STAT3 (pSTAT3) / całkowitego STAT3 w transfektantach sorLA.
Protokół
1. Western Blotting lizatów CNTFRα
- Ekspresja pełnej długości sorLA i znakowanych Myc konstruktów CNTFRα w ludzkich embrionalnych komórkach nerki 293 (HEK293) przy użyciu odpowiednio pcDNA3.1 / zeo(-) i pcDNA3.1 / hyg (-). Transfekcję komórek HEK293 za pomocą konstruktów przy użyciu komercyjnego odczynnika do transfekcji zgodnie z protokołem producenta. Wybrać stabilne klony w pożywce zawierającej 150 μg/ml zeocyny i/lub 500 μg/ml higromycyny B Gold13.
- Zasiewaj równą liczbę transfektantów HEK293 wyrażających CNTFRα-Myc lub współeksprymujących CNTFRα-Myc/sorLA w dwóch 4-dołkowych płytkach, jak pokazano na rysunku 1. Hodować komórki w pożywce Dulbecco Modified Eagle's Medium (DMEM) uzupełnionej 10% płodową surowicą bydlęcą (FBS), 100 U/ml penicyliny i 100 μg/ml streptomycyny (pełna pożywka) w inkubatorze z 5% dwutlenkiem węgla w temperaturze 37 °C.
- Poczekaj, aż komórki zlewają się w 50-80%.
- Usunąć pożywkę ze studzienek, przemyć raz solą fizjologiczną buforowaną fosforanem Dulbecco (DPBS) i dodać świeżą pełną pożywkę z lub bez (kontrola) 10 nM CLC:CLF-1, jak pokazano na rysunku 1. Inkubować komórki w temperaturze 37 °C.
- Po 0 i 5 godzinach inkubacji odzyskać pożywkę i przechowywać ją w temperaturze 4 °C w probówkach o pojemności 1,5 ml. Następnie do każdego dołka dodać 1% bufor do lizy Triton X-100 (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) uzupełniony koktajlem inhibitorów proteinaz (1 min, 4 °C). Następnie przenieść lizaty komórkowe do probówek o pojemności 1,5 ml (4 °C).
- Odwirować probówki zawierające pożywkę i lizat komórkowy (3 000 x g, 3 min, 4 °C) i przenieść supernatanty do probówek o pojemności 1,5 ml (4 °C). Wyrzuć granulkę. Przenieś 5 μl supernatantu lizatu komórkowego do nowych probówek o pojemności 1,5 ml - użyj ich do późniejszego pomiaru zawartości białka (krok 1.7). Natychmiast dodaj nieredukujący bufor próbki LDS do wszystkich supernatantów i wiruj próbki.
- Użyć 5 μl podwielokrotności do pomiaru zawartości białka w supernatantach lizatu komórkowego przy użyciu komercyjnego testu białkowego zgodnie z protokołem producenta.
- Podgrzewać próbki w temperaturze 95 °C przez 5 minut.
- Poddaj równą ilość białka z każdej próbki redukcji SDS-PAGE13 i Western blotting13 i wizualizuj zawartość sorLA, β-aktyny i CNTFRα-Myc w pożywce i lizatach komórkowych za pomocą króliczego anty-sorLA16 (5 μg / ml), mysiej anty-β-aktyny (0,4 μg / ml) i mysich przeciwciał anty-Myc (1 μg / ml) oraz odpowiednich przeciwciał drugorzędowych związanych z HRP (1: 2 000).
- Określić ilościowo pasma za pomocą densytometrii zgodnie z protokołem producenta.
2. Immunocytochemia w połączeniu z inhibitorami lizosomalnymi
- Komórki nasienne HEK293 stabilnie transfekowane CNTFRα-Myc/sorLA na szkiełkach przykrywkowych w płytce 4-dołkowej, jak pokazano na rysunku 2. Hoduj komórki w pełnym pożywce, jak powyżej.
- Poczekaj, aż konfluencja komórek wyniesie 20 - 40%.
- Usunąć pożywkę z dołków i dodać do komórek pełną pożywkę z lub bez 50 μg/ml leupeptyny i pepstatyny A (leu/pep) (hamuje hydrolazy lizosomalne) do komórek, jak pokazano na rysunku 2. Inkubować komórki w temperaturze 37 °C. Pożywkę należy wymieniać co 6 godzin w ciągu następnych 24 godzin inkubacji.
- Po 24 godzinach inkubacji ponownie zastąp pożywkę (z lub bez leu/pep) i tym razem dodaj 10 nM CLC:CLF-1. Inkubować komórki w temperaturze 37 °C przez 5 godzin.
- Umyj komórki raz w PBS i utrwal je w 4% paraformaldehydzie, pH 7 przez 15 minut w temperaturze RT.
Uwaga: Paraformaldehyd jest wysoce toksyczny, należy unikać kontaktu ze skórą, oczami i śluzem. Wewnątrz dygestorium należy nosić rękawice i okulary ochronne, a roztwory należy sporządzać. - Umyj komórki raz w PBS i przepuszczaj komórki przez 5 minut w temperaturze pokojowej w saponinie rozcieńczonej w PBS (0,5% saponiny).
- Rozcieńczyć kozie przeciwciała anty-CNTFRα (1 μg / ml) (w szczególności nie mysie przeciwciała anty-Myc stosowane w Western blot) i mysie przeciwciała anty-LAMP-1 (15 μg / ml) w 0,5% saponinie i inkubować komórki z przeciwciałami przez 2 godziny w temperaturze pokojowej.
- Umyj komórki 4x (5 min) w 0,5% saponinie i inkubuj komórki z przeciwciałami drugorzędowymi sprzężonymi z kozłem Alexa 488 i osłem przeciwko myszy Alexa 568 (6 μg / ml) przez 2 godziny w temperaturze pokojowej.
- Umyj komórki 4x (5 min) w 0,5% saponinie, dwukrotnie w wodzie dejonizowanej (1 min) i zamontuj szkiełka nakrywkowe na szkiełkach mikroskopowych za pomocą mediów montażowych.
- Przeanalizuj barwienie komórek przeciwciałami za pomocą mikroskopii konfokalnej przy użyciu laserowego skaningowego mikroskopu konfokalnego z obiektywem 63X C-apochromatycznym zanurzonym w wodzie, NA 1.2.
3. Western Blot - wykrywanie poziomu pSTAT3
- Nasiona komórek HEK293-sorLA (które wyrażają endogenne poziomy CNTFRα) w 4-dołkowej płytce, jak pokazano na rysunku 3. Hoduj komórki w pełnym pożywce, jak powyżej.
- Poczekaj, aż komórki zlewają się w 50-80%.
- Usunąć pożywkę z dołków, przemyć raz w PBS i dodać świeżą pełną pożywkę z lub bez 10 nM CLC:CLF-1 do komórek, jak pokazano na rysunku 3. Inkubować komórki w temperaturze 37 °C przez 5 godzin.
- Usunąć pożywkę, przemyć komórki dwukrotnie w nieuzupełnionym DMEM (pożywka ślepa; bez FBS i antybiotyków), a następnie ponownie inkubować komórki przez 90 minut (37 °C) w pożywce ślepej.
- Ponownie usuń pożywkę i dodaj świeżą ślepą pożywkę z lub bez 5 nM CLC:CLF-1 (w celu zainicjowania fosforylacji STAT3), jak pokazano na rysunku 3. Inkubować przez 15 minut w temperaturze 37 °C.
- Szybko usuń pożywkę i poddaj komórki lizie (1 min, 4 °C), dodając 1% buforu do lizy Triton X-100 (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) uzupełnionego koktajlem inhibitorów proteinaz i koktajlem inhibitorów fosfatazy do każdego dołka. Następnie przenieść lizaty komórkowe do probówek o pojemności 1,5 ml (4 °C).
- Przenieś 5 μl każdego supernatantu do nowych probówek o pojemności 1,5 ml - użyj ich do późniejszego zmierzenia zawartości białka (krok 3.8). Natychmiast dodaj nieredukujący bufor próbki LDS do wszystkich supernatantów i wiruj próbki.
- Zmierzyć zawartość białka w podwielokrotnościach 5 μl za pomocą komercyjnego testu białkowego zgodnie z protokołem producenta.
- Każdą próbkę należy poddać sonifikacji w temperaturze pokojowej do momentu, gdy przestanie być lepka (około 1 min), a następnie podgrzewać ją w temperaturze 95 °C przez 5 minut.
- Poddaj równą ilość białka z każdej próbki SDS-PAGE13 i Western blotting13 i zwizualizuj zawartość pSTAT3 i całkowitego STAT3 w lizatach komórkowych za pomocą króliczych przeciwciał anty-pSTAT3 (1:2000) i mysich anty-STAT3 (1:1,000) oraz odpowiednich przeciwciał drugorzędowych myszy i królika związanych z HRP (1:2,000).
- Określić ilościowo pasma za pomocą densytometrii zgodnie z protokołem producenta.
Wyniki
Rysunek 1 przedstawia schematyczny przebieg siania komórek i inkubacji z CLC:CLF-1 w protokole 1. Rysunek 2 przedstawia schematyczny przebieg siania komórek oraz inkubacji z leu/pep i CLC:CLF-1 w protokole 2. Rysunek 3 przedstawia schematyczny przebieg siania komórek, inkubacji z CLC:CLF-1 oraz stymulacji w protokole 3. Rysunek 4 przedstawia zależną od CLC:CLF-1 i pośredniczoną przez sorLA redukcję ekspresji CNTFRα. Rysunek 5 przedstawia pośredniczoną przez sorLA endocytozę i kierowanie CNTFRα do lizosomów. Rysunek 6 przedstawia obniżoną odpowiedź na stymulację CLC:CLF-1 po redukcji ekspresji CNTFRα.
Należy zauważyć, że prążki oznaczające CNTFRα-Myc mają podobną gęstość w czasie zero, podczas gdy obniżenie poziomu CNTFRα-Myc jest widoczne poprzez słabszy prążek w transfektantach sorLA po 5 h (Rysunek 4). Rysunek 5 pokazuje, że CNTFRα-Myc nagromadził się w pęcherzykach pozytywnych pod kątem LAMP-1 w komórkach traktowanych leu/pep. W przeciwieństwie do tego, w komórkach niepoddanych działaniu leu/pep nie obserwuje się akumulacji CNTFRα-Myc. Dowodzi to, że CNTFRα-Myc jest sortowany do lizosomów i ulega degradacji. Jak widać na Rysunku 6, poziom pSTAT3 jest znacząco obniżony w komórkach wstępnie stymulowanych w porównaniu z poziomem w komórkach, które nie były eksponowane na CLC:CLF-1. Jest to zgodne z obserwowanym zależnym od sorLA obniżeniem poziomu CNTFRα w komórkach wstępnie stymulowanych (Rysunek 4).
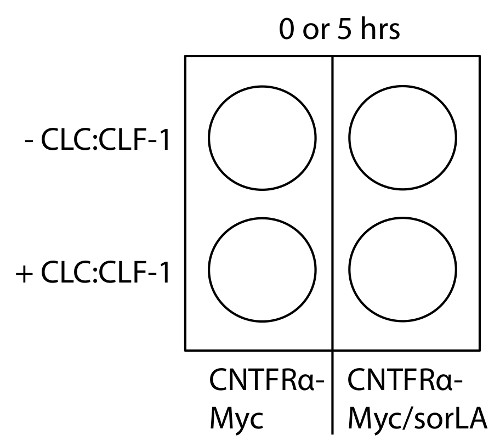
Rycina 1: Schematyczne przedstawienie wysiewania komórek i inkubacji z CLC:CLF-1 w protokole 1. Wysiej komórki HEK293-CNTFRα-Myc oraz HEK293-CNTFRα-Myc/sorLA w dwóch płytkach 4-dołkowych (0 i 5 h) i inkubuj komórki z CLC:CLF-1 zgodnie z opisem. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
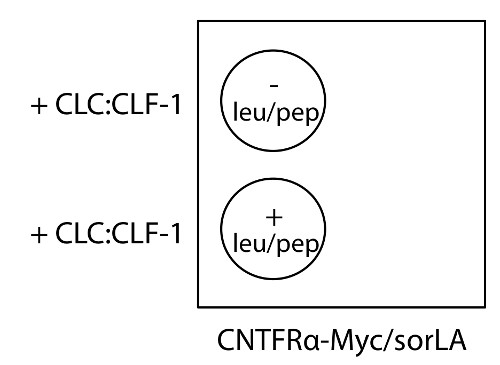
Rysunek 2: Schematyczne przedstawienie wysiewania komórek oraz inkubacji z leu/pep i CLC:CLF-1 w protokole 2. Wysieć komórki HEK293-CNTFRα-Myc/sorLA na szkiełkach nakrywkowych w płytce 4-dołkowej i inkubować komórki z leu/pep oraz CLC:CLF-1 lub bez nich, zgodnie ze wskazówkami. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
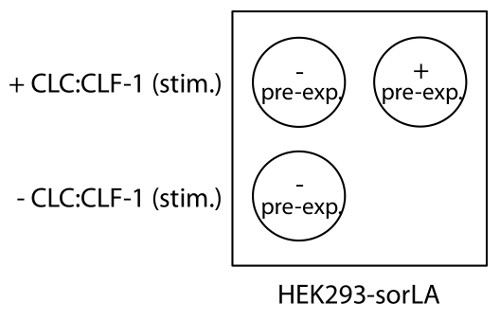
Rysunek 3: Schematyczne przedstawienie wysiewania komórek oraz inkubacji i stymulacji CLC:CLF w protokole 3. Wysiej komórki HEK293-sorLA na jedną płytkę 4-dołkową i inkubuj komórki z CLC:CLF-1 lub bez niego (pre-exp.), aby obniżyć ekspresję CNTFRα, a następnie przeprowadź stymulację CLC:CLF-1 (stim.), aby zainicjować fosforylację STAT3, zgodnie z oznaczeniami. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
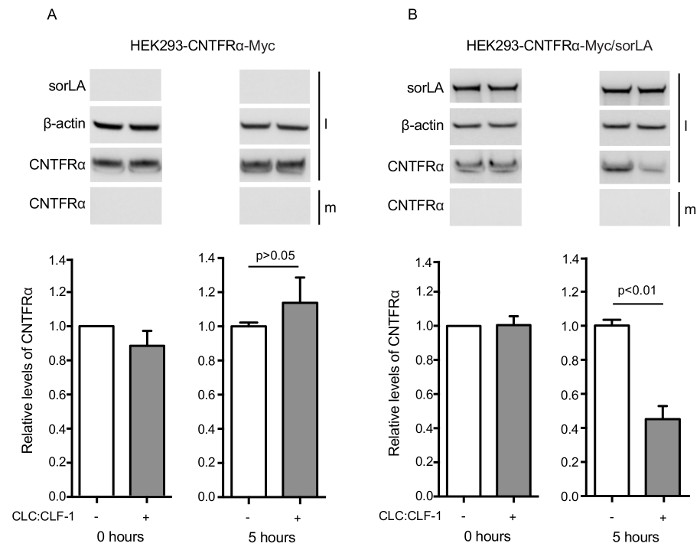
Rycina 4: Wyniki wykazujące, że SorLA pośredniczy w zależnej od CLC:CLF-1 regulacji w dół ekspresji CNTFRα. (A) komórki HEK293-CNTFRα-Myc oraz (B) komórki HEK293-CNTFRα-Myc/sorLA inkubowano w obecności (szare słupki) lub w nieobecności (białe słupki) 10 nM CLC:CLF-1. Po 0 i 5 h przerwano inkubację, a zawartość CNTFRα-Myc w medium (m) i w lizatach komórkowych (l) wykryto metodą Western blot i określono ilościowo za pomocą densytometrii. Górne panele przedstawiają wyniki Western blot z reprezentatywnych eksperymentów, a dolne panele pokazują wykryte poziomy CNTFRα-Myc w lizatach komórkowych. Poziomy przedstawiono w stosunku do poziomu CNTFRα-Myc w transfektantach pojedynczych i podwójnych w czasie 0 h. Każdy słupek reprezentuje średnią ±SEM (n = 3). Wartości p obliczono za pomocą testu t. Powielono na podstawie oryginalnej ryciny13. Kliknij tutaj, aby wyświetlić rycinię w większym rozmiarze.
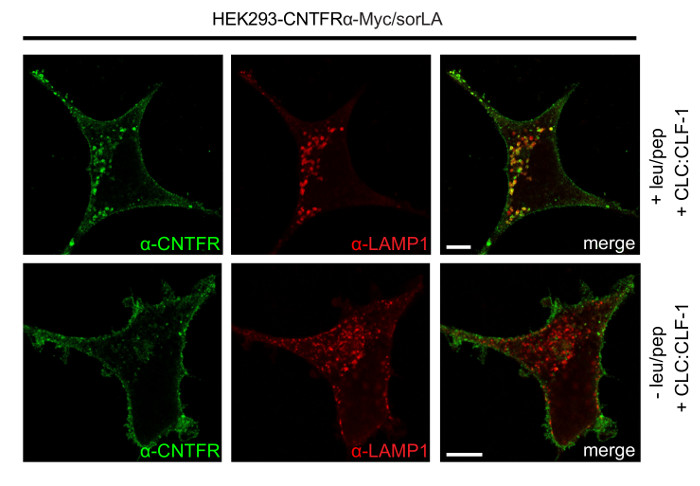
Rycina 5: Wyniki wykazujące, że SorLA pośredniczy w endocytozie i kierowaniu CNTFRα do lizosomów. Komórki HEK293-CNTFRα-Myc/sorLA poddano działaniu leu/pep lub nie, inkubowano z 10 nM CLC:CLF-1 przez 5 h, utrwalono, a następnie barwiono przeciwciałami anty-CNTFRα i anty-LAMP-1 zgodnie z opisem w protokole 2. Paski skali: 5 μm. Reprodukowano na podstawie oryginalnej ryciny13. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
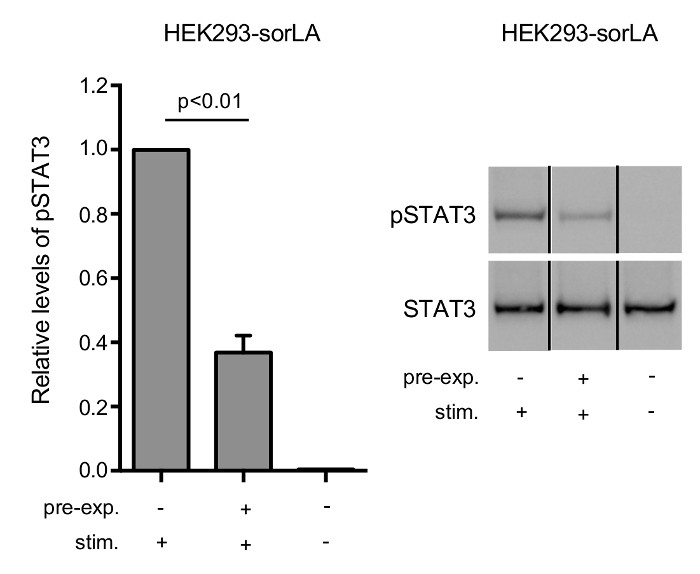
Rysunek 6: SorLA-zależna regulacja w dół CNTFRα wiąże się z obniżoną odpowiedzią komórkową na stymulację CLC:CLF-1.
Komórki HEK293-sorLA inkubowano wstępnie w obecności lub przy braku 10 nM CLC:CLF-1 przez 5 h (pre-exp.), głodzono w pustym medium przez 90 min, a następnie stymulowano 5 nM CLC:CLF-1 przez 15 min (stim.). (lewo) Słupki przedstawiają względne poziomy pSTAT3 w komórkach. Każdy słupek reprezentuje średnią ±SEM (n = 3) w stosunku do poziomu pSTAT3 w komórkach inkubowanych wstępnie bez CLC:CLF-1, lecz stymulowanych za pomocą CLC:CLF-1. Wartość p obliczona za pomocą testu t. (prawo) Analiza Western blot przedstawia odpowiedź pSTAT3 i STAT3 uzyskaną w reprezentatywnym eksperymencie. Powtórzone na podstawie oryginalnego rysunku13. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Opisany tutaj protokół może być wykorzystany w szczególności do zademonstrowania zależnej od CLC:CLF-1 regulacji w dół i lizosomalnej celowania CNTFRα za pośrednictwem sorLA, a także towarzyszącej jej osłabionej odpowiedzi na stymulację CLC: CLF-1.
Linia komórkowa HEK293 dobrze nadaje się do tego protokołu, ponieważ mają tylko niewielką endogenną ekspresję CNTFRα i sorLA, są łatwe do transfekcji, wyrażają gp130 / LIFRβ i mają duże ciało komórkowe, które nadaje się do immunocytochemii. Jednak teoretycznie każda linia komórkowa o podobnych właściwościach również powinna działać.
Protokół składa się z dwóch krytycznych etapów. Pierwszy z nich dotyczy etapu 2.3, w którym podłoże LEU/PEP należy wymieniać mniej więcej co 6 godzin przez 24 godziny. Niezastosowanie się do tego może skutkować aktywnymi enzymami lizosomalnymi i mniejszą lub żadną wykrywalną akumulacją białka w lizosomach. Drugi krytyczny etap (ppkt 3.4) dotyczy mycia po wstępnej inkubacji za pomocą CLC:CLF-1. Ważne jest, aby usunąć wszelkie niezwiązane ligandy i dać komórkom czas na regenerację (unikając dalszej stymulacji) w niesuplementowanym DMEM (ślepa pożywka). Zapewni to niski poziom tła pSTAT3 podczas późniejszej ponownej stymulacji CLC:CLF-1 (krok 3.5).
Warto zauważyć, że rysunek 6 pokazuje, że odpowiedź komórkowa (pSTAT3) zmniejsza się równolegle z regulacją CNTFRα za pośrednictwem sorLA. Należy jednak podkreślić, że chociaż zmniejszona odpowiedź jest zgodna z (i należy się tego spodziewać po zmniejszeniu puli CNTFRα), nie dowodzi to, że sama niska ekspresja CNTFRα odpowiada za zmniejszoną odpowiedź komórkową. Zatem zmiany – wynikające ze wstępnej stymulacji lub transfekcji – w którymkolwiek z funkcjonalnych elementów szlaku sygnałowego poprzedzającego pSTAT3 mogły przyczynić się do zmienionej odpowiedzi.
Podstawowa koncepcja protokołu nie ogranicza się do tego konkretnego systemu receptorowego. Modyfikując protokół (tj. inną linię komórkową, inne przeciwciała, inne ligandy itp.), można go wykorzystać do określenia indukowanej przez ligand regulacji w dół również innych receptorów - niezależnie od udziału sorLA. Należy jednak zauważyć, że analiza regulacji w dół receptorów przez Western blotting jest odpowiednia głównie dla receptorów, np. receptorów zakotwiczonych w GPI, które wykazują powolny obrót i niski stopień nowej syntezy w komórkach niestymulowanych. Tak więc w receptorach wykazujących wysoki poziom nowej syntezy, indukowana przez ligand regulacja w dół może być kompensowana przez syntezę nowych receptorów. W tych okolicznościach regulacja w dół puli receptorów może być zamiast tego określona za pomocą znakowania metabolicznego i eksperymentów z pogonią za impulsem, jak opisano w21. Alternatywnie, przeciwciała jodowe (najlepiej fragmenty Fc), które nie zakłócają wiązania receptora, mogą być użyte do "znakowania" ektodomeny receptora, a oczekiwana regulacja w dół może być następnie określona przez radioaktywne zliczanie osadu komórkowego i pożywki.
Ze względów logistycznych transfekowaliśmy nasze komórki konstruktem CNTFRα przenoszącym znacznik Myc, a w niniejszym protokole użyto mysiego przeciwciała anty-Myc do wykrywania receptora Western blot. W przeciwieństwie do tego, kozie przeciwciało anty-CNTFRα zostało użyte do immunocytochemii i podwójnego znakowania, gdy LAMP-1 został wykryty przez przeciwciało myszy - i oczywiście użycie dwóch pierwotnych przeciwciał mysich skutkowałoby niespecyficznym (nakładającym się) barwieniem przeciwciałami drugorzędowymi. Należy zauważyć, że ponieważ kozia anty-CNTFRα działa również w Western blotting (nie pokazano), protokół można łatwo zmodyfikować i zastosować do komórek transfekowanych nieoznakowanym CNTFRα.
Wreszcie, niedawno wykazano, że również receptor endocytarny sortylina wiąże CLC:CLF-1 z wysokim powinowactwem22. W związku z tym można sobie wyobrazić, że sortylina, podobnie jak sorLA, łączy się z CLC: CNTFRα za pośrednictwem CLF-1 i jest w stanie pośredniczyć w endocytozie i lizosomalnym celowaniu CNTFRα. Używając sortilin zamiast sorLA, niniejszy protokół może być wykorzystany do wyjaśnienia tej kwestii.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy nie mają żadnych podziękowań.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Hygromycyna B Gold | InvivoGen | ant-hg-1 | |
| FuGENE 6 Odczynnik do transfekcji | Roche | 11 815 091 001 | |
| Płytki 4-dołkowe (Nunclon Delta Surface) | Thermo Scientific | 176740 | |
| Probówki Safe-Lock | Eppendorf | 0030 120.086 | |
| Dulbecco Modified Eagle´ s Medium (DMEM) | Lonza | BE12-604F/U1 | |
| Płodowa surowica bydlęca (FBS) | Thermo Scientific | 10270106 | |
| Penicylina/Streptomycyna | Thermo Scientific | 15140122 | |
| Sól fizjologiczna buforowana fosforanem Dulbecco (DPBS) | HyClone | SH30028.02 | |
| CLC:CLF-1 | R& D Systems | 1151-CL/CF | |
| Mysz anty-LAMP-1 | DSHP | H4A3 | |
| Królik anty-sorLA | Reference 16 | ||
| Mysz anty-b-aktyna | Sigma | A2228 | |
| Mysz anty-Myc | Genscript | A00704 | |
| Koza anty-CNTFRa | R& D Systems | AF-303 | |
| Królik anty-pSTAT3 | Technologia sygnalizacji komórkowej | 9145s | |
| Anty-STAT3 Myszy | Technologia sygnalizacji komórkowej | 9139s Przeciwciało | |
| sprzężone z HRP przeciwko myszom | Technologia sygnalizacji komórkowej | 7076s Przeciwciało | |
| sprzężone z HRP przeciwko królikowi | Technologia sygnalizacji komórkowej | 7074s Przeciwciało | |
| sprzężone z HRP przeciwko kozie | Dako | P0160 | |
| Przeciwciało wtórne przeciwko kozom osła, koniugat Alexa Fluor 488 | Invitrogen | A11055 | |
| Przeciwciało wtórne przeciwko myszom osła, koniugat Alexa Fluor 568 | Invitrogen | A10037 | |
| Leupeptin | Sigma | L8511-5MG | |
| Pepstatyna A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1 082 191 000 | |
| EDTA: Titriplex III | Merck | 1 084 180 250 | |
| cComplete mini Roche | 11836170001 | ||
| PhosSTOP | Roche | 04 906 837 001 | |
| Bufor do próbek LDS (4x) | Novex | NP0007 | |
| Test białka Bio-Rad | Bio-Rad | 500-0006 | |
| 4% paraformaldehyd (PFA) | VWR | 97,135,000 | |
| Saponin | Sigma S7900-100G | ||
| Media montażowe | Dako | S3023 |
Bibliografia
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
Przedruki i uprawnienia
