Termoforeza w mikroskali (MST) to czuła technologia do charakteryzowania interakcji aptamer-cel. Niniejszy manuskrypt opisuje protokół MST do charakteryzowania oddziaływań aptamer-małe cząsteczki.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Mapowanie miejsca wiązania aptameru na ATP za pomocą termoforezy w mikroskali
W tym artykule
Podsumowanie
Streszczenie
Charakterystyka oddziaływań molekularnych pod względem podstawowych parametrów wiązania, takich jak powinowactwo wiązania, stechiometria i termodynamika, jest niezbędnym krokiem w naukach podstawowych i stosowanych. Termoforeza w mikroskali (MST) jest czułą metodą biofizyczną pozwalającą uzyskać te ważne informacje. Opierając się na efekcie fizycznym zwanym termoforezą, który opisuje ruch cząsteczek przez gradienty temperatury, technologia ta pozwala na szybkie i precyzyjne określenie parametrów wiązania w roztworze i pozwala na swobodny wybór warunków buforowych (od buforu do lizatów/surowic). MST wykorzystuje fakt, że niezwiązana cząsteczka wykazuje inny ruch termoforetyczny niż cząsteczka, która jest w kompleksie z partnerem wiążącym. Ruch termoforetyczny ulega zmianie w momencie interakcji molekularnej z powodu zmian rozmiaru, ładunku i powłoki hydratulacyjnej. Porównując profile ruchu różnych stosunków molekularnych dwóch partnerów wiążących, można określić informacje ilościowe, takie jak powinowactwo wiązania (pM do mM). Nawet trudne interakcje między cząsteczkami o małych rozmiarach, takimi jak aptamery i małe związki, mogą być badane przez MST. Korzystając z dobrze zbadanej interakcji modelowej między aptamerem DNA DH25.42 a ATP, manuskrypt ten dostarcza protokół do scharakteryzowania interakcji aptamer-mała cząsteczka. Badanie to pokazuje, że MST jest bardzo czuły i pozwala na mapowanie miejsca wiązania aptameru DNA o masie 7,9 kDa z adeniną ATP.
Wprowadzenie
Oddziaływania między cząsteczkami stanowią podstawę natury. Dlatego naukowcy w wielu dziedzinach badań podstawowych i stosowanych starają się zrozumieć fundamentalne zasady różnego rodzaju oddziaływań molekularnych. Mikrotermeforeza (MST) umożliwia naukowcom szybką, precyzyjną i kosztowo efektywną charakterystykę oddziaływań molekularnych w roztworze przy zachowaniu kontroli jakości i swobodnym wyborze buforów. Istnieje już ponad 100 publikacji z samego 2016 roku wykorzystujących MST, opisujących różne rodzaje analiz, w tym przesiewanie bibliotek, walidację zdarzeń wiązania, testy konkurencji oraz eksperymenty z wieloma partnerami wiązania1-8. W ogóle MST pozwala na badanie klasycznych parametrów wiązania, takich jak powinowactwo (od pM do mM), stechiometria i termodynamika każdego rodzaju oddziaływania molekularnego. Ogromną zaletą MST jest możliwość badania zdarzeń wiązania niezależnie od wielkości partnerów oddziaływania. Można ilościowo określić nawet trudne oddziaływania między małymi aptamerami kwasów nukleinowych (15-30 nt) a celami takimi jak małe cząsteczki, leki, antybiotyki lub metabolity.
Obecne, najnowocześniejsze technologie służące do charakteryzacji oddziaływań aptamer-cel są albo pracochłonne i wysoce złożone, albo nie pozwalają na ilościowe określenie oddziaływań między aptamerami a małymi cząsteczkami9,10. Testy oparte na powierzchniowym rezonansie plazmonowym (SPR)1,12 oraz całkowicie bezznacznikowe podejścia kalorymetryczne, takie jak izotermiczna kalorymetria miareczkowa (ITC)13-15, elucja izokratyczna16, filtracja równowagowa17,18, badanie in-line (in-line probing)19, testy przesunięcia elektroforetycznego (gel-shift), fluorescencyjna spektroskopia z zatrzymanym przepływem (stopped-flow)20,21, anizotropia fluorescencji (FA)2,23, obrazowanie fluorescencyjne pojedynczych cząsteczek24,25 oraz interferometria warstw biologicznych (BLI)26 są również albo niedokładne, albo niekompatybilne z oddziaływaniami aptamer-mała cząsteczka. Innymi głównymi problemami tych metod są niska czułość, wysokie zużycie próbek, konieczność immobilizacji, ograniczenia transportu masy na powierzchniach i/lub restrykcje dotyczące buforów. Tylko nieliczne z tych technologii zapewniają zintegrowane kontrole efektów agregacji i adsorpcji.
MST stanowi potężne narzędzie pozwalające naukowcom przełamać to ograniczenie w celu badania oddziaływań między aptamerami a małymi cząsteczkami27-29, a także innymi celami, takimi jak białka30-3. Technologia ta opiera się na ruchu cząsteczek w gradientach temperatury. Ten ukierunkowany ruch, zwany „termoforezą”, zależy od rozmiaru, ładunku i otoczki hydratacyjnej cząsteczki34,35. Wiązanie ligandu z cząsteczką bezpośrednio zmienia przynajmniej jeden z tych parametrów, co skutkuje zmianą mobilności termoforetycznej. Ligandy o niewielkich rozmiarach mogą nie wpływać znacząco na zmianę wielkości przejścia ze stanu wolnego w związany, ale mogą wywierać dramatyczny wpływ na otoczkę hydratacyjną i/lub ładunek. Zmiany w ruchu termoforetycznym cząsteczek po oddziaływaniach z partnerem wiążącym umożliwiają ilościowe określenie podstawowych parametrów wiązania2,7,34,36,37.
Jak przedstawiono w Rycina 1Aurządzenie MST składa się z laseru podczerwonego skupionego na próbce wewnątrz szklanych kapilar, przy zastosowaniu tej samej optyki, co w przypadku detekcji fluorescencji. Ruch termoforetyczny białek monitorowany jest za pomocą wewnętrznej fluorescencji tryptofanów6 lub fluorescencyjnie znakowanego partnera interakcji3,8 można monitorować, podczas gdy laser wytwarza gradient temperatury (ΔT rzędu 2-6 °C). Wynikowa różnica temperatur w przestrzeni, ΔT, prowadzi do ubytku lub akumulacji cząsteczek w obszarze podwyższonej temperatury, co można określić za pomocą współczynnika Soreta (ST):
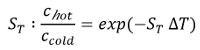
chot oznacza stężenie w obszarze podgrzanym, a ccold to stężenie w początkowym obszarze zimnym.
Jak pokazano na Rysunku 1B, typowy eksperyment MST skutkuje profilem ruchu MST (śladem czasowym), składającym się z różnych faz, które można rozdzielić według ich odpowiednich skal czasowych. Początkowa fluorescencja jest mierzona w ciągu pierwszych 5 s przy braku gradientu temperatury, aby określić dokładną fluorescencję początkową oraz sprawdzić występowanie fotoblaknięcia lub foto-wzmocnienia. Skok temperatury (T-Jump) reprezentuje fazę, w której fluorescencja zmienia się przed wystąpieniem ruchu termoforetycznego. Ten początkowy spadek fluorescencji zależy od zmian wydajności kwantowej fluoroforu zależnych od ciepła. Następnie następuje faza termoforezy, w której fluorescencja spada (lub rośnie) z powodu termoforetycznego ruchu cząsteczek, aż do osiągnięcia stanu stacjonarnego. Odwrócony T-Jump i towarzysząca mu dyfuzja powrotna cząsteczek fluorescencyjnych są widoczne, jak wskazano na Rysunku 1B, po wyłączeniu lasera. W celu wyznaczenia podstawowych parametrów wiązania analizuje się i porównuje różne stosunki molowe partnerów interakcji. Zazwyczaj w jednym eksperymencie MST bada się 16 różnych stosunków, podczas gdy stężenie optycznie widocznej cząsteczki pozostaje stałe, a dodawana jest rosnąca ilość nieznakowanego ligandu. Interakcja między dwoma partnerami wiązania indukuje zmiany w termoforezie, a tym samym w znormalizowanej fluorescencji, Fnorm, która jest obliczana w następujący sposób:

Fhot i Fcold reprezentują średnie intensywności fluorescencji w określonych punktach czasowych śladów MST. Powinowactwa wiązania (wartości Kd lub EC50) można obliczyć poprzez dopasowanie krzywej (Rysunek 1C).
Ogólnie rzecz biorąc, MST jest potężnym narzędziem do badania wszelkich rodzajów oddziaływań molekularnych. Niniejszy artykuł przedstawia protokół charakteryzacji trudnej do zbadania interakcji pomiędzy małą cząsteczką adenozynotryfosforanu (ATP; 0,5 kDa) a krótkim 25-nt aptamerem ssDNA DH25.42 (7,9 kDa). W treści artykułu miejsce wiązania aptameru w cząsteczce ATP zostaje precyzyjnie zlokalizowane na poziomie grupy adeninowej ATP.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie zapasu roboczego aptameru
- Postępuj zgodnie z instrukcjami producenta i rozpuść oligonukleotyd (5-Cy5-CCTG GGGGAGTATTGCGGAGGAAGG-3, sekwencja z pozycjireferencyjnej 18) w wodzie, osiągając końcowe stężenie 100 μM.
- Przygotować roztwór roboczy aptameru, rozcieńczając podstawowy oligonukleotyd do 200 nM z buforem wiążącym (20 mM Tris, pH 7,6; 300 mM NaCl; 5 mM MgCl2; 0,01% Tween20).
- Inkubować mieszaninę przez 2 minuty w temperaturze 90 °C, pozostawić próbkę do natychmiastowego ostygnięcia na lodzie i użyć próbki w temperaturze pokojowej.
2. Przygotowanie serii rozcieńczeń ligandów
- Dla każdego liganda (trifosforan adenozyny (ATP), difosforan adenozyny (ADP), monofosforan adenozyny (AMP), adenina, trifosforan guanozyny (GTP), trifosforan cytozyny (CTP), trifosforan deoksyadenozyny (dATP) i S-adenozylometionina (SAM); 10 mM każdy z nich) należy przygotować 16-stopniowe seryjne rozcieńczanie w 200 μl mikroprobówek reakcyjnych.
UWAGA: Wirowanie zapasów ligandów przez 5 minut przy 14 000 x g może pomóc w usunięciu agregatów. Zaleca się stosowanie probówek reakcyjnych o małej objętości i niskim poziomie wiązania, aby uniknąć adsorpcji cząsteczek do ścianek probówki. - Zacznij od maksymalnego stężenia co najmniej 50 razy wyższego niż szacowane powinowactwo i zmniejsz stężenie liganda o 50% na każdym etapie rozcieńczania.
UWAGA: Narzędzie do wyszukiwania stężeń zaimplementowane w oprogramowaniu sterującym symuluje wiążące dane i pomaga w znalezieniu odpowiedniego zakresu stężeń dla serii rozcieńczeń. - Napełnij 20 μl zapasu liganda (10 mM) w probówce 1. Dodać 10 μl buforu wiążącego aptamery do mikroprobówek reakcyjnych od 2 do 16.
- Przenieść 10 μl probówki 1 do probówki 2 i dokładnie wymieszać, kilkakrotnie pipetując w górę i w dół. Przenieść 10 μl do następnej probówki i powtórzyć to rozcieńczenie dla pozostałych probówek.
- Wyrzucić nadmiar 10 μl z ostatniej probówki. Należy unikać efektów rozcieńczania buforu. Bufor w probówce 1 i w probówkach 2-16 musi być identyczny.
3. Przygotowanie końcowej mieszanki reakcyjnej
- Przygotować poszczególne reakcje wiązania z objętością 20 μl (10 μl roztworu roboczego aptameru + 10 μl odpowiedniego rozcieńczenia liganda) w celu zminimalizowania błędów pipetowania. Do wypełnienia kapilary wystarczy objętość zaledwie 4 μl.
- Dodać 10 μl roztworu roboczego aptameru o sile 200 nM do 10 μl każdego rozcieńczenia ligandu i odpowiednio wymieszać, kilkakrotnie pipetując w górę i w dół.
- Inkubować próbki przez 5 minut w temperaturze pokojowej i napełniać próbki standardowymi kapilarnami, zanurzając naczynia włosowate w próbce. W przypadku niektórych interakcji może być konieczne wydłużenie czasu inkubacji; Jednak 5 minut jest wystarczające dla większości. Dotykaj naczyń włosowatych tylko po bokach, NIE po środkowej części, gdzie zostanie wykonany pomiar optyczny.
- Umieść kapilary na tacce kapilarnej i uruchom urządzenie MST.
4. Uruchamianie urządzenia MST
UWAGA: Urządzenie dostarcza dwa preinstalowane pakiety oprogramowania, oprogramowanie ''kontrolne' do technicznego przygotowania warunków eksperymentalnych oraz oprogramowanie ''analysis' do interpretacji uzyskanych danych.
- Przed umieszczeniem tacki kapilarnej w urządzeniu MST uruchom oprogramowanie sterujące i dostosuj żądaną temperaturę, wybierając opcję "włącz ręczną kontrolę temperatury" w menu rozwijanym "kontrola temperatury". W ten sposób ustaw temperaturę na 25 °C.
UWAGA: Przyrządy MST mogą być kontrolowane w zakresie od 22 do 45 °C. - Poczekaj, aż temperatura osiągnie oczekiwany poziom, a następnie umieść tackę kapilarną w urządzeniu MST.
- Ustaw kanał LED na "czerwony" dla barwników Cy5 i dostosuj moc diody LED, aby uzyskać sygnał fluorescencji od 300 do 1,000 jednostek fluorescencji w urządzeniu MST ze standardowym czujnikiem. W tym badaniu wykorzystywana jest moc 25% LED.
UWAGA: Dla MST z czujnikiem o wysokiej czułości zalecanych jest od 6 000 do 18 000 jednostek fluorescencyjnych.
5. Skanowanie kapilarne
- Przeprowadź skanowanie kapilarne, aby sprawdzić różne aspekty jakości próbki, wybierając pozycję kapilary w oprogramowaniu "kontrolnym" i klikając "rozpocznij skanowanie nasadki" przed rozpoczęciem pomiaru MST.
- Sprawdź skan kapilarny pod kątem efektów wzmocnienia/wygaszania fluorescencji i przywierania (piki w kształcie litery U lub spłaszczone) w oprogramowaniu.
UWAGA: Więcej szczegółów na temat wykrywania i postępowania z efektami fluorescencji i przywierania można znaleźć w dyskusji.
6. Pomiar MST
UWAGA: Zanim rozpoczniesz pomiar MST, upewnij się, że wykluczyłeś efekty przywierania, efekty wzmocnienia/wygaszania lub błędy pipetowania i upewnij się, że skanowanie kapilarne wskazuje, że sygnał fluorescencji jest wystarczający. Aby uzyskać więcej informacji, zobacz dyskusję.
- Przypisać stężenia ligandów z serii rozcieńczeń do odpowiedniego położenia kapilary w oprogramowaniu "kontrolnym". Rozważmy etap rozcieńczania polegający na mieszaniu aptameru i liganda (1:1).
- Wprowadź najwyższe stężenie liganda (5 mM) dla kapilary #1, wybierz właściwy typ rozcieńczenia (tutaj 1:1), kliknij maksymalne stężenie i użyj funkcji przeciągania, aby automatycznie przypisać pozostałe stężenia w kapilarnach #2-16. Najniższe stężenie wynosi 152,6 nM.
- Wprowadź stężenie aptameru fluorescencyjnego (tutaj 100 nM) w odpowiedniej sekcji oprogramowania sterującego.
- Użyj ustawień domyślnych, które wykrywają fluorescencję przez 5 sekund, rejestruj MST przez 30 sekund i rejestruj fluorescencję przez kolejne 5 sekund po dezaktywacji lasera, aby monitorować dyfuzję wsteczną cząsteczek.
- Ustaw moc lasera na 20% w odpowiedniej sekcji oprogramowania sterującego.
UWAGA: Aby uzyskać najlepszy stosunek sygnału do szumu i uniknąć niespecyficznych efektów, zalecana jest moc lasera 20-40%. W szczególnych przypadkach może być wymagana wyższa moc lasera, aby uzyskać dobrą separację cząsteczek niezwiązanych i związanych. - Zapisz eksperyment po wybraniu folderu docelowego i rozpocznij pomiar MST, naciskając przycisk ''Rozpocznij pomiar MST'.
UWAGA: Plik .ntp zostanie wygenerowany w folderze docelowym. Przy tej konfiguracji jeden pomiar trwa 10-15 minut. - Powtórzyć procedurę doświadczalną co najmniej dwa razy w celu dokładniejszego określenia wartości EC50.
UWAGA: W celu sprawdzenia odtwarzalności technicznej, te same kapilary mogą być skanowane kilkakrotnie (powtórki techniczne).
7. Analiza danych MST
UWAGA: Oprogramowanie analityczne umożliwia analizę danych w locie podczas pomiaru. Oprogramowanie analityczne wykreśla ślady czasowe MST i zmiany znormalizowanej fluorescencji (norma F) w funkcji stężenia liganda37.
- Uruchom oprogramowanie do analizy MST (MO. Affinity Analysis) i załaduj plik .ntp z folderu docelowego. Wybierz "MST" jako typ analizy w menu wyboru danych.
UWAGA: W przypadku efektów fluorescencji zależnych od ligandów, do analizy można wybrać fluorescencję początkową. - Dodaj odpowiedni przebieg techniczny lub biologiczny do nowej analizy metodą "przeciągnij i upuść" lub naciskając przycisk "+" poniżej odpowiedniego przebiegu doświadczalnego.
- Naciśnij przycisk informacyjny poniżej odpowiedniego przebiegu eksperymentalnego, aby uzyskać informacje o właściwościach eksperymentu, śladach MST, skanowaniu kapilarnym, kształcie kapilary, początkowej fluorescencji i szybkości bielenia.
UWAGA: Te surowe dane można również sprawdzić w późniejszych krokach analizy. - Sprawdź wzrokowo ślady MST pod kątem efektów agregacji i opadów, widocznych jako nierówności i kolce.
UWAGA: Aby uzyskać więcej informacji na temat wykrywania i obsługi efektów agregacji, przeczytaj dyskusję. - Sprawdź wzrokowo skan kapilarny i nakładkę w kształcie kapilary pod kątem efektów adsorpcji, widocznych jako spłaszczone lub w kształcie litery U. Sprawdź wzrokowo skan kapilarny i początkową fluorescencję pod kątem efektów fluorescencji. Sprawdź wzrokowo szybkość wybielania pod kątem efektów fotowybielania.
- Przełącz się w tryb dawka-odpowiedź i zmień ustawienie analizy na tryb "ekspert", naciskając odpowiedni przycisk. Wybierz "T-Jump" jako strategię oceny MST.
- Wybierz model "Wzgórze" do dopasowania krzywej. Parametry powiązania zostaną obliczone automatycznie. Znormalizuj dane, wybierając odpowiedni typ normalizacji w menu "porównaj wyniki". Wyeksportuj dane jako .xls lub .pdf.
UWAGA: Tabela poniżej wykresu powiązań zawiera podsumowanie obliczonych parametrów powiązania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W niniejszym badaniu zastosowano MST w celu scharakteryzowania miejsca wiązania aptameru DNA DH25.4218 z ATP. W przeciwieństwie do innych badań charakteryzujących oddziaływanie ATP lub małocząsteczkowych mimetyków ATP z białkami znakowanymi losowo jednym lub większą liczbą fluoroforów38-40, w tym badaniu wykorzystano znakowaną wersję ssDNA aptameru o masie 7,9 kDa z jedną cząsteczką Cy5 na końcu 5´. Aby zmapować miejsce wiązania w cząsteczce ATP, zastosowano różne po...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Kontrole jakości:
Niespecyficzne przywieranie/adsorpcja materiału próbki do powierzchni, a także efekty agregacji, mają ogromny wpływ na jakość danych dotyczących powinowactwa. Jednak tylko kilka najnowocześniejszych technologii oferuje dokładne i szybkie opcje monitorowania i unikania tych efektów. MST oferuje zintegrowane kontrole jakości, które wykrywają i pomagają przezwyciężyć te problemy, umożliwiając stopniową optymalizację konfiguracji technicznej. Ważne informacje na temat efektów przywi...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
C.E. i T.S. są pracownikami firmy 2bind GmbH, która świadczy usługi w zakresie analiz biofizycznych. Opłaty za publikację tego artykułu wideo są opłacane przez firmę 2bind GmbH.
Podziękowania
Autorzy nie mają żadnych podziękowań.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| wiążący aptamer | 20 mM Tris pH 7,6; 300 mM NaCl; 5 mM MgCl2; 0,01% Tween-20 | ||
| Fluorescencyjnie znakowany aptamer ATP | IDT, Leuven, Belgia | sekwencja: DH25.42 50-Cy5-CCTGGGGGAGT- ATTGCGGAGGAAGG-3 | |
| ATP | Sigma Aldrich, Niemcy | A2383 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 & deg; C |
| ADP | Sigma Aldrich, Niemcy | A2754 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 ° C |
| AMP | Sigma Aldrich, Niemcy | A2252 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 ° C |
| Adenine | Sigma Aldrich, Niemcy | A8626 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 & deg; C |
| SAM | Sigma Aldrich, Niemcy | A7007 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 & deg; C |
| dATP | Sigma Aldrich, Niemcy | 11934511001 | roztwory podstawowe 10 mM przechowywane w temperaturze -20 ° C |
| CTP | Sigma Aldrich, Niemcy | C1506 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 & deg; C |
| GTP | Sigma Aldrich, Niemcy | G8877 | 10 mM roztwory podstawowe przechowywane w temperaturze -20 ° C |
| Monolit NT.115 | NanoTemper Technologies, Monachium, Niemcy | MO-G008 | Niebiesko-czerwony Kanał Urządzenie MST ze standardowym detektorem, Monolith NT115 pico to urządzenie MST z detektorem o wysokiej czułości |
| Kapilary Monolith NT.115 Standard | NanoTemper Technologies, Monachium, Niemcy | MO-K002 | |
| Probówki Eppendorf PCR | Eppendorf, Niemcy | 30124537 | |
| Oprogramowanie sterujące Monolith. 2.1.33, preinstalowane na urządzenie | NanoTemper Technologies, Monachium, Niemcy | ||
| MO.affinity analysis v2.1.1 | NanoTemper Technologies, Monachium, Niemcy | ||
| Kaleidagraph 4.5.2 | Oprogramowanie |
Bibliografia
- Linke, P., et al. An Automated Microscale Thermophoresis Screening Approach for Fragment-Based Lead Discovery. J Biomol Screen. 21 (4), 414-421 (2015).
- Jerabek-Willemsen, M., et al. MicroScale Thermophoresis: Interaction analysis and beyond. Journal of Molecular Structure. 1077, 101-113 (2014).
- Zillner, K., et al. Microscale thermophoresis as a sensitive method to quantify protein: nucleic acid interactions in solution. Methods Mol Biol. 815, 241-252 (2012).
- Zhang, W., Duhr, S., Baaske, P., Laue, E. Microscale thermophoresis for the assessment of nuclear protein-binding affinities. Methods Mol Biol. 1094, 269-276 (2014).
- Wienken, C. J., Baaske, P., Rothbauer, U., Braun, D., Duhr, S. Protein-binding assays in biological liquids using microscale thermophoresis. Nat Commun. 1, 100(2010).
- Seidel, S. A., et al. Label-free microscale thermophoresis discriminates sites and affinity of protein-ligand binding. Angew Chem Int Ed Engl. 51 (42), 10656-10659 (2012).
- Seidel, S. A., et al. Microscale thermophoresis quantifies biomolecular interactions under previously challenging conditions. Methods. 59 (3), 301-315 (2013).
- Schubert, T., et al. Df31 protein and snoRNAs maintain accessible higher-order structures of chromatin. Mol Cell. 48 (3), 434-444 (2012).
- McKeague, M., Derosa, M. C. Challenges and opportunities for small molecule aptamer development. J Nucleic Acids. 2012, 748913(2012).
- Ruscito, A., DeRosa, M. C. Small-Molecule Binding Aptamers: Selection Strategies, Characterization, and Applications. Front Chem. 4, 14(2016).
- Chang, A. L., McKeague, M., Liang, J. C., Smolke, C. D. Kinetic and equilibrium binding characterization of aptamers to small molecules using a label-free, sensitive, and scalable platform. Anal Chem. 86 (7), 3273-3278 (2014).
- Chang, A. L., McKeague, M., Smolke, C. D. Facile characterization of aptamer kinetic and equilibrium binding properties using surface plasmon resonance. Methods Enzymol. 549, 451-466 (2014).
- Jing, M., Bowser, M. T. Methods for measuring aptamer-protein equilibria: a review. Anal Chim Acta. 686 (1-2), 9-18 (2011).
- Sokoloski, J. E., Dombrowski, S. E., Bevilacqua, P. C. Thermodynamics of ligand binding to a heterogeneous RNA population in the malachite green aptamer. Biochemistry. 51 (1), 565-572 (2012).
- Burnouf, D., et al. kinITC: a new method for obtaining joint thermodynamic and kinetic data by isothermal titration calorimetry. J Am Chem Soc. 134 (1), 559-565 (2012).
- Mannironi, C., Scerch, C., Fruscoloni, P., Tocchini-Valentini, G. P. Molecular recognition of amino acids by RNA aptamers: the evolution into an L-tyrosine binder of a dopamine-binding RNA motif. RNA. 6 (4), 520-527 (2000).
- Jenison, R. D., Gill, S. C., Pardi, A., Polisky, B. High-resolution molecular discrimination by RNA. Science. 263 (5152), 1425-1429 (1994).
- Huizenga, D. E., Szostak, J. W. A DNA aptamer that binds adenosine and ATP. Biochemistry. 34 (2), 656-665 (1995).
- Lee, E. R., Baker, J. L., Weinberg, Z., Sudarsan, N., Breaker, R. R. An allosteric self-splicing ribozyme triggered by a bacterial second messenger. Science. 329 (5993), 845-848 (2010).
- Wickiser, J. K., Cheah, M. T., Breaker, R. R., Crothers, D. M. The kinetics of ligand binding by an adenine-sensing riboswitch. Biochemistry. 44 (40), 13404-13414 (2005).
- Jucker, F. M., Phillips, R. M., McCallum, S. A., Pardi, A. Role of a heterogeneous free state in the formation of a specific RNA-theophylline complex. Biochemistry. 42 (9), 2560-2567 (2003).
- Zhao, Q., Lv, Q., Wang, H. Aptamer fluorescence anisotropy sensors for adenosine triphosphate by comprehensive screening tetramethylrhodamine labeled nucleotides. Biosens Bioelectron. 70, 188-193 (2015).
- Zhang, D., et al. A sensitive fluorescence anisotropy method for detection of lead (II) ion by a G-quadruplex-inducible DNA aptamer. Anal Chim Acta. 812, 161-167 (2014).
- Elenko, M. P., Szostak, J. W., van Oijen, A. M. Single-molecule imaging of an in vitro-evolved RNA aptamer reveals homogeneous ligand binding kinetics. J Am Chem Soc. 131 (29), 9866-9867 (2009).
- Elenko, M. P., Szostak, J. W., van Oijen, A. M. Single-molecule binding experiments on long time scales. Rev Sci Instrum. 81 (8), 083705(2010).
- Zichel, R., Chearwae, W., Pandey, G. S., Golding, B., Sauna, Z. E. Aptamers as a sensitive tool to detect subtle modifications in therapeutic proteins. PLoS One. 7 (2), 31948(2012).
- Baaske, P., Wienken, C. J., Reineck, P., Duhr, S., Braun, D. Optical thermophoresis for quantifying the buffer dependence of aptamer binding. Angew Chem Int Ed Engl. 49 (12), 2238-2241 (2010).
- Entzian, C., Schubert, T. Studying small molecule-aptamer interactions using MicroScale Thermophoresis (MST). Methods. 97, 27-34 (2016).
- Valenzano, S., et al. Screening and Identification of DNA Aptamers to Tyramine Using in Vitro Selection and High-Throughput Sequencing. ACS Comb Sci. 18 (6), 302-313 (2016).
- Jauset Rubio, M., et al. beta-Conglutin dual aptamers binding distinct aptatopes. Anal Bioanal Chem. 408 (3), 875-884 (2016).
- Breitsprecher, D., et al. Aptamer Binding Studies Using MicroScale Thermophoresis. Methods Mol Biol. 1380, 99-111 (2016).
- Stoltenburg, R., Schubert, T., Strehlitz, B. In vitro Selection and Interaction Studies of a DNA Aptamer Targeting Protein A. PLoS One. 10 (7), 0134403(2015).
- Kinghorn, A. B., et al. Aptamer Affinity Maturation by Resampling and Microarray Selection. Anal Chem. 88 (14), 6981-6985 (2016).
- Duhr, S., Braun, D. Why molecules move along a temperature gradient. Proc Natl Acad Sci U S A. 103 (52), 19678-19682 (2006).
- Braun, D., Libchaber, A. Trapping of DNA by thermophoretic depletion and convection. Phys Rev Lett. 89 (18), 188103(2002).
- Duhr, S., Arduini, S., Braun, D. Thermophoresis of DNA determined by microfluidic fluorescence. Eur Phys J E Soft Matter. 15 (3), 277-286 (2004).
- Jerabek-Willemsen, M., Wienken, C. J., Braun, D., Baaske, P., Duhr, S. Molecular interaction studies using microscale thermophoresis. Assay Drug Dev Technol. 9 (4), 342-353 (2011).
- He, K., Dragnea, V., Bauer, C. E. Adenylate Charge Regulates Sensor Kinase CheS3 To Control Cyst Formation in Rhodospirillum centenum. MBio. 6 (3), 00546(2015).
- Brvar, M., et al. Structure-based discovery of substituted 4,5'-bithiazoles as novel DNA gyrase inhibitors. J Med Chem. 55 (14), 6413-6426 (2012).
- Pogorelcnik, B., et al. 4,6-Substituted-1,3,5-triazin-2(1H)-ones as monocyclic catalytic inhibitors of human DNA topoisomerase IIalpha targeting the ATP binding site. Bioorg Med Chem. 23 (15), 4218-4229 (2015).
- Jhaveri, S., Rajendran, M., Ellington, A. D. In vitro selection of signaling aptamers. Nat Biotechnol. 18 (12), 1293-1297 (2000).
- Khavrutskii, L., et al. Protein purification-free method of binding affinity determination by microscale thermophoresis. J Vis Exp. (78), (2013).
- Ramakrishnan, M., et al. Probing cocaine-antibody interactions in buffer and human serum. PLoS One. 7 (7), 40518(2012).
- Chen, M., et al. Antiviral activity and interaction mechanisms study of novel glucopyranoside derivatives. Bioorg Med Chem Lett. 25 (18), 3840-3844 (2015).
- Wan, C., et al. Insights into the molecular recognition of the granuphilin C2A domain with PI(4,5)P2. Chem Phys Lipids. 186 (4,5), 61-67 (2015).
- Harazi, A., et al. The Interaction of UDP-N-Acetylglucosamine 2-Epimerase/N-Acetylmannosamine Kinase (GNE) and Alpha-Actinin 2 Is Altered in GNE Myopathy M743T Mutant. Mol Neurobiol. , (2016).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
