Zoptymalizowany protokół dojrzewania in vitro oocytów danio pręgowanego, używany do manipulacji produktami genów matki, jest prezentowany tutaj.
Artykuł metodologiczny
Funkcjonalna manipulacja matczynymi produktami genowymi z wykorzystaniem dojrzewania oocytów in vitro u danio pręgowanego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Zdarzenia komórkowe, które mają miejsce podczas najwcześniejszych etapów rozwoju embrionalnego zwierzęcia, są napędzane przez produkty genów pochodzących od matki, zdeponowane w rozwijającym się oocycie. Ponieważ zdarzenia te opierają się na produktach matczynych, które zwykle działają bardzo szybko po zapłodnieniu - które wcześniej istnieją wewnątrz komórki jajowej, standardowe podejścia do odciągania i redukcji funkcjonalnej polegające na wstrzykiwaniu odczynników do zapłodnionej komórki jajowej są zazwyczaj nieskuteczne. Zamiast tego takie manipulacje muszą być wykonywane podczas oogenezy, przed lub w trakcie akumulacji produktów matczynych. W artykule szczegółowo opisano protokół dojrzewania in vitro niedojrzałych oocytów danio pręgowanego, a następnie ich zapłodnienia in vitro, w wyniku którego powstają zdolne do życia zarodki, które przeżywają do dorosłości. Metoda ta pozwala na funkcjonalną manipulację produktami matczynymi podczas oogenezy, taką jak ekspresja produktów do ratowania fenotypu i wizualizacji oznakowanych konstruktów, a także redukcję funkcji genów za pomocą czynników genetyki odwrotnej.
Wprowadzenie
Podczas rozwoju zwierzęcia, matka deponuje produkty genów (np. RNA, białka i inne biomolekuły) w jaju; produkty te są ważne dla wczesnych procesów komórkowych bezpośrednio po zapłodnieniu1,2. Manipulowanie ekspresją i funkcją produktów matczynych jest zazwyczaj nieskuteczne w przypadku stosowania standardowego podejścia do wstrzykiwania odczynników do zapłodnionych jaj 3. Dzieje się tak, ponieważ większość RNA i białek jest wytwarzana przez oocyt podczas oogenezy, więc wstępnie załadowane produkty matczyne są już obecne w dojrzałej komórce jajowej. Takie istniejące wcześniej produkty są odporne na funkcjonalne knockdown za pomocą środków ukierunkowanych na geny, takich jak antysensowne oligonukleotydy Morpholino (MO), ponieważ MO celują w mRNA, a nie w istniejące wcześniej białko już obecne w jaju w momencie zapłodnienia. Ponadto wiele wczesnych procesów embrionalnych zachodzi zbyt szybko po zapłodnieniu, aby produkty białkowe pochodzące z RNA wstrzyknięte do zapłodnionej komórki jajowej miały na nie wpływ, ponieważ RNA może nie być wytwarzane wystarczająco szybko, aby wpłynąć na pierwsze zdarzenia embriogenezy. Z tego samego powodu fuzje znakowanych białek ulegające ekspresji przez wstrzyknięcie mRNA do zapłodnionej komórki jajowej mogą nie zostać wytworzone na czas w celu wizualizacji podczas ich aktywnej roli we wczesnym zarodku. Wstrzyknięcie do wytłaczanych dojrzałych oocytów przed aktywacją komórki jajowej jest możliwe, ale wiąże się z podobnymi problemami technicznymi: takie dojrzałe jaja są już wstępnie załadowane białkiem matczynym i nie staną się aktywne translacyjnie (tj. nie będą wytwarzać białka z egzogennych transkryptów), dopóki nie zostaną aktywowane jajo. Z tych powodów manipulacja produktami genów matczynych działającymi we wczesnej embriogenezie zazwyczaj musi być przeprowadzana podczas oogenezy w dojrzewającym oocycie.
Jako jedno z podejść do pokonania tych przeszkód, metody dojrzewania in vitro, które pozwalają na dojrzewanie oocytów od etapu IV do powstania jaja, zostały opracowane u danio pręgowanego. Wczesne metody pozwalały na dojrzewanie in vitro, ale powstałe dojrzałe jaja nie były odpowiednie do zapłodnienia4. Następnie manipulacja warunkami hodowli od obojętnego do pH 9,0, naśladując zasadowe pH płynu jajnikowego występującego u gatunków ryb5,6, pozwoliła na niezawodne zapłodnienie in vitro (IVF) po dojrzewaniu in vitro7,8. Rzeczywiście, oocyty dojrzałe in vitro mogą dać zdolne do życia zarodki, które przeżywają do dorosłości i są płodne3,8. Ta ulepszona metoda została dodatkowo dostosowana, aby uwzględnić funkcjonalną manipulację genami matczynymi, ekspresję znakowanych białek podczas oogenezy danio pręgowanego poprzez ekspresję egzogenną oraz funkcjonalne knock za pośrednictwem MO w dojrzewających oocytach IV stadium 3 (Figura 1).
Urokeneza danio pręgowanego wykazuje szereg charakterystycznych etapów prowadzących do powstania dojrzałych oocytów9 (zobacz Tabelę 1, aby zapoznać się z krótkim przewodnikiem po różnych etapach oogenezy). Krótko mówiąc, rozwój oocytów jest inicjowany przez oocyty I stopnia i jest zatrzymywany na etapie diplotenu profazy I mejozy. Oocyty te ulegają wzrostowi poprzez aktywną transkrypcję (inicjowaną w stadiach IA i IB), tworzenie pęcherzyków korowych (znanych również jako ziarnistości korowe, inicjowane w stadium II) i witellogenezę (inicjowaną w stadium III). Wzrost oocytów kończy się w fazie IV, kiedy mejoza I zostaje wznowiona, co powoduje rozpad jądra oocytu, zwanego pęcherzykiem rozrodczym (GV). Następnie mejoza zostaje ponownie zatrzymana w metafazie II. Zakończenie wzrostu oocytów i zatrzymanie mejozy w stadium IV prowadzi do dojrzałego stadium V egg9. Usunięcie błony pęcherzykowej następuje podczas uwalniania oocytu do światła jajnika10 i jest niezbędne do zapłodnienia i prawidłowej aktywacji komórki jajowej. Gdy jaja zostaną wyjęte z matki podczas naturalnego krycia, ulegają aktywacji. U danio pręgowanego ekspozycja na wodę jest wystarczająca do pełnej aktywacji jaja, niezależnie od obecności plemników11.
Warunki in vitro obecnie pozwalają na dojrzewanie oocytów od wczesnego stadium IV - które można rozpoznać po ich wielkości (690-730 μm), obecności dużej GV w asymetrycznej pozycji i całkowicie nieprzezroczystym wyglądzie dzięki akumulacji białek żółtka (Rysunek 2B)-do dojrzałego jaja w stadium V, charakteryzującego się całkowicie rozłożonym GV i półprzezroczystym wyglądem dzięki przetwarzaniu białka żółtkowego12 (Rysunek 2C). W tym podejściu od samic usuwa się całe jajniki zawierające oocyty na różnych etapach rozwoju. Oocyty mogą rozwijać się w 17α-20β-dihydroksy-4 pregnen-3-onie (DHP), skutecznym hormonie indukującym dojrzewanie8. W tym okresie dojrzewającymi oocytami można manipulować poprzez wstrzykiwanie ekspresji (np. Kapturkowane, transkrybowane in vitro mRNA) lub czynniki odwrotnej genetyki (np. MO). Warstwa mieszkowa nie złuszcza się spontanicznie pod koniec okresu dojrzewania, dlatego należy ją usunąć ręcznie. Po deffolikulacji, zapłodnienie in vitro osiąga się poprzez wywołanie aktywacji komórki jajowej poprzez wystawienie komórek jajowych na działanie wody (obecnej w pożywce embrionalnej (E3))13 i roztworu nasienia. Powstałe zygoty przechodzą rozwój embrionalny i pozwalają na ocenę zdolności leczenia do manipulowania funkcją genów matczynych oraz na wizualizację i analizę oznakowanych produktów matczynych (ryc. 3).
Protokół
Wszystkie rybki pręgowane były traktowane ściśle według dobrych praktyk zwierzęcych, zgodnie z definicją odpowiednich krajowych i/lub lokalnych organów ds. dobrostanu zwierząt, a wszystkie prace na zwierzętach zostały zatwierdzone przez odpowiedni komitet (numer gwarancji University of Wisconsin-Madison A3368-01). Zwierzęta utrzymywano w standardowych warunkach w temperaturze 26,5 °C.
1. Wstępna selekcja kobiet
UWAGA: Oocyty u dorosłych samic zazwyczaj obejmują szereg etapów rozwoju, od etapu I do V (Rysunek 2). Oczyszczanie samic z istniejących wcześniej oocytów poprzez udane naturalne krycie zwiększa synchronizację oceny stopnia zaawansowania oocytów, ponieważ nowo rozwijające się oocyty pojawiają się jako kohorta3,14. W ciągu około 8 dni po przeczyszczeniu większość oocytów znajduje się we wczesnym stadium IV, co jest optymalne do rozpoczęcia dojrzewania in vitro. Taka synchronizacja zwiększa wydajność oocytów, które mogą przejść pełny proces dojrzewania in vitro, ułatwiając manipulację eksperymentalną. Zobacz poprzednie opisy13, aby uzyskać szczegółowe informacje na temat ustawiania ryb w parach i składu wody dla ryb (tutaj 14 g soli oceanicznej i 150 g NaHCO3 na 1000 l wody z odwróconej osmozy, pH 6,5-8,5 (preferowany zakres: 6,8-7,5) i przewodność 180-360 μS). Patrz Brand i wsp.13 dla dodatkowych przepisów.
- Osiem do dziesięciu dni przed manipulacją kulturą in vitro użyj sieci rybackiej, aby przenieść pojedynczego samca i jedną samicę ryby pożądanego szczepu do zbiornika godowego. Sparuj wiele zestawów. Zostaw je na noc w zbiorniku współpracującym. Pozwól im łączyć się w pary wieczorem i po południu następnego dnia.
- Użyj siatki rybackiej, aby oddzielić samice, które składają jaja podczas krycia i umieść je w osobnym zbiorniku. Karm te samice dwa razy dziennie mieszanką pokarmową zawierającą w przybliżeniu równą ilość krewetek solankowych i płatków pokarmu dla ryb. Ilość pokarmu powinna wystarczyć, aby zapewnić około 20 minut, ale nie więcej czasu karmienia.
2. Przygotowanie podłoża do dojrzewania
UWAGA: Przygotuj pożywkę do dojrzewania w dniu eksperymentu z dojrzewaniem in vitro, w ciągu 1 godziny od pobrania oocytów od samicy (patrz sekcja 3).
- Dodać 20 ml pożywki L-15 firmy Leibovitz z L-glutaminą, pH 7,0, do stożkowej probówki o pojemności 50 ml w sterylnych warunkach. Doprowadzić do pH 9,0 za pomocą 10 N NaOH.
- Dodaj 9 ml pożywki L-15 firmy Leibovitz o pH 9,0 do 2 oddzielnych stożkowych probówek o pojemności 50 ml. Oznacz 1 rurkę "+DHP", a drugą "-DHP".
- Do probówki +DHP dodać 10 μl 17α-20β-dihydroksy-4 pregnen-3-onu (DHP), 490 μldH2O i 500 μl 10% albuminy surowicy bydlęcej (BSA).
- Do probówki -DHP dodać 100 μl 10 mg/ml gentamycyny, 400 μl dH2O i 500 μl 10% BSA.
3. Sekcja oocytów i rozpoczęcie hodowli in vitro
UWAGA: Eksperyment z hodowlą in vitro przeprowadzany jest na wstępnie wybranych samicach 8-10 dni po uwolnieniu jaj poprzez naturalne krycie. Użyć pożywki do dojrzewania przygotowanej tego samego dnia (patrz punkt 2). Oocyty dojrzewają prawidłowo, jeśli sekcja rozpoczyna się pod koniec cyklu dobowego ryb (określonego w laboratorium przez wstępnie ustawione sztuczne oświetlenie w pomieszczeniu dla ryb)13, prawdopodobnie naśladując procesy zachodzące podczas naturalnego krycia. Oznacza to, że większość etapów protokołu musi być wykonywana wieczorem, jeśli ryby są trzymane w obiekcie o standardowym cyklu świetlnym (np. rozpoczęcie kroku 3.2 o godzinie 18 w obiekcie o okresie świetlnym od 8 rano do 22 wieczorem), chociaż inne okresy pracy są możliwe przy odpowiednio przesuniętym w czasie cyklu świetlnym.
- Przygotować 0,2% roztwór podstawowy trikainy wdH2O, zbuforowany do pH 7,0 z 1 M Tris, pH 9,0 i utrzymywać ten roztwór w temperaturze 4 °C. Można to przygotować z wyprzedzeniem.
- Eksperyment należy rozpocząć na 0-4 godziny przed zakończeniem dziennego cyklu świetlnego w obiekcie. W zlewce o pojemności 250 ml dodaj 20 ml 0,2% roztworu podstawowego tricainy o pH 7,0 do 80 ml wody dla ryb i wymieszaj.
- Przenieś wstępnie wybrane samice do roztworu tricainy i poddaj je eutanazji przez nadmierną ekspozycję. Pozostawić samice w roztworze tricainy na 15 minut po ustaniu ruchu skrzeli.
- Za pomocą łyżki zbierz uśpioną rybę z roztworu tricainy i krótko opłucz ją w wodzie rybnej. Umieść rybę na ręczniku papierowym, aby wchłonął nadmiar wody.
- Użyj czystej żyletki, aby odciąć głowę uśpionej ryby na poziomie płetwy piersiowej. Za pomocą nożyczek preparacyjnych wykonaj podłużne nacięcie po brzusznej stronie ryby, rozciągające się od przedniego końca do okolicy odbytu.
- Umieść rybę na szalce Petriego pod mikroskopem preparacyjnym przy padającym świetle. Za pomocą kleszczy preparacyjnych przenieś porcje jajników do naczynia hodowlanego o wymiarach 35 x 10 mm zawierającego 4 ml pożywki L-15 +DHP.
firmy Leibovitz UWAGA: Jajniki, które zawierają rozwijające się oocyty, pojawią się jako nieprzezroczyste i grudkowate struktury w wewnętrznej jamie ciała. - Za pomocą kleszczy preparacyjnych delikatnie oddziel oocyty od mas pęcherzykowych. Sortuj oocyty we wczesnym stadium IV (ryc. 2B; przed rozpadem GV, o wielkości bliskiej maksymalnemu i charakteryzujące się ciemną, nieprzezroczystą cytoplazmą i łatwo widoczną GV zlokalizowaną asymetrycznie w oocycie). Odrzuć oocyty we wcześniejszych stadiach (ryc. 2A) i półprzezroczyste, dojrzałe jaja w stadium V (podobne do tych na rycinie 2C, ale obecne w jajnikach przed leczeniem DHP).
UWAGA: Oocyty są wybierane do dojrzewania we wczesnym stadium IV, najwcześniejszym etapie, w wyniku którego oocyty w stadium V są dojrzałe po warunkach hodowli in vitro (Figura 2C i D)3. Ponieważ oocyty w stadium IV aktywnie wytwarzają produkty, manipulacja na tym etapie pozwala na ekspresję produktów egzogennych poprzez wstrzyknięcie RNA lub na zmniejszenie funkcji genów poprzez wprowadzone MO. - Za pomocą szklanej pipety Pasteura przenieś oocyty wczesnego stadium IV do drugiego plastikowego naczynia hodowlanego o wymiarach 35 x 10 mm zawierającego 4 ml pożywki L-15 +DHP firmy Leibovitz. Przenieść minimalne ilości pożywki -DHP do naczynia zawierającego roztwór +DHP.
4. Mikroiniekcje oocytów
UWAGA: Wyizolowane oocyty IV stopnia poddawane dojrzewaniu in vitro mogą być mikrowstrzykiwane w celu wprowadzenia odczynników do funkcjonalnej manipulacji lub oznaczonej ekspresji białka. Mikroiniekcja odczynników, takich jak mRNA i MO (patrz punkt 4), jest zwykle przeprowadzana, gdy oocyty przechodzą dojrzewanie in vitro w pożywce +DHP, przed deffolikulacją. W razie potrzeby, aby dać więcej czasu na przeprowadzenie manipulacji przed dojrzewaniem oocytów, iniekcje można również przeprowadzić w pożywce -DHP, przed dojrzewaniem, przez co najmniej 2 godziny. Mogą one być następnie przenoszone na pożywkę +DHP.
- Przygotuj mRNA za pomocą standardowego zestawu do ekspresji. Przechowywać je w temperaturze -80 °C jako zapas 100-500 pg/μl do wstrzykiwań w końcowym stężeniu 50-500 pg/μL (zalecane jest 200 pg/μL) w wodzie o czystości RNA. Przygotować MO w stężeniu 4 ng/μL w wodzie zgodnie z zaleceniami producenta. Wstrzyknąć je w końcowych stężeniach 2 ng/μl (lub zgodnie z ustaleniami empirycznymi).
UWAGA: Wstrzyknięcia są zwykle wykonywane w pożywce +DHP przed defolkulacją (patrz uwaga w punkcie 5). - W przypadku wstrzykiwania mRNA, bezpośrednio przed wstrzyknięciem, rozcieńczyć mRNA za pomocą wody z odwróconej osmozy klasy RNA i 0,2 M KCl, aby uzyskać końcowy roztwór 0,1 M KCl.
- W przypadku wstrzykiwania MO, bezpośrednio przed wstrzyknięciem, należy rozcieńczyć MO do pożądanego stężenia za pomocą wody z odwróconej osmozy i 0,2 M KCl, aby uzyskać końcowy roztwór 0,1 M KCl.
- Ręcznie przytrzymaj oocyty za pomocą cienkich kleszczyków i wstrzyknij około 1 nl do oocytów IV stopnia dzikiego za pomocą igły wykonanej za pomocą pipety kapilarnej z ciągniętego szkła.
- Przygotować szklane igły, ciągnąc rozgrzane szklane rurki kapilarne, ładując roztwór do wstrzyknięcia i łamiąc końcówkę igły kleszczami, jak opisano wcześniej w protokołach standardowego wstrzykiwania do wczesnych zarodków danio pręgowanego15.
UWAGA: Jest pomocne, jeśli igła ma stopniowe zwężanie się, a nie nagłe; Pozwala to na większą elastyczność w zakresie lokalizacji pęknięcia w końcówce igły, a także pomaga zapobiegać uszkodzeniom wstrzykniętego zarodka. Używając tej samej igły i roztworu, co w przypadku wstrzyknięć do zarodków, należy dostosować objętość wstrzykiwanego zarodka, wstępnie określając ustawienia ciśnienia mikrowstrzykiwacza, które wytwarzają pożądaną objętość. Ustawienia te można określić poprzez próbne wstrzykiwanie do kropli oleju mineralnego na szkiełku kalibracyjnym stolika mikroskopu (0,01 mm) i dostosowanie ustawień mikrowtryskiwacza w celu uzyskania pożądanej średnicy w bolusie wstrzykiwanego roztworu, jak opisano wcześniej15.
- Przygotować szklane igły, ciągnąc rozgrzane szklane rurki kapilarne, ładując roztwór do wstrzyknięcia i łamiąc końcówkę igły kleszczami, jak opisano wcześniej w protokołach standardowego wstrzykiwania do wczesnych zarodków danio pręgowanego15.
5. Dojrzewanie i defolkulacja oocytów
UWAGA: Podczas dojrzewania oocytów, oocyty stają się stopniowo przezroczyste, co pozwala na ocenę udanych warunków hodowli.
- Kontynuować inkubację niedojrzałych (i, jeśli to właściwe, wstrzykniętych) oocytów w pożywce +DHP w temperaturze 26,5 °C, sprawdzając okresowo (co 30 minut), czy oocyty pozostają nienaruszone i przechodzą prawidłowe dojrzewanie, stając się stopniowo przezroczyste (patrz rysunek 2C).
- Usunąć wszelkie lizyzowane oocyty za pomocą pipety Pasteura i wyrzucić je do zlewki laboratoryjnej, aby zachować jakość pożywki. Zamień pożywkę hodowlaną na około połowę objętości świeżej pożywki +DHP, aby utrzymać klarowny roztwór, w zależności od ilości lizy oocytów.
- Pozwól, aby dojrzewanie in vitro postępowało do momentu, gdy większość oocytów stanie się przezroczysta i uzyska GV, który nie jest już widoczny (około 2 godziny w przypadku leczenia DHP, patrz rysunek 2C w porównaniu z D). Zobacz je pod mikroskopem preparacyjnym z optyką światła przechodzącego.
- Usuń najbardziej zewnętrzną błonę pęcherzykową z każdego dojrzałego oocytu. Użyj bardzo cienkich kleszczyków, aby zrobić rozdarcie błony pęcherzykowej w obszarze o zwiększonej przestrzeni między oocytem a błoną. Oderwij część błony i wytocz oocyt z błony, przytrzymując obraną część.
UWAGA: Podczas tego procesu błona kosmówkowa znajdująca się pod spodem zazwyczaj pozostaje w ścisłym związku z komórką jajową; Po aktywacji komórki jajowej rozszerza się, tworząc warstwę ochronną dla zarodka. - Przenieś zdeflkulowane oocyty w minimalnej objętości pożywki (zazwyczaj przenosi około 5-10 dojrzałych oocytów w mniej niż 20 μl) na szalkę Petriego z kilkoma kroplami pożywki hodowlanej (+DHP) i przystąp do zapłodnienia.
6. Zapłodnienie komórek jajowych hodowanych in vitro
UWAGA: Roztwór nasienia na lodzie, przygotowany poniżej, utrzyma swoją moc przez około 2 godziny.
- Przygotuj roztwór nasienia pod koniec etapu dojrzewania oocytów i przed deffolikulacją, używając jąder od pięciu samców w 500 μl roztworu Hanksa, jak opisano wcześniej16,17.
- Dodać 10-50 μl roztworu plemników do zdeflkulowanych oocytów w pożywce hodowlanej +DHP. Poczekaj 10 sekund.
- Za pomocą pipety dodaj kilka kropli pożywki embrionalnej (E3) do oocytów. Odczekaj 1 min, a następnie zalej płytkę medium E3.
UWAGA: Skład podłoża E3 jest następujący: 5 mM NaCl, 0,17 mM KCl, 0,33 mM CaCl2, 0,33 mMMgSO4 i 1-5% błękitu metylenowego13. - Powtórz kroki 5.3, 6.2 i 6.3, aby uzyskać większą liczbę zapłodnionych zarodków.
- Pozwól zapłodnionym zarodkom się rozwinąć. Użyj mikroskopu preparacyjnego z optyką światła przechodzącego, aby obserwować postęp przez etapy rozszczepienia, aby zapewnić pomyślne zapłodnienie, jak opisano wcześniej dla zapłodnienia17 i staging18.
Wyniki
Aby ustalić, czy opisana powyżej procedura zakończyła się sukcesem, można obserwować zarodki podczas etapów podziałów, aby potwierdzić wystąpienie stereotypowego wzorca wczesnych podziałów zarodkowych18, a także w 24 h po zapłodnieniu (hpf), aby potwierdzić prawidłowy rozwój podstawowego planu budowy ciała. Procedura ta umożliwia manipulację produktami macierzystymi na potrzeby badań funkcjonalnych poprzez wstrzykiwanie odczynników, takich jak mRNA i MO, podczas rozwoju oocytów.
Przygotowanie produktów macierzyńskich do badań funkcjonalnych:
mRNA kodujące produkty typu dzikiego oraz zmutowane można wstrzyknąć do dojrzewających in vitro oocytów, aby zbadać wpływ manipulacji funkcją genów matczynych podczas mejozy i wczesnych etapów embrionalnych. Na przykład, do embrionów typu dzikiego można wstrzyknąć mRNA typu dzikiego w celu zbadania efektu nadekspresji produktu lub mutant RNA w celu przetestowania potencjalnych efektów dominujących (np. funkcji zyskanej lub antymorficznych) w tych procesach. Oocyty w hodowli in vitro są zdolne do produkcji białka z egzogennego mRNA przez cały okres rozwoju oocytu, co wykazano poprzez ekspresję GFP z wstrzykniętego mRNA, choć tylko oocyty, które rozpoczynają hodowlę w stadium IV oogenezy, mogą rozwinąć się w dojrzałe oocyty w stadium V (Rycina 2B-2D, patrz również Nair et al.3). Ekspresja produktu typu dzikiego poprzez wstrzyknięte mRNA jest również kluczowa dla ratowania mutacji efektu matczynego w celu potwierdzenia tożsamości genu podczas klonowania pozycyjnego3,24. W tym przypadku mRNA typu dzikiego wstrzykuje się do oocytów od samic homozygotycznych mutantów, aby sprawdzić, czy produkty typu dzikiego mogą odwrócić fenotyp mutanta. Takie ratowanie genetyczne zilustrowano na Ryciniach 3A-3C, gdzie pokazano, że wstrzyknięte mRNA AurB ratuje efekty fenotypowe mutacji w odpowiadającym mu genie cellular island (cei) (Rycina 3A-3C). Pozwala się również embrionom z grupy kontrolnej na rozwój, aby wykazać odpowiadający im fenotyp mutanta3. Mutant RNA można również wstrzyknąć do mutantowych oocytów, aby sprawdzić, czy zmutowany produkt zachowuje częściową funkcję, porównując zakres ratowania z tym wywołanym przez produkt typu dzikiego.
Ekspresja białek z mRNA wstrzykniętego do rozwijających się oocytów wydaje się następować z niewielkim opóźnieniem lub bez niego. Silna ekspresja GFP jest obserwowana w ciągu 2 h od wstrzyknięcia odpowiedniego mRNA, niezależnie od stadium rozwoju oocytu3 (Rysunek 2B-2D; patrz także Nair et al.3). Produkty takie jak mCherry:Sas6 i Birc5b(Motley):GFP można zaobserwować bezpośrednio po zapłodnieniu oraz podczas pierwszego cyklu komórkowego zarodka3,25. Wstrzyknięcie mRNA podczas oogenezy prowadzi również do produkcji białka, które, niezależnie od dołączonego znacznika, jest funkcjonalne bezpośrednio po zapłodnieniu, co wykazano w przypadku produktów matczynych dla cellular island/aurB3, futile cycle/lrmp24, oraz motley/bir5b25. MO blokujące translację również wywierają wpływ bezpośrednio po zapłodnieniu, jak pokazano dla futile cycle/Lrmp3, a także w późniejszych etapach embriogenezy, jak w przypadku mission impossible/dhx163. MO blokujące splicing, wstrzyknięte do dojrzewających oocytów, mogą nie wpływać na funkcję matczyną, prawdopodobnie ze względu na obecność dojrzałych transkryptów matczynych w oocytach w stadium IV3.
Generowanie morfantów:
W przypadku zastosowania MO odpowiadającego genowi z już zidentowaną mutacją, oczekuje się, że fenotyp morfanty będzie naśladował fenotyp mutanta. Morfanty porównuje się z zarodkami niepoddanymi iniekcji oraz z zarodkami, którym wstrzyknięto standardowe, kontrolne MO. Iniekcja morfolino blokującego translację może skutecznie fenokopiować znany fenotyp mutanta3, co wykazano poprzez wstrzyknięcie Lrmp MO do oocytów, co naśladuje fenotyp mutanta odpowiadający mutacji futile cycle (Rycyna 3D-F). Specyficzność MO można określić za pomocą tych samych metod, których używa się podczas wstrzykiwania MO do zarodków (omówiono w poprzednich przeglądach)19,20.
Ekspresja białek fuzyjnych znakowanych fluorescencyjnie:
mRNA kodujące interesujące produkty genów połączone z białkami fluorescencyjnymi (np. GFP i mCherry) może być również wstrzykiwane do oocytów typu dzikiego lub mutantów w celu wizualizacji odpowiadających im produktów wczesnego zarodka (tj. odzwierciedlając wzór lokalizacji subkomórkowej; Rysunek 3G i 3H). mRNA kodujące podobne fuzje, ale obejmujące allel mutantowy, może być w podobny sposób ekspresowane w celu sprawdzenia, czy mutacja wpływa na potencjalną lokalizację subkomórkową.
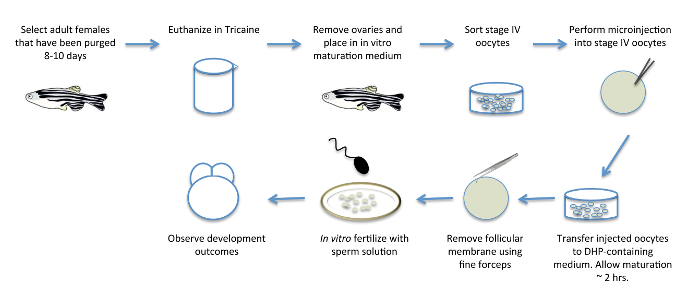
Rysunek 1: Dojrzewanie oocytów in vitro. Schemat przedstawiający poszczególne etapy dojrzewania oocytów in vitro. Dorosłe samice są wstępnie selekcjonowane do składania ikry na 8 dni przed procedurą, aby usunąć z nich oocyty, które już dojrzały, i pobudzić rozwój nowych oocytów. Jajniki zawierające rozwijające się oocyty są usuwane z samic i przenoszone do medium zawierającego hormon DHP w celu indukcji dojrzewania oocytów in vitro. Po usunięciu z samic, bezpośrednio przed lub w trakcie dojrzewania oocytów, do oocytów można wstrzyknąć produkty RNA oraz inne odczynniki w celu funkcjonalnej manipulacji czynnikami matczynymi. Dojrzałe oocyty są manualnie defolikulowane i zapładniane in vitro przy użyciu zawiesiny plemników, co prowadzi do powstania zapłodnionych, żywotnych embrionów. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rycina 2: Dojrzewanie oocytów in vitro oraz ekspresja produktów z wstrzykniętego mRNA. (A) Oocyty w stadiach I-III, zaobserwowane w jajnikach samic 4 dni po oczyszczaniu (dpp). (B) Oocyty w stadium IV, zaobserwowane w jajnikach samic 8 dpp. Pęcherzyk zarodkowy (GV, grot strzałki) jest wyraźnie widoczny i zajmuje pozycję ekscentryczną. Oocyty w stadium III w (A) również wykazują łatwo dostrzegalny GV, ale znajduje się on w centrum oocytu. Oocyty w stadium IV w (B) mają rozmiar zbliżony do maksymalnego w porównaniu z dojrzałymi oocytami w (C). (C i D) Oocyty w stadium V (dojrzałe oocyty) po 2 h w warunkach dojrzewania in vitro zapoczątkowanego w stadium IV, jak w (B), i wstrzykniętego podczas dojrzewania mRNA kodującego GFP, transkrybowanego in vitro (C, tylko światło widzialne; D, nałożenie światła widzialnego i fluorescencji GFP). GV nie jest już widoczny w oocytach w stadium V, które są również mniej nieprzezroczyste niż oocyty w stadium IV. Wstrzyknięte oocyty wykazują ekspresję białka GFP (D). Defolikulacja dojrzałych oocytów w stadium IV została opisana w sekcji protokołu. Pasek skali = 300 µm. Wszystkie panele zostały powielone za zgodą Nair et al3. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
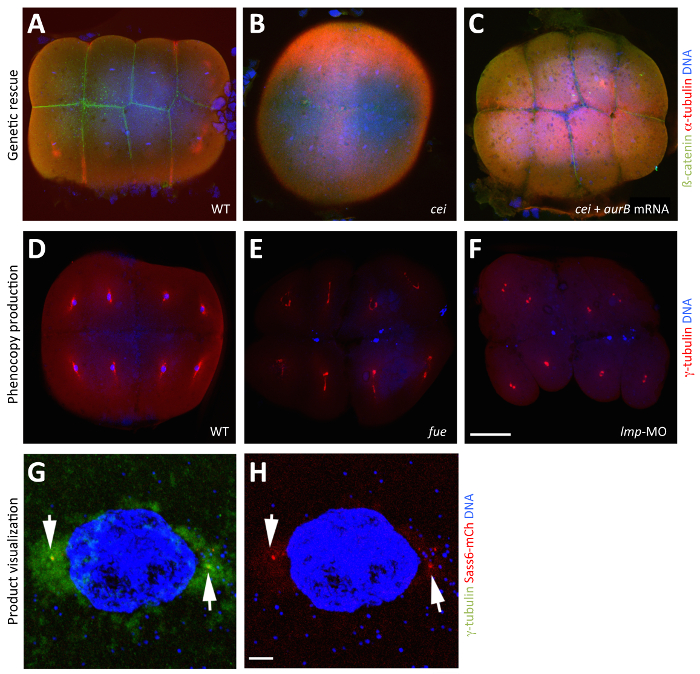
Rysunek 3: Manipulacja i wizualizacja produktów macierzystych poprzez In vitro Dojrzewanie oocytów. (A-C) Ratowanie fenotypu efektu macierzyńskiego wywołanego mutacją w wyspa komórkowa/aurora B poprzez wstrzyknięcie typu dzikiego aurB mRNA w stadium IV cei/aurB ojocyty. Nałożone obrazy przedstawiające widok zwierzęcy utrwalonych tarcz zarodkowych w 65. minucie po zapłodnieniu (mpf), wizualizowane z użyciem przeciwciał anty-ß-katenina w celu uwidocznienia błon (kolor zielony), przeciwciał anty-α-tubulina w celu wskazania mikrotubul (kolor czerwony) oraz barwnika DAPI do wyznaczenia DNA (kolor niebieski). (A) akumulacja β-kateniny w embrionach typu dzikiego, wskazująca na prawidłowe dojrzewanie bruzdy. (B) A cei/aurB zarodek nieiniekcyjny cei/aurB oocyt w stadium IV wykazuje częściowe, rudymentarne bruzdy, w których nie gromadzi się β-katenina.C) Uratowany cei/aurB zarodek z cei/aurB oocyt wstrzyknięty z typem dzikim aurB mRNA wykazujące silną akumulację β-kateniny w bruzdach. (D-F) Fenokopia efektu macierzyńskiego wywołanego mutacją w cykl jałowy/lrmp z wtryskiwania morfolino Lrmp do oocytów w stadium IV. Nałożone na siebie obrazy przedstawiające widok z bieguna zwierzęcego utrwalonych tarcz zarodkowych 70 min po zapłodnieniu (mpf), wizualizowane z użyciem przeciwciał anty-γ-tubulina w celu wskazania centrosomów (kolor czerwony) oraz DAPI w celu oznaczenia DNA (kolor niebieski). (DW embrionach typu dzikiego każde jądro łączy się z γ-tubuliną, która jest markerem materiału centrosomalnego.E) W przypadku efektu macierzyńskiego Fue mutanty, w których dochodzi do niepowodzenia fuzji pronukleusów, co skutkuje obecnością od dwóch do trzech obszarów oznakowania DNA odpowiadających niefuzyjnym pronukleusom rodzicielskim oraz ciałku polarnemu z drugiego podziału mejozy.FU morfantów Lrmp, w których funkcja macierzystego Lrmp jest zahamowana, jądra w podobny sposób nie dzielą się, a ponadto nie łączą się z γ-tubuliną.G i H) Wizualizacja produktu pochodzenia matczynego we wczesnym embrionie. Białko Sass6-mCherry z egzogennego mRNA wstrzykniętego do oocytów w stadium IV lokalizuje się w centriolach. Nałożone obrazy przedstawiają widoki od strony bieguna zwierzęcego utrwalonych blastodysków w 40. minucie po zapłodnieniu (mpf), wizualizowane z użyciem przeciwciał anty-γ-tubulinę w celu uwydatnienia centrosomów (zielony), fluorescencji mCherry w celu wskazania Sass6 (czerwony) oraz DAPI w celu oznaczenia DNA (niebieski). (G) Ekspresowane białko Sass6-mCherry lokalizuje się w ogniskach znakowanych markerem centrosomów γ-tubuliną w miejscach sąsiadujących z jądrem komórkowym (strzałki). (H) Ten sam obraz, przedstawiający dla większej przejrzystości jedynie Sass6-mCherry i DAPI. Zarodki w (G i H) są utrwalone, jednak fluorescencję produktów ekspresji, takich jak fuzje z mCherry, można obserwować również w żywych zarodkach (nie pokazano). Pasek skali = 100 µm w A-F oraz 10 µm w G i H. Wszystkie panele zostały przedrukowane za zgodą Naira i wsp.3. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Etapy oogenezy | średnica oocytu (μm) | Kluczowe punkty orientacyjne |
| 1A - Prefolikuł | od 7 do 20 | Inicjacja aktywnej transkrypcji, akumulacja jąderek |
| 1B - Męch pęcherzykowy | od 20 do 140 | Dekondensacja chromosomów |
| II - Alveolus kory | od 140 do 340 | Produkcja pęcherzyków korowych |
| III - Witellogeneza | od 340 do 690 | Przyciemnienie ooplazmy wskutek akumulacji białek prekursorowych żółtka i lipidów |
| Wczesna IV - Dojrzewanie oocytów | 690 do 730 (zakres dolny) | Asymetryczna lokalizacja pęcherzyka zarodkowego |
| Wczesna IV - Dojrzewanie oocytów | 690 do 730 (zakres górny) | Zanik pęcherzyka zarodkowego, zatrzymanie w metafazie II |
| V - Dojrzały oocyt | ~750 | Ooplazma/żółtko staje się półprzezroczyste |
Tabela 1: Kamienie milowe rozwoju oocytów u danio pręgowanego.
Dyskusja
Powyższy protokół służy do manipulowania produktami genów przed zapłodnieniem, co pozwala na badanie matczynych produktów genowych we wczesnym zarodku danio pręgowanego. Wcześniejsze badania były w stanie doprowadzić do dojrzewania oocytów in vitro4; Protokół ten został zmodyfikowany, aby umożliwić późniejsze zapłodnienie dojrzałych oocytów in vitro 8. To z kolei pozwala na wstrzykiwanie odczynników do manipulacji funkcjonalnej i wizualizacji produktów odziedziczonych po matce we wczesnym zarodku3. Zarodki powstałe w wyniku tej metody mogą być zdolne do życia i mogą przeżyć, aby stać się płodnymi dorosłymi osobami. We wstępnych eksperymentach około połowa zapłodnionych zarodków pochodzących z tej procedury była zdolna do życia w 5. dniu rozwoju, co oceniano na podstawie napompowania pęcherza pławnego na tym etapie, z których około połowa stała się zdrowymi, płodnymi dorosłymi (obserwacje niepublikowane).
W protokole należy wziąć pod uwagę kilka krytycznych kroków. Oocyty w odpowiednim etapie do rozpoczęcia dojrzewania (wczesne stadium IV) mogą być wzbogacone, jeśli samica została pokryta niedawno, ale nie wcześniej niż 8 dpp. Używanie ryb, które nie kryły się w ostatnim czasie, może spowodować degenerację jaj14, które nie ulegną dojrzewaniu. Samice kryte w czasie krótszym niż 8 dni będą miały większość jaj w stadium III lub niższym, a zatem jaja nie dojrzeją prawidłowo in vitro. Jajniki u samic, które kryły się 8 dni wcześniej, będą miały optymalną frakcję oocytów we wczesnym stadium IV. Można je rozpoznać po ich nieprzezroczystości i obecności GV w pozycji ekscentrycznej (ryc. 2B). Określenie stopnia zaawansowania oocytów może być również wspomagane przez pomiar wielkości, przy czym oocyty są umieszczane na szkiełku mikrometrycznym z podziałką pod mikroskopem i porównywane ze standardowymi wytycznymi dotyczącymi stopnia zaawansowania (Tabela 1). Jednak oocyty we wczesnym stadium IV mają prawie maksymalny rozmiar w porównaniu z dojrzałymi oocytami (rozpoznawane po ich względnej przezroczystości i braku GV; Rysunek 2C) i są łatwo rozpoznawalne, jak opisano powyżej, co generalnie eliminuje potrzebę bezpośredniego pomiaru wielkości oocytów.
Dojrzewanie in vitro musi rozpocząć się w ciągu kilku godzin od zakończenia cyklu dziennego, do którego przyzwyczajone są dawczynie komórek jajowych płci żeńskiej. Oocyty nie dojrzeją prawidłowo, co znajduje odzwierciedlenie w słabych wskaźnikach zapłodnienia, jeśli będą hodowane w porannym okresie cyklu świetlnego. Przyczyna okołodobowej zależności metody dojrzewania oocytów in vitro nie jest zrozumiała, ale prawdopodobnie odzwierciedla podstawowe odchylenia okołodobowe w dojrzewaniu komórek jajowych in vivo, obejmujące cykliczną ekspresję genów podczas oogenezy21. Częstą przyczyną niepomyślnego dojrzewania oocytów in vitro pomimo prawidłowego stopnia zaawansowania oocytów jest wygaśnięcie DHP. Hormon DHP zazwyczaj wygasa po roku, a aby zapewnić skuteczne dojrzewanie, partię roboczą należy wymienić w ciągu 9 miesięcy od użycia.
Wstrzyknięcie komórek jajowych jest kolejnym krytycznym krokiem, gdy celem metody jest funkcjonalna manipulacja produktami matczynymi. Procedura ta ma wymagania, które różnią się od tych, które obowiązują w przypadku standardowych wstrzyknięć do zapłodnionej komórki jajowej w dawce 0-30 mpf. Kluczowym czynnikiem w iniekcji oocytów jest konieczność przeprowadzenia iniekcji w warunkach, które nie prowadzą do przedwczesnej aktywacji komórki jajowej, takich jak w pożywce L-15 Leibovitza22,23. Ze względu na to, że są one osadzone w jajnikach, dojrzewające oocyty również stanowią szczególne wyzwanie dla wstrzyknięcia. Powyższy protokół sugeruje najpierw oddzielenie oocytów od jajników, a następnie trzymanie każdego zdysocjowanego oocytu osobno za pomocą kleszczy podczas wstrzykiwania. Ta technika sprawdziła się i pozwala na wstępne sortowanie oocytów na odpowiednim etapie przy minimalnej obsłudze. Można również zastosować metody alternatywne, takie jak: i) umieszczenie oocytów w standardowych korytach agarozowych do iniekcji15, gdzie pionowe ścianki koryta podtrzymują oocyt podczas iniekcji (w tej alternatywnej metodzie oocyty muszą być przenoszone na płytki iniekcyjne podczas przechowywania w pożywce do dojrzewania in vitro) oraz ii) pozostawienie oocytów w masie jajnika, które mogą być przytrzymywane kleszczami podczas wstrzyknięcia, aby uniknąć kontaktu z wstrzykniętym oocytem (w tym podejściu oocyty powinny zostać zdysocjowane po wstrzyknięciu, aby zarówno ułatwić ekspozycję na DHP, jak i umożliwić ich deffolikulację, która sama w sobie jest niezbędna do zapłodnienia in vitro). Pomimo tego specyficznego wyzwania, oocyty w stadium IV mogą być łatwo penetrowane za pomocą igły iniekcyjnej, prawdopodobnie dlatego, że błona kosmówkowa na tym etapie nie jest w pełni rozwinięta9.
Jednym z ograniczeń obecnego protokołu dojrzewania jest to, że warunki dojrzewania in vitro , które sprzyjają prawidłowemu rozwojowi oocytów, nie mogą zostać stworzone, gdy dojrzewanie oocytów rozpoczyna się na etapach wcześniejszych niż etap IV. Oocyty stają się zdolne do reagowania na DHP poprzez dojrzewanie, gdy osiągną średnicę 520 μm, co następuje w fazie III (witellogeneza, odpowiadająca zakresowi od 340 do 690 μm)9. Jednak posiew oocytów w stadium III prowadzi do powstania oocytów, które nie są zdolne do zapłodnienia3. Tylko oocyty, których hodowla in vitro jest inicjowana w stadium IV (ryc. 2B), mogą przekształcić się w dojrzałe oocyty w stadium V (ryc. 2C i D). Może to być związane z faktem, że etap III jest niezbędny do witellogenezy i wzrostu oocytów9. W związku z tym przedstawiona w niniejszym artykule procedura dojrzewania oocytów in vitro powinna być stosowana wyłącznie na populacji wyjściowej oocytów w stadium IV (B), a nie na oocytach we wcześniejszych stadiach (stadia I-III; Rysunek e 2A). Z tego samego powodu procedura ta jest ograniczona do genów, które ulegają ekspresji w stadium IV lub później. Funkcjonalna manipulacja genami, których produkty ulegają wcześniejszej ekspresji, może zamiast tego opierać się na metodach genetycznych (patrz poniżej). Udoskonalenia w metodach dojrzewania kultur in vitro mogą w przyszłości umożliwić rozpoczęcie hodowli oocytów na wcześniejszych etapach, zwiększając w ten sposób możliwości podejścia opartego na dojrzewaniu in vitro .
Kolejnym ograniczeniem w prezentowanej metodzie jest to, że defolikulacja, która jest niezbędna dla kolejnych etapów związanych z zapłodnieniem, jest obecnie krokiem ograniczającym dawkość w procedurze. Błona pęcherzykowa jest przezroczystą warstwą otaczającą rozwijającą się komórkę jajową, a jej usuwanie może być żmudne. Jeśli ta błona nie zostanie całkowicie usunięta, jajo nie zostanie w pełni aktywowane i zapłodnione. Uwidacznia się to w niezdolności do rozszerzania się kosmówki i rozwoju nieregularnie rozmieszczonych, bruzdowatych struktur (pseudorozszczepienia), charakterystycznych dla niezapłodnionych zarodków11. Wypróbowano enzymatyczne metody defolikulacji, takie jak kolagenaza, stosowana w Xenopus. Jednak w naszych rękach technika ta nie odniosła sukcesu, dlatego polegamy na ręcznej defolkulacji. Ponieważ ręczna defolkulacja jest pracochłonna i czasochłonna, trudno jest uzyskać duże partie zapłodnionych komórek jajowych po dojrzewaniu oocytów in vitro . Ze względu na ograniczenia czasowe narzucone przez ręczną defoglikulację, obecnie zapładniamy kilka odpylonych, dojrzałych komórek jajowych na raz, w małych partiach po 5-10 jaj. Włączenie defoliacji enzymatycznej do tej procedury prawdopodobnie znacznie zwiększyłoby jej wydajność i ogólną łatwość użycia.
Chociaż zarodki wyprodukowane po zapłodnieniu dojrzałych in vitro oocytów mogą stać się zdolnymi do życia dorosłymi osobnikami, zauważamy, że po zapłodnieniu in vitro część zarodków nie dzieli się normalnie lub w odpowiednim czasie. Obecnie dokonujemy selekcji linii, których namnażanie obejmuje rundy dojrzewania oocytów in vitro , co może skutkować bardziej solidnymi wzorcami rozwoju zarodków uzyskanych tą metodą.
Procedura pozwoliła na wyraźne uratowanie lub wizualizację lokalizacji białka dla wielu mutacji24,25. Jednak w przypadku niektórych genów regulacja ekspresji produktu może być kluczowa, więc produkty ulegające ekspresji przez wstrzyknięte mRNA mogą prowadzić do zmiennych wyników26. Ważne jest również, aby pamiętać o wszystkich kontrolach (np. zarodkach, którym wstrzyknięto odczynniki, które mają podobne właściwości do tych użytych w eksperymencie, ale przewiduje się, że nie wywołają efektu, takiego jak kontrolne MO lub RNA kodujące tylko białka obojętne, takie jak GFP), ponieważ podstawowa zmienność może prowadzić do niewłaściwych wniosków.
Podejście polegające na manipulacji in vitro , a następnie zapłodnieniu, jest szczególnie przydatne w przypadku produktów zdeponowanych przez matkę, gdzie standardowa metoda wstrzykiwania RNA, MO lub białka do zapłodnionej komórki jajowej może nie zmniejszać skutecznie produktów już zgromadzonych w komórce jajowej. Inne niedawno opracowane metody, takie jak generowanie mutantów CRISPR, są również skuteczne w generowaniu warunków mutantów dla genów ulegających ekspresji matczynej26. Jednak ta metoda wymaga wzrostu kilku pokoleń ryb. Technika dojrzewania oocytów in vitro pozwala na szybką manipulację funkcjonalną w celu zbadania funkcji genów ulegających ekspresji matki, w tym ratowania i fenokopii mutacji o działaniu matczynym, a także ekspresji RNA i białek we wczesnym zarodku.
Oświadczenia
Autorzy nie mają konkurencyjnych interesów finansowych.
Podziękowania
Chcielibyśmy podziękować członkom laboratorium Pelegri i personelowi zarządzającemu obiektem rybackim, którzy odegrali kluczową rolę w ułatwieniu realizacji tego projektu. Wsparcia dla tego projektu udzieliły NIH R56 GM065303 i NIH 2 T32 GM007133 do E.L.W., NIH 5 F31 GM108449-02 i NIH 2 T32 GM007133 do C.C.E. oraz NIH RO1 GM065303 do F.P.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Pudełka godowe danio pręgowanego | Aqua Schwarz | SpawningBox1 | |
| NaCl | Sigma | S5886 | |
| KCl | Sigma | P5405 | |
| Na2HPO4 | Sigma | S3264 | |
| KH2PO4 | Sigma | P9791 | |
| CaCl< sub>2 | Sigma | C7902 | |
| MgSO2-7H2O | Sigma | 63138 | |
| NaHCO2 | Sigma | S5761 | |
| Tricaine | Western Chemical | Tricaine-D (MS 222) | Zatwierdzony przez FDA (ANADA 200-226) |
| Baza Tris | Sigma | 77-86-1 | do przygotowania 1 M Tris pH 9,0 |
| HCl | Sigma | 920-1 | do przygotowania 1 M Tris pH 9.0 |
| Siatka na ryby (drobna siatka) (4 - 5 cali) | PennPlax | (ThatFishThatPlace # 212370) | dostępna w ThatFishThatPlace |
| Plastikowa łyżka | dostępna w większości standardowych sklepów | ||
| Nożyczki preparacyjne | Fine Science Tools | 14091-09 | |
| Kleszcze preparacyjne | Dumont | SS | dostępne w Fine Science Tools |
| Stereoskop preparacyjny (ze źródłem światła przechodzącego) | Nikon | SMZ645 | lub odpowiednik |
| Odblaskowe źródło światła (ramiona LED) | Fostec | KL1600 LED | lub odpowiednik |
| Płytki Petriego o średnicy | dowolna maszyna | ||
| Probówki Eppendorfa 1,5 ml | dowolna maszyna | ||
| Wiaderko | na lóddowolny producent | ||
| Wąska szpatułka | Fisher | 14-374 | |
| Szklana płyta depresyjna | Corning Inc | 722085 (Fisher kat. Nr 13-748B) | dostępne w Fisher Scientific |
| Ręczniki | dowolnego producenta | ||
| Kimwipes | Kimberly-Clark | 06-666-11 | dostępne w Fisher Scientific |
| Timer stoper | dowolnego producenta | ||
| Butelka do mycia | Thermo Scientific | 24020500 | dostępna w zlewkach Fisher Scientific |
| , 250 ml (2) | Corning Inc. | 1000250 | dostępne w Fisher Scientific |
| Leibovitz'z L-15 medium | Thermofisher | 11415064 | |
| NaOH | Sigma | 221465 | do pomiaru pH |
| BSA | Sigma | A2058 | |
| 17alph-20beta-dihyroxy-4-pregnen-3-one (DHP) | Sigma | P6285 | |
| gentamycyna | Sigma | G1272 | |
| Aparat do wstrzykiwań | Eppendorf | FemtoJet | lub równoważny |
| Rurka kapilarna do igieł iniekcyjnych | FHC | 30-30-1 | lub odpowiednik, Borosil 1,0 mm OD x 0,5 mm ID z włóknem, 100 mm |
| Ściągacz igieł | Sutter Instruments | Model P-87 | dowolna produkcja |
| Mikropipetor (1 - 20 i mikro; seria L) z końcówkami | dowolnego producenta | ||
| Mikropipetor (20 - 200 i mikro; seria L) z końcówkami | dowolnego producenta | ||
| Mikropipetor (100 - 1000 &; Seria L) z końcówkami | dowolny producent | ||
| Probówki stożkowe 15 ml | dowolnego producenta | ||
| Rurki stożkowe 50 ml | pipeta plastikowa dowolnego producenta | ||
| 10 ml z żarówką | pipeta plastikowa dowolnego producenta | ||
| 20 ml z żarówką | dowolny producent | ||
| Stolik mikroskopowy Szkiełko kalibracyjne 0,01 mm | AmScope | MR095 | lub równoważne |
| odczynniki do wody dla ryb: | |||
| Instant Ocean Salt | Drs. Foster & Kowalski | CD-116528 | |
| Wodorowęglan sodu (testowany na kulturach komórkowych) | Sigma | S5761-1KG | |
| Odczynniki do podłoża E3: | |||
| NaCl | Sigma | S5886-1KG | |
| KCl | Sigma | P5405-500G | |
| CaCl2, dwuwodny | Sigma | C7902-500G | |
| MgSO4, heptahydrate | Sigma | 63138-250G | |
| Methylene Blue | Sigma | M9140-25G | |
| Pokarm dla ryb: | |||
| Mrożone krewetki solankowe | Krewetki solankowe Bezpośrednie | FBSFKG50 | |
| Płatki tetramiczne | Drs. Foster & Kowal | 16623 |
Bibliografia
- Lindeman, R., Pelegri, F. Vertebrate maternal-effect genes: insights into fertilization, early cleavage divisions, and germ cell determinant localization from studies in the zebrafish. Mol Rep Dev. 77 (4), 299-313 (2010).
- Abrams, E. W., Mullins, M. C. Early zebrafish development: it's in the maternal genes. Curr Opin Genet Dev. 19 (4), 396-403 (2009).
- Nair, S., Lindeman, R. E., Pelegri, F. In vitro oocyte culture-based manipulation of zebrafish maternal genes. Dev Dyn. 242 (1), 44-52 (2013).
- Selman, K., Petrino, T. R., Wallace, R. A. Experimental conditions for oocyte maturation in the zebrafish, Brachydanio rerio. J Exp Zool. 269 (6), 538-550 (1994).
- Fauvel, C., Omnes, M. H., Suquet, M., Normant, Y. Reliable assessment of overripening in turbot (Scophtalmus maximus) by a simple pH measurement. Aquaculture. 117 (1-2), 107-113 (1993).
- Lahnsteiner, F., Weismann, T., Patzner, R. A. Composition of the ovarian fluid in 4 salmonid speices: Onchorhynchus mykiss, Salmo trutta flacustris, Salvelinus alpinus and Husho hucho. Reprod Nutr Dev. 35 (5), 465-474 (1995).
- Patiño, R., Bolamba, D., Thomas, P., Kumakura, N. Effects of external pH on hormonally regulated ovarian follicle maturation and ovulation in Atlantic croaker. Gen Comp Endocrinol. 141 (2), 126-134 (2005).
- Seki, S., et al. Development of a reliable in vitro maturation system for zebrafish oocytes. Reproduction. 135 (3), 285-292 (2008).
- Selman, K., Wallace, R. A., Sarka, A., Qi, X. Stages of oocyte development in the zebrafish, Brachydanio rerio. J Morphol. 218 (2), 203-224 (1993).
- Clelland, E., Peng, C. Endocrine/paracrine control of zebrafish ovarian development. Mol Cell Endocrinol. 312 (1-2), 42-52 (2009).
- Kane, D. A., Kimmel, C. B. The zebrafish midblastula transition. Development. 119 (2), 447-456 (1993).
- Kanagaraj, P., et al. Souffle/Spastizin controls secretory vesicle maturation during zebrafish oogenesis. PLoS Genet. 10 (6), e1004449(2014).
- Brand, M., Granato, M., Nüsslein-Volhard, C. Keeping and raising zebrafish,Zebrafish - A Practical Approach. Nüsslein-Volhard, C., Dahm, R. , Oxford University Press. Oxford. 7-37 (2002).
- Connoly, M. H., Dutkosky, R. M., Heah, T. P., Sayler, G. S., Henry, T. B. Temporal dynamics of oocyte growth and vitellogenin gene expression in zebrafish (Danio rerio). Zebrafish. 11 (2), 107-114 (2014).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of zebrafish embryos to analyze gene function. J Vis Exp. (25), e1115(2009).
- Pelegri, F., Mullins, M. Genetic screens for mutations affecting adult traits and parental-effect genes. Meth Cell Biol. 104, 83-120 (2011).
- Baars, D. L., Takle, K. A., Heier, J., Pelegri, F. Ploidy manipulation of zebrafish embryos with Heat Shock 2 treatment. J Vis Exp. , (2016).
- Kimmel, C., Ballard, W. W., Kimmel, S. R., Ullman, B., Schilling, T. F. Stages of embryonic development in the zebrafish. Dev Dyn. 203 (3), 253-310 (1995).
- Eisen, J. S., Smith, J. C. Controlling morpholino experiments: don't stop making antisense. Development. 135 (10), 1735-1743 (2008).
- Schulte-Merker, S., Stainier, D. Y. R. Out with the old, in with the new: reassessing morpholino knockdowns in light of genome editing technology. Development. 141 (16), 3103-3104 (2014).
- Dekens, M. P. S., Santoriello, C., Vallone, D., Frassi, G., Whitmore, D., Foulkes, N. S. Light regulates the cell cycle in zebrafish. Curr Biol. 13 (23), 2051-2057 (2003).
- Sakai, N., Burgess, S., Hopkins, N. Delayed in vitro fertilization of zebrafish eggs in Hank's saline containing bovine serum albumin. Mol Mar Biotechnol. 6 (2), 84-87 (1997).
- Pelegri, F., Mullins, M. C. Genetic screens for mutations affecting adult traits and parental-effect genes. Meth Cell Biol. 135, (2016).
- Lindeman, R. E., Pelegri, F. Localized products of futile cycle/lrmp promote centrosome-nucleus attachment in the zebrafish zygote. Curr Biol. 22 (10), 843-851 (2012).
- Nair, S., Marlow, F., Abrams, E., Kapp, L., Mullins, M., Pelegri, F. The chromosomal passenger protein Birc5b organizes microfilaments and germ plasm in the zebrafish embryo. PLoS Genetics. 9 (4), e1003448(2013).
- Eno, C., Solanki, B., Pelegri, F. aura (mid1ip1l) regulates the cytoskeleton at the zebrafish egg-to-embryo transition. Development. 143 (9), 1585-1599 (2016).
Przedruki i uprawnienia
