Tutaj prezentujemy protokół do sekcji próbki ludzkiej pępowiny (UC) i łożyska płodu na błonę śluzową pępowiny (CL), galaretkę Whartona (WJ), połączenie pępowina-łożysko (CPJ) i łożysko płodu (FP) w celu izolacji i charakterystyki mezenchymalnych komórek zrębu (MSC) przy użyciu techniki hodowli eksplantatów.
Artykuł metodologiczny
Izolacja i charakterystyka mezenchymalnych komórek zrębu z ludzkiej pępowiny i łożyska płodu
W tym artykule
Podsumowanie
Streszczenie
Ludzka pępowina (UC) i łożysko są nieinwazyjnymi, prymitywnymi i obfitymi źródłami mezenchymalnych komórek zrębu (MSC), które coraz częściej zyskują na znaczeniu, ponieważ nie stanowią żadnego etycznego czy moralnego problemu. Obecne metody izolacji MSC z UC dają niewielką ilość komórek o zmiennym potencjale proliferacji. Ponieważ UC jest anatomicznie złożonym narządem, różnice we właściwościach MSC mogą wynikać z różnic w anatomicznych regionach ich izolacji. W tym badaniu najpierw przeprowadziliśmy sekcję próbek pępowiny/łożyska na trzy odrębne obszary anatomiczne: UC, połączenie pępowiny-łożysko (CPJ) i łożysko płodu (FP). Po drugie, oddzielono dwie odrębne strefy, wyściółkę sznura (CL) i galaretkę Whartona (WJ). Następnie zastosowano technikę hodowli eksplantatów w celu wyizolowania komórek z czterech źródeł. Czas potrzebny na pierwotną hodowlę komórek z eksplantatów różnił się w zależności od źródła tkanki. Wzrost komórek nastąpił w ciągu 3 - 4 dni od eksplantatów CPJ, podczas gdy wzrost obserwowano po 7 - 10 dniach i 11 - 14 dniach odpowiednio od eksplantatów CL / WJ i FP. Wyizolowane komórki przylegały do tworzywa sztucznego i wykazywały morfologię fibroblastoidów oraz markery powierzchniowe, takie jak CD29, CD44, CD73, CD90 i CD105, podobnie jak MSC pochodzące ze szpiku kostnego (BM). Jednak wydajność tworzenia kolonii komórek była zróżnicowana, przy czym CPJ-MSC i WJ-MSC wykazywały wyższą wydajność niż BM-MSC. MSCs ze wszystkich czterech źródeł różnicowały się w linie adipogenne, chondrogeniczne i osteogenne, co wskazuje, że były multipotencjalne. CPJ-MSC różniły się bardziej efektywnie w porównaniu z innymi źródłami MSC. Wyniki te sugerują, że CPJ jest najsilniejszym regionem anatomicznym i daje większą liczbę komórek, z większą zdolnością do proliferacji i samoodnawiania się in vitro. Podsumowując, analiza porównawcza MSCs z czterech źródeł wykazała, że CPJ jest bardziej obiecującym źródłem MSCs w terapii komórkowej, medycynie regeneracyjnej i inżynierii tkankowej.
Wprowadzenie
Komórki macierzyste są obecne w różnych organach i tkankach ciała. Posiadają potencjał regeneracyjny i odgrywają główną rolę w naprawie uszkodzonych tkanek w organizmie przez cały okres życia człowieka1,2. Wzbudziło to duże zainteresowanie dorosłymi komórkami macierzystymi (ASC), zwłaszcza że w przeciwieństwie do embrionalnych komórek macierzystych (ESC) stosowanie ASC nie stwarza dylematów moralnych i etycznych. W kilku badaniach opisano izolację ASC, takich jak mezenchymalne komórki zrębu (MSC); hematopoetyczne komórki macierzyste (HSC); oraz różnych przodków, w tym różne źródła dla dorosłych, od szpiku kostnego (BM) po tkankę tłuszczową (AT) i miazgę zębową3,4,5. Jednak liczba ASC obecnych w większości dorosłych nisz jest ograniczona, a ich izolacja na ogół wiąże się z inwazyjną i bolesną procedurą, która może powodować zachorowalność w miejscu dawczym. Ponadto wiek dawcy i stres środowiskowy mogą również odgrywać znaczącą rolę w określaniu jakości i aktywności biologicznej izolowanych komórek6,7,8. ASC wykazują również ograniczony potencjał namnażania i różnicowania podczas hodowli in vitro.
Aby przezwyciężyć te wady obecnych ASC, poszukiwano nowych źródeł do izolowania komórek macierzystych. Wysiłki te doprowadziły do wyizolowania komórek macierzystych ze źródeł okołoporodowych, w tym krwi pępowinowej, tkanki pępowinowej, łożyska i płynu owodniowego9. Źródła te zyskały uwagę ze względu na ich łatwą i obfitą dostępność10,11,12,13. Co więcej, tkanki okołoporodowe można pozyskać nieinwazyjnie, a komórki macierzyste z nich pochodzące są bardziej prymitywne niż ASC wyizolowane z dorosłych źródeł14,15. Są one izolowane z tkanek pobranych po urodzeniu i uważa się, że przeszły minimalne zmiany w genomie z powodu starzenia się i stresów środowiskowych16.
Jednak zgłaszane cechy komórek macierzystych ze źródeł okołoporodowych oraz ich potencjał do samoodnawiania się i różnicowania różnią się znacznie11,17. Może to częściowo wynikać z faktu, że ludzka pępowina (UC) jest złożonym narządem. Stawiamy hipotezę, że dyskretne regiony tkanki okołoporodowej tworzą specyficzne nisze odpowiedzialne za zmienność i bardziej prymitywny charakter tych komórek macierzystych w porównaniu z ASC pochodzącymi ze źródeł nieokołoporodowych. W tym badaniu opisano sekcję próbek pępowiny/łożyska na trzy odrębne obszary anatomiczne: UC, połączenie pępowiny-łożysko (CPJ) i łożysko płodu (FP). UC zostało następnie podzielone na dwie strefy: wyściółkę sznurową (CL) i galaretkę Whartona (WJ). Analiza wyizolowanych komórek z CL, WJ, CPJ i FP wykazała, że wszystkie wykazywały morfologię fibroblastoidów i ekspresję markerów MSC, ale różniły się potencjałem samoodnawiania i różnicowania. Komórki pochodzące z CPJ wykazywały wyższy wskaźnik proliferacji i potencjału samoodnawiania w porównaniu z komórkami pochodzącymi z UC i FP, co czyni je bardziej obiecującym źródłem terapii komórkowej, medycyny regeneracyjnej i inżynierii tkankowej.
Protokół
Próbki (n = 3) uzyskano od zdrowych, wyrażających zgodę dawców za pośrednictwem Beaumont Hospital BioBank, Royal Oak, MI i Providence Hospital, Southfield, MI zgodnie odpowiednio z HIC- (HIC #2012-101) i IRB- (IRB# 820662-3), zatwierdzonymi protokołami i przetworzonymi zgodnie z zatwierdzonymi przez IBC (#2858) Uniwersytetu Oakland, Rochester, MI.
1. Przetwarzanie ludzkiej pępowiny, połączenia pępowina z łożyskiem oraz łożyska płodu i komórek izolujących
- Pobrać w asepcie próbki UC o długości około 10 cm, w tym 5-6 cm podłączone do CPJ i 3-4 cm FP. Natychmiast umieścić każdą próbkę w pojemniku zbiorczym zawierającym pożywkę (DMEM z 4,500 mg/ml glukozy i roztworem antybiotyku (0,1% gentamycyny, 0,2% streptomycyny i 0,12% penicyliny)) i przechowywać w temperaturze 4 °C do czasu transportu do laboratorium, umieszczając ją na lodzie w styropianowym pudełku. Próbkę należy przetworzyć w temperaturze 4 °C w ciągu 2-4 godzin od pobrania.
- Umieścić próbkę na 150-milimetrowej szalce Petriego trzymanej na lodzie w komorze bezpieczeństwa biologicznego. Za pomocą igły i strzykawki przepłucz go kilkakrotnie lodowatym PBS, aby usunąć skrzepy krwi. Upewnij się, że próbka jest mokra z PBS podczas przetwarzania i nie pozwól jej wyschnąć. Aby zachować sterylność, z próbką należy obchodzić się w sposób aseptyczny przy użyciu autoklawowanego PBS i narzędzi chirurgicznych podczas przetwarzania próbki.
- Dokładnie zbadaj próbkę, aby zidentyfikować różne obszary anatomiczne: UC, CPJ i FP. Najpierw przeanalizuj UC. Przytrzymaj płodowy koniec UC kleszczami i ostrożnie wykonaj pierwsze cięcie tuż na górze CPJ za pomocą nożyczek. Wykonaj drugie cięcie poniżej CPJ, aby oddzielić CPJ (1,5 - 2,0 cm) od FP. Umieść oddzielone UC, CPJ i FP na oddzielnych szalkach Petriego do dalszej obróbki.
- Przetnij UC wzdłużnie za pomocą nożyczek i kleszczy, całkowicie odsłaniając naczynia krwionośne i otaczające WJ bez naruszania nabłonka.
- Zeskrob WJ z naczyń krwionośnych i wewnętrznego nabłonka podbłonka za pomocą skalpela, a następnie usuń naczynia krwionośne. Pamiętaj, aby zebrać pozostały okołonaczyniowy WJ pod naczyniami krwionośnymi i wokół nich, a następnie umieścić zebrany WJ na osobnej szalce Petriego.
- Zebrać pozostałą tkankę, wyściółkę pępowiny (CL), na oddzielnej szalce Petriego.
- Po oddzieleniu tkanek reprezentujących CL, WJ, CPJ i FP, zastąp PBS 3 - 5 ml komercyjnego roztworu trypsyny i oddzielnie pokrój każdą z tkanek na kawałki o średnicy od 1 do 2 mm za pomocą nożyczek.
- Inkubować fragmenty tkanek w dostępnym w handlu roztworze trypsyny w temperaturze 37 °C przez 30 minut w inkubatorze z 5% CO2 w celu częściowego roztrawienia próbek. Obserwuj częściowe trawienie, wizualizując uwalnianie komórek za pomocą mikroskopu z kontrastem fazowym.
- Do częściowo strawionych próbek dodać równą objętość pożywki hodowlanej (CM; DMEM z 4,500 mg / ml glukozy i 2 mM L-glutaminy, uzupełniony 10% ludzką surowicą / FBS i roztworem antybiotyku (0,1% gentamycyny, 0,2% streptomycyny i 0,12% penicyliny)) w celu zneutralizowania komercyjnego roztworu trypsyny. Przenieś zawartość do probówek wirówkowych o pojemności 50 ml i pozwól, aby częściowo strawione kawałki tkanki osiadły przez 3 minuty.
- Ostrożnie zassać supernatant, w tym pojedyncze komórki (nie rozszerzają się one wydajnie) i umieścić na płytce 15-20 częściowo strawionych fragmentów tkanek w kolbie do hodowli tkankowych o długości 75cm2 i dodać 9 ml CM. Inkubować w temperaturze 37 °C i nie naruszać kolb hodowlanych przez 2-3 dni, aby umożliwić przyleganie kawałków tkanki.
UWAGA: Pozostała część częściowo strawionych próbek tkanek może zostać poddana kriokonserwacji w celu przyszłej izolacji komórek. - Po 3 dniach inkubacji zmień CM i codziennie szukaj pojawienia się wyrostów komórek z eksplantatu; wzrost komórek powinien być widoczny z przylegających eksplantatów po 3-4 dniach, 7-10 dniach i 11-14 dniach inkubacji odpowiednio dla CPJ, CL/WJ i FP. Od tego momentu zmieniaj CM co 3 dni lub w razie potrzeby.
UWAGA: Wzrost komórek osiąga 70% konfluencji 7 - 10 dni po początkowym wyrosciu komórki z eksplantatu. Należy pamiętać, że nieprzylegające kawałki tkanek nie spowodują wzrostu komórek, dopóki nie przylgną do plastiku. Należy zachować ostrożność, aby nie naruszyć kolby w celu uniknięcia oderwania się przylegających kawałków tkanki. Jeśli po pierwszych 3 dniach hodowli pozostaną jakieś pływające kawałki, można je uratować, przenosząc je do nowej kolby w celu zamocowania.
UWAGA: Gdy wzrost komórek z eksplantatów tkanek osiągnie 70% konfluencji, należy je hodować. Jak wspomniano powyżej, MSC z CL/WJ, FP, CPJ i osiągną zbieg odpowiednio w ciągu 10 - 14 dni, 14 - 20 dni i 17 - 24 dni. - Aby wyhodować wyrosłe komórki z eksplantatów, należy rozdzielić komórki za pomocą 1-2 ml komercyjnego roztworu trypsyny/75-cm2 kolby hodowlanej i inkubować w temperaturze 37 °C przez 3 minuty. Zneutralizować za pomocą 1-2 ml CM i odwirować 1,500 x g przez 3 minuty. Upewnij się, że obracasz kolbę, dodając trypsynę, aby równomiernie rozprowadzić się w całym ciele.
- UWAGA: Granulowane komórki są uważane za pasaż 0 (P0) i zostaną zawieszone w CM, policzone i subhodowane przy gęstości wysiewu 1 x 10⁴ / cm2 w celu amplifikacji, charakterystyki i kriokonserwacji. Nadmiar komórek można poddać krioprezerwacji w temperaturze P0.
2. Charakterystyka izolowanych komórek
- Test skuteczności tworzenia kolonii (CFE)
- Pokryć 100-milimetrowe szalki Petriego (powierzchnia 60cm2) 0,1% żelatyny przez 30 minut i umieścić w inkubatorze CO2 w temperaturze 37 °C.
UWAGA: Chociaż nie jest to konieczne, powłoka żelatynowa poprawia przyleganie komórek. - Usunąć nadmiar żelatyny i wysiać na pokrytą płytkę komórkami P0 w stężeniu 1,63 komórek/cm2. Dodać 3 ml CM i inkubować w inkubatorze CO2 w temperaturze 37 °C.
- Monitoruj płytki z nasionami pod kątem wzrostu klonów za pomocą mikroskopii świetlnej (LM) i zmieniaj pożywkę co 3 dni.
- Po 10 - 14 dniach wzrostu komórek umyj szalki Petriego dwukrotnie PBS i utrwal komórki w 4% paraformaldehydzie przez 30 minut w temperaturze pokojowej.
UWAGA: Paraformaldehyd jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Zabarwić utrwalone komórki 0,1% fioletem krystalicznym przez 1 godzinę w temperaturze pokojowej i spłukać płytkę wodą z kranu, aż niezwiązana niebieska plama zniknie.
- Policz liczbę kolonii składających się z co najmniej 50 komórek za pomocą LM.
- Pokryć 100-milimetrowe szalki Petriego (powierzchnia 60cm2) 0,1% żelatyny przez 30 minut i umieścić w inkubatorze CO2 w temperaturze 37 °C.
- Ekspresja markerów powierzchni komórki
- Hoduj izolowane komórki do 70% konfluencji, dysocjuj z dostępnym w handlu roztworem trypsyny, a następnie przemyj i osadzaj przez odwirowanie przy 1,500 x g przez 3 minuty. Zawieś komórki w buforze FACS (1x PBS z 2% FBS i 0,1% azydkiem sodu).
UWAGA: Azydek sodu jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Wybarwić komórki (~ 106) przeciwciałami specyficznymi dla MSC znakowanymi FITC lub APC (przeciwciała sprzężone z FITC przeciwko: CD44 i CD90 lub przeciwciała sprzężone APC przeciwko: CD29, CD73 i CD105) w buforze FACS przez 30 minut w temperaturze 4 °C w ciemności.
- Odwirować wybarwione komórki przy 670 x g przez 5 minut, odessać supernatant i ponownie zawiesić komórki w 500 μl buforu FACS.
- Analizuj komórki barwione przeciwciałami za pomocą FACS zgodnie z protokołem producenta.
- Hoduj izolowane komórki do 70% konfluencji, dysocjuj z dostępnym w handlu roztworem trypsyny, a następnie przemyj i osadzaj przez odwirowanie przy 1,500 x g przez 3 minuty. Zawieś komórki w buforze FACS (1x PBS z 2% FBS i 0,1% azydkiem sodu).
3. Potencjał różnicowania
- Różnicowanie adipogenne
- Hodować izolowane komórki do 70% konfluencji, dysocjować z komercyjnym roztworem trypsyny, a następnie myć i osadzać przez odwirowanie przy 1,500 x g przez 3 minuty.
- W inkubatorze CO2 w temperaturze 37 °C hodować komórki w stężeniu 100 000 komórek/basenik na 6-dołkowej płytce zawierającej 2 ml CM.
- Po 24 godzinach zastąpić CM pożywką do różnicowania adipogennego (0,5 μM izobutyloksantyny, 1 μM deksametazonu, 10 μM insuliny i 200 μM indometacyny) i inkubować. Zmieniaj podłoże różnicujące co 3 dni lub tak często, jak to konieczne.
- Po 3 tygodniach inkubacji utrwalić komórki 2 ml 4% paraformaldehydu na studzienkę przez 30 minut w temperaturze pokojowej i zabarwić czerwonym olejem O, aby wykryć produkcję kropelek lipidów w celu analizy różnicowania adipogennego.
UWAGA: Paraformaldehyd jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Traktuj utrwalone komórki 60% izopropanolem (2 ml / dołek płytki 6-dołkowej) przez 5 minut.
- Zastąp izopropanol 2 ml czerwonej plamy olejowej O (przefiltruj 3 części plamy z czerwonego oleju O i 2 części wody destylowanej), inkubuj przez 15-30 minut w temperaturze pokojowej i przemyj 3-4 razy wodą z kranu, aby usunąć wszelkie niezwiązane plamy.
- Wizualizuj zabarwione na czerwono kropelki lipidów, wskazujące na linię komórek adipogennych, za pomocą LM.
- Różnicowanie chondrogenne
- Hoduj izolowane komórki do 70% konfluencji, dysocjuj z komercyjnym roztworem trypsyny i przemyj PBS.
- Aby osadzać komórki do indukcji chondrogennej, należy odwirować 250 000 komórek w probówce wirówkowej o pojemności 15 ml z 2 ml CM przy 11 000 x g przez 8 minut. Inkubować granulki przez noc w temperaturze 37 °C.
- Po 24 godzinach delikatnie zastąpić CM chondrogenną pożywką różnicującą (20 ng TGFβ1, 10 ng insuliny, 100 nM deksametazonu i 100 μM kwasu askorbinowego) bez naruszania osadu i kontynuować inkubację. Zmieniaj podłoże różnicujące co 3 dni lub tak często, jak to konieczne.
- Po 3 tygodniach inkubacji utrwalić komórki 2 ml 4% paraformaldehydu na studzienkę przez 30 minut w temperaturze pokojowej. Kriosekcja i barwienie 1% błękitem toluidynowym w celu zbadania obecności lub produkcji macierzy zewnątrzkomórkowej w celu określenia różnicowania chondrogennego.
UWAGA: Paraformaldehyd jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Do kriosekcji delikatnie umyj zebrane granulki komórek dwukrotnie PBS i utrwal 1 ml 4% paraformaldehydu przez 30 minut w temperaturze pokojowej.
UWAGA: Paraformaldehyd jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Przemyć granulki dwukrotnie PBS w celu usunięcia paraformaldehydu i przenieść do roztworu sacharozy/OCT (1:2, 20% sacharoza:OCT). Inkubować w temperaturze pokojowej przez 24 godziny, aby roztwór całkowicie wsiąkł w osady komórkowe; Umożliwi to płynne sekcjonowanie.
- Przenieś granulki do foremek OCT. Zamrażać formy w temperaturze -20 °C przez 4 - 6 godzin i kriosekcję około 10 - 12 mikronów odcinków granulek komórek za pomocą kriostatu do barwienia błękitem toluidyny.
- Delikatnie przemyć kriosekcje PBS; dodać kilka kropli 1% niebieskiej plamy toluidynowej, całkowicie pokrywając skrawki osadów na szkiełku; i inkubować przez 1 godzinę w temperaturze pokojowej.
- Umyj szkiełka kilkakrotnie PBS w celu odbarwienia. Usuń nadmiar plamy, zanurzając szkiełko w roztworze alkoholu na bazie HCl (95% alkoholu + 0,5 ml HCl) kilka razy, aż zniknie niezwiązany niebieski kolor. Zamontuj zabarwione sekcje za pomocą 100 μl roztworu montażowego w celu długotrwałej konserwacji szkiełek.
UWAGA: Niebieskie zabarwienie skrawków wskazuje na obecność glikozaminoglikanów i glikoprotein i będzie można je obserwować za pomocą LM.
- Różnicowanie osteogenne
- Ponownie hoduj izolowane komórki do 70% konfluencji, dysocjuj z komercyjnym roztworem trypsyny, a następnie umyj i osadź przez odwirowanie przy 1,500 x g przez 3 minuty.
- Subhodowla komórek w stężeniu 100 000 komórek/basenik na 6-dołkowych płytkach zawierających 2 ml CM w inkubatorze CO2 w temperaturze 37 °C.
- Po 24 godzinach zastąpić CM osteogennym podłożem różnicującym (0,1 μM deksametazonu, 10 μM β-glicerofosforanu i 50 μM fosforanu askorbinianu) i kontynuować inkubację. Zmieniaj podłoże różnicujące co 3 dni lub tak często, jak to konieczne.
- Po 3 tygodniach inkubacji utrwalić komórki 2 ml 4% paraformaldehydu na studzienkę przez 30 minut w temperaturze pokojowej i zabarwić czerwienią alizarynową, aby wykryć obecność osadów wapnia w celu określenia różnicowania osteogennego.
UWAGA: Paraformaldehyd jest toksyczny. Prosimy o zachowanie ostrożności podczas noszenia rękawiczek i okularów podczas użytkowania. - Delikatnie umyj utrwalone komórki dwukrotnie wodą destylowaną i potraktuj 2% czerwoną plamą alizaryny (2 ml / studzienkę na 6-dołkowej płytce) przez 1 godzinę w temperaturze pokojowej w ciemności.
- Usuń nadmiar plamy, delikatnie myjąc ją wodą z kranu, aby osady wapnia nie zniknęły.
- Wizualizacja zabarwionych na czerwono osadów wapnia za pomocą LM.
4. Ilościowa analiza reakcji łańcuchowej polimerazy z odwrotną transkryptazą (qRT-PCR)
- Hoduj izolowane komórki do 70% konfluencji, dysocjuj z komercyjnym roztworem trypsyny, przemyj i osadzaj przez wirowanie przy 1,500 x g przez 3 minuty, aby wyizolować całkowity komórkowy RNA.
- Umyj komórki PBS, aby usunąć ślady FBS, a następnie przystąp do izolacji RNA za pomocą dostępnego w handlu zestawu do oczyszczania RNA, postępując zgodnie z instrukcjami producenta.
- Oczyść wyizolowany całkowity RNA przez traktowanie DNazą w temperaturze 37 °C przez 30 minut przy użyciu termocyklera. Zsyntetyzuj cDNA za pomocą komercyjnego zestawu zgodnie z instrukcjami producenta.
- Przygotować trzykrotnie 10 μl reakcji PCR na 96-dołkowej płytce, przy czym każda reakcja zawiera 5 μl supermiksu SYBR-green PCR, 3 μl podwójnie destylowanej wody, 0,5 μl każdego startera, do przodu i do tyłu; oraz 1 μl rozcieńczonego (1:10) cDNA.
- Wykonaj PCR w następujących parametrach: 10 minut w temperaturze 98 °C, a następnie 44 cykle po 30 s każdy w temperaturze 98 °C, 20 s w 60 °C i 30 s w temperaturze 72 °C.
- Normalizować amplifikację genów docelowych do genów referencyjnych, GAPDH i β-ACTIN; sekwencje starterów są wymienione w Tabeli 1.
5. Analiza statystyczna
- Wykonuj wszystkie analizy za pomocą oprogramowania statystycznego. Przedstaw dane jako średnią ± SEM. Wyniki z wartością p (**p ≤ 0,01 i *p ≤ 0,05) uznano za istotne statystycznie.
Wyniki
Disekcja i izolacja komórek z ludzkiej pępowiny, połączenia pępowina-łożysko oraz łożyska płodowego
Tkanka okołoporodowa składa się z trzech odrębnych obszarów anatomicznych. Pierwszym z nich jest pępowina (UC), zawierająca dwie tętnice i jedną żyłę, a także dwie wyraźne strefy: powłokę pępowiny (CL – zewnętrzna warstwa pępowiny) oraz galaretkę Whartona (WJ – galaretowata substancja otaczająca naczynia krwionośne wewnątrz pępowiny). Drugim obszarem jest miejsce połączenia pępowiny z łożyskiem (CPJ), a trzecim jest płytka łożyskowa (FP), która znajduje się bezpośrednio za CPJ (pępowina wprowadza się do łożyska, które jest przytwierdzone do ściany macicy matki). Schemat protokołu izolacji komórek z tkanki okołoporodowej przedstawiono na Ryc. 1. Cztery źródła – CL, WJ, CPJ i FP – są wyraźnie identyfikowalne i zostały rozdzielone w celu izolacji komórek z eksplantów, jak pokazano na Ryc. 2. Pojawienie się przerostu komórek z kultur eksplantów było rutynowo monitorowane i rejestrowane za pomocą LM. Adherentne komórki fibroblastoidalne zaobserwowano po 3-4 dniach hodowli eksplantów CPJ. Komórki o podobnej morfologii pojawiły się odpowiednio 7-8, 9-10 i 11-14 dni po hodowli eksplantów WJ, CL i FP. Przerost komórek z eksplantów reprezentujących różne źródła (CL, WJ, CPJ i FP) przedstawiono na Ryc. 3A. Komórki te uznano za P0. Po pasażowaniu komórek P0 wydawały się one rosnąć klonalnie, wykazując morfologię fibroblastoidalną podobną do BM-MSCs. Wykazywały one jednak różnice w czasie podwojenia populacji, który wynosił od 32 h do 94 h dla komórek z CPJ i FP, jak pokazano na Ryc. 3B i C. Komórki z WJ i CL miały podobne czasy podwojenia, pośrednie między CPJ a FP. Dalsza analiza komórek P0 wykazała, że różniły się one również pod względem CFE, w zakresie od 16 do 92 kolonii. Komórki z CPJ miały najwyższy (92), natomiast komórki FP najniższy (16) wskaźnik CFE. Komórki z CL i WJ miały wartości CFE wynoszące odpowiednio 59 i 80 kolonii (Ryc. 4A-C). Komórki z CL miały wartości CFE zbliżone do BM-MSCs. Wyniki te sugerują, że komórki pochodzące z CPJ posiadają wyższe zdolności proliferacyjne i zdolność do samoodnowy.
Immunoprofil wyizolowanych komórek
Badano ekspresję markerów specyficznych dla komórek w komórkach wyizolowanych z CL, WJ, CPJ oraz FP. Komórki P3-5 wykazały pozytywną ekspresję markerów MSC, takich jak CD29, CD44, CD73, CD90 i CD105 (Rysunek 5A i B). Znane jest również, że komórki te wykazują ekspresję markera głównego układu zgodności tkankowej klasy I, HLA-ABC, i nie wykazują ekspresji markera klasy II, HLA-DR3. Procenty komórek pozytywnych dla tych wybranych markerów ze wszystkich czterech źródeł były zbliżone do wartości ekspresji w standardowych BM-MSCs. Jednakże stosunki MFI wskazują, że komórki pochodzące z WJ i CPJ są niemal identyczne i wykazują nawet wyższe wartości niż komórki pochodzące z CL i FP (Rysunek 5C). Co ciekawe, pomimo zróżnicowanych wartości CFE, wszystkie komórki z różnych źródeł wykazywały podobne poziomy markerów MSC. Na podstawie wyników analizy markerów powierzchniowych komórki wyizolowane ze wszystkich czterech źródeł uznano za MSCs. Dalsza analiza tych komórek wykazała, że wykazują one również ekspresję genów pluripotencji: OCT4, NANOG, KLF4 i SOX2, co przedstawiono na Rysunku 5D. CPJ-MSCs charakteryzowały się najwyższą ekspresją markerów pluripotencji, następnie WJ-, CL- oraz FP-MSCs.
Potencjał różnicowania wyizolowanych MSC
Złotym standardem charakteryzacji MSC jest ich zdolność do różnicowania się w wiele linii komórkowych. Nasze wyniki wykazały, że wyizolowane MSC ze wszystkich źródeł okołoporodowych łatwo różnicowały się w typy komórek adipogennych, chondrogennych i osteogennych. Pochodne adipogenne wytworzyły krople lipidów, które zostały pozytywnie zabarwione Oil Red O, co przedstawiono na Rysunku 6A. Barwienie błękitem toluidynowym pochodnych chondrogennych MSC wykazało obecność proteoglikanów i glikoprotein, które wspomagały produkcję macierzy zewnątrzkomórkowej (Rysunek 6B). Pochodne osteogenne MSC pozytywnie zabarwione alizaryną czerwoną wskazują na obecność złogów wapnia uczestniczących w mineralizacji kości, co pokazano na Rysunku 6C.
Zgodnie z oczekiwaniami, analiza transkrypcyjna wyizolowanych MSC z wszystkich źródeł wykazała różnicowanie trójliniowe (Ryc. 6D-F). Jednak potencjał różnicowania różnił się w zależności od źródła MSC. Pochodne adipogenne WJ-MSCs wykazywały 2-krotnie wyższe poziomy ekspresji wybranych genów adipogennych (CEBPβ, FABP4 i PPARγ) w porównaniu do CPJ-MSCs. CL- i FP-MSCs wykazały najniższą ekspresję tych genów. W przypadku różnicowania chondrogennego pochodne CPJ-MSCs wykazywały 50-krotnie wyższą ekspresję wybranych genów chondrogennych (SOX9 i COL2) niż pochodne WJ- i FP-MSCs. Podobnie jak w przypadku słabego różnicowania adipogennego CL-MSCs, wykazały one niższy potencjał chondrogenny, co potwierdzała najniższa ekspresja genów chondrogennych. CPJ-MSCs wykazały również najwyższy potencjał różnicowania osteogennego, o czym świadczyły 2-krotnie wyższe poziomy transkrypcji wybranych genów osteogennych (COL1, OPN i OCN). Jednak ekspresja markera progenitorowego RUNX2 była najwyższa w pochodnych osteogennych WJ-MSCs, co wskazuje, że komórki te wolniej reagowały na warunki różnicowania. Ponownie CL-MSCs wykazały słabe różnicowanie w linii osteogennej. Wyniki te sugerują, że CPJ-MSCs i WJ-MSCs wykazały większy potencjał różnicowania niż CL- i FP-MSCs. CL-MSCs miały najniższy potencjał różnicowania w pochodne trójliniowe.

Rysunek 1: Schemat izolacji komórek z ludzkiej pępowiny, połączenia pępowina-łożysko oraz łożyska płodowego. Obejrzeć pobraną próbkę i przystąpić do sekcji. Krok 1. Ręcznie wyciąć i rozdzielić próbkę pępowiny/łożyska na trzy oddzielne obszary: pępowinę (UC), połączenie pępowina-łożysko (CPJ) oraz łożysko płodowe (FP). Rozdzielić dwie wyraźne strefy UC na wyściółkę pępowiny (CL) i galaretkę Whartona (WJ) za pomocą nożyczek i pęsety. Krok 2. Każdą z wyciętych tkanek pociąć oddzielnie na kawałki o wielkości 1-2 mm za pomocą nożyczek i poddać kawałki częściowemu trawieniu. Krok 3. Hodować fragmenty tkanek. Krok 4. Izolować komórki z eksplantów poprzez traktowanie trypsyną. Przeprowadzić subkulturę i charakterystykę izolowanych komórek. Krok 5. Izolowane i scharakteryzowane komórki mogą być namnażane i wykorzystywane w różnych zastosowaniach. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
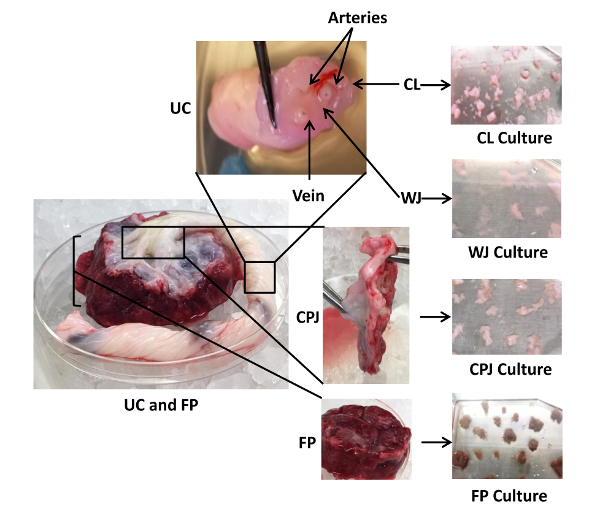
Rysunek 2: Disekcja i hodowla eksplantów z ludzkiej pępowiny, połączenia pępowina-łożysko oraz łożyska płodowego. Przedstawiono trzy różne regiony anatomiczne próbki pępowiny/łożyska: UC (podzielona na CL i WJ), CPJ oraz FP, a także powiązane z nimi tętnice i żyły. CL, WJ, CPJ i FP zostały rozdzielone poprzez manualną disekcję w celu wyizolowania komórek z eksplantów. Każdy z wypreparowanych regionów został oddzielnie pocięty na małe fragmenty i poddany hodowli w płytkach 75-cm2 z zastosowaniem 9 mL CM. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
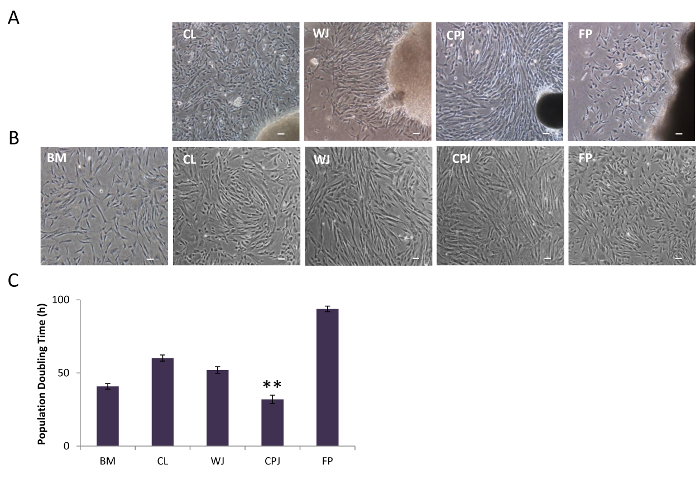
Rysunek 3: Morfologia komórek wyizolowanych z ludzkiej pępowiny, złącza pępowina-łożysko i łożyska płodowego. (A) Wzrost komórek z eksplantatów CL, WJ, CPJ i FP w obrazowaniu LM. (B) Subkultura wyizolowanych komórek z eksplantatów CL, WJ, CPJ i FP wykazała morfologię fibroblastopodobną. Pasek skali oznacza 100 µm (powiększenie: 4X). (C) Czas podwojenia populacji komórek wyizolowanych z CL, WJ, CPJ i FP. Jako standard wykorzystano BM-MSCs. Słupki błędów reprezentują błąd standardowy średniej z pomiarów wykonanych w trzech powtórzeniach (**p ≤ 0.01 i *p ≤ 0.05). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
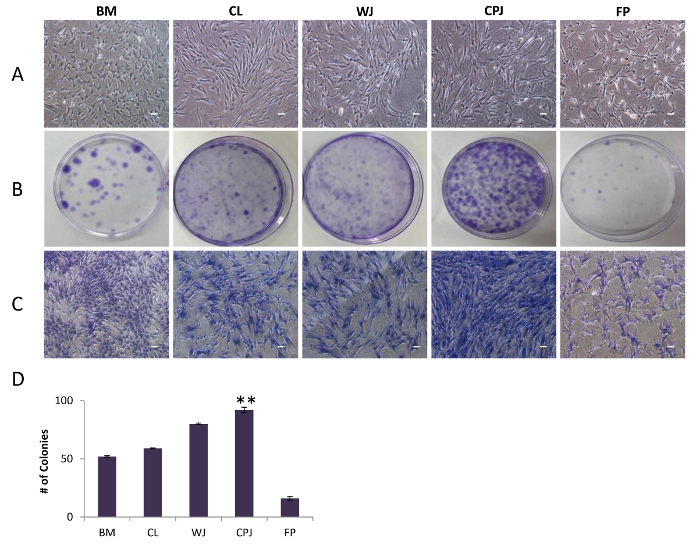
Rycina 4: Efektywność tworzenia kolonii przez komórki z ludzkiej pępowiny, złączenia pępowina-łożysko i łożyska płodowego. (A) Wzrost komórek (P0) wyizolowanych z CL, WJ, CPJ i FP, wysianych z gęstością klonalną 1,63 cells/cm2, zwizualizowany za pomocą LM. (B) Fotomikrografie komórek barwionych fioletem krystalicznym wykazujące zdolność do tworzenia kolonii. (C) Pojedyncza kolonia komórek barwiona fioletem krystalicznym. Paski skali reprezentują 100 µm (powiększenie: 4X). (D) Przedstawienie graficzne liczby kolonii utworzonych z komórek pochodzących z CL, WJ, CPJ i FP. Jako standard wykorzystano BM-MSCs. Słupki błędu reprezentują błąd standardowy średniej z pomiarów przeprowadzonych w trzech powtórzeniach (**p ≤ 0,01 oraz *p ≤ 0,05). Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
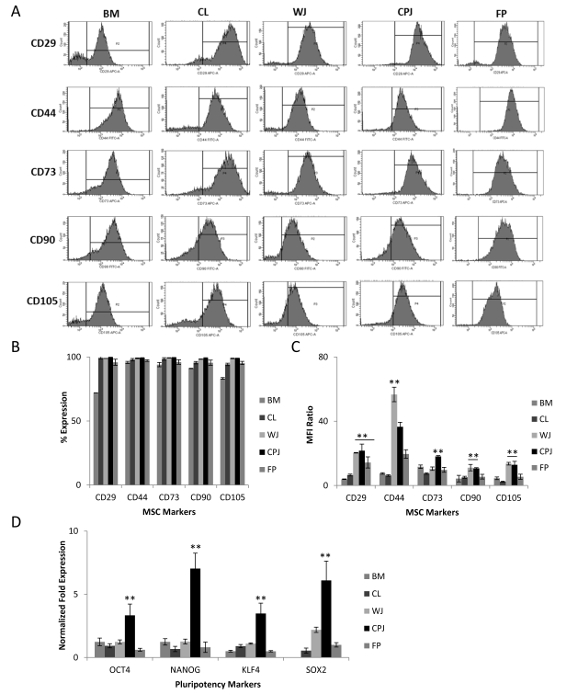
Rycina 5: Analiza markerów MSC eksprymowanych przez komórki izolowane z ludzkiej pępowiny, złączenia pępowina-łożysko oraz łożyska płodowego. (A) Ekspresja mezenchymalnych markerów powierzchniowych (CD29, CD44, CD73, CD90 i CD105) przez komórki z CL, WJ, CPJ i FP, określona za pomocą cytometrii przepływowej. (B i C) Graficzna reprezentacja procentów komórek dodatnich oraz stosunków mediany intensywności fluorescencji (MFI) dla wybranych mezenchymalnych markerów powierzchniowych. Stosunki MFI obliczono poprzez podzielenie wartości MFI markera (wygenerowanej przez oprogramowanie na podstawie intensywności fluorescencji bramkowanych populacji komórek) przez wartość MFI izotypu. Słupki błędów reprezentują błąd standardowy średniej z pomiarów trzykrotnych. (D) Ekspresja genów pluripotencji (OCT4, NANOG, KLF4 i SOX2) przez komórki z CL, WJ, CPJ i FP, określona za pomocą qRT-PCR. (**p ≤ 0.01 i *p ≤ 0.05). Ekspresję genów znormalizowano względem GAPDH i β-ACTIN, a słupki błędów reprezentują błąd standardowy średniej z pomiarów trzykrotnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 6: Wieloliniowe różnicowanie MSCs wyizolowanych z ludzkiej pępowiny, złączenia pępowina-łożysko oraz łożyska płodowego. (A) Komórki inkubowano w medium do różnicowania adipogennego przez 3 tygodnie i barwiono Oil Red O, co wskazuje na obecność kropel lipidowych. (B) Pellety komórkowe inkubowano w medium do różnicowania chondrogennego przez 3 tygodnie. Krioprzekroje histologiczne kultur pelletowych barwiono błękitem toluidyny, wykazując obecność glikozaminoglikanów. (C) Komórki inkubowano w medium do różnicowania osteogennego przez 3 tygodnie i barwiono alizaryną czerwienią, wykazując produkcję złogów wapnia sugerujących mineralizację kości. Wszystkie obrazy uzyskano za pomocą LM. Pasek skali reprezentuje 100 µm (powiększenie: 4X). Jako standard wykorzystano BM-MSCs. (D-F) Ekspresja wybranych genów (CEBPβ, FABP4 i PPARγ; SOX9, ACAN i COL2; oraz COL1, RUNX2, OPN i OCN reprezentujących odpowiednio różnicowanie MSCs w linie adipogenną, chondrogenną i osteogenną), określona za pomocą analizy qRT-PCR (**p ≤ 0.01 i *p ≤ 0.05). Ekspresję genów znormalizowano do GAPDH i β-ACTIN, a słupki błędów reprezentują standardowy błąd średniej z pomiarów wykonanych w trzech powtórzeniach. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
| Gen | Sekwencje starterów | Długość produktu |
| OCT4 | Forward-CCCCTGGTGCCGTGAA | 97 |
| Odwrotna-GCAAATTGCTCGAGTTCTTTCTG | ||
| NANOG | Forward- AAAGAATCTTCACCTATGCC | 110 |
| Odwrócona sekwencja: GAAGGAAGAGGAGAGACAGT | ||
| KLF4 | Forward- CGAACCCACACAGGTGAGAA | 94 |
| Odwrócona- TACGGTAGTGCCTGGTCAGTTC | ||
| SOX2 | Forward- TTGCTGCCTCTTTAAGACTAGGA | 75 |
| Odwrócona- CTGGGGCTCAAACTTCTCTC | ||
| SOX9 | Forward- AGCGAACGCACATCAAGAC | 85 |
| Odwrotna: CTGTAGGCGATCTGTTGGGG | ||
| COL2 | Forward- CTCGTGGCAGAGATGGAGAA | 252 |
| Odwrócona- CACCAGGTTCACCAGGATTG | ||
| ACAN | Forward- AGCCTGCGCTCCAATGACT | 103 |
| Odwrotna- GGAACACGATGCCTTTCACC | ||
| COL1 | Forward- AAGGTCATGCTGGTCTTGCT | 114 |
| Odwrócona- GACCCTGTTCACCTTTTCCA | ||
| RUNX2 | Forward- TGCTTCATTCGCCTCACAAA | 111 |
| Odwrócona: AGTGACCTGCGGAGATTAAC | ||
| OPN | Forward- CATACAAGGCCATCCCCGTT | 112 |
| Odwrócona- TGGGTTTCAGCACTCTGGTC | ||
| OCN | Forward- TAAACAGTGCTGGAGGCTGG | 191 |
| Odwrotna- CTTGGACACAAAGGCTGCAC | ||
| CEBPβ | Forward- TATAGGCTGGGCTTCCCCTT | 94 |
| Odwrócona sekwencja: AGCTTTCTGGTGTGACTCGG | ||
| FABP4 | Forward- TTAGATGGGGGTGTCCTGGT | 158 |
| Odwrócona sekwencja- GGTCAACGTCCCTTGGCTTA | ||
| PPARγ | Forward- GGCTTCATGACAAGGGAGTTTC | 74 |
| Odwrotna- ACTCAAACTTGGGCTCCATAAAG | ||
| GAPDH | Forward- ACAACTTTGGTATCGTGGAAGG | 101 |
| Odwrotna: GCCATCACGCCACAGTTTC | ||
| AKTYNA | Forward- AATCTGGCACCACACCTTCTAC | 170 |
| Odwrócona- ATAGCACAGCCTGGATAGCAAC |
Tabela 1: Lista sekwencji starterów ludzkich użytych w niniejszym badaniu.
Dyskusja
Niedawne postępy w badaniach nad komórkami macierzystymi nie tylko przyczyniły się do lepszego zrozumienia podstawowych procesów rozwoju, ale także stworzyły obiecujące możliwości wykorzystania komórek macierzystych w zastosowaniach biotechnologicznych, farmaceutycznych, terapii komórkowej, medycyny regeneracyjnej i inżynierii tkankowej 18,19,20. Podczas gdy pluripotencjalne EKM wyizolowane z wczesnych zarodków są najbardziej obiecujące, stoją one przed wyzwaniami technicznymi i dylematami etycznymi 21,22,23. Alternatywą są indukowane pluripotencjalne komórki macierzyste (iPSC) pochodzące z dorosłych komórek, ale one również borykają się z podobnymi problemami technicznymi i związanymi z bezpieczeństwem23. Ponadto komórki iPS mogą nie być stabilne genetycznie lub mogły ulec zmianom genetycznym, co ogranicza ich zastosowanie terapeutyczne. Komórki macierzyste zostały również zgłoszone w różnych tkankach i narządach postnatalnych. Najczęstszymi źródłami tych ASC są szpik kostny, tkanka tłuszczowa i mięśniowa. Jednak ASC ze źródeł postnatalnych mają ograniczony potencjał wzrostu i różnicowania24,25. Cierpią również z powodu starzenia się i narażenia na stresy środowiskowe, a zatem nie zawsze są skuteczne w zastosowaniach terapeutycznych 26,27,28. To skłoniło nas i innych do poszukiwania nowych źródeł komórek macierzystych, które są bardziej naiwne niż ASC.
Zbadaliśmy okołoporodowe źródła pierwotnych komórek macierzystych jako alternatywy dla ASC. W tym raporcie przedstawiamy niezawodną, solidną i prostą metodę izolowania ludzkich MSC od próbek pępowiny/łożyska. W porównaniu z innymi źródłami i metodami stosowanymi do izolacji ASC, metoda ta zapewnia skuteczną i nieinwazyjną metodę izolowania dużych ilości wysokiej jakości MSC. To dodatkowo podkreśla wyższy potencjał wzrostu i różnicowania okołoporodowych MSCs w porównaniu z MSCs ze źródeł dorosłych, takich jak BM.
UC łączące płód z łożyskiem jest dużym narządem z odrębnymi obszarami anatomicznymi, w tym dwiema tętnicami, żyłą, CL i WJ (tkanką otaczającą naczynia krwionośne). W kilku badaniach wykazano izolację MSCs z całego pasma rozdzielczego, WJ lub łożyska, o zmiennym potencjale wzrostu i różnicowania25,29. Niemniej jednak do tej pory w żadnym badaniu nie zbadano skutecznie i nie porównano komórek z różnych regionów anatomicznych próbki pępowiny/łożyska. Przedstawiamy tutaj systematyczną i prostą metodę preparacji UC, CPJ i połączonego FP w celu izolacji MSC. Pokazujemy również kompleksowy i prosty protokół charakteryzujący i oceniający jakość izolowanych komórek poprzez określenie ich zdolności do proliferacji, a także ich potencjału samoodnawiania i różnicowania. Ta metoda jest powtarzalna i daje dużą ilość MSCs najwyższej jakości.
Odkryliśmy, że częściowe trawienie fragmentów tkanek o wielkości 1-2 mm przy użyciu komercyjnego roztworu trypsyny w sposób powtarzalny dawało komórki z eksplantatów, podczas gdy całkowite trawienie tkanki na pojedyncze komórki miało słabą wydajność izolowanych komórek. Jednak jedno z badań wykazało, że większe eksplantaty tkankowe UC o wielkości około 10 mm były optymalne do izolacji komórek30. I odwrotnie, inne badanie sugerowało, że metoda eksplantatu tkanek skutkowała dłuższym cyklem hodowli i niższą wydajnością komórek w porównaniu z metodą trawienia enzymatycznego31. W poprzednich doniesieniach leczenie tkanek pępowinowych kolagenazą II i hialuronidazą, oddzielnie lub po trypsyny, przeprowadzono w celu wyizolowania komórek pępowinowych 32,33,34. Nie tylko istnieje duża różnorodność w metodach trawienia tkanki pępowinowej przed hodowlą, ale także izolowane komórki wydają się być niejednorodne. Stosowanie ostrych enzymów przez dłuższy czas może degradować błonę komórkową, wpływając na przyleganie komórek i proliferację. Wyniki tej metody wykazały, że częściowo strawione eksplantaty tkanek okołoporodowych zapewniały wzrost komórek bez powodowania rozległych uszkodzeń komórek, utrzymywały żywotność i dawały większe ilości jednorodnych populacji MSC.
Chociaż protokół sekcji i izolacji komórek z eksplantatów jest prosty, niektóre kroki mogą okazać się trudne. Po pierwsze, należy upewnić się, że eksplantat przylega do podłoża, pozwalając na ich przyczepienie się do powierzchni kolby hodowlanej. Można to ułatwić, stosując niewielką ilość pożywki, przykrywając tylko kawałki tkanek przez pierwsze 2 godziny hodowli, a następnie ostrożnie dodając pozostałą pożywkę. Po drugie, należy ograniczyć liczbę eksplantatów do mniej niż 15 na kolbę T75. Zbyt mała przestrzeń między kawałkami lub zbyt wiele kawałków w kolbie hamuje wzrost komórek. Po trzecie, fragmenty tkanek, które nie przyklejają się do powierzchni kolby hodowlanej po 3 dniach inkubacji, należy przenieść do nowej kolby w celu przylegania i hodowli. Po czwarte, fragmenty tkanek przeznaczone do hodowli powinny być wolne od resztek komórkowych, które hamują przyczepianie. Po piąte, hodowla dużych kawałków wymaga większej ilości pożywki i nie poprawia wydajności wzrostu komórek. Na koniec należy uważnie monitorować kultury eksplantatów, szczególnie po pojawieniu się przerostu komórek, ponieważ komórki mogą szybko zlewać się i różnicować w zależności od źródła tkanki. Kilka ograniczeń tej techniki obejmuje brak wiedzy specjalistycznej w zakresie analizowania próbek w celu oddzielenia CL, WJ, CPJ i FP; mała liczebność próby, co skutkuje niską wydajnością WJ; i opóźnione przetwarzanie - próbki muszą zostać przetworzone w ciągu 2-4 godzin od pobrania, aby uniknąć utraty odzysku komórek.
Złotym standardem w charakterystyce MSCs jest zdolność do przylegania do plastiku, tworzenia fenotypu fibroblastycznego i różnicowania się w wiele linii. Są to również powszechnie stosowane kryteria definiowania MSC zgodnie z opisem ISCT35. W tym badaniu komórki wyizolowane ze wszystkich czterech źródeł przylegały do plastiku i miały dodatnią ekspresję markerów MSC (CD29, CD44, CD73, CD90 i CD105), ale ujemną ekspresję markera hematopoetycznego CD45. Ponadto wykazywały one ekspresję ludzkiego antygenu leukocytarnego (HLA) klasy I, ale były ujemne dla HLA klasy II. W porównaniu z BM-MSC, komórki pochodzące z WJ i CPJ były wyższe. Wyniki te są zgodne z wcześniejszymi raportami MSC wywodzącymi się z UC 33,36,37,38. Ponadto nasze wyniki wykazały, że CL-, WJ-, CPJ-, FP-MSCs wyrażają geny pluripotencji, takie jak OCT4, NANOG i SOX2; jednak ich ekspresja była niższa niż w przypadku ESC, jak podano wcześniej39. Wyniki te były również zgodne z poprzednim badaniem, w którym stwierdzono ekspresję markerów pluripotencji w komórkach pochodzących okołoporodowo40. Co ciekawe, zaobserwowano, że ekspresja markera pluripotencjalnego była wyższa w CPJ-MSC niż w komórkach wyizolowanych z innych źródeł. Zauważono również, że UC-MSCs wykazywały większy potencjał samoodnawiania się niż BM-MSCs41. Co ciekawe, pomimo podobieństwa w charakterystyce fenotypowej, komórki wyizolowane z czterech źródeł miały zmienne wartości CFE. Jednak z wyjątkiem FP-MSC, wszystkie miały lepsze wartości CFE niż BMC. CPJ-MSC-MESC miały najwyższą wartość CFE i tempo proliferacji w porównaniu ze wszystkimi innymi MSC. Ponadto WJ- i CPJ-MSC wykazywały wyższy potencjał różnicowania niż BM-MSC. CL-MSC wykazywały najmniejszy potencjał różnicowania we wszystkich trzech liniach (tj. adipogennej, chondrogenicznej i osteogennej), podczas gdy CPJ-MSC miały najwyższy potencjał różnicowania trójliniowego, a FP-MSC wykazywały najmniejszy potencjał różnicowania adipogennego.
Podsumowując, nasze wyniki wykazały, że jakość i ilość wyizolowanych MSCs różniła się między czterema źródłami w próbce pępowiny/łożyska. CPJ-MSC miały większą zdolność do proliferacji i większy potencjał samoodnawiania. Były również silne w różnicowaniu się w trójliniowe typy komórek. Ze względu na krótki czas podwajania, CPJ-MSC mogą być szybko rozbudowywane 1000-krotnie i wykorzystywane do wysokoprzepustowych badań przesiewowych leków lub biomateriałów. Komórki te mogą być bardziej obiecującym źródłem zastosowań w terapii komórkowej i medycynie regeneracyjnej.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badanie było wspierane przez OU-WB ISCRM, Oakland University oraz Michigan Head and Spine Institute. N. Beeravolu i C. McKee otrzymali Provost Graduate Research Award od Oakland University. Dziękujemy S. Bakshi za zrecenzowanie manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM z 4,500 mg / ml glukozy | Invitrogen | 11995065 | |
| FBS | Aleken Biologicals | FBSS500 | |
| Izobutylo-metyloksantyna | Sigma | I5879-250mg | |
| Deksametazon | Sigma | D4902-100mg | |
| Insulina | Prospec | CYT-270 | |
| Indometacyna | Sigma | I7378-5G | |
| TGFβ 1 | Prospec | CYT-716 | |
| Kwas askorbinowy | Sigma | A-7631 | |
| 2-fosforan askorbinianu | Sigma | A-8960 | |
| β-glicerofosforan | Sigma | G-6251 | |
| TrypLE | Invitrogen | 50591419 | |
| zestaw do oczyszczania RNA | GeneJET Thermo Scientific | K0732 | |
| DNase | Promega | M6101 | |
| iScript kit | Biorad | 1708891 | |
| Sso-Advanced Universal SYBR Green Supermix Kit | Biorad | 1725274 | |
| 4% paraformaldehyd | Affymetrix | 19943 | |
| OCT | Thermo Scientific | SH75-125D | |
| Oil Red O | Amerykański MasterTech Scientific | STORO100 | |
| Błękit toluidynowy | Thermo Scientific | S71363 | |
| Kryształowy fiolet | Sigma | C3886 | |
| Czerwona plama alizaryny | Thermo Scientific | S25131 | |
| APC Mysz anty-ludzka CD29 | BD Biosciences | ||
| Mysz APC anty-ludzka CD34 | BD Biosciences | ||
| Mysz FITC anty-ludzka CD44 | BD Biosciences | ||
| Mysz FITC anty-ludzka CD45 | BD Biosciences | ||
| Mysz APC anty-ludzka CD73 | BD Biosciences | ||
| Mysz FITC anty-ludzka CD90 | BD Biosciences | ||
| Mysz APC anty-ludzka CD105 | BD Biosciences | ||
| Wirówka | IEC | 93522M-2 | |
| Inkubator CO2 | Thermo Scientific | Hera Cell 150i | |
| Mikroskop świetlny (LM) | Nikon Instruments Inc. | Olympus | |
| Thermo Scientific | 0267151B | ||
| Kriostat | Leica | CM3050 S | |
| FACS, Canto II i oprogramowanie Diva | , BD Biosciences | Pieśń II | |
| Termocykler | MJ Research Inc. | PTC-100 | |
| Bio-Rad | CFX96 |
Bibliografia
- Upadhyay, R. K. Role of regeneration in tissue repairing and therapies. J Regen Med Tissue Eng. 4 (1), 1(2015).
- English, K., Mahon, B. P., Wood, K. J. Mesenchymal stromal cells; role in tissue repair, drug discovery and immune modulation. Curr Drug Deliv. 11 (5), 561-571 (2014).
- Pak, J., Lee, J. H., Lee, S. H. Regenerative repair of damaged meniscus with autologous adipose tissue-derived stem cells. Biomed Res Int. 2014, 436029(2014).
- Hocking, A. M. Mesenchymal Stem Cell Therapy for Cutaneous Wounds. Adv Wound Care. 1 (4), New Rochelle. 166-171 (2012).
- Anthony, D. F., Shiels, P. G. Exploiting paracrine mechanisms of tissue regeneration to repair damaged organs. Transplant Res. 2 (1), 10(2013).
- Teschendorff, A. E., et al. Epigenetic variability in cells of normal cytology is associated with the risk of future morphological transformation. Genome Med. 4 (3), 24(2012).
- Liu, L., et al. Chromatin modifications as determinants of muscle stem cell quiescence and chronological aging. Cell Rep. 4 (1), 189-204 (2013).
- Bentivegna, A., et al. DNA Methylation Changes during In Vitro Propagation of Human Mesenchymal Stem Cells: Implications for Their Genomic Stability. Stem Cells Int. 2013, 192425(2013).
- Bieback, K., Brinkmann, I. Mesenchymal stromal cells from human perinatal tissues: From biology to cell therapy. World J Stem Cells. 2 (4), 81-92 (2010).
- Tobita, M., Tajima, S., Mizuno, H. Adipose tissue-derived mesenchymal stem cells and platelet-rich plasma: stem cell transplantation methods that enhance stemness. Stem Cell Res Ther. 6, 215(2015).
- Kim, D. W., et al. Wharton's jelly-derived mesenchymal stem cells: phenotypic characterization and optimizing their therapeutic potential for clinical applications. Int J Mol Sci. 14 (6), 11692-11712 (2013).
- Baraniak, P. R., McDevitt, T. C. Stem cell paracrine actions and tissue regeneration. Regen Med. 5 (1), 121-143 (2010).
- Díaz-Prado, S., et al. Human amniotic membrane as an alternative source of stem cells. Differentiation. 1, 162-171 (2011).
- Puissant, B., et al. Immunomodulatory effect of human adipose tissue-derived adult stem cells: comparison with bone marrow mesenchymal stem cells. Br J Haematol. 129 (1), 118-129 (2005).
- Christodoulou, I., Kolisis, F. N., Papaevangeliou, D., Zoumpourlis, V. Comparative Evaluation of Human Mesenchymal Stem Cells of Fetal (Wharton's Jelly) and Adult (Adipose Tissue) Origin during Prolonged In Vitro Expansion: Considerations for Cytotherapy. Stem Cells Int. 2013, 246134(2013).
- Dalous, J., Larghero, J., Baud, O. Transplantation of umbilical cord-derived mesenchymal stem cells as a novel strategy to protect the central nervous system: technical aspects, preclinical studies, and clinical perspectives. Pediatr Res. 71 (4), Pt 2 482-490 (2012).
- Escacena, N., Quesada-Hernandez, E., Capilla-Gonzalez, V., Soria, B., Hmadcha, A. Bottlenecks in the Efficient Use of Advanced Therapy Medicinal Products Based on Mesenchymal Stromal Cells. Stem Cells Int. 2015, (2015).
- Law, S., Chaudhuri, S. Mesenchymal stem cell and regenerative medicine: regeneration versus immunomodulatory challenges. Am J Stem Cells. 2 (1), 22-38 (2013).
- Brower, J., et al. Mesenchymal stem cell therapy and delivery systems in nonhealing wounds. Adv Skin Wound Care. 24 (11), 524-532 (2011).
- Angelos, M. G., Kaufman, D. S. Pluripotent stem cell applications for regenerative medicine. Curr Opin Organ Transplant. 20 (6), 663-670 (2015).
- Pera, M. F. Scientific considerations relating to the ethics of the use of human embryonic stem cells in research and medicine. Reprod Fertil Dev. 13 (1), 23-29 (2001).
- Espinoza, N., Peterson, M. How to depolarise the ethical debate over human embryonic stem cell research (and other ethical debates too). J Med Ethics. 38 (8), 496-500 (2012).
- Barrilleaux, B., Knoepfler, P. S. Inducing iPSCs to escape the dish. Cell Stem Cell. 9 (2), 103-111 (2011).
- Ding, D. C., Chang, Y. H., Shyu, W. C., Lin, S. Z. Human umbilical cord mesenchymal stem cells: a new era for stem cell therapy. Cell Transplant. 24 (3), 339-347 (2015).
- Jeschke, M. G., Gauglitz, G. G., Phan, T. T., Herndon, D. N., Kita, K. Umbilical Cord Lining Membrane and Wharton's Jelly-Derived Mesenchymal Stem Cells: the Similarities and Differences. J Tissue Eng Regen Med. 4, 21-27 (2011).
- Oh, J., Lee, Y. D., Wagers, A. J. Stem cell aging: mechanisms, regulators and therapeutic opportunities. Nat Med. 20 (8), 870-880 (2014).
- Burkhalter, M. D., Rudolph, K. L., Sperka, T. Genome instability of ageing stem cells-Induction and defence mechanisms. Ageing Res Rev. 23, Pt A 29-36 (2015).
- Adams, P. D., Jasper, H., Rudolph, K. L. Aging-Induced Stem Cell Mutations as Drivers for Disease and Cancer. Cell Stem Cell. 16 (6), 601-612 (2015).
- Seshareddy, K., Troyer, D., Weiss, M. L. Method to isolate mesenchymal-like cells from Wharton's Jelly of umbilical cord. Methods Cell Biol. 86, 101-119 (2008).
- Trivanovic, D., et al. Mesenchymal stem cells isolated from peripheral blood and umbilical cord Wharton's jelly. Srp Arh Celok Lek. 141 (3-4), 178-186 (2013).
- Yoon, J. H., et al. Comparison of explant-derived and enzymatic digestion-derived MSCs and the growth factors from Wharton's jelly. Biomed Res Int. 2013, 428726(2013).
- Steigman, S. A., Fauza, D. O. Isolation of mesenchymal stem cells from amniotic fluid and placenta. Curr Protoc Stem Cell Biol. 1, Chapter 1 (2007).
- Mennan, C., et al. Isolation and characterisation of mesenchymal stem cells from different regions of the human umbilical cord. Biomed Res Int. 2013, (2013).
- Conconi, M. T., Di Liddo, R., Tommasini, M., Calore, C., Parnigotto, P. P. Phenotype and differentiation potential of stem populations obtained from various zones of human umbilical cord-an overview. J Tissue Eng Regen Med. 4, 6-20 (2011).
- Dominici, M., et al. Minimal criteria for defining multipotent mesenchymal stromal cells. The International Society for Cellular Therapy position statement. Cytotherapy. 8 (4), 315-317 (2006).
- Weiss, M. L., et al. Human umbilical cord matrix stem cells: preliminary characterization and effect of transplantation in a rodent model of Parkinson's disease. Stem Cells. 24 (3), 781-792 (2006).
- Sarugaser, R., Lickorish, D., Baksh, D., Hosseini, M. M., Davies, J. E. Human umbilical cord perivascular (HUCPV) cells: a source of mesenchymal progenitors. Stem Cells. 23 (2), 220-229 (2005).
- Durnaoglu, S., Genc, S., Genc, K. Patient-specific pluripotent stem cells in neurological diseases. Stem Cells Int. 2011, 212487(2011).
- Beeravolu, N., et al. Isolation and comparative analysis of potential stem/progenitor cells from different regions of human umbilical cord. Stem Cell Res. 16 (3), 696-711 (2016).
- Nekanti, U., et al. Long-term expansion and pluripotent marker array analysis of Wharton's jelly-derived mesenchymal stem cells. Stem Cells Dev. 19 (1), 117-130 (2010).
- Nagamura-Inoue, T., He, H. Umbilical cord-derived mesenchymal stem cells: Their advantages and potential clinical utility. World J Stem Cells. 6 (2), 195-202 (2014).
Przedruki i uprawnienia
